
Мозг. Такой ли он особенный?
4. Не все мозги устроены одинаково.
По сути, мне хотелось подтвердить разнообразие в строении мозга у разных биологических видов; это был фундаментальный вопрос нейробиологии, но в то время мы плохо знали эту тему. Конечно, мы знали, из клеток каких типов состоит мозг: из нейронов, глиальных клеток и эндотелиальных клеток, образующих стенки мозговых кровеносных капилляров, которые доставляют мозгу кислород и питательные вещества, – но сколько этих клеток и в каких пропорциях они соотносятся друг с другом? Каковы правила, определяющие строение мозга, если такие правила вообще существуют? Сопровождается ли увеличение массы мозга у взрослых животных (масса и объем головного мозга – в данном случае взаимозаменяемые понятия[65]) просто добавлением пропорционального количества клеток всех перечисленных типов, или разные мозги по-разному и устроены, и пропорции соотношения клеток разных типов у них тоже разные? Имеет ли место какое-то единственное соотношение между размером мозга и числом в нем нейронов и других клеток, приложимо ли это соотношение универсально ко всем биологическим видам? То есть одинаково ли устроен мозг у животных разных видов?
Если бы это было так – а так думали в то время, когда я приступила к подсчету клеток, – то в мозгах одинаковой массы должно содержаться одинаковое число нейронов даже у животных, принадлежащих к разным родам и семействам; и чем больше мозг, тем больше нейронов он должен содержать у видов, не состоящих в родстве между собой. Был простой способ испытать эту гипотезу: должно найтись универсальное соотношение, связывающее массу головного мозга и число нейронов в нем среди всех видов млекопитающих животных, то есть любые два мозга одинаковой массы должны содержать одинаковое число нейронов.
В 2007 году мы имели достаточно данных по шести видам грызунов и по шести видам приматов (рис. 4.1) для того, чтобы проверить нашу гипотезу[66]. Нам впервые удалось выяснить, что, например, в мозге крысы содержится приблизительно 189 миллионов нейронов, в мозге агути – 795 миллионов, а в более крупном мозге капибары – 1,6 миллиарда нейронов[67]. У приматов, работая совместно с Джоном Каасом, мы обнаружили следующую картину: у мармозетки – 636 миллионов, у капуцина – 3,7 миллиарда, а у макака-резуса – 6,4 миллиарда нейронов[68]. Эти простые примеры показывают, что в мозге приматов средних размеров содержится намного больше нейронов, чем у самых крупных грызунов, то есть размер и внешний вид могут быть обманчивы. Здесь нам на помощь пришли математика и статистика: нам теперь не надо было полагаться на внешний вид.

Рис. 4.1. Крыса, мармозетка, ночная обезьяна, макак-резус и капибара расположены в порядке возрастания массы головного мозга. У обезьян обоих видов нейронов в мозге содержится больше, чем в мозге капибары, несмотря на то что масса головного мозга у них меньше. Числа нейронов обозначены: млн – миллион, млрд – миллиард.
Простая линейная зависимость массы головного мозга от числа нейронов в мозге каждого из этих наших первых грызунов и приматов (рис. 4.2) демонстрирует общее правило: чем больше в мозге нейронов, тем больше его масса – более крупный мозг, как правило, имеет и большее число нейронов. Но главный вопрос остается: всякий ли мозг становится больше при одинаковом приращении числа нейронов?
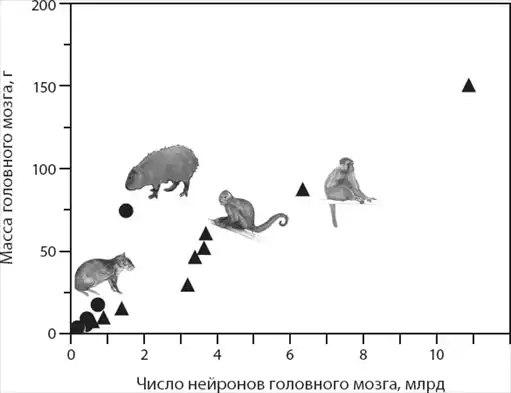
Рис. 4.2. Линейный график показывает, что, возможно, существует единая зависимость между массой мозга и числом нейронов в мозге как у грызунов (окружности), так и у приматов (треугольники), что делает капибару аутсайдером.
По графику линейной зависимости, приведенному на рис. 4.2, трудно выявить разницу между мелкими грызунами и приматами, точки которых располагаются в левом нижнем углу графика. Возникает впечатление, что единое отношение можно приложить ко всем этим видам за исключением капибары, точка которой отклоняется влево от точек приматов, как будто ее мозг имеет особенности строения, делающие ее аутсайдером, – похоже, что он слишком велик для числа содержащихся в нем нейронов. Всякое впечатление о двусмысленности исчезает, однако, если сделать график логарифмическим (рис. 4.3), то есть при использовании логарифмической шкалы на абсциссе и ординате. Как было сказано в главе 1, это стандартный прием, используемый в количественных биологических исследованиях и позволяющий отделять друг от друга самые мелкие значения, так как логарифмический график позволяет преобразовать степенную функцию в линейную, то есть кривая превращается в быстро восходящую прямую линию. Результат эквивалентен откладыванию логарифмических величин в линейном масштабе с тем преимуществом, что на графике становятся непосредственно видны нетрансформированные величины[69].

Рис. 4.3. Двойной логарифмический график показывает, что существуют разные отношения между массой мозга и числом нейронов в нем для грызунов (окружности) и приматов (треугольники). Линии ориентированы согласно степенной зависимости, которая наилучшим образом описывает изменения массы мозга как функции числа нейронов в мозге грызунов и приматов по отдельности, с показателем степени +1,6 у грызунов и +1,0 у приматов. Теперь капибара уже не выглядит аутсайдером: масса ее мозга соответствует предсказанной для числа в нем нейронов.
Логарифмический график на рис. 4.3 позволяет утверждать, что грызуны и приматы распределены по двум отдельным линиям, так что капибара на самом деле не является аутсайдером, если ее сравнивать с другими грызунами. Как уже было сказано в главе 1, точки полученных данных образуют линию логарифмического графика и указывают на степенную зависимость, когда показатели Y (данные по вертикальной оси) изменяются не пропорционально X (данным на горизонтальной оси) с постоянным коэффициентом пропорциональности, но изменяются пропорционально степени, в которую возводятся данные, отложенные по оси X (в данном случае обозначим этот показатель степени а). Следовательно, степенная функция в логарифмической шкале записывается как Y = Xa, в противоположность линейной функции, которая принимает значения Y = cX. Между прочим, линейная функция является частным случаем степенной функции при показателе степени, равном +1, то есть когда Y возрастает линейно по отношению к X. Но, если показатель степени становится существенно больше +1, Y начинает возрастать быстрее, чем X. Например, когда Y – это масса головного мозга, X – число нейронов мозга, а степенная зависимость, связывающая эти две величины, характеризуется показателем степени +1, то соотношение будет линейным, и если число нейронов возрастает в 10 раз, то и масса головного мозга возрастает во столько же раз. Однако если аллометрический показатель степени равен +2, то увеличение числа нейронов в 10 раз приведет к увеличению массы головного мозга в 100 раз.
В нашем первом анализе[70], в который не был включен мозг человека, мы обнаружили, что масса мозга приматов растет с увеличением числа нейронов в степенной зависимости при показателе степени +1, то есть, по существу, линейно, по мере увеличения видового числа нейронов. В самом деле, при весе 87 г мозг макака-резуса в десять раз тяжелее мозга мармозетки (который весит всего 7,8 г) и содержит приблизительно в 10 раз больше нейронов. Однако, в противоположность этому, мозг агути, например, при массе 17,6 г весит примерно в 10 раз больше, чем мозг крысы, но число нейронов в нем больше, чем в мозге крысы, всего в 4 раза. Это, как мы выяснили, происходит потому, что масса мозга грызунов растет быстрее, чем число нейронов[71], то есть по закону степенной зависимости при показателе степени, равном +1,6. При таком показателе степени десятикратное увеличение числа нейронов в мозге грызунов приводит к увеличению массы мозга приблизительно в сорок раз. Таким образом, в сравнении с приматами у грызунов процесс приобретения дополнительных нейронов является, так сказать, инфляционным, так как приводит к несоразмерному увеличению общей массы головного мозга. Как следствие, мозг приматов не только располагает большим числом нейронов, чем мозг грызунов, но при этом чем больше масса мозга, тем больше разница между числом нейронов у приматов и грызунов, что демонстрируется прогрессирующим расхождением линий зависимости на графике, приведенном на рис. 4.3. Это и был наш ответ: не все мозги устроены одинаково, ибо даже у таких эволюционно близких отрядов, как грызуны и приматы, сильно разнится число нейронов в мозгах при их сравнимой массе.
Поскольку мозг состоит из структур, обладающих разным строением, клеточным составом и функциями, постольку объединение всех таких структур в некое единое целое при подсчете нейронов и массы может привести к невозможности выявить сходства и различия каких-то определенных частей мозга у разных видов животных. С другой стороны, разделение мозга на слишком многочисленные отделы для подсчета в них числа нейронов сделало бы исследование излишне трудоемким и длительным. Поэтому для того, чтобы изначально просто определить, одинаково ли растет мозг у разных групп млекопитающих, мы решили разделить мозг на несколько очевидных структур: мозговую кору, мозжечок и «все остальное» (анатомически это, конечно, некорректно, но зато точно). В это «все остальное» не входили обонятельные луковицы. Они расположены в небольших костных вместилищах в лобном отделе черепа и при заборе головного мозга отрываются и остаются в черепе. Поскольку в большей части экземпляров мозга, которые мы получали из внешних источников, обонятельные луковицы отсутствовали, мы не включали в исследование эти структуры, чтобы получать сравнимые результаты.
Действительно, мы обнаружили, что нейроны распределены по разным структурам весьма неравномерно. Ограничившись пока исследованием грызунов и приматов (за исключением человека), хотя и на большем числе видов – их было уже двадцать два[72], мы обнаружили, что у всех этих видов наибольшее число нейронов, около 80 %, было сосредоточено в относительно небольшом мозжечке – в структуре, расположенной в задней части головного мозга[73]. Таким образом, нельзя было исключить возможность того, что различие в отношении между массой мозга и числом в нем нейронов определяется разным числом нейронов в мозжечке соответственно грызунов и приматов, а не в коре мозга, где масса растет в линейной зависимости от роста числа нейронов.
Но это предположение оказалось неверным: одинаковое изменение числа нейронов приводило к разным изменениям массы коры мозга в этих двух группах животных (грызуны и приматы). Мы стали называть эти различные отношения между массой данной мозговой структуры и числом нейронов в ней «правилами шкалирования нейронов», которые были приложимы к соответствующей части мозга у каждой группы млекопитающих. У грызунов мы обнаружили, что нарастание массы коры происходило по закону степенной зависимости от нарастания числа нейронов с показателем степени +1,7; у приматов показатель степени был равен +1,0, то есть шкалирование является линейным. Как видно из рис. 4.4, это означает, что, так же как и в целом мозге, шкалирование мозговой коры грызунов сильно отличается от такового у приматов. По мере одинакового увеличения числа нейронов масса коры у грызунов увеличивается в большей степени, чем у приматов, а в результате в коре грызунов содержится меньше нейронов, чем в коре мозга той же массы у приматов.
Например, кора мозга имеет одинаковую массу у капибары (48,2 г) и у индийского макака (48,3 г), но эти схожие значения массы скрывают значимую разницу в числе нейронов: в коре капибары содержится всего 306 миллионов нейронов, а в коре мозга индийского макака – 1,7 миллиарда нейронов, то есть в равном объеме мозга макака упаковано в шесть раз больше нейронов, чем у капибары. Эта разница отражает то, что я назвала «преимуществом приматов» на основании особенности строения их мозга, где на единицу массы мозга приматов приходится намного большее число нейронов, чем у грызунов, что действительно является большим приобретением в ситуации, когда лимитирующим фактором служит объем, что мы увидим ниже в этой главе.

Рис. 4.4. Мозговая кора в разной степени увеличивает свою массу у грызунов (окружности) и у приматов (треугольники) в зависимости от увеличения числа нейронов. Линии графиков отражают степенную зависимость, которая наилучшим образом описывает вариации массы коры как функции числа нейронов в мозговой коре грызунов (показатель степени +1,7) и в коре приматов (показатель степени +1,0). Чем больше мозговая кора, тем больше разница в числе нейронов в ней между грызунами и приматами, тем больше становится нейронов у приматов в сравнении с их числом у грызунов.
Преимущество приматов заметно и в мозжечке, где у грызунов и приматов имеют место разные правила шкалирования нейронов. Мозжечок увеличивает свою массу у разных видов грызунов в зависимости от числа нейронов по степенному закону с показателем степени +1,3 (рис. 4.5); у приматов, однако, показатель степени равен +1,0, и шкалирование происходит, таким образом, линейно. Это означает, что рост мозжечка происходит по-разному у грызунов и приматов, причем у грызунов масса мозжечка растет в большей степени, чем число нейронов в нем. В результате на единицу массы мозжечка приматов приходится больше нейронов, чем на единицу массы мозжечка грызунов. Например, мозжечок капибары (6,6 г) содержит 1,2 миллиарда нейронов, в то время как немного меньший мозжечок индийского макака (5,7 г) – 2,0 миллиарда нейронов, то есть почти в два раза больше.

Рис. 4.5. Мозжечок у грызунов (окружности) и приматов (треугольники) прибавляет в массе по-разному по мере увеличения числа нейронов. Линии графиков отражают степенные зависимости, которые наилучшим способом описывают изменения массы мозжечка как функцию числа нейронов в мозжечке грызунов (показатель степени +1,3) и приматов (показатель степени +1,0). Чем больше мозжечок, тем больше разница между числом нейронов в нем у грызунов и у приматов, причем число нейронов у приматов становится больше, чем у грызунов.
Напротив, другие структуры мозга, которые мы исследовали единым блоком под названием «все остальное», поначалу не демонстрировали такую разницу в зависимости массы от числа нейронов между грызунами и приматами. Как становится ясно из рис. 4.6, эта совокупность ствола мозга, промежуточного мозга и полосатого тела (все собранные вместе подкорковые структуры) увеличивает свою массу у грызунов по мере роста числа нейронов согласно законам степенной зависимости с аллометрическим показателем степени +1,6, что номинально отличается от соответствующего показателя степени, характерного для увеличения массы остальных структур мозга у приматов (+1,1), но при этом между двумя группами имеют место области перекрывания значений. В противоположность четкому различению кривых при сравнении данных по коре головного мозга и мозжечку грызунов и приматов, в случае остальных структур головного мозга распределение более широкое, вероятно, по причине смешения разных мозговых структур в «одном горшке». Некоторые виды приматов оказались на той же кривой, что и грызуны, а некоторые грызуны – на кривой приматов, как это видно по смешению местоположений окружностей и треугольников на рис. 4.6. Например, остальные отделы мозга агути при весе 49 г содержат 49 миллионов нейронов, что не слишком сильно отличается от данных индийского макака, остальные отделы мозга которого при весе 7,4 г содержат 61 миллион нейронов. Правило шкалирования, на первый взгляд, практически не отличалось между грызунами и приматами. Однако, проанализировав большее число видов, мы выяснили, что преимущество приматов выявляется в зависимости от того, как именно собирают «все остальное», и мы убедимся в этом позже. Пока же мы остановимся на том, что означает преимущество приматов при увеличении массы коры и мозжечка по мере нарастания числа нейронов.
Различия в правилах нейронного шкалирования для мозговой коры и мозжечка между грызунами и приматами имеют весьма интересное следствие для эволюции разнообразия в строении мозга у разных групп видов. Впервые мы можем предположить, что те события, которые привели к расхождению приматов и грызунов, происшедших от какого-то общего предка, включали в себя не только положение глаз (фронтальное у приматов и латеральное у грызунов) и строение кончиков пальцев (ногти у приматов и когти у грызунов), но и изменение в плане строения мозговой коры и мозжечка. Большие аллометрические показатели степени для этих структур у грызунов позволяют предположить, что корковые и мозжечковые нейроны в среднем стали больше у грызунов, чем у приматов, притом, что они стали и более многочисленными (больше в этом контексте означает не только увеличение клеточных тел, но и большую длину дендритов и аксонов, как мы увидим ниже). Напротив, линейная зависимость увеличения массы коры и мозжечка у приматов по мере роста числа нейронов указывает на то, что средний размер нейрона у них остается стабильным. Какие бы изменения ни приводили к расхождению между грызунами и приматами, они (изменения) должны включать изменения в генах и других механизмах, контролирующих размеры клеток.

Рис. 4.6. Остальная часть мозга, в отличие от мозговой коры и мозжечка, как представляется поначалу, весьма сходным образом прибавляет массу в зависимости от увеличения числа нейронов у грызунов и у приматов. Линии графика, которые наилучшим образом описывают массу остальных частей мозга как функцию числа нейронов, согласуются с разными значениями показателя степени (у грызунов +1,6, а у приматов +1,1). Несмотря, однако, на то, что номинально кривые отличаются друг от друга, мы видим значительное перекрывание между грызунами и приматами.
Обнаружение того, что мозговая кора и мозжечок грызунов и приматов следуют разным правилам нейронного шкалирования, имеет очень большое значение. Оно показало, что популярное допущение о том, что сравнение размеров мозга животных разных таксономических групп может дать информацию о числе в них нейронов и, таким образом, позволит судить о когнитивных способностях, оказалось попросту неверным. Мозги одного размера могут содержать разительно отличающиеся числа нейронов – по крайней мере, это так в отношении грызунов и приматов.
Разница в правилах нейронного шкалирования ничего, однако, не говорит нам о том, являлся ли мозг последнего общего предка грызунов и приматов (1) построенным подобно мозгу грызуна, а мозг приматов развился из него; (2) построенным подобно мозгу примата, а мозг грызуна развился из него; или (3) построенным совершенно отличным образом, развивался согласно другим правилам нейронного шкалирования, а не тем, которым подчиняются мозги современных грызунов и приматов, а мозг этих отрядов развился из того, оригинального мозга общего предка. С другой стороны, общность правил нейронного шкалирования для остальных отделов головного мозга грызунов и приматов говорит о вероятной возможности того, что остальные части мозга последнего общего предка двух таксонов был устроен так же, как у современных животных этих групп, то есть по намного более экономичному принципу, чем тот, который предусматривал бы независимую конвергенцию для достижения одинаковых правил нейронного шкалирования в остальных частях головного мозга, хотя, конечно, и такой сценарий тоже возможен.
Есть, однако, и один простой выход из этого затруднительного положения. Если бы мы могли определить правила нейронного шкалирования, приложимые к мозговой коре, мозжечку и остальным отделам головного мозга других групп животных – от африканских зверей (афротериев) до парнокопытных, – то есть для млекопитающих, отстоящих друг от друга дальше, чем достаточно близкородственные грызуны и приматы, то мы, вероятно, смогли бы определить, какая из упомянутых возможностей наиболее вероятна.
Помимо грызунов и приматов.
Ныне живущие грызуны и приматы – достаточно близкие родственники, приблизительно в той же степени, в какой мы являемся родственниками нашим двоюродным братьям и сестрам. Дело не в том, что приматы произошли от грызунов или мы произошли от наших кузенов (последнее невозможно, особенно если мы одного возраста), а в том, что грызуны и приматы произошли от какого-то одного общего для них предка. В случае нас и наших кузенов таким общим предком может быть бабушка или дедушка, которых уже, быть может, нет в живых, но по устным рассказам и по метрическим книгам мы можем узнать, какими они были, когда жили и здравствовали. В случае грызунов и приматов общий предок, от которого произошли только эти два таксона, жил приблизительно 95 миллионов лет тому назад[74].
Генеалогическое родство с предками, жившими и вымершими так давно, можно установить с помощью некоторых современных и не очень современных методов. Независимо от того, какие методы привлекаются для решения этой задачи – радиометрическое датирование, секвенирование нуклеиновых кислот или белков или даже старомодное сравнение морфологических характеристик, – все полученные данные приходится анализировать математическим анализом «кладистики», задачей которой является определение, какая группа видов (клада) происходит от данного общего предка, а какая – нет. Конечно, данные, полученные в ходе кладистического анализа, не всегда согласуются между собой; различия в результатах могут быть обусловлены особенностями какого-то конкретного вида, генов и сравниваемого белка, разницей в частоте мутаций – и это всего несколько из возможных причин. Генеалогическое древо ныне живущего вида продолжает развиваться, изменяясь, когда появляется новое свидетельство, бросающее вызов старым интерпретациям данных и предполагающее новое теоретическое объяснение эволюции вида.
Тем не менее неоспорим тот факт, что виды, живущие сегодня на Земле, населяли ее не всегда, так же как и то, что некогда на нашей планете жили виды, которых сегодня нет. Скелеты существ, принадлежащих к виду современного человека, имеют возраст максимум 200 тысяч лет; с другой стороны, трилобиты процветали в период между 540 и 250 миллионов лет назад, но их остатки не находят ни в предшествующих, ни в более поздних отложениях. То же самое касается и динозавров: их остатки находят в породах, возраст которых оценивают в 230 миллионов лет, но не старше. Динозавры исчезли 65 миллионов лет назад, когда в полуостров Юкатан врезался крупный метеорит или комета[75]. С тех пор никто и никогда не видел живого динозавра, хотя на них очень похожи современные ящерицы и крокодилы. Жизнь – во всяком случае, в том виде, в каком она сохранилась в ископаемых остатках, – со временем развивалась, эволюционировала, ибо слово «эволюция», собственно, означает всего лишь «изменение». Таким образом, эволюция не теория – это неоспоримый факт: жизнь изменилась с течением времени. С другой стороны, теориями являются соображения о том, как происходили эти изменения, посредством каких механизмов, какими исторически прослеживаемыми путями.
Современный консенсус[76], основанный на молекулярно-биологических методах исследования и на математическом анализе самых выгодных возможностей, предполагает, что из всех современных зверей (плацентарных млекопитающих за вычетом однопроходных и сумчатых) африканские звери раньше всех ответвились от всеобщего предка, а китопарнокопытные (парнокопытные и китообразные) ответвились последними или, во всяком случае, сравнительно недавно, как это показано на рис. 4.7. Грызуны и приматы сделали это где-то в промежутке, объединенные в надотряд Euarchontoglires, однако это объединение, сделанное в 2007 году, ничего не дает нам в смысле оценки строения их головного мозга. Если бы мы могли определить правила нейронного шкалирования, верные в отношении африканских настоящих зверей, с одной стороны, и в отношении парнокопытных – с другой, и сравнить их с правилами, верными в отношении грызунов и приматов (а возможно, и других клад), то мы смогли бы претендовать на самое экономичное объяснение тому, как стало возможным разнообразие строения головного мозга, имеющее место в наши дни.

Рис. 4.7. Генеалогическое древо или наглядное изображение эволюционных отношений между ныне живущими видами млекопитающих (даты представлены в миллионах лет). Грызуны и приматы являются разными ответвлениями одной группы, особого надотряда плацентарных млекопитающих – Euarchontoglires, – тем не менее к их мозговой коре и мозжечку приложимы разные правила нейронного шкалирования. Цифры взяты с разрешения, из Herculano-Houzel, 2012.
К 2014 году, то есть приблизительно через десять лет после того, как был создан метод превращения мозга в суп для подсчета содержащихся в нем клеток, благодаря маленькой армии студентов и сотрудников мы опубликовали данные, касающиеся 41 вида, принадлежавшего шести различным кладам млекопитающих. Вместе с Кеном Катания мы смогли определить правила шкалирования для насекомоядных, самых мелких из ныне живущих млекопитающих; в сотрудничестве с Полом Мэнджером мы поняли, каковы правила нейронного шкалирования у африканских зверей и парнокопытных на другом краю эволюционного древа настоящих зверей (плацентарных млекопитающих). Теперь мы могли приступить к исследованию всех этих видов и постараться выявить разницу и сходство в том, как изменялся их мозг по массе в процессе увеличения числа нейронов, и, таким образом, впервые обратить внимание на происхождение разнообразия мозга, возникшего в ходе эволюции млекопитающих.
Мы обнаружили, что картина с мозговой корой была абсолютно ясна. Правила нейронного шкалирования, которые, как мы видели, приложимы к грызунам, можно было распространить и на очень древнюю группу афротерий, или африканских зверей (землеройки и кроты плюс африканские слоны); на очень мелких, но не столь древних насекомоядных (еще кроты и землеройки), которые, как выяснилось, являются отдельной группой афротерий, что упразднило старый термин Insectivores с заменой его термином Eulipotyphla[77]; и на более молодую группу парнокопытных (свинья, куду, жираф[78]). Как показано на рис. 4.8, мозговая кора всех животных, не относящихся к приматам, имеет одно и то же соотношение между массой коры и числом нейронов, в то время как у приматов оно другое.
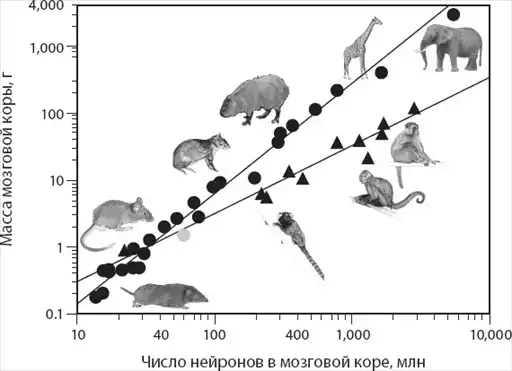
Рис. 4.8. Масса мозговой коры увеличивается сходным образом у грызунов, африканских зверей, насекомоядных и парнокопытных (окружности) по мере увеличения числа нейронов, но не так, как у приматов (треугольники). Линии указывают на степенные зависимости, которые наилучшим способом описывают вариации массы коры как функции числа нейронов в коре приматов (показатель степени +1,0) и в коре всех других кладов млекопитающих (показатель степени +1,6). Чем больше мозговая кора, тем больше рассогласованность в числе нейронов, обнаруженных в коре у приматов и неприматов при ее равной массе; в коре приматов содержится все больше и больше нейронов в сравнении с числом нейронов в коре неприматов.
Мы получили ответ на эту загадку, что показано на рис. 4.9. Учитывая имеющие место эволюционные отношения среди видов и групп млекопитающих, которых мы исследовали, наиболее экономичным объяснением правил нейронного шкалирования у приматов и неприматов было следующее: правила шкалирования для неприматов, общие для всех современных видов, принадлежащих к кладам млекопитающих – как древним, так и молодым в отношении их эволюционного происхождения, – были характерны и для предковых форм всех плацентарных млекопитающих и остались практически неизменными с тех пор, ибо в противном случае у каждой из исследованных нами групп неприматов были бы свои собственные правила нейронного шкалирования. Приматы, в свою очередь, отклонились от предковых правил нейронного шкалирования и нашли свой собственный путь: правило нейронного шкалирования приматов – паковать в единицу объема коры больше нейронов[79]. (Остается самый жгучий вопрос: как выглядит человек в сравнении с другими приматами? Но с ответом мы подождем до следующей главы.).
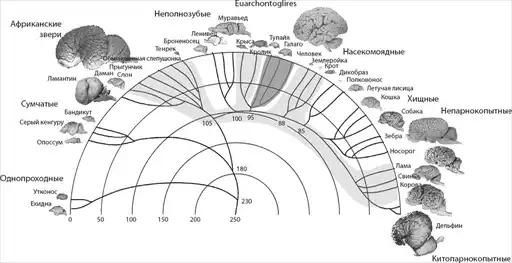
Рис. 4.9. Предположительная схема эволюции роста массы мозговой коры в зависимости от роста числа нейронов: правила нейронного шкалирования, характерные для современных африканских зверей, грызунов, насекомоядных и парнокопытных, как можно допустить, были уже характерны для их общего предка и сохранились в эволюции у их потомков, но эти правила изменились при отхождении той ветви животных, которые затем дали начало приматам.
Мы можем говорить об «отклонении» от предкового правила нейронного шкалирования у приматов по мере увеличения мозговой коры, потому что эволюционная история млекопитающих – это история сильной тенденции к увеличению размеров мозга[80], начиная с очень мелких животных с таким же малым головным мозгом. Самым близким известным родственником всех современных млекопитающих является похожее на млекопитающее существо Hadrocordium wui, масса тела которого, вероятно, не превышала 2 г, то есть приближалась к массе тела самых мелких современных насекомоядных и летучих мышей[81]. Это существо жило на Земле около 195 миллионов лет назад[82]. Согласно оценкам, мозг Hadrocordium весил около 0,04 г, а масса коры была равна, вероятно, 0,02 г при числе нейронов в ней всего 3,6 миллиона[83], что намного меньше чисел нейронов, какие мы обнаружили у всех исследованных нами млекопитающих. Но мы можем представить себе, что те ранние виды имели мозговую кору, которая уже была построена согласно правилам нейронного шкалирования, которые оставались неизменными в линиях, давших начало современным африканским зверям, грызунам, насекомоядным и парнокопытным, в равной степени, а группа, которая, в конце концов, дала ответвление, получила в дополнение измененные правила формирования коры мозга, и это были приматы – они получили в дар возможность паковать в единице объема мозга больше нейронов.
Что можно сказать о мозжечке? Здесь мы обнаруживаем, что африканские звери (за исключением слонов, о которых речь пойдет в главе 6) и парнокопытные отличаются теми же правилами нейронного шкалирования, какие были обнаружены у грызунов, в то время как у насекомоядных эти правила отличаются как от приматов, так и от других групп, как это показано на рис. 4.10. Интересно отметить, что упаковка нейронов в мозжечке насекомоядных является более плотной, чем в мозжечке сравнимой массы у грызунов и африканских зверей. Например, в мозжечке восточноамериканского крота (отряд насекомоядных) при массе 0,153 г содержится 158 миллионов нейронов, в то время как в немного меньшем мозжечке хомячка (отряд грызунов) при массе 0,145 г имеется всего 61 миллион нейронов, а в мозжечке прыгунчика (африканские звери) при массе 0,168 г – 89 миллионов нейронов.

Рис. 4.10. Масса мозжечка растет у грызунов, африканских зверей и парнокопытных (сплошные кружки) по мере увеличения числа нейронов, но не как у приматов (треугольники) и насекомоядных (белые кружки), у которых в мозжечке также увеличивается число нейронов. Линии графиков соответствуют степенным зависимостям, которые наилучшим образом описывают изменения массы коры как функции числа нейронов в коре приматов (показатель степени +1,0), насекомоядных (показатель степени тоже равен +1,0, но с вертикальным сдвигом прямой), а у остальных клад показатель степени равен +1,3. Число нейронов мозжечка насекомоядных хотя и сравнимо с числом нейронов мозжечка у мелких грызунов и африканских зверей, но сочетается с более плотной их упаковкой в ткани мозга.
Таким образом, оказывается, что древние африканские звери обладали мозжечком, построенным в соответствии с правилами нейронного шкалирования, которые остались неизменными в линиях, давших начало современным африканским зверям, грызунам и парнокопытным, а группы, от которых впоследствии произошли современные приматы, и, отдельно, насекомоядные ответвились, когда изменился способ упаковки нейронов в их мозжечке (рис. 4.11), что позволило этим животным наращивать массу мозжечка медленнее при том же темпе роста числа нейронов. Это преимущество касается отряда приматов и отряда насекомоядных и заключается в том, что большее число нейронов не требует избыточного увеличения массы мозжечка.
Остальные части мозга демонстрируют те же правила нейронного шкалирования, что и кора, при этом правила одинаковы у африканских зверей, грызунов, насекомоядных и парнокопытных, а это указывает на то, что согласно этим правилам был также построен мозг первых плацентарных млекопитающих. Опять-таки, приматы отклонились от общего предкового пути построения остальных частей головного мозга, так как у них сопоставимое число нейронов упаковано в меньшем объеме мозговой ткани (рис. 4.12). Например, при числе нейронов от 106 до 122 миллионов остальные отделы мозга весят у капибары (отряд грызунов) 20,0 г, у куду (отряд парнокопытных) 64,0 г, но лишь 9,2 г у макака-резуса (отряд приматов).
Что означает разница в правилах нейронного шкалирования.
То, что не существует универсального отношения между массой мозговых структур и числом нейронов в них, стало новым и фундаментальным открытием. Теперь мы знали, что подобное надо сравнивать с подобным, что людей, как приматов, надо сравнивать с другими приматами, а не с грызунами или парнокопытными. Например, масса мозговой коры является полезным приближением в оценке числа корковых нейронов, если сравнивать грызунов с другими грызунами или даже парнокопытными, но приматов нельзя уже сравнивать с грызунами и парнокопытными так, как будто между ними нет никакой разницы; сравнивать приматов можно только с другими приматами. По причине разных правил нейронного шкалирования кора мозга приматов, мозжечок и все остальные части головного мозга содержат намного больше нейронов, чем можно ожидать от коры, мозжечка и остальных отделов головного мозга сравнимой массы у видов животных, не принадлежащих к отряду приматов.
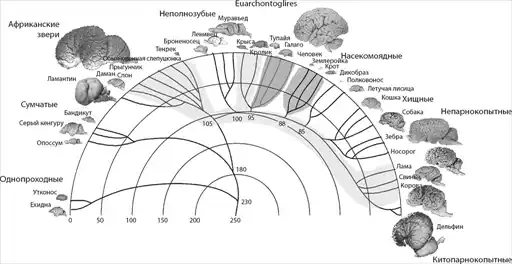
Рис. 4.11. Предположительная схема эволюции роста массы мозжечка в зависимости от роста числа нейронов: правила нейронного шкалирования, характерные для современных африканских зверей, грызунов и парнокопытных, как можно допустить, были уже характерны для их общего предка и сохранились в линиях потомков, но дважды (и порознь) изменились при ответвлении линий, давших начало приматам и насекомоядным.

Рис. 4.12. Масса остальных частей мозга увеличивается одинаково у африканских зверей (квадратики), грызунов, насекомоядных и парнокопытных (кружки) по мере роста числа нейронов, но картина меняется у приматов (треугольники). Линии графика соответствуют степенным зависимостям, которые наилучшим образом описывают изменения массы остальных частей мозга как функции числа нейронов в этих структурах у приматов (показатель степени +1,2) и у остальных клад (показатель степени +1,9). При сравнимом числе нейронов остальных частей мозга эти структуры намного меньше у приматов, чем у других животных.
Структурно– и порядково-специфичные правила нейронного шкалирования также говорят нам о природе эволюционных изменений, лежащих в основе расхождения и обособления коры и мозжечка приматов, мозжечка насекомоядных и остальных частей мозга парнокопытных. Оказалось, что мы можем вполне уверенно судить о том, что происходило, когда эти клады млекопитающих возникали как новые линии. Эти суждения стали возможными благодаря сравнительно простому математическому анализу.
Так как мозг состоит из клеток, размер мозга или какой-то мозговой структуры определенно зависит от количества клеток, содержащихся в них, и от средних размеров этих клеток[84]. Точнее, масса или объем мозга или мозговой структуры является произведением числа клеток – нейронов, глиальных и эндотелиальных клеток – на среднюю массу или объем этих клеток. Но, так как мы обнаружили равномерное распределение отличных от нейронов клеток в структурах головного мозга разных видов животных (об этом ниже), можно пока считать, что любые изменения в правилах шкалирования, управляющих клеточным строением мозга, являются результатом изменений тех способов, какими структуры увеличивают число нейронов, а не других клеток (глиальных и эндотелиальных), которые могут иметь разные размеры.
Нам было известно об изменениях числа нейронов в ходе эволюции млекопитающих, но что мы могли сказать о средних размерах этих нейронов? Если масса мозговой структуры увеличивается линейно с ростом числа нейронов, как это имеет место в коре и мозжечке приматов, то из этого можно сделать однозначный вывод: средние размеры нейронов остаются неизменными. Для того чтобы наглядно это проиллюстрировать, представьте себе эластичный мешочек, который можно заполнить разным числом пластиковых шариков. Если шарики имеют постоянный размер, то, если набить в мешочек в три или в десять раз больше шариков, объем мешочка увеличится точно в три или в десять раз. Это так, даже если не все шарики абсолютно одинаковы, так как постоянным остается их средний размер. В случае мозговых структур выяснение вопроса, является ли размер шариков (нейронов) постоянным у разных видов, представляется весьма трудоемкой задачей, ибо объем нейронов не сосредоточен в каком-то одном фокусе: дендриты, а особенно аксоны, иногда отходят от нейрона на весьма большое расстояние от тела клетки, и измерение объема целой клетки требует трудоемкой трехмерной реконструкции микроскопических фрагментов мозговой ткани.
Но здесь нам на выручку приходит простая математика. Если средний размер нейронов на самом деле является постоянным даже при изменении их числа, то число нейронов на единицу объема мозга, то есть плотность нейронов, тоже должно быть постоянным, так же как число шариков на единицу объема мешочка. Это очень полезная информация, потому что определение плотности нейронов – это тривиальная задача: мы просто делим число нейронов, найденных в ткани, на ее массу или объем.
Прибегая к той же аналогии, можно сказать, что при увеличении размера и количества шариков мешочек увеличивается в объеме с большей скоростью, чем число шариков. Если в мешочек укладывают в десять раз больше шариков, а каждый шарик теперь в 1,5 раза больше, то полученный объем будет не в десять, а в 10 × 1,5 = 15 раз больше. Если же шарики в пять раз больше, то добавление десятикратного числа шариков приведет к увеличению объема в 10 × 5 = 50 раз. Об изменении среднего размера шариков в каждом мешочке можно судить без измерения истинных размеров каждого шарика, а простым определением плотности шариков в мешочке. В первом случае плотность шариков окажется в полтора раза меньше; во втором случае – в пять раз. Изменение плотности, таким образом, обратно пропорционально изменению размеров шариков[85]. Но мало этого, если существует постоянное отношение между изменением размера шариков по мере того, как сами они становятся более многочисленными, это будет проявляться некоторым фиксированным отношением между плотностью шариков и их количеством в мешочке. Если же мы в этом утверждении заменим «шарики» «нейронами», то сможем узнать, как изменяется средний размер нейронов по мере того, как в ходе эволюции происходит увеличение их числа в мозговых структурах.
Преимущество приматов.
В мозговой коре животных, не принадлежащих к отряду приматов, по мере роста числа нейронов плотность равномерно уменьшается, и это уменьшение можно описать степенной функцией от числа нейронов с аллометрическим показателем функции –0,6 (рис. 4.13). Поскольку средний размер нейрона изменяется обратно пропорционально плотности нейронов, этот показатель степени подразумевает, что средняя масса корковых нейронов возрастает с увеличением числа нейронов, возведенного в степень +0,6. Это означает, что если кора приобретает в десять раз больше нейронов, то размер каждого нейрона в среднем увеличивается в четыре раза, а масса всей коры – в сорок раз. Если же кора приобретает в сто раз больше нейронов, то нейроны становятся в 16 раз больше, а масса коры – в 1600 раз; при приобретении 1000 нейронов они становятся в 64 раза больше, а масса коры увеличивается в 64 тысячи раз. Напротив, у приматов, по мере увеличения числа корковых нейронов, плотность их упаковки в коре практически не изменяется (рис. 4.13). Это означает, что по мере развития коры приматов она начинает приобретать дополнительные нейроны без существенного увеличения их среднего размера. Это не означает, что нейроны приматов становятся мельче, но лишь то, что они перестают расти: размер клеток в коре приматов остается таким же, как размер нейронов в коре крыс или кроликов, и значительно мельче, чем у агути. Вследствие этого, когда кора приматов приобретает в десять раз больше нейронов, ее масса становится всего в десять раз больше, а если она приобретает в 100 раз больше нейронов, то и масса ее увеличивается тоже в 100 раз.
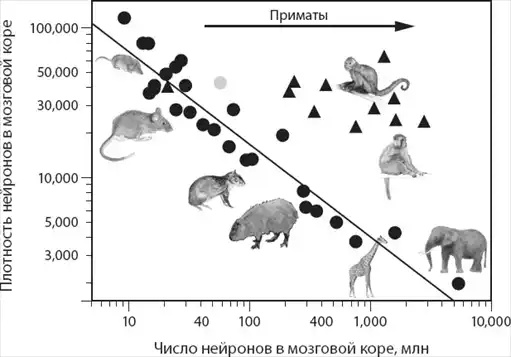
Рис. 4.13. По мере того как кора головного мозга животных, не принадлежащих к отряду приматов (кружки), приобретает нейроны, плотность их (в нейронах на 1 мг мозговой коры) уменьшается пропорционально увеличению числа нейронов, возведенного в степень –0,6, что означает следующее: масса нейронов возрастает в зависимости от увеличения числа нейронов, возведенного в степень +0,6. Напротив, по мере того как кора приматов (треугольники) приобретает нейроны, плотность нейронов снижается очень незначительно. Учитывая, что эволюция млекопитающих началась с животных малого размера с маленькими мозгами и крошечной корой, можно считать, что приматы отделились от общего предка с изменением, которое устранило связь между добавлением новых нейронов и увеличением средних размеров нейронов в коре головного мозга.
Отчетливая тесная корреляция между плотностью упаковки нейронов (а следовательно, средним их размером) и числом нейронов у неприматов позволяет предположить, что должен существовать механизм, благодаря которому в эволюции этих млекопитающих произошло сопряжение увеличения числа нейронов в мозговой коре с увеличением среднего размера этих нейронов. Каждый раз, когда пока не открытый механизм увеличивал число нейронов, образующих мозговую кору нового биологического вида, этот механизм приводил и к увеличению среднего размера нейронов в фиксированном отношении. Более того, этот механизм был (и продолжает оставаться) весьма устойчивым, ибо он работает уже более 90 миллионов лет, то есть до расхождения африканских зверей, грызунов, насекомоядных и парнокопытных, и, на самом деле, до сих пор присутствует в современных видах каждой из этих таксономических групп. Когда приматы, в свою очередь, отделились от своего общего с неприматами предка, случилась поломка: упомянутый механизм перестал работать и произошло разобщение увеличения числа корковых нейронов и увеличения их среднего размера. То есть, на сколько бы ни увеличивалось число корковых нейронов при переходе от одного примата к следующему, не происходило одновременного увеличения среднего их размера. Таким образом, правила нейронного шкалирования у приматов стали другими, специфичными для этого отряда животных.
Поскольку первые, самые ранние виды приматов были мельче нынешних[86], этот «разрыв» в происхождении приматов проявился у животных с малым числом нейронов в их мозговой коре, и это число подчинялось правилам нейронного шкалирования, характерным как для приматов, так и для неприматов, то есть этот разрыв был локализован на пересечении распределения приматов и неприматов, как показано на рис. 4.8 и 4.13. Ископаемые остатки родоначальника приматов Ignacius graybullianus позволяют оценить его внутричерепной объем в 2,14 см3, а массу тела в 231 г[87]. Если этот вид действительно был близок к точке ответвления приматов и если древние правила нейронного шкалирования для предковых форм млекопитающих были еще применимы, то мы можем считать массу мозговой коры равной 0,96 г, что дает число нейронов, равное 42,4 миллиона, что близко к числу нейронов, определенному для современного мышевидного лемура[88]. Между тем мышевидный лемур находится на эволюционной лестнице там, где можно ожидать появления предкового примата на наших графиках, – на пересечении правил нейронного шкалирования мозговой коры приматов и неприматов. Применив правила нейронного шкалирования, которые, как мы считаем, были характерны для предкового млекопитающего, мы получили промежуточный результат – 33,9 миллиона нейронов в коре головного мозга. Близость двух оценок – это как раз то, чего следовало ожидать на основании предполагаемого сценария ответвления приматов от общего предка, то есть свойство, носителем которого был этот предок, общее с современными неприматами, но которое все более модифицировалось с изменением правил нейронного шкалирования, каковое становилось все более заметным по мере эволюционного увеличения числа нейронов в мозговой коре приматов.
Что может означать тот факт, что кора головного мозга приматов приобретает нейроны, которые, как правило, не становятся крупнее, но становятся более многочисленными в противоположность другим млекопитающим, для которых из увеличения числа нейронов обязательно следует увеличение массы отдельно взятого нейрона? Первое и самое главное – это значит, что природа не ограничена одним-единственным способом построения коры мозга. Но, во-вторых, в этом заключается важное преимущество приматов, состоящее в том, что нейроны не становятся крупнее по мере роста их числа: кора увеличивается в объеме лишь настолько, насколько больше она приобретает нейронов, и не более того. Что касается объема, добавление нейронов, которые лишь очень незначительно увеличиваются в размерах, является весьма экономичным способом добавления нейронов к коре в сравнении с альтернативой, имеющей место у неприматов, кора которых намного больше при равном числе нейронов. Это важно, потому что объем играет очень большую, если не главную роль: например, чем больше кора, тем больше времени требуется для того, чтобы потенциал действия распространился по волокнам коры, что замедляет обработку и интеграцию информации, поступившей в кору. В самом деле, по нашим оценкам, среднее время распространения сигнала в белом веществе коры быстро увеличивается у грызунов, по закону степенной функции от числа корковых нейронов, возведенного в степень +0,466, в то время как у приматов время распространения сигнала нарастает куда медленнее, так как кора приматов приобретает новые нейроны при аллометрическом показателе степени +0,165[89]. Характерный для приматов способ нейронной организации коры дает им явное преимущество, так как укорачивает время распространения сигнала по мере приобретения корой новых нейронов (а следовательно, увеличения объема коры) в сравнении с неприматами.
Здесь, однако, возникает сложная проблема: даже если кора приматов становится лишь прямо пропорционально больше по мере приобретения нейронов, то расстояние между двумя точками коры тоже неизбежно увеличивается, а, значит, эти точки должны быть соединены между собой более крупными или более длинными нейронами, тем не менее нейроны сохраняют свой средний размер. Как это может быть верным одновременно? Ответ заключается в ключевой концепции среднего размера нейронов: это означает, что некоторые нейроны могут быть крупнее (в данном случае – длиннее), но если это происходит, то за счет того, что другие становятся короче. В отношении коры и связанного с ней белого вещества это означает, что если некоторые корковые нейроны в более крупном мозге становятся крупнее, обладая более длинными волокнами, проходящими через ткань белого вещества, то в тем большей степени остальные нейроны ограничивают местоположение своих волокон серым веществом. Если средний размер нейронов не изменяется или изменяется очень незначительно среди видов приматов, то нейроны первого типа (образующие дальние связи с подкорковыми структурами через белое вещество) должны увеличиваться в числе медленнее, чем нейроны второго типа (образующие ближние связи внутри серого вещества, не выходя за его пределы в ткань белого вещества). В самом деле, проведенное нами отдельное изучение того, как подкорковое белое вещество увеличивается в размерах по мере приобретения корой дополнительных нейронов, показало, что корковые пути в белое вещество, то есть доля корковых нейронов, связанных с длинными волокнами, уходящими в белое вещество, на самом деле уменьшаются по мере увеличения числа нейронов, как это и предсказано согласно приведенному выше сценарию. Именно так укрупняются локальные сети: не путем роста всех связей, а добавлением множества новых местных связей и лишь небольшого числа ключевых длинных связей. Напротив, связи коры с белым веществом у грызунов остаются стабильными по мере того, как кора этих животных приобретает новые нейроны, и эти нейроны становятся в среднем крупнее[90].
Что касается мозжечка, то здесь мы видим, что плотность упаковки нейронов у неприматов и у животных, не принадлежащих также к отряду насекомоядных, уменьшается по мере того, как мозжечок приобретает новые нейроны, как это показано на рис. 4.14, что указывает на то, что средний размер нейронов увеличивается совместно с увеличением числа мозжечковых нейронов у этих видов, в соответствии с законом степенной зависимости с показателем функции +0,3. Это означает, что десятикратное увеличение числа нейронов, образующих мозжечок животных, не принадлежащих к отрядам приматов и насекомоядных, сопровождается двукратным увеличением среднего размера нейронов; тысячекратное увеличение числа этих нейронов сопровождается восьмикратным увеличением среднего их размера. В результате мозжечок приматов, независимо от размера, имеет плотность упаковки нейронов – а следовательно, средний размер нейронов, – сравнимую с этим показателем в мозжечке крысы.
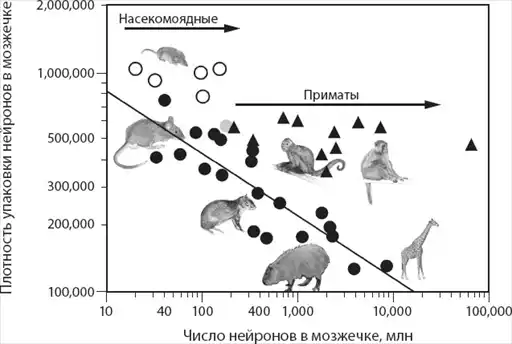
Рис. 4.14. По мере того как мозжечок животных, не принадлежащих к отрядам приматов и насекомоядных (черные кружки), получает дополнительные нейроны, плотность их упаковки падает пропорционально числу нейронов, возведенному в степень –0,3, а это означает, что средняя масса нейронов возрастает пропорционально числу нейронов, возведенному в степень +0,3. Напротив, по мере того как мозжечок получает новые нейроны у приматов (треугольники) и у насекомоядных (белые кружки), не наблюдается отчетливого уменьшения плотности упаковки нейронов. Учитывая, что эволюция млекопитающих началась с животных, обладавших малым мозгом и, соответственно, малой корой, можно считать, что приматы и насекомоядные ответвились от соответствующих им предков с изменением, которое устранило сопряжение между увеличением числа мозжечковых нейронов и увеличением их среднего размера.
Примечательно, что увеличение среднего размера нейронов происходит в мозжечке значительно медленнее, чем в коре головного мозга, при равном приобретении новых нейронов этими структурами у животных, не принадлежащих к отряду приматов. Это несовпадение приобретает смысл, если сравнить анатомию этих двух структур. Замедление увеличения среднего размера нейронов в мозжечке по сравнению с корой, вероятно, обусловлено разницей строения длинных связей между этими двумя структурами. В то время как мозговая кора обладает большим числом длинных реципрокных связей между участками коры, проходящих через подкорковое белое вещество, белое вещество мозжечка состоит исключительно из входных и выходных связей коры мозжечка, но отсутствуют связи, соединяющие разные участки этой коры. В мозжечке нет ничего похожего на мозолистое тело, соединяющее два полушария. Самые длинные волокна нейронов мозжечка достигают в длину всего нескольких миллиметров (в противоположность сантиметрам в коре большого мозга), и эти волокна проходят в верхнем слое коры самого мозжечка параллельно листкам мозжечка, где эти волокна переносят информацию между клетками Пуркинье. Организация волокон в мозжечке, таким образом, геометрически более экономична, чем в коре большого мозга, и именно это является основой многих различий в локальных функциях этих двух структур. В то время как длинные волокна, проходящие через белое вещество полушарий большого мозга, позволяют колонкам нейронов коры мозга обрабатывать информацию, приходящую из участков мозга, отстоящих от колонок на расстояние в несколько сантиметров, и направлять ее дальше в расходящихся, сходящихся или реципрокных направлениях, более многочисленные параллельные волокна верхнего слоя мозжечковой коры (одно волокно приходится на каждую зернистую клетку) передают информацию в латеральном направлении на расстояние всего в несколько миллиметров до ближайших клеток Пуркинье, где происходит обработка и анализ информации.
Насекомоядные и приматы, как представляется, независимо друг от друга отошли от соответствующих предковых правил нейронного шкалирования и приобрели изменение, согласно которому произошло разобщение увеличения числа нейронов и увеличения среднего их размера, что наглядно показано на рис. 4.14. Это изменение подразумевает, что в ходе эволюции насекомоядных и приматов их мозговые структуры стали приобретать дополнительные нейроны без дальнейшего значимого увеличения их среднего размера. Отсутствие увеличения среднего размера нейронов в мозжечке насекомоядных и приматов позволяет предположить, что параллельные волокна в верхнем слое коры мозжечка передавали сигналы латерально на те же самые или меньшие расстояния у крупных и мелких приматов и насекомоядных, если клетки Пуркинье в более крупном мозжечке не становились меньше, в каковом случае параллельные волокна начали бы передавать сигналы на более длинные расстояния. Это последнее едва ли правдоподобно, однако; у некоторых видов млекопитающих, у которых были определены размеры клеток Пуркинье, происходит их увеличение по мере возрастания объема головного мозга[91]. Тем не менее самая важная находка состоит в том, что насекомоядные и приматы получают нейроны в мозжечок без увеличения среднего размера нейронов, а это указывает на то, что не существует единого пути построения более крупного мозжечка, как не существует и единственного пути построения более крупной коры.
Что значит быть приматом.
Некоторые количественные данные показывают, насколько драматичными были последствия разрыва со старыми предковыми правилами формирования коры мозга для приматов. Как видно из рис. 4.15, самые мелкие приматы не слишком сильно отличаются числом нейронов от неприматов со сравнимой массой коры головного мозга, но чем больше становится мозговая кора примата, тем более явным становится преимущество перед другими животными, связанное с очень большим числом нейронов. Подобное численное превосходство над другими отрядами класса млекопитающих имеет место и в мозжечке приматов, а также и в остальных отделах головного мозга. Приматы имеют явное преимущество перед другими млекопитающими, оно заключается в резком повороте эволюционных событий, приведшем к более экономичному способу добавления дополнительных нейронов к мозгу – без массивного увеличения среднего размера нейронов, как это происходит у других млекопитающих.
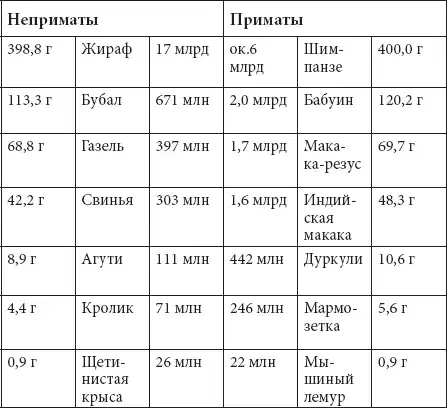
Рис. 4.15. Масса коры головного мозга (в граммах) и число нейронов в миллионах (млн) или миллиардах (млрд) у неприматов и приматов разных видов согласно нашим исследованиям.
Мы получили ответ на наш первый вопрос: все мозги устроены не одинаково. В частности, мозги приматов не развивались так, как они развивались у неприматов. Несмотря на то что у коровы и шимпанзе мозг имеет приблизительно одинаковую массу, у шимпанзе можно ожидать числа нейронов, вдвое превосходящего их число у коровы. Однако, на самом деле, у отдельных групп неприматов мозг тоже устроен по-разному. Хотя изложенные здесь правила нейронного шкалирования указывают на то, что у грызунов, насекомоядных, африканских зверей и парнокопытных наблюдаются одинаковые отношения между объемом мозговой коры и числом нейронов, позже мы обнаружили, что объем нейронов распределен по коре мозга разных видов животных с большей или меньшей плотностью. Это то же самое, как, например, можно намазать джем на большие или маленькие тосты густо или пожиже. Но это уже совсем другая история. Пока же мы обратимся к самому жгучему вопросу: как обстоят дела с нейронами у нас?