
Генетика на пальцах.
Глава 11. Эпигенетика и материнский эффект.
В организме взрослого человека насчитывается более двухсот различных типов клеток. И все они такие разные…
Но при этом во всех клетках любого организма, хоть одноклеточного, хоть многоклеточного, содержится один и тот же набор хромосом с одинаковым набором генов. Одна-единственная генетическая программа, созданная при оплодотворении яйцеклетки сперматозоидом, определяет столь масштабное разнообразие. Одна последовательность букв или одна последовательность нот дает одно литературное или музыкальное произведение, а одни и те же гены кодируют образование разных белков для совершенно разных клеток.
Было время, когда ученые считали, что разные клетки имеют разные геномы. Мол, в процессе развития организма «ненужные» гены из исходного набора, полученного при слиянии сперматозоида и яйцеклетки, утрачиваются клетками, а остаются только непосредственно нужные для жизнедеятельности. Вообще-то, на первый взгляд, такое предположение кажется логичным, поскольку от ненужного в организме положено избавляться. Например, ненужные белки расщепляются на аминокислоты, из которых затем синтезируются нужные белки. А зачем, к примеру, клеткам слизистой оболочки желудка нужны гены, обеспечивающие развитие мышечных волокон?
Но вы уже, наверное, привыкли к тому, что все, кажущееся правильным и логичным на первый взгляд, на второй уже таковым не кажется. Клеткам для нормальной жизнедеятельности необходим полный набор хромосом, присущий данному биологическому виду. Полный набор хромосом со всеми положенными генами. Точка[53]!
На начальных стадиях развития многоклеточного организма перед его клетками открывается множество путей, и дальнейшая судьба каждой клетки зависит от того, какой путь она выбирает. Выбор клеточного пути, то есть генетической программы развития, называется детерминацией.
Код у нас один-единственный. В этом коде содержится информация обо всех-всех-всех клетках нашего организма. Код всеобъемлющ и универсален, а каждая клетка считывает ту часть кода, которая нужна ей. Выражаясь научным языком (а мы с вами уже продвинулись настолько, что научный язык нам понятен), можно регулировать экспрессию генов и фенотип, не изменяя при этом последовательности ДНК, то есть можно управлять считыванием, не меняя кода.
Раздел генетики, изучающий механизмы изменения экспрессии генов или фенотипа клетки без влияния на последовательность ДНК, называется эпигенетикой. У этой науки очень точное название, переводящееся как «над генетикой» (греческое «эпи-» означает расположение над чем-то, поверх чего-то). Термин «эпигенетика» ввел в 1942 году британский биолог Конрад Уоддингтон.
Над генетикой! Как метко выразился британский биолог Питер Медавар: «Генетика предполагает, а эпигенетика располагает». Природа может создавать какие угодно коды, но на деле все зависит от того, как именно эти коды будут реализованы.
Самое время заподозрить, что клетки обладают каким-то особым клеточным разумом, позволяющим им выбирать на хромосомах участки для считывания информации. Однако никакого клеточного разума не существует, все определяется химией. Впрочем, и наше разумное мышление тоже представляет совокупность химических процессов, но сейчас речь не об этом, а о механизмах эпигенетики.
Вспомните деактивацию ненужной второй Х-хромосомы у женщин, которая «упаковывается» в тельце Барра. Это один из механизмов эпигенетики, который называется ремоделированием[54] хроматина. Чем компактнее упакована молекула ДНК в хроматине, тем меньше информации с нее считывается. Если свернуть молекулу в тугой клубок, каким является тельце Барра, то с молекулы ДНК нельзя будет считать вообще никакой информации.
Другой метод исключения ненужной информации – это метилирование ДНК, суть которого заключается в присоединении метильной группы [-CH3] к азотистому основанию – цитозину, входящему в состав молекул ДНК. Метильная группа замещает один из атомов водорода в молекуле цитозина, и в результате образуется метилцитозин (точнее – 5-метилцитозин, но нам сейчас химические нюансы ни к чему, нам важно понимать суть процесса). Присоединение метильной группы к цитозину осуществляет фермент ДНК-метилтрансфераза.
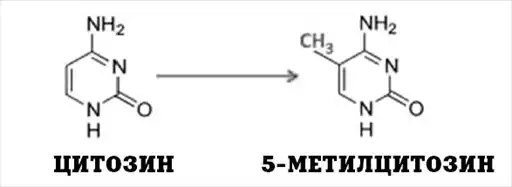
Выше мы с вами говорили о промоторах – «стартовых площадках» на молекуле ДНК, откуда начинается считывание генетических кодов. Так вот, метилирование цитозина на промоторном участке препятствует считыванию информации с данного гена. Метильная группа «портит» стартовую площадку и делает ген неактивным до тех пор, пока под действием ферментов-деметилаз не произойдет обратный процесс – деметелирование цитозина (удаление метиловой группы). Проще говоря, когда ген перестает быть нужным, на него вешают метиловый «замок», а как только ген понадобится, «замок» снимают. Все просто и эффективно.
Примерно один процент наших генов постоянно блокирован посредством метилирования цитозина на промоторах. Общее суммарное количество метилированного цитозина в нашей ДНК составляет примерно 5 %.
Все эпигенетические методы в той или иной степени участвуют в процессе старения, ведь регуляция экспрессии генов является важной составной частью этого процесса. Теоретически (пока что теоретически, но от теории до практики, как известно, всего один шаг) можно замедлять старение организма, «включая» деактивированные гены. Точно так же управление метилированием ДНК может предотвращать развитие многих заболеваний или излечивать их. Так, например, деактивация генов KLF14, FHL2 и GNPNAT1 значительно снижает риск развития сахарного диабета второго типа[55]. Метилирование ДНК представляет собой относительно простой процесс, и управлять им несложно, так что перспективы перед лечебным метилированием, как и перед всей медицинской генетикой, открываются широчайшие. В идеале, до которого наука когда-нибудь дойдет, профилактика всех заболеваний будет осуществляться еще во внутриутробном периоде путем подавления или же активации определенных генов.
Третий метод эпигенетического управления – это модификация гистонов. Гистонами называются ядерные белки, участвующие в упаковке молекул ДНК и в эпигенетической регуляции таких процессов, как транскрипция, репликация и репарация.
О транскрипции и репликации мы с вами уже говорили, а вот о репарации нет. Пора исправить это упущение. Репарацией[56] называется процесс ликвидации повреждений в молекулах ДНК, возникающих на протяжении жизни клетки. Если парочка атомов случайно отщепилась, или, скажем, произошел разрыв молекулы, то гистоны сразу же начинают ремонтные работы.
Терминальная, то есть концевая часть гистона представляет собой условный паспорт белка, его индивидуальный код, записанный сочетанием определенных аминокислот. Изменяя этот код, можно влиять на все процессы, происходящие с участием гистонов, начиная от упаковки молекул ДНК в хроматин и заканчивая… А вот где заканчиваются полномочия гистонов, пока еще не ясно. Их детальным изучением ученые занялись примерно два десятка лет назад, а с научной точки зрения это весьма маленький срок, особенно в такой «кропотливой» науке, как генетика. Не исключено, что в итоге гистоны окажутся в ответе за все-все-все, что происходит с ДНК и РНК. Во всяком случае, способность некоторых гистонов повышать вероятность метилирования ДНК уже доказана.
Как можно изменить код гистона?
Например, посредством уже известного вам метилирования одной из аминокислот, образующих код. Или же посредством ацетилирования, при котором один атом водорода в молекуле органического соединения замещается ацетильной группой [-CH3CO]. Или же посредством фосфорилирования, при котором в молекулу включается остаток ортофосфорной (фосфорной) кислоты [-РО4]. Не столь важно, какой именно остаток присоединяется к концевой части гистона. Важно то, к какой именно аминокислоте[57] он присоединяется. Проще говоря, модель замка, который вешается на аминокислоту, не имеет значения, главное, чтобы замок был повешен в нужном месте.
Ассортимент РНК состоит из молекул разных размеров – от гигантов-матриц до крошечных «лилипутов», образованных двумя десятками нуклеотидов. Однако это тот самый случай, когда можно сказать: «мал, да удал». МикроРНК участвуют в эпигенетической регуляции экспрессии генов, влияя на стабильность матричных РНК и, соответственно, на процесс трансляции белков на этих матрицах. У каждой молекулы матричной РНК в конце кода (то есть не на «головном», а на «хвостовом» участке) находится своеобразная «болевая точка» – некодирующий участок. Удар по этой точке, то есть прикрепление микроРНК к некодирующему участку, блокирует матрицу или же вызывает ее разрушение. Ген пребывает в целости и сохранности, а белок, который этот ген кодирует, в клетке не образуется, потому что для него нет матриц! Этот механизм называется РНК-интерференцией[58].
Знаете ли вы, что такое прион?
Если вы не сумели ответить на этот вопрос, то не спешите огорчаться. О существовании прионов, кроме биологов, мало кто знает. А вот о «коровьем бешенстве», пожалуй, слышали все.
Возбудителем «коровьего бешенства», которое по-научному называется губчатой энцефалопатией крупного рогатого скота, а также возбудителем болезни Крейтцфельдта – Якоба, возникающей после употребления зараженной говядины у людей, является прион – инфекционный агент белковой природы.
Прионы представляют собой белки с аномальной структурой. Соединяясь с гомологичным, то есть схожим, нормальным клеточным белком, прион изменяет его структуру, превращая нормальный белок в аномальный, в свое подобие. Размножение прионов отчасти напоминает размножение вирусов, поскольку и те, и другие могут размножаться только внутри клетки-хозяина, используя ее ресурсы. Только вирус содержит генетический материал – нуклеиновую кислоту, а прион не содержит. Прион прост настолько, что проще уже некуда. Это белковая молекула, всего лишь молекула и ничего больше.
«Лакомством» для прионов служат нервные клетки, особенно клетки головного мозга. По каким-то неведомым пока еще причинам прионы предпочитают эти клетки всем прочим. Поэтому у человека и ряда других млекопитающих прионы вызывают энцефалопатию – поражение головного мозга.
С генетической точки зрения, прионы представляют интерес как единственные агенты (живыми организмами их назвать язык не поворачивается), размножение которых происходит без участия нуклеиновых кислот. Информация напрямую передается от белка к белку. Некоторые прионы существуют в нашем организме в норме. Их начали изучать недавно, и потому о нормальных функциях прионов известно очень мало. А если честно, то практически ничего не известно, существуют только гипотезы. Например, ученые предполагают, что «нормальные» прионы могут принимать участие в обеспечении долговременной памяти. Также существует гипотеза о том, что прионы могут являться еще одним эпигенетическим «инструментом». А что? Вполне возможно. Прионы могут связываться с уже синтезированными белками и «уничтожать» их, превращая в свое подобие.
Вместо традиционного вопроса на этот раз вас ждет немного статистики. ДНК разных людей различается в среднем одним нуклеотидом из тысячи, то есть разница составляет всего-навсего 0,1 %. А разница между ДНК человека и шимпанзе составляет 1 %: только один нуклеотид из ста будет другим. Но посмотрите на человека и посмотрите на шимпанзе… Посмотрите внимательно, и вы поймете, как велики возможности эпигенетики.
Дело не в генетических законах, то есть не в наследственном коде, а в структурах, которые следят за их исполнением, – считывают код.
Помимо рассмотренных нами эпигенетических механизмов специфической экспрессии генов («включения» их по необходимости), существует еще и так называемый материнский эффект, суть которого заключается в воздействии материнского генотипа на ребенка.
Определенные гены матери, переданные потомку с яйцеклеткой, в начальной стадии развития зародыша, когда его собственный геном еще не активен, запускают синтез белков цитоплазмы, которые являются пусковыми факторами различных вариантов детерминации. Такие белки называются морфогенами, а кодирующие их гены – генами материнского эффекта. Некоторые из генов материнского эффекта экспрессируются не в самой яйцеклетке, а в окружающих ее клетках. В яйцеклетку поступают только их продукты – матричные РНК для синтеза необходимых морфогенов или сами белки.
Не надо путать материнский эффект с цитоплазматической наследственностью, которую обеспечивают митохондрии и пластиды! При материнском эффекте детерминирующее влияние на ядро оказывают белки, содержащиеся в цитоплазме, но гены, обеспечивающие синтез этих белков, содержатся в ядре. С наследованием, сцепленным с полом, материнский эффект тоже путать нельзя, поскольку он никак не связан с Х-хромосомой.
Вот интересная деталь: наследование признаков, определяемых генами с материнским эффектом, может происходить вопреки общим законам генетики.
Для примера можно рассмотреть наследование признака закручивания раковины у улиток-прудовиков. У одних прудовиков раковина закручена вправо, а у других – влево. Доминантный аллель соответствующего гена (А) обеспечивает закручивание раковины вправо, а рецессивный аллель (а) закручивает раковину влево.
При скрещивании самки АА с самцом аа в первом поколении все будет в порядке – генотип Аа, раковина, закручена вправо.
Но если скрестить самку аа с самцом АА, то обнаружится, что все их потомство в первом поколении при генотипе Аа будет иметь закрученные ВЛЕВО раковины.
Влево, а не вправо – проявляется рецессивный фенотип при доминантном генотипе!
Впору предположить, что генотип Аа в разных случаях обеспечивает разные фенотипы, а такая мысль подрывает основы генетики и превращает ее из науки в не пойми что. Что это за наука о наследовании, в которой результат меняется при перестановке слагаемых?
Но давайте пойдем дальше и получим больше поводов для удивления.
Если скрестить между собой гибридов первого поколения (Аа с Аа), то все их потомство будет иметь раковины, закрученные вправо. Несмотря на то, что по генотипу у потомства будет наблюдаться законно ожидаемое менделевское расщепление – АА: 2Аа: аа.
Это уже вообще ни в какие ворота не лезет, верно?
Но, тем не менее, влезает в ворота молекулярной генетики, которая объясняет происходящее наличием в цитоплазме яйцеклеток белков-морфогенов.
Повторим, что генетика логична и научна. Если какое-то явление опровергает ее постулаты или вообще отрицает ее как науку, то, значит, нам просто не хватает знаний для того, чтобы правильно объяснить это явление. В примере, который мы только что рассмотрели, генотипу помогают реализоваться в фенотип морфогены, которые содержатся только в яйцеклетках. Морфогены активно управляют считыванием информации с генов, подбрасывая исследователям совсем не то, что те ожидали увидеть.
Короче говоря, если вы правильно спланировали эксперимент и правильно его провели, но получили при этом неожиданный результат, то вы явно чего-то не учли.
То, что морфогены находятся не в ядре, а в цитоплазме, было доказано в экспериментах с цитоплазмой дрозофилы. Дело в том, что яйцо дрозофилы, подобно яйцам большинства насекомых, в своем развитии проходит стадию синцития – неполного разграничения клеток, при котором обособленные участки цитоплазмы с ядрами связаны между собой так называемыми цитоплазматическими мостиками, которые правильнее было бы назвать «цитоплазматическими каналами», ведь цитоплазма жидкая, а не твердая.
Несколько тысяч ядер в яйце дрозофилы лежат в единой необособленной цитоплазме, которая при своем физическом единстве все же различается по содержанию. Так, например, цитоплазма в заднем сегменте яйца называется полярной плазмой, поскольку находится у условного полюса. Ядра, расположенные в полярной плазме, дают начало половым клеткам. Но если ввести полярную плазму в другую область яйца, где ее (и половых клеток) в норме быть не должно, то в этой области начнут развиваться половые клетки. Вот вам и доказательство определяющей роли цитоплазмы в выборе пути клеточного развития.
Гены материнского эффекта управляют считыванием генетической информации опосредованно. Они запускают экспрессию мастер-генов (это название можно перевести с английского как «ген-господин»), мастер-гены, в свою очередь, запускают экспрессию регуляторных генов, ну а те уже управляют экспрессией структурных генов, с которых считывается информация, необходимая для синтеза белков. Такая сложная иерархия позволяет осуществлять тонкую и точную регуляцию непростого процесса развития многоклеточного организма. Сложная многоступенчатая система устойчивее, она имеет больше компенсаторных возможностей, нежели простая система. Вот простейший пример. В большом магазине всегда найдется кем заменить заболевшего продавца, а в газетном киоске, где всего один продавец, замена представляет крупную проблему.