
Достающее звено.
Рассказ о цепях коротких и длинных, непрерывных и оборванных, магистральных и параллельных, прямых и извилистых, о том, из каких звеньев они составлены, и о том, все ли звенья достают, как люди достают эти звенья и как звенья достают людей, о звеньях прочных и не очень, о звеньях главных и второстепенных, о звеньях между звеньями и рядом со звеньями, неотвратимости и случайности, о наследии и следах, много о прошлом, в меру о настоящем и немножко о будущем…
Пролог, В котором автор ведет себя прилично, мило улыбается, много раз говорит спасибо и даже не ехидничает.
К написанию этой книги меня сподвигли несколько обстоятельств. Во-первых, преподавательская деятельность, коей я занимаюсь, создает склонность к популярному и доступному объяснению. Во-вторых, большое количество обращений за разъяснениями глобальных или каких-либо частных вопросов антропогенеза со стороны студентов, знакомых и представителей средств массовой информации показало мне, что многим людям эти вопросы небезынтересны. В-третьих, изобилие непрофессиональных, часто просто неграмотных и ошибочных изложений антропогенеза в последнее время зашкаливает: иногда в книгах с заглавием “Антропология” о таковой не говорится вовсе ничего.
Непосредственным толчком к созданию книги послужило предложение Александра Соколова дать интернет-интервью на тему антропогенеза. На самом деле, уже настойчивостью и терпением в вытряхивании из меня этого интервью Александр сделал огромное дело! Как и подавляющее большинство ученых и преподавателей, я сам мог бы очень долго мечтать о написании такой книги и никогда бы не собраться начать реальные действия. Это вообще дело хлопотное и специфическое. Таких, как я, надо сильно тормошить, и за это Александру огромное спасибо! Первая версия книги опубликована на сайте “Антропогенез.ру” (www.antropogenez.ru ), созданном опять же усилиями в основном Александра. Без этого сайта, даже если бы книга и была когда-нибудь написана, она была бы заметно бледнее и в ней сохранилось бы больше ляпов.
С самого начала интернет-портал “Антропогенез.ру” затевался как популяризаторский, направленный на продвижение знаний в народ и борьбу с лженаучными и околонаучными мифами, с чем Александр успешно справляется. Нельзя не отметить его недавно вышедшую книгу “Мифы об эволюции человека”, уникальную и единственную в своем роде (Соколов, 2015). Ее можно читать параллельно с той, что вы держите в руках, – они не повторяют, а дополняют друг друга.
Образцом научно-просветительского творчества, на который стоит ориентироваться всем популяризаторам, являются книги, лекции и статьи на сайтах www.evolbiol.ru и www.elementy.ru , созданные А. В. Марковым и Е. Б. Наймарк. За это и за важные замечания по содержанию книги им огромное спасибо!
Многие идеи, особенно касающиеся экологических аспектов эволюции, почерпнуты из книг и лекций К. Ю. Еськова, за что я ему бесконечно благодарен.
Неподражаемый стиль книг Л. Б. Вишняцкого и В. Р. Дольника в немалой степени определил настрой и моего творения. Не всем нравится, когда высоконаучные темы обсуждаются как бы не вполне серьезно, некоторые люди даже искренне считают, что чем ближе фраза к бессмертным образцам “при гулярной ундуляции нет ничего глупее латерального сжатия”, “доминирующая положительная анаболия ведет к девиации” и “вторичную хондрификацию эндоскелета можно рассматривать как гистологическую фетализацию, присущую анамниям”, тем она научнее. Но у меня есть два оправдания. Во-первых, используя человеческую речь вместо “высокой латыни”, я могу надеяться, что труд мой будет-таки осилен до конца большинством читателей, а во-вторых, я сам не засну и не брошу его на полпути. Для любителей подробностей есть приложение в конце книги, тысячи статей и вставленные в книгу “уголки занудства”, для сторонников иных крайностей – “минутки фантазии”, к которым, конечно, не стоит относиться чересчур серьезно.
Отдельное спасибо хочу сказать Дмитрию Владимировичу Богатенкову – моему сокурснику и соратнику в популяризации антропологии. Совместно написанный с ним учебник по антропологии был в свое время издан слишком маленьким тиражом, но его части, посвященные антропогенезу, послужили костяком настоящей книги (кстати, об учебниках: дабы не превращать сию книгу в один из оных, я, скрепя сердце преподавателя, все же проигнорировал просьбы пояснять по ходу текста такие термины, как “цитоплазма” и “АТФ”, – для этого есть школьный курс).
Книга стала, несомненно, лучше после того, как ее критически прочитали и оценили замечательные рецензенты. Я глубоко признателен Светлане Анатольевне Бурлак, благодаря ей текст стал не только корректнее, но и грамотнее. Спасибо Валентине Владимировне Росиной и Ирине Николаевне Грибковой – они взглянули на многие спорные места с неожиданной стороны, отчего удалось прояснить их и, надеюсь, уменьшить число вопросов, которые могли бы задать мне читатели.
И самое большое Спасибо всем читателям нашего портала “Антропогенез.ру” за горячую поддержку и помощь в написании и редактировании этой книги, за вдохновение, которое они в меня вселяют. Без их вопросов, комментариев и советов книга вышла бы гораздо более блеклой, сухой и скучной.
Введение, В коем возвышенным слогом поясняется, почему книга называется так, как она называется.
Эта книга посвящена вроде бы человеку, но речь в ней пойдет далеко не только о нем. Эту странность стоит пояснить. Человек интересен сам себе; следуя незабвенному завету К. Линнея, он усиленно изучает именно себя любимого. Да и странно было бы, если бы основатель систематики глубокомысленно изрек: “Человек, познай выхухоль!” или “Человек, познай пеночку-теньковку!”. Нет, все же речь шла о самом себе. С другой стороны, антропология – биологическая наука, антропологи неизбежно биоцентричны. Антрополог не может мыслить антропоцентрично по определению, как бы странно это ни звучало. Человек – неотделимая часть биологического мира, понять его можно, только разобравшись с иными живыми существами и взаимосвязями между ними.
Начиная с первой публикации книги Ч. Дарвина “Происхождение видов путем естественного отбора” (несмотря на то, что в ней ничего прямо не говорилось об эволюции человека), среди естествоиспытателей пошли споры о “недостающем звене” – промежуточной форме между обезьяной и человеком. Особенно активно пропагандировал существование этого звена Э. Геккель, предположивший существование в прошлом вида Pithecanthropus alalus – “обезьяночеловека бессловесного”, название которого частично использовал Э. Дюбуа в 1894 году для описания Pithecanthropus erectus – “обезьяночеловека прямоходящего”. Однако Э. Геккель своего “обезьяночеловека” придумал, а Э. Дюбуа – нашел на острове Ява, в виде черепной крышки и бедренной кости.
Сначала казалось, что картина эволюции человека окончательно прояснилась, тем более что позднейшие ступени тоже представлялись известными, ведь еще в 1857 году немецкий учитель К. Фульрот явил миру найденного годом ранее неандертальца – как многие тогда считали, прямого предшественника современного человека, не имевшего уже почти никаких обезьяньих черт. Цепочка “обезьяна – питекантроп – неандерталец – сапиенс” выглядела вполне достаточной и полной для окончательного торжества научной точки зрения над ортодоксальной религиозной (характерно, что современные школьные учебники недалеко ушли от воззрений конца XIX века). Однако сомнения никогда не оставляют человеческий разум: тогда как К. Майер доказывал, что скелет из Неандерталя является останками русского казака-дегенерата, умершего в пещере от тягот погони за Наполеоном (слишком покатый лоб он объяснял врожденной патологией, а слишком кривые ноги – постоянной верховой ездой), Э. Краузе обосновывал принадлежность костей с Явы гигантскому гиббону (объясняя этим опять же слишком покатый лоб и “слишком” прямую бедренную кость). Новые находки развеяли этот туман, но загадали новые загадки. В первые десятилетия XX века питекантроп перестал казаться таким уж обезьяноподобным, но тут встал закономерный вопрос: а где же в таком случае “недостающее звено” между питекантропом и обезьяной? С этих пор погоня за “недостающим звеном” уже не прекращалась. Не помогло ни описание Р. Дартом австралопитека из Южной Африки, ни открытие “с другого конца” эволюционной линии – африканских проконсулов. Весь XX век разрыв между “обезьяньим” и “человеческим” концами сокращался, но сближение это напоминает погоню Ахиллеса за черепахой в апории Зенона – всегда кажется недостаточным, неполным, незавершенным.
Время тоже оказалось каким-то “резиновым”: если сначала на всю эволюцию человека отводилось около ста тысяч лет, к середине XX века говорили о четырех миллионах, а к концу речь пошла уже о десяти миллионах. Как следствие, пробелы, которые, как казалось, можно заполнить одной-двумя удачными находками черепов, стали еще шире даже после открытия целых видов, например Homo habilis. Как нарочно, с ряда наиболее известных, образцовых и, казалось бы, надежных кандидатов на роль человеческого пращура это почетное звание было снято, и они оказались представителями линий, не оставивших потомства (так случилось и с яванскими питекантропами, и с неандертальцами, и с европейскими дриопитеками, и с азиатскими сивапитеками). Ровная магистраль из нескольких последовательных эволюционных стадий обратилась щетинистым кустом бесчисленных тупиковых ветвей, среди засохших колючек которых едва различима тонкая нить нашей истинной родословной.
В итоге эволюционная линия человеческих предков и предшественников известна лучше, чем для какого-либо иного вида живых существ, но именно антропологам приходится чаще всего слышать сетования насчет чрезмерного теоретизирования и частой подмены пробелов в познании сомнительными реконструкциями. Конец XX и особенно начало XXI века ознаменовались открытием целого ряда “недостающих звеньев” по всей длине эволюционной линии, а прежде всего – ранних австралопитеков. Остановит ли этот поток находок гонку за “недостающим звеном”?
На заре исследования антропогенеза исследователи были склонны в любой находке ископаемых приматов видеть прямого предка человека, включая зубы гесперопитека из Небраски, оказавшиеся на поверку останками плиоценовой свиньи-пекари. Отчасти это объяснялось стремлением ученых стать первооткрывателями, отчасти – немногочисленностью находок. В наши дни антропологи более осмотрительны и разборчивы. Уже далеко не каждая находка получает гордое собственное латинское наименование и титул Великого Предка. И хотя в популярных заметках о новейших находках традиционные восторженные фразы о “перевороте в науке” и “новом, самом древнем предке” остаются почти обязательными, в научных статьях их не встретишь.
Так какова же эта длинная цепь, на конце которой находимся мы? Каковы причины ее возникновения, причудливых ответвлений и зигзагов? Как мы вообще можем узнать о прошлом? Кто этим занимается и на что при этом опирается? А может, все было и не так?
Методы познания бытия. Часть первая, немножко занудная, в коей повествуется о самых очевидных вещах, но присутствие коей совершенно необходимо.
Антропогенез (от греческих слов anthropos – человек и genesis – развитие) – это процесс эволюции предшественников современного человека, палеонтология человека; так же называется наука, изучающая этот процесс.
Вопрос о собственном происхождении всегда волновал людей. С древнейших времен и до наших дней люди не устают выдвигать все новые и новые предположения о собственном прошлом, о своих истоках. Зачастую разные точки зрения противоречат друг другу и разгораются жаркие споры на эту тему. Казалось бы, далекая от повседневной жизни тема оказывается столь волнующей умы людей, что дело доходит даже до судебных разбирательств и введения специальных законодательных актов. Вместе с этим поразительно, как мало большинство людей знает о собственных предках. Наука за последние 150 лет сделала в этом направлении огромный рывок, определила все основные стадии и группы дочеловеческих существ и теперь готова предложить стройную и отлично аргументированную схему эволюции человека. Конечно, многие детали этого процесса и ныне остаются невыясненными, но безграничность познания заранее определяет невозможность поставить точку в науке об антропогенезе. В настоящей книге изложены основные моменты учения о происхождении человека.
Глава 1. Концепции антропогенеза.
Мировоззрение человека по природе своей антропоцентрично. Человек занимает центральное место как в мифологии и религиях всех народов, так и в современной науке. Сколько существуют люди, столько они спрашивают себя: “Откуда мы? Каково наше место в мире?” У разных народов в разные времена возникали разные ответы на эти вопросы.
Существуют три глобальных подхода к познанию мироздания и, соответственно, три основные точки зрения на возникновение человека: религиозный, философский и научный.
Религиозный подход опирается на веру и предание, обычно он не требует каких-либо дополнительных подтверждений своей правоты. Более того, анализ реальности обычно не только не поощряется, а даже строго противопоказан. Предание может жить в устной форме или быть зафиксировано в неком священном писании – Торе, Библии, Коране, Ведах, Упанишадах и прочих.
Философский подход опирается на некий первоначальный набор аксиом, из которого путем умозаключений философ строит свою картину мира. Знаю, что философы воспротивятся отделению от науки, но нельзя отрицать, что их подход к познанию мира отличается от того, которым пользуются, например, антропологи.
Научный подход опирается на факты, установленные в ходе наблюдений и экспериментов. Для объяснения связи этих фактов выдвигается гипотеза. Для ее проверки собираются новые наблюдения и, по возможности, ставятся эксперименты. Если эти новые данные противоречат гипотезе, то она отвергается и выдвигается новая, если же новая информация укладывается в исходное объяснение, то гипотеза становится теорией. В дальнейшем новые факты могут опровергнуть теорию, в этом случае выдвигается следующая гипотеза, лучше отвечающая всей совокупности наблюдений. В этом огромная сила научного подхода – он предполагает постоянное уточнение и улучшение наших знаний. Однако, с точки зрения многих людей, в этом же минус науки: ученый всегда сомневается в собственных словах, постоянно говорит “возможно” и “вероятно”, после каждого утверждения ставит кучу вопросительных знаков. Как можно верить человеку, если он сам не уверен в своих словах?! Другое дело – религиозная догма: она может быть стабильна тысячи лет! Секрет в том, что ученый знает, насколько он чего-то не знает, он может оценить свое незнание и просчитать истинность и достоверность собственных утверждений. С одной стороны, мечта каждого настоящего ученого – опровергнуть устоявшиеся взгляды, предложив более адекватное объяснение реальности, с другой – чем дальше идет прогресс, тем труднее это сделать.
И религиозные, и философские, и научные взгляды со временем менялись, влияли друг на друга и причудливо переплетались. Иногда крайне сложно разобраться, к какой области культуры отнести ту или иную концепцию. Количество существующих взглядов огромно. Невозможно в кратком изложении рассмотреть хотя бы их треть. Ниже мы попробуем чуть подробнее разобраться лишь с самыми главными из них, наиболее повлиявшими на мировоззрение людей.
Сила Духа: креационизм.
Креационизм – религиозная концепция, согласно которой человек был создан неким высшим существом – Богом или несколькими богами – в результате сверхъестественного творческого акта.
Религиозное мировоззрение является, видимо, древнейшим. Религий в мире великое множество, немногим меньше, чем народов; кроме того, религии сами меняются со временем. Соответственно, чрезвычайно разнообразны и способы, которыми люди создавались богами или самозарождались согласно разным преданиям. Племена с примитивной культурой обычно выбирали себе в предки разных животных: индейцы делавары считали своим родоначальником орла, индейцы осаги – улитку, айны и папуасы из бухты Морсби – собаку, древние датчане и шведы – медведя. У некоторых народов, например малайцев и тибетцев, бытовали представления о возникновении человека от обезьяны. Напротив, южные арабы, древние мексиканцы и негры берега Лоанго считали обезьян одичавшими людьми, на которых рассердились боги. Конкретные способы создания человека, согласно разным религиям, очень разнообразны. Согласно одним религиям, люди появились сами по себе, согласно другим, их создали боги – из глины, из дыхания, из тростника, из собственного тела и мыслью единою.
В целом креационизм можно разделить на ортодоксальный (или антиэволюционный) и эволюционный. Теологи-антиэволюционисты считают единственной верной точку зрения, изложенную в предании, скажем, в христианстве – в Библии. Ортодоксальный креационизм не требует иных доказательств, опирается на веру, а научные данные игнорирует. Согласно Библии, человек, как и другие живые организмы, был создан богом в результате одномоментного творческого акта и в дальнейшем не изменялся. Сторонники этой версии чаще всего просто игнорируют доказательства длительной биологической эволюции. Реже они считают их результатами других, более ранних и, возможно, неудачных творений (хотя могут ли быть неудачи у Творца?). Некоторые теологи признают существование в прошлом людей, отличных от живущих сейчас, но отрицают какую-либо преемственность их с современными.
Теологи-эволюционисты признают возможность биологической эволюции. Согласно им, виды животных могут превращаться один в другой, однако создание первого живого вещества и направляющая сила эволюции определяется волей бога. Человек также мог возникнуть от более низко организованных существ, однако его дух оставался неизменным с момента первоначального творения, а сами изменения происходили под контролем и по желанию Творца. Западный католицизм официально стоит на позициях эволюционного креационизма. Энциклика 1950 года папы Пия XII Humani generis допускает, что бог мог создать не готового человека, а обезьяноподобное существо, вложив, однако, в него бессмертную душу. После это положение подтверждалось другими папами, например Иоанном Павлом II в 1996 году, который в послании Папской академии наук писал, что “новые открытия убеждают нас в том, что эволюцию следует признать более чем гипотезой”. Новейшее папское подтверждение той же идеи появилось в 2014 году: папа Франциск официально признал Большой взрыв и эволюцию и пояснил, что бог не маг с волшебной палочкой. Забавно, что для миллионов верующих мнение папы римского в этом вопросе значит несравненно больше, чем итоги трудов тысяч ученых, посвятивших науке всю жизнь и опирающихся на изыскания других тысяч ученых, работавших на протяжении многих поколений.
В православии единой официальной точки зрения на вопросы эволюционного развития нет. На практике это приводит к тому, что десять опрошенных православных священников, скорее всего, проинтерпретируют возникновение человека десятью способами – от сугубо ортодоксального варианта с сотворением человека на шестой день через разнообразные протестантские версии с “днями” в виде миллионов или миллиардов лет до похожего на католический эволюционно-креационистский подход с вдыханием души в эволюционировавшего из обезьяны человекоподобного предка.
Многие современные креационисты проводят исследования с целью доказать отсутствие преемственности древних людей с современными или же существование полностью современных людей в глубокой древности. Для этого они используют те же материалы, что и антропологи, однако смотрят на них под другим углом зрения. Как показывает практика, креационисты в своих построениях опираются на палеоантропологические находки с неясными датировками или условиями нахождения, игнорируя большую часть остальных материалов. Кроме того, нередко креационисты оперируют некорректными с точки зрения науки методами. Их критика обрушивается на те области науки, что еще недостаточно полно освещены – так называемые “белые пятна науки”, – или те, что незнакомы самим креационистам. Обычно такие рассуждения наивны, скучны или даже вовсе безграмотны с точки зрения профессиональных биологов, хотя могут произвести впечатление на людей, недостаточно знакомых с биологией и антропологией. Большей частью креационисты занимаются именно критикой, однако на критике своей концепции не построишь, а своих собственных независимых материалов и доводов у них нет. Впрочем, надо признать, что ученым от креационистов есть некоторая польза: существование и влияние креационистов служат хорошим индикатором понятности, доступности и популярности результатов научных исследований среди широкой публики, дополнительным стимулом к работе.
Стоит заметить, что число креационистских течений весьма велико. В России они представлены не так богато, как, например, в США, но нельзя не признать, что даже некоторые ученые-естествоиспытатели склоняются к подобному мировоззрению.
Главный минус креационизма – бездоказательность. Вера – это здорово, но, как бы ни хотелось креационистам, даже самая глубокая вера не может поменять реальность. Даже если я, скажем, совершенно искренне буду верить, что у меня зарплата – миллион, а я – президент Луны и живу в золотых чертогах, то реальность, к моему сожалению, останется прежней. Бухгалтерия предъявит выписку о зарплате, географы и дипломаты удостоверят, что государства “Луна” не существует, а геологи рассчитают, что добытого на планете золота недостанет для возведения такого огромного дворца, как мне хочется.
Сила мысли: философские концепции антропогенеза.
С античности начала развиваться философская мысль. Философские построения обычно основаны на некой первоначальной аксиоме, от которой путем логических или умозрительных умозаключений исследователь приходит к неким выводам. Относительно происхождения человека часть философов склоняется к религиозной традиции, часть – к научным воззрениям. Зачастую философская мысль вдохновение черпает из религии, а стройность построений заимствует у науки. Собственно вопрос происхождения обычно мало занимает философов, и детали процесса они чаще опускают, больше рассуждая о месте человека во Вселенной, его значении, предназначении и будущем.
Античные авторы уделяли возникновению человека сравнительно мало внимания, занимаясь в основном более глобальными проблемами. В любом случае человек всегда рассматривался как нечто совершенно отличное от мира животных. Впрочем, Лукреций Кар в I веке до нашей эры написал целую поэму о естественном происхождении человека – “О природе вещей”:
…Так как в полях еще много тепла оставалось и влаги, То повсеместно, где только к тому представлялось удобство, Выросли некие матки, корнями к земле прикрепившись, Кои раскрылись, когда их зародыши в зрелую пору От мокроты захотели бежать и нуждались в дыханьи…[1]Понятно, что доказательства существования “неких маток” даже не предполагались.
Начиная с XVIII века до современности вопрос о природе человека стал весьма популярным у философов, возникли оригинальные взгляды на эту проблему.
Наиболее интересно трактует вопросы эволюции довольно разнородное направление, называемое глобальным эволюционизмом. Согласно ему, весь мир представляет собой единую систему, развивающуюся по одним законам. Человек является частью Вселенной и занимает в ней вполне определенное место, либо достаточно скромное, либо венчающее весь процесс развития мироздания. Представителями глобального эволюционизма являются К. М. Бэр, В. И. Вернадский, П. Тейяр де Шарден, И. Р. Пригожин, Н. Н. Моисеев.
В 1834 году К. М. Бэр сформулировал “всеобщий закон природы”, согласно коему материя развивается от низших форм к высшим. В приложении к человеку это означало, что он произошел от неких низших животных и в процессе длительной эволюции достиг современного уровня.
Идею непрерывного усложнения Вселенной активно развивали в первой половине XX века В. И. Вернадский и П. Тейяр де Шарден. Их концепции весьма схожи, в частности, в обеих поминается особая “энергия” – модное для того технократического времени слово, коим можно было объяснять что угодно (индустриализация, открытие ядерной энергии, строительство гидроэлектростанций мощно влияли на настрой всех мыслителей; из этой же серии и “пассионарная энергия” Л. Н. Гумилева). Различаются в трудах П. Тейяра де Шардена и В. И. Вернадского движущие силы эволюционного процесса: у первого это Творец, потусторонний мыслящий центр, у второго – силы Природы. Независимо от вида “энергии”, венцом эволюции материи – космогенеза – является антропогенез, а венцом антропогенеза – ноосфера, мыслящая оболочка планеты с отделением мыслящего духа от своей материальной основы. Надо заметить, что П. Тейяр де Шарден был профессиональным палеонтологом и в числе немногих исследовал оригиналы черепов синантропов, утерянные впоследствии.
Одним из новейших – 1990 года – вариантов глобального эволюционизма является концепция Н. Н. Моисеева. Согласно ей, Вселенная представляет собой суперсистему, включающую в себя множество подсистем. Человек в ходе эволюции достиг уровня, когда прекратилось совершенствование морфологии индивидов, но начался отбор социальных групп – популяций, племен и народов. Совершенствование Вселенной в целом и человеческого общества в частности является процессом самопроизвольным. Как и К. М. Бэр, Н. Н. Моисеев считал процесс эволюции мира направленным, идущим от простого к сложному. Движущей силой называется отбор систем на устойчивость к воздействиям внешней среды. Довольно странно в конце XX века слышать об окончании морфологической эволюции, но, к сожалению, такая позиция стандартна для небиологов.
Относительно деталей процесса эволюции человека сторонники глобального эволюционизма чаще склоняются к научной точке зрения. И П. Тейяр де Шарден, и Н. Н. Моисеев, кроме направленности эволюционного процесса, признавали большое значение для происхождения человека естественного отбора и конкуренции. Впрочем, чаще всего при попытках уйти в конкретику философы вопиющим образом искажают факты и научные гипотезы, так что у антропологов могут зарониться обоснованные сомнения – можно ли, не зная фактов, строить обобщающие объяснения их взаимосвязей?..
Сила доказательств: научные концепции антропогенеза.
Научный этап изучения антропогенеза начался фактически только с конца XVIII века, до этого преобладал религиозный подход. Но и на протяжении XVIII–XIX веков наука не была четко отделена от философии, а ученые обычно назывались натурфилософами или естествоиспытателями. Некоторые из них – Д. Дидро, К. Гельвеций, Ж. Бюффон, Д. Монбоддо – уже в XVIII веке высказывали мнение о “перерождении” одних организмов в другие, в том числе – обезьяны в человека. Изучение анатомии и морфологии самых разнообразных животных приводило к мысли о большем или меньшем их сходстве. Часто это представлялось в виде так называемой “лестницы существ”, ведущей от низших организмов к высшим, с человеком на вершине. Самый ее известный вариант – система К. Линнея – стал основой современной классификации и в мало измененном виде преподается даже в современных школах, а также преобладает в бытовом сознании многих людей, далеких от биологии. Раз человек – вершина эволюции, то логично его полное отделение от прочих животных, выделение в отдельный отряд или даже царство, что, собственно, и производилось вплоть до середины XIX века. Результатом стали, например, отряды Inernis Blumenbach, 1779, Bimana Blumenbach, 1797, и Erecta Illiger, 1811, включающие одного только человека и ставшие таксономическим памятником человеческой гордыни.
Концепция постепенного изменения живых существ – биологической эволюции – со временем приобретала в трудах натуралистов все более отчетливые очертания. Впервые стройное обоснование гипотезы эволюции опубликовал Ж. Б. Ламарк в 1802 и 1809 годах, указав, что человека следовало бы поместить в системе природы как венец “четвероруких” (приматов), если бы он не был создан Творцом совершенно отдельно от животных. Однако механизмы эволюционных изменений, предложенные Ж. Б. Ламарком, выглядят с современной точки зрения наивными. Он считал, что органы животных меняются под воздействием тренировки. Классический “жирафий” пример ламаркистских воззрений выглядит так: тянулся короткошеий предок к верхним веткам, от этого его потомки рождались с чуть более длинной шеей, они, в свою очередь, тоже тянулись – вот и стали в итоге длинношеими. Даже у современников ученого эта теория в своем законченном виде не получила широкого признания. Наследование приобретенных в течение жизни признаков, согласно данным современной генетики, невозможно, поскольку нет механизма записи информации из белков в РНК или ДНК. Есть, правда, несколько вариантов так называемого эпигенетического наследования, но там меняется не ДНК, а ее активность. Кроме того, эпигенетические эффекты являются скорее исключением, а не основным механизмом эволюции.
Куда более сильный научный и общественный резонанс вызвала теория эволюции Ч. Дарвина, опубликованная в 1859 году в книге “Происхождение видов путем естественного отбора”, в 1871 году в книге “Происхождение человека и половой подбор” и в других работах. С момента опубликования теория эволюции получила как горячих сторонников, например Т. Г. Гексли и Э. Геккеля, так и яростных противников – епископа Б. С. Уилберфорса и натуралиста Дж. Майварта. Концепция продолжала развиваться: в первой трети XX века ученые открыли основные законы генетического наследования, а к середине столетия две половинки – генетика и теория отбора – нашли друг друга. Так была окончательно сформулирована синтетическая теория эволюции. В последние же десятилетия XX века и первые XXI-го накопилось огромное количество исключений, дополнений и уточнений к синтетической теории эволюции, так что сейчас биология переживает “новый синтез”. Важно подчеркнуть, что современная теория – это далекое развитие классического дарвинизма. Полтора века не прошли зря, так что спорить с Ч. Дарвином, как это часто делают не самые продвинутые “критики”, столь же глупо, как спорить с астрономами или физиками середины XIX века. Хотя, надо признать, Ч. Дарвин сумел описать все основные формы отбора и привести столько примеров и доказательств, что в этом его поныне не превзошел никто.
Краткая суть синтетической теории эволюции заключается в следующем. Наследственная информация хранится в клетках живых существ в виде сложных молекул РНК или ДНК, отрезки которых, кодирующие определенные белки или управляющие их синтезом, называются генами; на более высоком уровне ДНК может быть оформлена в комплексы – хромосомы. Гены случайно и ненаправленно изменяются под воздействием разнообразных факторов, такие изменения называются мутациями. Для эволюции значимы те мутации, что происходят в половых клетках и передаются потомству. За счет мутаций возникает изменчивость. Это принципиальный момент, часто недооцениваемый людьми, далекими от биологии: на самом деле, почти все виды живых существ весьма изменчивы. Например, ланцетники одной популяции, несмотря на то что для людей они “все на одно лицо”, генетически могут отличаться больше, чем самые отличающиеся друг от друга люди на всей планете. При половом размножении изменчивость еще усиливается за счет рекомбинации – перемешивания генов родителей. За счет рекомбинаций разнообразие создается даже в отсутствие новых мутаций, да при этом и безопаснее, ведь гены родителей уже прошли проверку жизнью, а смесь двух хороших вариантов, скорее всего, будет тоже неплохой.
Мутации чаще всего оказываются вредными или нейтральными, но секрет в том, что условия окружающей среды не остаются постоянными. Меняется климат, движутся материки, сами живые существа не сидят на месте. В новых условиях новые признаки могут дать индивиду некое преимущество в сравнении с исходным вариантом. Преимущество (приспособленность, адаптивность) по большому счету измеряется числом оставленных генетических копий. Существенно, что при этом необязательно выживать самому: например, осьминоги и лососи после размножения погибают, но если из потомков останется хотя бы двое, то это уже неплохая приспособленность. В вульгарном изложении часто приходится слышать фразу “выживает сильнейший”, однако если этот сильнейший выжил и забодал всех вокруг, но детей не оставил, то для эволюции он ноль или значим лишь как фактор отбора других особей, которым он устраивал трудности при жизни. В этом смысле он не отличается, скажем, от погоды или упавшего метеорита.
Важно и то, что при всем этом необязательно кто-то должен умирать: пресловутая “борьба за существование” не всегда сопровождается кровавыми разборками и горами трупов. Обычно все ограничивается просто статистикой и чистой математикой. Чьи гены в большем числе представлены в следующем поколении, те наверняка будут представлены и в послеследующем (пока условия не изменятся и преимущество не перейдет к другим везунчикам).
Как ни странно, для того чтобы оставить свои гены, даже не обязательно размножаться. Например, если некая тетя сама детей не имеет, но активно помогает выращивать потомство десятку своих сестер (а без помощи они бы не справились), то она может оставить собственных генных копий больше, нежели у нее были бы свои чада. Секрет в том, что ее гены и гены сестер примерно одинаковые. И не так важно, из чьего тела взялась цепочка нуклеотидов, главное – их последовательность. Главное – “дополнительные” дети, выжившие благодаря усилиям героической тети, могут математически считаться ее собственными (конечно, все чуть сложнее, но не станем занудствовать).
Условия среды могут измениться так, что полезнее оказываются признаки, бывшие до того нейтральными или даже вредными, тем более что регулярно условия сменяются на вообще противоположные. Скажем, при похолодании лучше будут выживать мохнатые, при потеплении – лысые; колебания климата отразятся в смене мохнатых на лысых, а потом снова на мохнатых. Однако в генетическом плане “новая мохнатость”, скорее всего, будет кодироваться иными комбинациями генов, чем первая, так как геном очень велик и вероятность возвратных мутаций, хотя и не нулевая, все же очень мала. За множество поколений изменения накапливаются и существо превращается во что-то совсем новое. Понятно, что интенсивность эволюционных преобразований сильно зависит от жесткости условий, темпов природных изменений, скорости мутаций и длины поколения. Для крупных животных, к которым относится и человек, эволюция свершается за очень длительное время – многие тысячи лет, тем более что и условия редко меняются резко.
Отбор, происходящий в природе, называется естественным.
Кроме внешних условий, признаки отбираются другими животными того же вида, но другого пола: это называется половым отбором. Как правило, отбирающим является тот пол, который тратит больше энергии на выращивание потомства (чаще это самки – им не надо доказывать, что они нужны, ведь это они будут растить детей), а отбираемым – пол-халявщик, поставляющий только гены (обычно это самцы – они должны доказать, что именно их личные гены достойны перейти в следующее поколение). Половой отбор нацелен на выявление особо ценных генетических комплексов, но парадоксальным образом – через их явное преобладание над бесполезными или даже вредными признаками, проявляющимися во внешности или поведении. Например, если у самца павлина огромный яркий хвост, мешающий летать, но до сих пор красавца не съела ни одна кошка, то другие гены явно перевешивают, одаривая везунчика идеальным слухом, отличной реакцией и мощными грудными мышцами. Самки, выбирающие самых хвостатых самцов, будут оставлять больше генов, так как птенчики, кроме вредного в общем-то хвоста, унаследуют и все несомненные достоинства отца. Потом все повторяется, так хвост будет расти от поколения к поколению. Ясно, что самка делает выбор не сознательно, просто птенцы самки, избравшей захудалого самца, с большей вероятностью погибнут и “гены выбирания захудалых самцов” не получат распространения. Поэтому половой отбор в итоге может создавать откровенно вредные признаки, которые потом уравновешиваются естественным отбором.
Многие признаки вообще не имеют большой адаптивной ценности, они могут меняться довольно случайно, по статистическим законам, называющимся генетико-автоматическими процессами, варианты которых – генный дрейф, “эффект основателя”, “эффект бутылочного горлышка” – проявляются в некоторых специфических, хотя и нередких, условиях. Нейтральных признаков великое множество, не стоит искать глубокий смысл в каждой мелкой особенности. К примеру, мочка уха бывает свободная или приросшая – никому еще не становилось хорошо или плохо от обладания каким-то из этих вариантов, но в популяциях их частоты могут существенно различаться. На человеческом разнообразии изучать генетико-автоматические процессы особенно занимательно (подробнее об этом можно прочитать в соответствующих книгах: Дробышевский, 2014б).
В настоящее время синтетическая теория эволюции в ее современной версии фактически является единственной научной теорией развития жизни. Ее придерживается подавляющее большинство биологов – вероятно, гораздо больше 90 %. Такой успех явно неслучаен: у теории эволюции сильнейшая доказательная база, она подтверждается практически всеми биологическими исследованиями, включая прямые эксперименты. Немногочисленные альтернативы синтетической теории эволюции рассматриваются биологами скорее как ее дополнения. Это, например, разнообразные варианты мутационизма. Согласно им, изменения наследственности происходят не в течение длительного времени, а практически одномоментно и сразу дают новую форму организмов. Впрочем, развитие генетики и молекулярной эволюции в последние десятилетия фактически похоронило такие концепции. Иногда высказываются мысли о некой направленности эволюции, исходящей, например, из “внутреннего стремления к прогрессу”, но вообще-то теория прекрасно обходится и без таких излишеств.
Наш обзор, разумеется, слишком краток, упрощен и не может дать полного представления о принципах и механизмах эволюции. Любознательный Читатель может подробнее узнать об этих интересных материях во множестве замечательных книг (например: Докинз, 2010, 2012; Марков, 2010, 2012а, б; Марков, Наймарк, 2014).
В приложении к человеку теория эволюции называется антропогенезом. Наши предки, будучи частью окружающей природы, тоже постепенно видоизменялись вслед за сменой внешних условий. Особенность человека в том, что с некоторого момента существенной силой его эволюции стала социокультурная составляющая, причем чем ближе к современности, тем она оказывается значительнее. Нельзя сказать, чтобы человек в этом отношении был чересчур уникален, но специфика антропогенеза все же довольно сильна.
Глава 2. Поиски истины: методы исследования антропогенеза.
Палеоантропологические методы.
Как же мы можем узнать о том, откуда взялся человек? Законный вопрос Читателя: “Откуда автор понабрал своих утверждений, почему я должен верить ему, а не кому-то еще?” Религия предлагает наиболее простой путь решения: все сказано в Священном Писании. Философы выводят свои заключения, исходя из своей логики. Ученые же пытаются доказать свои положения, обосновав их с помощью известных фактов. Когда фактов не хватает, ученые проводят специальные исследования, восполняя наши знания об окружающем мире. Критерий проверки информации, изложенной в нашей книге, очень прост: каждый читатель может взглянуть на древние черепа в книге, музее или на сайте “Антропогенез.ру”, прочитать специализированные статьи и книги, пересчитать содержащиеся там цифры, в конце концов, посмотреть на себя в зеркало. Взаимная перекрестная проверка цифр, фактов и их объяснений сотнями независимых друг от друга людей позволяет надеяться, что итоговые концепции адекватно описывают реальность.
Как уже говорилось, специфика антропогенеза заключается в существенном влиянии поведения человека на собственную эволюцию, тесной связи биологии с формированием общества – социогенезом. Это значительно расширяет горизонты исследований. Изучая прошлое человечества, невозможно ограничиться рассмотрением только биологической его стороны или только социальной. Человек – это биосоциальное существо, он не может существовать вне общества, равно как и общество состоит из отдельных индивидов. Потому-то антропогенез и является переплетением множества разнообразных научных дисциплин, а исследование эволюции человека похоже на детективное расследование, где любой мельчайший факт может изменить картину. Впрочем, не стоит переоценивать уникальность человека в этом отношении. Всем прекрасно известны, например, муравьи, пчелы и термиты, кое-кто может вспомнить голых землекопов и даже эусоциальных ракообразных.
Антропогенез – мультидисциплинарная наука. Соответственно, и комплекс подходов к изучению прошлого человечества весьма богат. В фундаменте биологических наук лежит анатомия – наука, описывающая план строения организма; особенное внимание антропологи уделяют сравнительной анатомии. Надстройками анатомии являются морфология, изучающая изменчивость организма, а также физиология, наука о том, как организм работает. Естественно, крайне важна эмбриология. Огромнейшее значение имеют генетика и неотделимая от нее молекулярная биология, повествующие о самых основах жизни. Своего рода венцом общебиологических дисциплин можно назвать сравнительную этологию, дающую знания о поведении животных.
Для того чтобы понять, чем же человек уникален, нелишне познакомиться с его родней. Кто в окружающем мире наиболее похож на человека? По всем признакам: строению, особенностям развития, поведению и просто внешне – нашими ближайшими родственниками являются обезьяны. Тут на помощь приходит приматология, включающая палеонтологию приматов, современную приматологию, а также этологию приматов.
По большому счету частным случаем палеоприматологии является палеонтология человека, которой будет посвящена бóльшая часть книги. Тут стоит сделать пояснение. Когда человек, далекий от естественных наук, видит фотографии неких палеоантропологических находок, он часто бывает разочарован их фрагментарностью. Ну что это – кусочек челюсти, обломок лучевой кости, осколок вообще непонятно чего. Соответственно, и отношение к реконструкциям, интерпретациям подобных находок бывает подчас очень скептическим. “Вот найдут пару зубов, пару косточек – а дальше нафантазируют…” – такую фразу антропологам приходится слышать слишком часто. Но у большинства людей об этом явно искаженное представление.
На самом деле в настоящее время большинство групп ископаемых предшественников человека представлены сотнями, а иногда и тысячами находок. Зачастую это и вправду обломки и фрагменты, зато их много. Мало-помалу по таким кусочкам набирается серьезная статистика: имея сотни фрагментов, несложно собрать из них целые кости и даже скелеты. Даже по австралопитекам – самым древним из прямоходящих – имеются тысячи находок. Да и целых черепов и скелетов известно уже немало. Возникла даже своеобразная проблема – ученые часто незаслуженно пренебрегают фрагментами, недооценивают их значимость, предпочитая работать с комплектными находками, отчего огромное количество потенциально полезной информации остается незадействованной. На самом деле ныне у антропологов сложность не с недостатком, а с избытком информации: находок так много, что ими уже трудно оперировать, даже специалисты нередко упускают какие-то отдельные находки или не знают о них, потому что одному человеку трудно охватить всё сразу. Про особенности строения черепа разных видов австралопитеков известно чуть ли не больше, чем про различия и сходства черепов разных рас современного человека.
Можно еще добавить, что эволюция человека сейчас изучена лучше, чем эволюция какого-либо иного вида. Нет отдельной науки про эволюцию, например, лошади или собаки (хотя они тоже отлично исследованы), а для человека есть свой собственный антропогенез! Такой непрерывной линии с таким количеством со всех сторон рассмотренных, измеренных, просвеченных рентгеном и томографом и только что не облизанных находок, как для человека, никто ни для каких иных живых существ не рисовал.
Кстати, об облизывании… В начале XX века археологами практиковался замечательный метод определения древности – лизнуть ископаемую кость: бытовало мнение, что если она липнет, значит, ее возраст не самый почтенный, если не липнет – весьма достойный. Так что немалое число находок было облизано в самом буквальном смысле слова.Важно знать и помнить, что антропологи строят свои выводы не на пустом месте, они могут математически оценить степень своего невежества и достоверность выводов. В этом им помогает биометрия – дисциплина об измерении живого. В приложении к человеку биометрия обычно называется антропометрией. Антропологи измеряют все, что можно измерить (“лучше один раз померить, чем сто раз увидеть”), а что трудно – описывают и оценивают в баллах по стандартным шкалам. Слава классикам, в конце XIX – первой трети XX века нашлись великие ученые, например Р. Мартин, П. Брока и В. В. Бунак, создавшие универсальные методики измерения и описания скелета и тела человека, понятные и известные антропологам всей планеты. Более того, такая ситуация фактически уникальна для науки и безгранично удобна: любой исследователь всегда точно знает, что имел в виду другой, измеряя, скажем, “размер 8 по Мартину”. Иногда можно даже не знать языка публикации (много ли русских антропологов знают китайский? а испанских – русский?), но это не мешает свободно пользоваться измерительными данными и делать собственные заключения. Измерениями тела занимается соматометрия, описанием – соматоскопия, для скелета это остеометрия и остеоскопия. Поскольку голова и череп всегда привлекали больше внимания и часто объективно более информативны, то для их измерения и описания есть свои термины: цефалометрия – цефалоскопия и краниометрия – краниоскопия.
Сотни и тысячи цифр загоняются антропологами в безумные матрицы, постичь смысл коих помогает статистика. Простейшие методы называются одномерной статистикой, а более хитрые – многомерной. Взирая на полученные графики, всяческие канонические переменные, факторы, главные компоненты, их нагрузки и оценки вероятности ошибки, исследователь, наконец, делает обоснованные выводы. То есть современный антрополог не берет идеи с потолка и не высасывает их из пальца, а получает математическими способами. Антропология – это более чем наполовину математика, цифры, цифры и цифры. Конечно, совсем без доли фантазии обойтись нельзя и творческое начало всячески приветствуется, но любое положение антрополог должен подтвердить статистически.
Впрочем, человеческий мозг покамест не может быть полностью заменен компьютером. Техника обсчитывает только те данные, что мы в нее вводим, а разум – даже то, что сознание порой не всегда может четко вербализовать. По сути, мозг работает как мощнейший сверхкомпьютер, проводящий сверхмногомерный анализ. Поэтому часто опытному антропологу достаточно лишь посмотреть на черепа или лица, чтобы сделать выводы, которые расчеты потом только узаконят. Но проблема в том, что, во-первых, мозг может и ошибиться, а во-вторых, профессионализм – штука трудноуловимая и сложнодоказуемая. Посему любая истинно научная статья – будь она по филогении, систематике или этологии – сопровождается массой расчетов, таблиц и графиков, без них никуда. Оттого же все, что будет изложено далее, имеет мощнейшее обоснование в виде миллионов цифр, полученных сотнями антропологов за последние полторы сотни лет. Такова современная наука. Кому-то это может показаться скучным и даже нетворческим, но что делать. Конечно, дабы избавить Читателя от излишних мук, я не буду злоупотреблять статистикой, но помнить о великом математическом базисе Читатель должен.
Смежные науки.
Для понимания факторов и причин эволюции человека антропологу необходимо разбираться в палеонтологии – науке о древних живых существах и условиях их существования. Многочисленные фауны, жившие когда-то, исчезли, но от них остались окаменевшие кости, древняя флора преобразилась в уголь и отпечатки. Заглянуть в прошлое можно разными способами. Важнейшими для нашей темы разделами являются палеонтология позвоночных, палеоботаника (в том числе ее подраздел – палинология) и палеоэкология. Особое значение имеет тафономия – наука о захоронении ископаемых остатков.
Кроме собственно биологических дисциплин, антропология широко использует данные других наук. Геология (геоморфология, геофизика, стратиграфия, геохронология) дает бесценные знания о времени и условиях жизни наших предшественников. В этом ей помогает химия.
В широком смысле физическими являются многочисленные методы датирования: датировки составляют принципиально необходимую нить, на которую нанизываются события антропогенеза, без них антропологу жить грустно. В целом методы датирования разделяются на относительные и абсолютные.
К относительным относятся стратиграфические и типологические методы, они позволяют оценить только последовательность событий, но не их точный возраст. Стратиграфия – наука об образовании и порядке напластования геологических отложений. В самом простом варианте логика стратиграфии элементарна: чем глубже что-то залегает в земле, тем оно древнее, чем ближе к поверхности, тем моложе. Бывают, конечно, случаи нарушения естественного залегания слоев (перекоп, обвал, размыв), отчего это простое правило выполняется не в обязательном порядке, но на то и геологи с археологами, чтобы распознать подвох. Сопоставляя схожие слои в разных местах, геологи делают выводы о синхронности, асинхронности и последовательности происходивших в древности событий.
Типологические методы позволяют сравнивать находки, происходящие из разных слоев. Наилучшим образом типология развита в археологии: слои с одинаковыми или очень похожими вещами условно считаются синхронными. Сейчас построены длинные типологические ряды для самых разных вещей, позволяющие датировать археологические слои иногда с точностью до нескольких лет. В меньшей степени типология применима по отношению к находкам останков живых существ – этому посвящены сравнительно-флористический и сравнительно-фаунистический методы, – поскольку изменения организмов в процессе эволюции совершаются, как правило, очень медленно. Погрешность тут может достигать даже миллиона лет. Тем не менее очень часто слои датируются только на основании биостратиграфии – науки о последовательном изменении фаун и флор во времени.
Абсолютные методы датирования позволяют получить точную дату. Подавляющая их часть – радиометрические: радиоуглеродный, калий-аргоновый, торий-урановый и другие. Они основаны на явлении радиоактивности химических элементов: за определенный период времени один изотоп элемента превращается в другой или даже в иной элемент. Поскольку период полураспада у разных элементов и изотопов разный, постольку разные методы имеют свои границы определения возраста. Например, радиоуглеродный метод дает наиболее точные датировки от современности до 30–40 тыс. лет назад.
Уголок занудства. Самый известный радиометрический метод – радиоуглеродный, или 14C: в живых организмах накапливаются изотопы 12C, 13C и 14C в той же концентрации, в какой они содержатся в атмосфере и биосфере, а после смерти стабильные изотопы 12C и 13C сохраняются, а нестабильный 14C постепенно распадается. Определяя содержание 14C в древней органике, зная изначальные концентрации и скорость распада, а также учитывая позднейшие загрязнения, можно определить время гибели организма. Кроме радиоуглеродного, есть множество иных методов, наилучший результат они дают при совместном использовании и взаимной проверке.Из нерадиометрических методов абсолютного датирования очень широко используется термолюминесцентный. Весьма употребительна дендрохронология – дисциплина об определении возраста по кольцам деревьев. Известно, что каждый год ствол дерева прирастает на одно кольцо, а ширина колец зависит от погоды. В случаях, когда имеется большое количество хорошо сохранившейся древесины, можно построить последовательные серии колец для многих лет подряд, вплоть до нескольких тысяч лет.
Другим нерадиометрическим абсолютным методом является определение последовательности ленточных глин, накапливающихся год от года в некоторых спокойных северных водоемах. В зависимости от температуры в озерах более или менее интенсивно размножается планктон, оседающий затем на дно слоями разной толщины. По числу и рисунку полос этих слоев можно определить возраст предмета, упавшего на дно, с точностью до года.
Впрочем, в антропогенезе последние два метода почти не используются, поскольку антропологи обычно имеют дело с десятками, сотнями тысяч и миллионами лет – периодами, за которые любая древесина исчезла бесследно; ленточные же глины формировались не в тех областях, где жили наши предки.
Биосоциальная сущность человека позволяет применять к его исследованию социальные науки. Прежде всего это, конечно, археология – наука об образе жизни, социальном устройстве, материальной и духовной культуре прошлого. Люди в прошлом, как и сейчас, оставляли на Земле следы своего пребывания – причем иногда в самом прямом смысле. Люди жгли костры, делали орудия, строили жилища. Все это со временем разрушалось, но в земле сохранялись некоторые остатки – свидетельства этой жизни. Надо только их найти и суметь расшифровать. Иногда археологию понимают как “доисторию”, изучающую культуры, для которых неизвестны письменные свидетельства – до античности или до средневековья. В реальности же археологи часто изучают и письменные культуры, даже весьма близкие к нам по времени, – Античность, Средневековье и даже Новое время. При этом порой удается получить данные о таких элементах культуры, о которых не говорят никакие летописи. Впрочем, для нашей темы столь поздние времена не очень важны.
Оживляет пыльные археологические находки сравнительная этнология или этнография, хотя в антропогенезе ее применимость довольно спорна. Теоретически много данных может дать и психология, хотя на практике ее плодотворный контакт с антропологией пока как-то не состоялся.
Так, по фрагментам, собирается информация о прошлом Земли и прошлом человечества. Антропологи пытаются сложить из этих кусочков единую мозаику, грандиозную картину прошлого, восстановить былое во всех его деталях. Не все еще известно, возникают все новые вопросы, процесс познания продолжается.
Глава 3. Парад участников.
Чтобы неподготовленный читатель с первых же страниц не запутался в обилии названий древних предшественников и предков человека и не захлопнул в сердцах книгу, полезно для начала провести парадный смотр (немало интересного можно найти также в таблицах в “Приложении” в конце второй книги).
Уголок занудства. Геохронологическая шкала подразделяется на иерархически подчиненные друг другу отрезки времени: эоны (эонотемы) делятся на эры (эратемы), те – на периоды (системы), периоды – на эпохи (отделы), а они, в свою очередь, – на века (ярусы). Наш эон – фанерозой, он делится на три эры: палеозой (кембрий, ордовик, силур, девон, карбон, пермь), мезозой (триас, юра, мел) и кайнозой. Практически вся история приматов укладывается в последний, каковой делится на три периода: палеоген, неоген и антропоген, который часто называется четвертичным периодом. Палеоген включает палеоцен, эоцен и олигоцен; неоген – миоцен и плиоцен; антропоген – плейстоцен и голоцен. Есть предложение выделить антропоцен, но пока эта эпоха не является формальной.Тупайи Scandentia: современные похожие на белок существа, живущие в Юго-Восточной Азии; в современной классификации обычно не включаются в приматов, но явно их родственники.
Шерстокрылы Dermoptera: современные похожие на огромных летяг, но родственные лемурам существа, живущие в Юго-Восточной Азии; в современной классификации обычно не включаются в приматов, но явно их ближайшие родственники.
Плезиадаписовые, или плезиадапиформы, Plesiadapiformes: жили с нижнего палеоцена по верхний эоцен (65–42 млн лет назад) в Европе, Северной Америке и Азии. Ископаемые предки приматов.
Полуобезьяны, или “мокроносые”, Strepsirrhini, или Prosimii: примитивные приматы, преимущественно ночные, часто насекомоядные. Включают адаписовых, лемурообразных, лориобразных и руконожковых.
Адаписовые Adapiformes, или Adapoidea: жили с нижнего эоцена по верхний миоцен (56–7 млн лет назад) в Северной Америке, Европе, Северной Африке и Азии. Ископаемые полуобезьяны, предки современных лемуров.
Лемурообразные Lemuriformes: Мадагаскар; лориобразные Lorisiformes: Африка и Юго-Восточная Азия; руконожковые Chiromyiformes: Мадагаскар. Современные полуобезьяны, примитивнейшие из современных приматов.
Обезьяны, или “сухоносые”, Haplorrhini: высшие приматы. Более продвинутые, чем полуобезьяны, в том числе по строению мозга и поведению. Включают долгопятообразных и обезьян-антропоидов.
Долгопятообразные Tarsiiformes: специализированные ночные насекомоядные обезьяны, имеющие, однако, множество черт полуобезьян. Включают омомисовых и долгопятовых.
Омомисовые Omomyiformes: жили со среднего палеоцена по нижний миоцен (60–34 млн лет назад) в Северной Америке, Европе, Северной Африке и Азии. Ископаемые предки долгопятовых и, возможно, антропоидов.
Долгопятовые Tarsiiformes: современные долгопяты Юго-Восточной Азии, крайне своеобразные приматы.
Антропоиды, человекоподобные, или обезьяны в узком смысле, Anthropoidea, или Simiiformes: высшие обезьяны, почти всегда дневные и растительноядные. Ископаемые парапитековые Parapithecoidea, эосимиевые или амфипитековые Eosimiiformes, проплиопитековые Propliopithecoidea и плиопитековые Pliopithecoidea – предки современных обезьян-антропоидов: широконосых и узконосых.
Широконосые Platyrrhini, или Ceboidea: обезьяны-антропоиды Центральной и Южной Америки.
Узконосые Catarrhini: обезьяны-антропоиды Африки и Азии, в древности также Европы. Включают мартышкообразных и человекообразных.
Мартышкообразные Cercopithecoidea: мартышковые Cercopithecinae и толстотелые Colobinae. Обезьяны Африки и Азии, в древности также Европы. Преимущественно древесные, реже наземные, почти полностью растительноядные.
Человекообразные, или гоминоиды, Hominoidea, или Anthropoidea, или Anthropomorpha: Африка и Азия, в древности также Европа. Крупные обезьяны с развитым интеллектом, без хвоста, древесные и редко наземные, почти полностью растительноядные. Проконсуловые Proconsulidae – древнейшие человекообразные и предки прочих человекообразных. Гиббоны Hylobatidae – сравнительно мелкие, сугубо древесные растительноядные обезьяны Юго-Восточной Азии. Орангутаны Pongo pygmaeus – крупные рыжие жители Суматры и Калимантана, сугубо древесные вегетарианцы. Гориллы Gorilla gorilla – самые крупные современные обезьяны, живущие в Западной и Центральной Африке, почти наземные, растительноядные. Обыкновенный шимпанзе Pan troglodytes и карликовый шимпанзе, или бонобо, Pan paniscus – среднего размера обезьяны Западной и Центральной Африки, преимущественно древесные и в основном растительноядные, самые близкие родственники человека.
Гоминиды Hominidae: в узком смысле включают прямоходящих приматов с маленькими клыками (в нашей книге мы будем использовать именно такое определение); в широком – также горилл и шимпанзе.
Австралопитековые Australopithecinae: гоминиды с множеством типичных обезьяньих черт, с обезьяньей головой и наполовину человеческим телом; иногда выделяются в самостоятельное семейство Australopithecidae. Орудийная деятельность зачаточная.
Ранние австралопитеки: 7–3,9 млн лет назад, Африка. Обладали наиболее примитивным строением, большинство черт обезьяньи. Каменных орудий труда не изготовляли. Выделяют несколько родов и видов ранних австралопитеков: Sahelanthropus tchadensis (7,2–6,8 млн лет назад, Чад), Orrorin tugenensis (5,88–5,72 млн лет назад, Восточная Африка), Ardipithecus kadabba (5,8–5,2 млн лет назад, Восточная Африка), Ardipithecus ramidus (4,51–4,32 млн лет назад, Восточная Африка), Australopithecus anamensis (4,2–3,9 млн лет назад, Восточная Африка).
Грацильные австралопитеки Australopithecus: 3,8–2,0 млн лет назад, Африка. Имели сравнительно небольшие размеры, обезьянью голову, множество обезьяньих черт строения руки, но были полностью прямоходящими. Каменных орудий труда почти никогда не изготовляли (кроме позднейших). Australopithecus afarensis (3,8–2,9 млн лет назад, Восточная Африка, наш прямой предок), Australopithecus bahrelghazali (3,58 млн лет назад, Чад), Australopithecus deyiremeda (3,5–3,3 млн лет назад, Восточная Африка), Kenyanthropus platyops (3,5–3,2 млн лет назад, Восточная Африка), Australopithecus africanus (3,1–2,6 млн лет назад, Южная Африка), Australopithecus garhi (2,5 млн лет назад, Восточная Африка, изготовлял каменные орудия труда), Australopithecus sediba (2 млн лет назад, Южная Африка, имел примерно половину признаков Homo, так что может быть описан и как Homo sediba).
Массивные австралопитеки, или парантропы, Paranthropus: 2,6–1,0 млн лет назад, Африка. Очень массивно сложенные специализированные формы с крайне развитыми челюстями, маленькими передними и огромными задними зубами, при этом полностью прямоходящие. Могли изготовлять каменные орудия труда. Paranthropus aethiopicus (2,7–2,3 млн лет назад, Восточная Африка), Paranthropus boisei (2,5–1,1 млн лет назад, Восточная Африка), Paranthropus robustus (2,0–1,5 млн лет назад, Южная Африка).
Гоминины Homininae: гоминиды без обезьяньих черт, включают все последующие группы.
“Ранние Homo”: первые представители нашего рода, не очень сильно отличавшиеся от австралопитеков, но имевшие в среднем больший мозг и изготовлявшие каменные орудия труда. Обычно выделяют два следующих вида.
“Люди рудольфские” Homo rudolfensis: 2,4–1,85 млн лет назад, Африка; культура галечная. Возможно, уже на этой стадии некоторые люди впервые покинули Африку и дошли до Кавказа.
“Люди умелые” Homo habilis: 1,85–1,65 млн лет назад, Африка; культура галечная.
“Люди Диналеди”, или наледи, Homo naledi: нет датировки, Южная Африка. Отнесение этого вида к “ранним Homo” оправдано морфологически, но его статус и эволюционное положение пока неясны.
Преархантропы, или “люди работающие”, Homo ergaster: 1,65–1,4 млн лет назад, Африка; культура галечная, появляется ранний ашель. Специфически обезьяньи черты уже исчезли, пропорции тела современные, но череп примитивный, средний объем мозга равен минимальному нормальному у современного человека.
Архантропы, или “люди прямоходящие”, или эректусы Homo erectus: 1450–400 тыс. лет назад, Африка, Азия, Европа; культура средний ашель. Расселились по тропической зоне Старого Света, дошли до Явы и даже Флореса. Примитивные люди с размером мозга вдвое-втрое большим, чем у шимпанзе и австралопитеков, но в полтора раза меньшим, чем в среднем у современных людей. Региональные варианты имеют массу названий: питекантропы (Ява), синантропы (Китай), атлантропы (Северная Африка), довольно моден синоним Homo antecessor (Европа). Название “прямоходящий” не значит, что эти люди были первыми прямоходящими, просто для Э. Дюбуа, давшего название в XIX веке, это было так; сейчас ясно, что прямохождение возникло за 5–6 млн лет до архантропов.
Препалеоантропы, или “люди гейдельбергские”, или гейдельбергенсисы, Homo heidelbergensis: 700–130 тыс. лет назад, Африка, Азия, Европа; культура поздний ашель. Расселились в числе прочего в зоны умеренного климата. Строение черепа по-прежнему очень примитивное, но объем мозга почти достиг современных средних значений. В некотором роде сборная солянка, потому что на этом этапе географически удаленные варианты могут сильно отличаться друг от друга. Европейские гейдельбергенсисы являются предками неандертальцев; африканские – предки сапиенсов – часто описываются под собственными названиями вроде Homo rhodesiensis.
Денисовцы: ?800 –?30 тыс. лет назад, Азия. Загадочные люди, известные почти только по ДНК из Денисовой пещеры на Алтае. Возможно, это азиатские гейдельбергенсисы. Не были нашими прямыми предками, но могли ограниченно смешиваться с первыми сапиенсами.
“Люди флоресские”, или “хоббиты”, Homo floresiensis: ?900–190–50 тыс. лет назад, Индонезия, остров Флорес. Карликовые потомки яванских архантропов-питекантропов, пережившие всех близких родственников и вымершие, возможно, от рук сапиенсов.
Неандертальцы, или палеоантропы Европы и Западной Азии, Homo neanderthalensis: 130–28 тыс. лет назад, Европа и Западная Азия; культуры микок и мустье. При наличии примитивных и специализированных черт строения имели мозг не меньший, чем у современных людей. Развили крайне примитивные формы искусства, погребали умерших, были самыми главными хищниками своего времени. Не были нашими прямыми предками, но могли ограничено смешиваться с первыми сапиенсами.
Палеоантропы Африки Homo helmei, Homo sapiens idaltu: 200–50 тыс. лет назад, Африка. Предки людей разумных, имевшие почти современное строение, но сохранявшие и архаичные черты, доставшиеся от предков; в силу переходности часто расцениваются как “архаичные Homo sapiens” или даже называются “анатомически современными Homo sapiens”. Выходившие за пределы Африки около 100 тыс. лет назад Homo sapiens palestinus на Ближнем Востоке могли смешиваться с неандертальцами, но эти первые внеафриканские миграции, скорее всего, окончились вымиранием. Одна или две миграции, имеющие прямое отношение к современным внеафриканским людям, были совершены предположительно от 100 до 45 тыс. лет назад, причем более вероятны поздние цифры.
Современные люди, или “люди разумные”, Homo sapiens: 50 тыс. лет назад – современность (древнейшие представители – кроманьонцы: 50–10 тыс. лет назад, эпоха верхнего палеолита), вся планета. Собственно, мы.
Особая обезьяна. Часть вторая, ученая, из коей любознательный Читатель узнает, почему он обезьяна и почему он человек.
Глава 4. Что в нас обезьяньего?
Многим людям кажется, что человек очевидно уникален. Как же – он безволос, двуног, невероятно умен, по крайней мере, это он рассуждает о своей уникальности, а не лемуры с мартышками. Однако зоология неумолима.
Принадлежность человека к отряду приматов подтверждается всем сводом наших знаний как о человеке, так и о приматах – генетикой, биохимией, эмбриологией, анатомией, этологией и палеонтологией. По подавляющему большинству параметров человек ближе всего к шимпанзе, по меньшему – к горилле, еще дальше от нас орангутан, еще дальше – гиббоны. Более того, по массе свойств шимпанзе больше похожи на людей, чем на орангутанов, как бы странно это ни звучало для человека, обращающего внимание лишь на внешность. Внешность, как известно, обманчива. На самом деле важнее всего генетика – именно в ДНК содержится самая наша суть.
В настоящее время геномы всех крупных человекообразных обезьян полностью расшифрованы, так что порядок их эволюционного ветвления и масштаб отличий известны. У шимпанзе с человеком общий геном составляет от 94 до 99 % в зависимости от способа подсчета. Показательно, что, поскольку мужчина от женщины отличается на целую хромосому, а она составляет больше 2 % генома, то генетические различия мужчин и женщин человека больше, чем мужчин и самцов шимпанзе! Кроме того, при желании можно найти двух людей, отличия которых по числу неодинаковых нуклеотидов – кирпичиков ДНК – будут сопоставимы по масштабу с разницей между шимпанзе и человеком. В среднем же два человека отличаются примерно на 0,1 % генома при подсчете по нуклеотидам, а человек и шимпанзе – на 1 %.
Однако стоит помнить, что разница разнице рознь: примитивный подсчет отличий по нуклеотидам не дает адекватного представления о сути этих отличий. Различие между человеком и шимпанзе кроется в кодирующих последовательностях, а между двумя людьми – большей частью в незначимом генетическом мусоре. К тому же у обыкновенного шимпанзе на одну хромосому больше, чем у человека. У предков человека две хромосомы слились вместе; последствия такого контакта можно видеть в морфологии второй хромосомы человека – на ее длином плече есть остатки центромеры и рудиментарные теломеры. Набор генов от этого, впрочем, никак не поменялся, информация осталась принципиально той же, что на двух хромосомах человекообразных обезьян, но возможности скрещивания человека и шимпанзе, по-видимому, оказались утерянными (все, на самом деле, не так однозначно, но к этому мы еще вернемся).
Иногда в литературе можно встретить утверждение, что якобы у бонобо две хромосомы “частично слиты” и потому эти приматы представляют наглядный переход от шимпанзе к человеку. Автор этих строк, некритично восприняв информацию, некоторое время тоже был носителем сего заблуждения. Однако в действительности бонобо не отличается в этом отношении от своего более крупного собрата – обыкновенного шимпанзе.
Прямой результат работы генов – белки, а те, в свою очередь, порождают и прочую биохимию. Учитывая помянутое сходство генетики, неудивительно, что биохимические показатели человека и большинства приматов чрезвычайно сходны. Всем известно, что у человека и других обезьян, в том числе, конечно, и шимпанзе, совпадают группы крови. Даже слово “резус”, которое у большинства людей ныне твердо ассоциируется с фактором крови, на самом деле обозначает вид макаки. Впервые резус-фактор крови был открыт именно у макак-резусов, а после выяснилось, что такой же имеется и у людей.
Кстати, о почках… В свое время производились опыты по переливанию крови как от человека к шимпанзе, так и от шимпанзе человеку, делались даже пересадки печени, сердца, почек и костного мозга от павиана человеку. Эксперименты по пересадке почек от шимпанзе людям проходили поначалу вполне успешно, и почки работали, иногда месяцами. К сожалению, большинство таких попыток заканчивались довольно скорой – в течение двух-трех месяцев – смертью пациентов, но не из-за несовместимости органов, а из-за инфекций (ведь иммунитет искусственно подавлялся для предотвращения отторжения) и, видимо, в немалой степени от того, что пересадки делались людям с крайними формами заболеваний, приведших, собственно, к необходимости ксенотрансплантаций. Кроме прочего, стоит учесть, что подобные операции проводились давно, когда и пересадки органов от человека человеку далеко не всегда оказывались успешными. Тем не менее в одном случае пациентка – школьная учительница – прожила после операции 9 месяцев, причем отторжения шимпанзиных почек за это время так и не произошло.Фундаментальные биохимические показатели определяются так называемыми структурными генами, однако гораздо важнее гены регуляторные, задающие активность выработки белков и скорости роста. А темпы развития отражаются прежде всего в эмбриологии.
Эмбрионы и плоды человека и шимпанзе чрезвычайно сходны вплоть до рождения. Не говоря уж о жабрах и хвосте на ранних стадиях развития, у обезьяньего и человеческого эмбрионов почти идентичны общие размеры и пропорции. Например, первичная шерсть лануго у человеческого плода сохраняется до рождения, а иногда и дольше. После рождения разница между человеком и шимпанзе начинает усиливаться: у шимпанзе быстрее растут руки и челюсти, у человека – ноги, мозг и мозговой отдел черепа. Сами элементы строения те же самые, но скорости их роста разные. Тут мы можем, кстати, уловить одну из самых важных особенностей человека – позднее зарастание швов черепа, позволяющее расти головному мозгу. Результат эмбрионального развития – анатомические структуры взрослого индивида. И тут многие готовы воскликнуть: “Ага! Вот тут-то мы и видим очевидную разницу!” Но не все так просто.
Анатомически человек, понятно, заметно отличается от обезьян, но эта разница бросается в глаза, только если рассматривать человека в целом. Если же сравнение проводить по отдельным органам, костям или тканям, то отличия найти будет не так легко, разница только в пропорциях, но не в строении как таковом. Это создает трудности для палеонтологов, поскольку в ископаемом виде обычно сохраняются лишь отдельные элементы скелета. Например, отличить плечевую кость человека и того же шимпанзе бывает сложно даже специалисту; то же можно сказать и о многих других костях и органах. Моляры человека настолько похожи на зубы орангутанов, что некоторые ископаемые находки из Юго-Восточной Азии и Индонезии остаются неопределенными – не то человек, не то орангутан. Примером может служить моляр из пещеры Там-Хан во Вьетнаме. А ведь орангутан далеко не самый похожий на человека примат!
Кто-то скажет: “Ну как же – человек лыс, а любая обезьяна волосата!” Однако концентрация волосяных луковиц на коже у человека и обезьян почти одинакова: внешне очевидная разница по степени “волосатости” обусловлена почти исключительно толщиной волос – тонких и часто обесцвеченных у людей и толстых и пигментированных у обезьян.
Анатомическое сходство человека и других приматов настолько велико, что в Средние века и в начале эпохи Возрождения врачи изучали человеческое строение на обезьянах. Скажем, двенадцатиперстная кишка получила свое замечательное биометрическое название по размерам у макаки, а не человека. Собственно, проще перечислить отличия человека от других приматов, чем выписывать их многочисленные сходства.
Поведение человека может показаться резко отличным от поведения обезьян, но лишь до того момента, как мы начинаем подробно изучать его у приматов или обращать внимание на обезьяньи черты собственного образа жизни. Корректно проведенные сравнительные исследования показывают, что у человека и высших человекообразных обезьян принципиально сходны формы заботы о детях-детенышах, формы обучения трудовым операциям, половое поведение, виды приветствия (включая рукопожатие и похлопывание по плечу), способы выражения эмоций – страха, агрессии, недовольства, расположения, удовольствия, скуки, радости, озабоченности и прочих. Шимпанзе могут кооперироваться для охоты, изготовляют и используют орудия труда, умеют шутить (хотя и довольно топорно по человеческим меркам), обманывать и ругаться, имеют представление о прошлом, настоящем и будущем, проявляют прогностические способности, обладают отличной памятью, легко обучаемы. Гориллы в природе менее креативны, поскольку слишком велики и сильны, но в неволе проявляют удивительный интеллект. В родных лесах за ними никто не замечал использования орудий, кроме разве что пары случаев, но когда в зоопарках стали устанавливать камеры скрытого наблюдения, выяснилось, что гориллы занимаются этим с завидной регулярностью.
В условиях неволи орангутаны, гориллы и шимпанзе могут выучивать множество слов, причем воспринимают их разными способами, в том числе на слух. Хотя строение гортани не позволяет им произносить слова членораздельно, обезьян неоднократно обучали речи с помощью демонстрации геометрических фигур, компьютерной клавиатуры и жестового языка. Примечательно, что обезьяны могут учиться и друг от друга, например детеныши у матерей, хотя без помощи человека эти навыки затухают в следующем поколении. Очевидно, обезьянам для общения между собой вполне хватает иных средств. Самые талантливые обезьяны выучивали до трех тысяч слов и могли выражать разнообразные понятия на уровне двух-трех-, а по мнению некоторых ученых – даже пяти-шестилетних детей.
Тут мы можем выявить одно из ключевых отличий поведения обезьян от человеческого: обезьяны не такие зануды, как человек, они быстро теряют интерес, переключаются на новые темы, менее усидчивы и не могут долго сосредотачиваться и концентрировать внимание. Кстати, все те же свойства характеризуют человеческого ребенка до семи лет, почему и в школу люди идут именно в этом возрасте. До семи лет человек – все та же обезьянка. Обезьяны не учатся и, что важнее, – не учат долго и целенаправленно, ограничиваясь больше наблюдением между делом за поведением других обезьян и людей. В частности, у шимпанзе довольно туго обстоят дела с указующим жестом, они редко применяют его, хотя для людей он универсален и его адекватно воспринимают даже совсем маленькие дети.
Палеонтологические данные свидетельствуют о достаточно плавной эволюции приматов во всем их многообразии. Этому вопросу в нашем изложении посвящены отдельные главы, здесь можно указать лишь, что вопрос о “недостающем звене” уже более полувека не стоит в научной повестке дня; сейчас известны и подробно описаны практически все переходы от непосредственных предков приматов до современного человека. Это, конечно, не значит, что все вопросы палеонтологии человека уже решены, но общая схема эволюции приматов с появлением новых находок уже давно не меняется, а только обретает все более четкие очертания.
Глава 5. Что отличает нас от обезьян?
Все же, сколько бы мы ни были похожи на своих родственников, нельзя отрицать, что есть и сугубо человеческая специфика. Для основных столпов человечности даже есть красивый термин “гоминидная триада”. Она включает, во-первых, прямохождение, или бипедию, и весь комплекс морфологических адаптаций к ней; во-вторых, кисть, приспособленную не только к использованию, но и к изготовлению орудий; в-третьих, высокоразвитый мозг и сложное поведение.
На самом деле, конечно, сугубо человеческие свойства гоминидной триадой не ограничиваются. К ней можно добавить такой надежный признак, как маленькие клыки, не выступающие за линию других зубов. Более того, видимо, именно эта особенность была первой в ряду тех, что определенно повели к появлению человека.
Современные и ископаемые человекообразные обезьяны имеют крупные клыки, далеко выступающие за край резцов и премоляров. Кроме того, для успешного смыкания зубных рядов имеются диастемы – промежутки между резцом и клыком на верхней челюсти и между клыком и премоляром на нижней. Чтобы огромному верхнему клыку было где поместиться, изменена форма первых нижних премоляров, они асимметричные – секториальные. Изменения размеров клыков можно подробно прослеживать, поскольку зубы – это то, что чаще всего сохраняется от приматов. Некоторая редукция клыков наблюдается у дриопитековых и сивапитековых приматов. Впрочем, еще вопрос, какой эволюционный процесс преобладал – редукция или увеличение клыков? Дело в том, что древнейшие человекообразные – проконсулы – имели не такие уж большие клыки. Если посчитать по модулю отличия размеров клыков в парах проконсул – шимпанзе и проконсул – человек, то в первой паре разница будет больше. Это значит, что если мы за меру прогрессивности будем брать размер отличий от предка, то клыки шимпанзе и гориллы прогрессивны, а наши – примитивны!
Древнейшие известные прямоходящие обладали клыками сравнительно небольшими по обезьяньим меркам, но внушительными в человеческих масштабах. Размеры клыков австралопитеков помещают их посередине между шимпанзе и человеком, причем в хронологическом ряду австралопитеков мы можем видеть закономерное приближение именно к человеческим значениям.
Большой вопрос – уменьшение клыков вызвало изменения в поведении или, напротив, этологические сдвиги привели к редукции устрашалок во рту. Как бы там ни было, с уменьшением размеров клыков в группах обезьян должна была возникнуть проблема недопонимания, поскольку демонстрация маленьких клыков далеко не столь впечатляюща: одно дело, если скалится павиан, чьи клыки длиннее, чем у иного леопарда, а другое – австралопитек, у которого не поймешь – он злится или просто дружелюбно улыбается? Но выражать свои богатые чувства хочется, что и привело к усилению и развитию других коммуникационных способов – мимики, жестикуляции и речи. Все они на порядок лучше развиты у человека, нежели у других приматов. Конечно, не стоит абсолютизировать значение именно клыков, были и другие причины. Но уменьшение размеров клыков имело грандиозные последствия, и его нельзя недооценивать.
Прямохождение.
Широко известно полуанекдотическое определение человека как “двуногого без перьев”. Но человеку мало двуногости – он еще и ходит выпрямившись, в отличие от, скажем, птиц или тушканчиков, позвоночник которых расположен горизонтально. Прямохождение обеспечивается целым рядом специальных признаков.
Первый – положение большого затылочного отверстия на затылочной кости, через которое спинной мозг соединяется с головным. У четвероногих животных оно находится в задней части основания черепа и повернуто назад, так как позвоночник прикрепляется если и не строго сзади, то по меньшей мере наискосок; у прямоходящих существ отверстие расположено в центре длины основания черепа и открывается вниз, так как позвоночник подходит снизу, а передняя и задняя части черепа должны быть уравновешены. Соответственно, существенно меняются и места прикрепления шейных и спинных мышц, конфигурация затылка, укорачивается основание черепа.
Вариант промежуточного типа известен уже у Sahelanthropus tchadensis около 7 млн лет назад, заметно более продвинутый – у Ardipithecus ramidus 4,4 млн лет назад, а окончательно “прямоходящий” – у Australopithecus afarensis 3,5 млн лет назад.
Позвоночник четвероногих получает примерно равную нагрузку спереди и сзади, отчего размеры позвонков вдоль длины более-менее одинаковы, а центральная часть представляет собой равномерную дугу – аналог арочного моста. Крестец – часть позвоночника, к которой крепится таз, – имеет сильно вытянутую узкую форму, а его позвонки могут либо вообще оставаться независимыми, либо сливаться не полностью. У прямоходящих позвоночник ориентирован вертикально, а потому имеет характерные изгибы – лордозы вперед и кифозы назад; в итоге вся конструкция становится более-менее устойчивой и работает как пружина, а нагрузка стучит не строго по нижележащим позвонкам, а частично распределяется в стороны. Размеры позвонков у прямоходящих закономерно увеличиваются сверху вниз, самыми крупными оказываются нижние поясничные и верхние крестцовые, так как тут расположен центр тяжести организма. Крестец широкий и короткий, его элементы капитально сливаются между собой. У австралопитеков Australopithecus afarensis и Australopithecus africanus изгибы, вероятно, были как у современного человека, но некоторые детали строения позвонков (например, вытянутость тела позвонков спереди назад) сближают их с обезьянами.

Рис. 1. Основание черепа и большое затылочное отверстие шимпанзе (а), австралопитека (б) и человека (в).
Строение крестца у австралопитеков – начиная с Ardipithecus ramidus и Australopithecus afarensis – типично гоминидное. Конечно, не стоит абсолютизировать помянутые признаки. Например, у гориллы есть поясничный лордоз, но его появление связано не с прямохождением, а с огромным весом животного.
Строение таза очевидно разное при разных типах передвижения: у четвероногих обезьян таз узкий, высокий и вытянутый вдоль позвоночника, а у прямоходящих – широкий и низкий. Конечно, стоит помнить, что форма таза обусловлена еще и нуждами деторождения, но, судя по тому, что у австралопитеков голова была фактически обезьянья (а проблемы при родах создает как раз голова – она большая и плохо сжимается), а таз – человеческий, фактор локомоции играл определяющую роль.
Уголок занудства. На человеческой тазовой кости отлично выражена передняя нижняя подвздошная ость (костный выступ на переднем крае таза, читатель без труда может найти у себя верхнюю подвздошную ость – на ней держится ремень, нижняя скрыта мышцами; у обезьян нижней подвздошной ости фактически нет), а ушковидная поверхность и подвздошная бугристость, обеспечивающие соединение с крестцом, занимают значительную площадь. Седалищный бугор у человека могуч, а седалищная ость длинна и остра, тогда как у других обезьян первый короток, а второй вообще почти нет. На передней нижней подвздошной ости крепится прямая мышца бедра (часть четырехглавой мышцы бедра), разгибающая колено. Но она же сгибает бедро в тазобедренном суставе, то есть поднимает ногу вперед (или опускает тело, если нога прочно стоит на земле). Получается противоречие: одна и та же мышца одновременно держит тело вертикально в одном суставе, но наклоняет его в другом. У четвероногих животных такой странной проблемы нет, ведь у них нога вертикальна, а тело горизонтально, мышца совершенно логично выполняет шаг вперед. Чтобы нога у человека была выпрямлена и в тазобедренном суставе тоже, четырехглавой мышце бедра противостоят целых три ягодичные мышцы – большая, средняя и малая, которые разгибают бедро, удерживая тело в вертикальном положении. Особенно преуспевает в этом большая ягодичная мышца. Но у обезьян она расположена не сзади, а сбоку и занята иным делом – отводит бедро в сторону, а потому развита умеренно, почему и зад у обезьян тощий, совсем нечеловеческий, а выпрямить ноги они не могут. Кстати, совершенно обезьяний вариант типичен для новорожденных младенцев. Поэтому они лежат в позе “куренка табака” – растопырив в стороны согнутые ножки, а свести вместе их практически не могут. Только потом четырехглавая мышца “переползает” на человеческое место – в “пятую точку”; если же по какой-то причине замедленный рост сухожилий и фасций препятствует этому перемещению, могут возникнуть проблемы с умением ходить. Раз у человека пропала отводящая функция большой ягодичной мышцы, должна быть какая-то компенсация: отведением бедра в сторону у него усиленно занимаются верхняя и нижняя близнецовые мышцы, отчего место их крепления на седалищной кости чрезмерно увеличивается и становится седалищной остью. Но еще важнее человеку приводить бедро, то есть сводить ноги вместе, чтобы стоять прямо; этим, среди прочих, заняты квадратная мышца бедра и большая приводящая мышца, крепящиеся к седалищному бугру, который оказывается заметно крупнее, чем у обезьян.Тазовые кости сохраняются плохо, но радует, что у Ardipithecus ramidus 4,4 млн лет назад мы видим строго промежуточный “четвероного-двуногий” вариант – одновременно и широкий, и вытянутый в длину. У Australopithecus afarensis 3,5 млн лет назад таз был не только полностью “прямоходящий”, но по расширенности пропорций даже более человеческий, чем у современного человека. Это не значит, что мы сколько-нибудь вернулись к четвероногости. Ясно, что сей парадокс связан с так называемыми аллометрическими закономерностями. При изменении общих размеров тела разные части тела меняются неодинаково: при росте от малых размеров к средним длиннотные размеры увеличиваются быстрее, чем широтные (а вот если увеличивать человека до масштабов слона, то, наоборот, широтные начнут расти быстрее, иначе скелет не выдержит огромного веса). Поэтому от австралопитеков к нам и высота таза несколько подросла.

Рис. 2. Таз проконсула (а), шимпанзе (б), австралопитека (в) и человека (г).
Строение длинных костей ног отражает бипедию, наверное, лучше всего. У четвероногих приматов руки длиннее ног, колени разведены в стороны “колесом” и всегда полусогнуты, стопы разнесены друг от друга. Слабые мышцы не могут свести ноги вместе, да и форма нижних концов бедренных костей этому никак не способствует, туловище как бы “проседает”. Так как стопы при двуногом хождении оказываются далеко от центра тяжести, обезьяна компенсирует неустойчивость сильными боковыми колебаниями туловища, двигается очень неуклюже, враскачку, характерной походкой заправского бывалого морячка и того гляди норовит помочь себе руками. У прямоходящих ноги длинные, тазобедренные суставы сильно разведены друг от друга вследствие большой ширины таза, а колени сведены вместе, так что бедренные кости при взгляде спереди наклонены, а кости голени вертикальны, стопы сближены. Колени выпрямлены и при взгляде сбоку.
Более-менее бипедальное строение бедренных костей известно начиная с Orrorin tugenensis 5,88 млн лет назад.
Уголок занудства. У прямоходящих меняются места прикрепления и направления действия ягодичных и медиальных мышц, что очевидным образом отражается на рельефе как таза, так и костей ног. Новую форму приобретают верхний и нижний концы бедренной кости, а также межмыщелковое возвышение большой берцовой кости и поверхности голеностопного сустава. Шейка бедренной кости у человека длинная и ориентирована более вертикально; у обезьян она короткая и горизонтальная. Мыщелки бедра у человека повернуты относительно длинной оси кости, дабы колени могли сходиться, тогда как у обезьян они смотрят ровно вниз. Большая ягодичная мышца обезьян отводит ногу вбок, а не выпрямляет ее. Также у них слабы мышцы медиальной группы бедра, отчего обезьяна не может свести ноги вместе, когда стоит на двух ногах. У человека эта способность развита несравненно сильнее, поэтому и соответствующие мышцы могучи. Это ярко отражается во внешнем виде: у шимпанзе бедро заметно сужается к тазу, а у человека оно чем выше, тем толще. Мышцы медиальной группы присоединяются к шероховатой линии на задней стороне бедренной кости, отчего у обезьян эта поверхность почти ровная, а у человека линия обычно развита в виде мощного костного гребня – пилястра. Показательно, что при врожденных параличах пилястр у человека не формируется, поскольку мышцы не используются и не воздействуют на кости. Большая ягодичная мышца у человека расположена сзади и крепится на небольшом участке в верхней части бедренной кости – на ягодичной бугристости, а у шимпанзе и гориллы она охватывает бедро сбоку и крепится намного ниже и почти по всей длине диафиза бедренной кости.Строение стопы – отличный показатель типа передвижения, хотя в ископаемом виде эта часть тела сохраняется плохо. Четвероногие обезьяны имеют плоскую стопу с длинными изогнутыми подвижными пальцами, приспособленными для цепляния за ветви. Особенно выделяется большой палец, сильно оттопыренный в сторону, способный хватать даже лучше, чем большой палец руки. Это отражается в большей длине его мышц и характерной форме суставов.

Рис. 3. Стопа шимпанзе (а), австралопитека (б) и человека (в).
У прямоходящих продольный и поперечный своды (подъемы) стопы выражены хорошо, что позволяет перераспределять нагрузку тела более равномерно: половина на пятку, половина на пять головок плюсневых костей. Если для простоты расчета прикинуть, что человек весит 100 кг, то каждой ноге достается по 50 кг, а своды делят их так, что на пятку и переднюю часть приходится по 25 – условно по 5 кг на каждую плюсневую кость (в реальности, благодаря поперечному своду, на первую приходится львиная доля, немало и на пятую, а на три средних совсем чуть-чуть). Без сводов же – при плоскостопии – все 50 кг будут ударять в одну точку – переднюю часть пяточной кости, куда нагрузка в норме вообще не должна прилагаться. Нога будет болеть. У четвероногой же обезьяны и без сводов на каждую ногу будет ложиться по четверти веса, при общем весе 100 кг – по 25 кг, как у нас на каждую пятку, что вполне терпимо.
У двуногих пальцы стопы прямые, короткие, способные легко отгибаться наверх; большой палец не отведен в сторону и малоподвижен, а его суставы плоские; все плюсневые связаны мощными поперечными связками, чтобы не расползались в стороны.
Превосходство над Винни-Пухом, или Как все же украсть мед? Тва и эфе любят мед. Почему? Кто поймет? Только чтоб его достать, Надо ножки им сгибать. В журнале Национальной американской академии наук в 2013 г. вышла статья, посвященная способностям людей к древолазанию (Venkataraman et al., 2013). Исследователи наблюдали за тем, как забираются на деревья представители разных экзотических племен охотников-собирателей. Особое внимание было обращено на пигмеев Центральной Африки, которые в поисках меда (чего же еще?!) регулярно карабкаются на высоту до полусотни метров (в статье приводится удивительно точная цифра 51,8; интересно, как ее измеряли?). Правда, пчелы тоже нечасто селятся на такой верхотуре, так что в среднем пигмеям приходится лезть только до отметки 19,1 м, что, конечно, тоже немало. В необоримом стремлении к меду доблестные конкуренты Винни-Пуха регулярно повторяют его способ спуска, так что, например, у пигмеев ака на падения с деревьев приходится 6,6 % смертности. Заметно успешнее аэта с Лусона, у которых аналогичная цифра составляет 1,7 % (а может, на Филиппинах просто мед правильнее, пчелы ниже гнездятся или веток на деревьях больше?). Но всех превзошли угандийские пигмеи тва. Они не падают никогда! Видимо, любят мед больше всех. В качестве контроля были взяты соседи тва – бакинга, “нелазающие земледельцы”, как они определены в статье, а также филиппинские собиратели аэта и земледельцы манобо. Для того чтобы разобраться, как сии феноменальные способности тва отражаются на их ножках, был использован метод ультрасонографии. Измерялись длина мышечных волокон в мышцах ноги и углы сгибания суставов ноги. Длина волокон у тва и аэта оказалась заметно выше, чем у бакинга и манобо. Голеностопный сустав у собирателей сгибается намного лучше, чем у земледельцев, почти столь же сильно, как у шимпанзе. Обезьяны при взбирании на деревья сгибают ногу в среднем на чуть больший угол, чем это уже опасно для связок нетренированного (“индустриализированного”, по терминологии статьи) человека. Пигмеи при древолазании тоже попадают в “зону риска”, но редко превосходят опасные для горожанина величины сгибания лодыжки. Авторы исследования померили также целых шесть больших берцовых костей пигмеев из леса Итури в поиске неких костных особенностей, позволяющих им столь сильно сгибать ногу при древолазании и столь успешно доставать мед. Измерялась, правда, почему-то “передняя дистальная ширина” этой кости (классики остеометрии плакали бы на этом месте). График получился на удивление непоказательный: собиратели занимают на нем крайнее положение вместе с “мальчиком из Нариокотоме” и южноафриканскими грацильными австралопитеками, в средней позиции находятся земледельцы с восточноафриканскими австралопитеками, а противоположный край оккупирован шимпанзе и гориллами. Выводом из всего этого стало утверждение, что способности к древолазанию не обязательно отражаются на костях, а могут иметь основу в мышечных особенностях. Отсюда уже следует заключение, что мы можем недооценивать способности древних гоминид (в частности, австралопитеков) к древолазанию, рассматривая лишь их кости. Красивые выводы! Но… Во-первых, кто бы сомневался! Ясно, что на костях отражается далеко не все. Во-вторых, выводы звучат так, как будто пигмеи вообще живут на деревьях, а шимпанзе постоянно ходят прямо. А ведь на графике средний угол сгибания ноги у пигмеев все же недотягивает до такового у шимпанзе. Невозможно промолчать и о методе определения угла: измерялись фотографии, сделанные со случайного ракурса, от точек, определенных фактически произвольно. Например, на приведенной фотографии точка на колене взята, несмотря на надетые штаны! А ведь для измерения угла крайне важна ориентация объекта и точка зрения. При минимальном смещении искажение будет в несколько градусов – сопоставимое с обнаруженными различиями. Да и количество измерений было крайне малым. Далее: в исследовании было задействовано всего 6 костей современных пигмеев, причем не тех, кого наблюдали вживе. Вовсе не факт, что те пигмеи, чьи кости были исследованы, лазали по деревьям (может, это были женщины, например). Вообще-то, давно известен, скажем, замечательный “комплекс положения на корточках”. Когда человек много сидит на корточках, на всех костях таза и ноги появляются характерные изменения суставных поверхностей. В принципе, при сидении на корточках тоже происходит чрезмерное сгибание суставов, как и при древолазании. Думается, что у всех пигмеев поголовно этот комплекс развит в полной мере, ибо стульев у них не замечено. Запросто может быть, что развитие “комплекса положения на корточках” заметно способствует усиленному сгибанию стопы при лазании по деревьям. Взятые для контроля “индустриализированные” люди, ясно, такого комплекса не имеют, так что их способности к сгибанию ног вовсе не показательны. Думается, если бы были исследованы йоги, циркачи или гимнасты, у них способности были бы не хуже пигмейских. А уж если бы под наблюдение попали студенты биофака МГУ осенью, в сезон созревания яблок вокруг биофака, думается, выводы были бы совсем иными. А если бы на костях рассматривалась не “передняя дистальная ширина”, а изучались следы прикрепления мышц и особенности суставных поверхностей, то, возможно, были бы найдены соответственные изменения, следы которых можно было бы прослеживать и на останках древних гоминид. Что, собственно, доказано? Что у пигмеев повышена подвижность суставов? Это было известно уже в XIX веке, а некоторые предполагают, что и древним египтянам. Оно и не странно, учитывая малые размеры тела и образ жизни пигмеев. Захочется медку в тропическом лесу – и не так ноги согнешь, и не туда залезешь. Функциональные изменения организма никто не отменял, а они не отменяют генеральных адаптаций, локомоторных в том числе. Кстати, гибкость мышц и подвижность суставов прямо зависят от возраста, а этот фактор совершенно не учитывался в исследовании. Пигмеи в среднем живут очень недолго, так что с большой вероятностью сравнивались молодые пигмеи с более пожилыми представителями контрольных групп. В любом случае этот момент остался покрытым мраком. Так что, несмотря на пафосные выводы, статья не может служить образцом научного исследования. А способности наших предков к древолазанию от всего этого вовсе не меняются. Кстати: для проверки положений статьи я, в жизни не залезавший на деревья выше трех метров и при наличии аллергии к меду, без малейшей подготовки согнул ногу на фантастический угол, побив рекорд всех пигмеев и шимпанзе, а также, возможно, орангутанов и гиббонов! Это если верить измерению угла на фотографии…Наш большой палец стопы малоподвижен, но его мускулатура в целом осталась прежней, обезьяньей, независимой от мускулатуры остальных четырех пальцев. Поэтому при необходимости человек может разработать хватательную способность до невероятной ловкости. Известен удивительный прецедент, когда безрукая от рождения женщина Пелагея Семенова подарила И. В. Сталину обшитый бисером чернильный прибор – ручку, пресс-папье, подставку под чернильницу, причем низала бисер она ногами.
В некоторых культурах отдельные виды деятельности предполагали придерживание чего-либо большим пальцем ноги, например древка копья при его шлифовании. От этого палец разрабатывался и торчал в сторону очень далеко. Когда в XIX веке высокопросвещенные европейцы в белых пробковых шлемах приплывали на экзотический остров, скажем, на Филиппинах и обнаруживали там людей со стопой “как у обезьяны”, они глубокомысленно рассуждали о примитивных низших расах, застрявших на пути очеловечивания. Однако ныне те же аборигены забыли про копья, ходят в китайских кроссовках и имеют вполне стандартные человеческие стопы. Функциональная гипертрофия – великая сила!
У Ardipithecus ramidus 4,4 млн лет назад уже присутствовали своды стопы, но пальцы были длинные и изогнутые (это типично вообще для всех австралопитеков), а большой палец мог отводиться далеко в сторону. В стопе Australopithecus anamensis около 4 млн лет назад, судя по строению большой берцовой кости, большой палец был малоподвижен. У Australopithecus afarensis 3–3,9 млн лет назад своды стопы хорошо выражены, большой палец мог слегка противопоставляться другим, но намного слабее, чем у современных обезьян, отпечаток ноги был почти как у современного человека. В стопе Australopithecus africanus и Paranthropus robustus большой палец был несколько сильнее отведен от других, а пальцы – очень подвижные, что позволяет не считать их нашими предками. У Homo habilis стопа уплощенная, без выраженного свода (впрочем, она известна лишь по одной комплектной находке), но пальцы прямые, короткие, а большой палец полностью приведен к остальным. Видимо, совсем человеческая стопа сложилась лишь у рослых архантропов, хотя тут у нас имеется досадный пробел в материалах.
Стопа невиданного гоминида. Сложности изучения и интерпретации морфологии стопы хорошо видны на примере исследования стопы из эфиопской местности Ворансо-Милле. Этот район исследуется сравнительно недавно, но уже успел порадовать антропологов ценнейшими находками. Чего стоит один только скелет KSD – VP-1/1 – самый рослый среди афарских австралопитеков! Здесь же найдены челюсти, совмещающие черты анамских и афарских австралопитеков. Среди 54 тысяч окаменелостей нашелся повод и для новой сенсации – фрагмент уникальной стопы BRT-VP-2/73 из локального местонахождения Бартеле-2 (Haile-Selassie et al., 2012). Сохранились плюсневые кости с первой по четвертую и четыре фаланги правой стопы. К сожалению, нет никаких других останков скелета, которые могли бы быть отнесены к этому индивиду. Находка имеет датировку 3,4 млн лет – самый средний возраст для афарских австралопитеков. Однако морфология костей заметно отличается от известного для этого вида. Причем отличается в примитивную сторону и во многом напоминает состояние ардипитека, жившего 4,4 млн лет назад – на целый миллион лет раньше! Новоявленная стопа обладает странным набором свойств: поперечный свод был выражен, а продольного не было, плюсневые и фаланги не слишком длинны и изогнуты, но большой палец короткий, сильно отведен и имел хорошую хватательную способность, а при ходьбе не загибался вверх, тогда как другие пальцы – загибались. Одна черта оказалась, по-видимому, очень примитивной: II плюсневая короче, чем IV; такое соотношение встречается у мартышковых и проконсула KNM-RU 2036, тогда как у современных понгид, ардипитека, афарских австралопитеков и человека соотношение всегда обратное. В целом авторы первоисследования отмечают, что стопа BRT-VP-2/73 была столь же приспособлена к древолазанию, как и у Ardipithecus ramidus, хотя отличий от этого вида, как и от Australopithecus afarensis, тоже хватает. Главным выводом стало то, что в Эфиопии 3,4 млн лет назад существовали как минимум два вида: один – хорошо изученный прямоходящий Australopithecus afarensis, а второй – почти неизвестный полудреволазящий-полупрямоходящий, возможно, мало изменившийся потомок ардипитека. К сожалению, классификация гоминид строится в основном на признаках черепов и зубов, так что дать название новому виду авторы не решились. Но, как всегда, возникают вопросы. К сожалению, авторы статьи не сравнили новую находку с Stw 573 – “Маленькой Стопой” или “Синдереллой” (то есть “Золушкой”) из грота Сильберберг Стеркфонтейна в Южной Африке. А ведь эта стопа имеет массу сходств с BRT-VP-2/73 при датировке от 2 до 4,2 млн лет назад со средней в 3,5 млн лет назад – практически синхронной с датировкой Бартеле (последняя опубликованная цифра для грота Сильберберг как раз и есть 3,67 млн лет назад). При первоначальном описании Stw 573 особое внимание уделялось значительному отведению большого пальца и его хватательной способности (Clarke et Tobias, 1995), хотя в последующем этот вывод был поставлен под основательное сомнение (Lovejoy et al., 2009). Показательно, что разнообразные индексы и показатели отдельных костей BRT-VP-2/73 весьма близки к таковым южноафриканских находок из Стеркфонтейна и Сварткранса, хотя таких сопоставлений сделано очень мало. Может, Australopithecus africanus, более архаичные, нежели Australopithecus afarensis, мигрировали из Южной Африки в Восточную? Также несколько удивляет, что в многомерные анализы не попали никакие ископаемые материалы, кроме самой стопы BRT-VP-2/73. Вследствие этого вывод о необычайном сходстве новой находки с гориллами может оказаться преувеличенным. Не так уж сильно BRT-VP-2/73 отстоит от современных людей, чтобы не оказаться похожим на австралопитеков. Представлен лишь один график метрического сопоставления, в котором есть данные об афарском австралопитеке, и то только в дополнительном приложении – там расхождение BRT-VP-2/73 и AL 333–160 действительно велико. В статье упор сделан на описательные признаки. А ведь потенциально материалы для сравнения имеются. С другой стороны, стопа афарских австралопитеков доселе была известна лишь по изолированным и не слишком многочисленным костям, самый полный комплект – AL 333–115 – включает меньше фрагментов, чем BRT-VP-2/73. Нет ли здесь некоторого раздувания сенсации? Может, афарские австралопитеки и не были в строении стопы так уж продвинуты, как до сих пор считалось? Как обычно, в конце приходится ссылаться на необходимость новых находок, которые якобы прольют свет на все темные места. Пока тайн лишь прибавилось, в соответствии с классическими аллегориями про фонарик в темной комнате и увеличение границ непознанного при расширении области познанного. Горизонты познания безграничны… Хватит ли костей в эфиопской земле?Строение рук связано с прямохождением косвенно. У высших человекообразных руки приспособлены к хождению по земле с опорой на фаланги согнутых пальцев, что выражается в расширенности и особой мощности средних фаланг и особой скошенности суставной поверхности лучевой кости. Также у разных приматов имеются многочисленные морфологические адаптации к цеплянию за ветви, включая варианты с редукцией большого или других пальцев или с превращением пальцев в единый “крючок”, как, например, у паукообразных обезьян, колобусов или гиббонов. У полностью прямоходящих гоминид руки не приспособлены к хождению по земле или лазанию по деревьям, руки короткие, фаланги пальцев прямые.
Черты приспособления к хождению по земле или лазанию по деревьям в строении рук есть у австралопитеков Orrorin tugenensis, Ardipithecus kadabba, Ardipithecus ramidus, Australopithecus anamensis, Australopithecus afarensis, Australopithecus africanus, Paranthropus robustus и даже Homo habilis. Видимо, только Homo ergaster окончательно избавились от древесного прошлого в своих руках.
Относительно происхождения прямохождения выдвинуто огромное множество гипотез. Про это написана не одна книга и безумное число статей. Двумя важнейшими и ныне чаще цитируемыми являются миоценовое похолодание и социальная гипотеза, но история науки помнит и иные.
Трудовая концепция Ф. Энгельса с позднейшими вариантами, широко известная и вошедшая во все советские учебники, связывает возникновение прямохождения со специализацией руки обезьяны для трудовой деятельности – переноса предметов, детенышей, манипулирования пищей и изготовления орудий. В вульгарном изложении прямохождение возникло для того, чтобы освободить руки для трудовой деятельности. После труд привел к возникновению языка и общества, “сделал из обезьяны человека”. Однако трудовая концепция сталкивается с непреодолимой преградой в виде фактов: по современным данным, прямохождение начало возникать не менее 6 млн лет назад, в полностью завершенном виде сложилось уже 4 млн лет назад, а древнейшие орудия из Гоны в Эфиопии имеют датировку в самом оптимистичном варианте 2,7 млн лет, а из Ломекви – 3,3 млн лет. Скорее уж наоборот, освобождение рук из-за прямохождения способствовало развитию трудовой деятельности, зачатки коей можно наблюдать даже у вполне четвероногих шимпанзе и орангутанов.
Социальные концепции предполагают возникновение прямохождения еще в тропическом дождевом лесу и связывают его не с климатом, а с изменениями поведения приматов. Наибольший вклад тут внес, несомненно, О. Лавджой (например: Lovejoy, 2009). Согласно его разработкам, прямохождение появилось в связи с особой стратегией размножения, из-за удлинившегося детства и ослабления межсамцовой агрессии. Гоминиды в течение очень длительного времени выращивают одного, максимум двух детенышей. Такие животные не могут себе позволить большую детскую смертность. Самка должна постоянно заботиться о своем ненаглядном чаде, она оказывается скована и ограничена в возможностях питания и защиты от хищников. Носить крупного детеныша трудно, надо придерживать его руками, что дает почву для возникновения прямохождения. Отцы, в свою очередь, должны защищать вынужденно малоподвижных самок, бросаясь в хищников разными предметами, а также обеспечивать матерей пищей, а приносить ее, конечно, удобнее опять же в руках. При этом, когда говорится “должны”, не имеется в виду, что кто-то объяснял им права и обязанности гражданина или что они сами догадались и прониклись важностью своего предназначения, просто группы, где самцы не защищали и не кормили самок, банально вымирали. Косвенным последствием такой заботы много позже стало использование орудий труда. Для того чтобы такая система работала, надо, чтобы самец был как можно сильнее привязан к самке, то есть возникает крен в сторону моногамии (хотя и у современных людей, даже при строжайших религиозных ограничениях, моногамия никогда не бывает поголовной). Это достигается со стороны самок – скрытой овуляцией, так что самец не может угадать, на какой стадии созревания находится яйцеклетка (да и самка порой не может); а со стороны самцов – ослаблением конкуренции, что выражается в редукции размеров клыков и ослаблении полового диморфизма. И ведь мы действительно видим уменьшение клыков с самого начала становления прямохождения!
Согласно О. Лавджою, прямохождение возникло еще в тропическом лесу, а в саванны переселились уже двуногие гоминиды. Карликовые шимпанзе, живущие в джунглях Конго, в зачаточной форме демонстрируют те свойства, что предполагаются для предков человека.
У социальной концепции есть два явных минуса. Во-первых, ее крайне трудно подтвердить объективными свидетельствами: фактически единственным обоснованием является оценка полового диморфизма, сделанная в основном по размерам клыков. Во-вторых, тогда как прямохождение связывается с изменениями поведения, остаются неясны причины изменения самого поведения.
Миоценовое похолодание уже сто лет является одним из основных объяснений развития бипедии. Суть концепции в том, что в середине и конце миоцена в результате глобального похолодания климата произошло значительное – в несколько раз – сокращение площадей тропических лесов и увеличение площади саванн. В новых условиях у многочисленных живших тогда в тропических лесах человекообразных обезьян наметились три варианта дальнейшей судьбы. Первый вариант – самый печальный, но которому последовало большинство, – вымирание: в это время исчезло подавляющее большинство гоминоидов. Второй – сохранение в более-менее неизменном виде в оставшихся лесах: потомками этих везунчиков стали современные гиббоны, орангутаны, гориллы и шимпанзе. Впрочем, часть даже тех гоминоидов, что пережили миоценовое похолодание, вымерла уже в более поздние времена, примером чего могут служить гигантопитеки. Третий вариант – переход части гоминоидов к наземному образу жизни в расширяющихся саваннах.
Вообще-то, в саванну можно выйти и на четвереньках, что успешно сделали павианы и мартышки-гусары. Но крупные человекообразные пошли своим путем. Жизнь в саванне диктует свои условия. Для начала, тут есть довольно высокая трава, в которой сложно ориентироваться и искать пищу. Кроме того, в траве могут прятаться хищники, а смотреть поверх нее удобно, вставая на две ноги. Этим часто занимаются самые разные животные – те же мартышки-гусары, суслики, газели-геренуки и другие вкусные и пугливые создания. Если же хищник уже близко, то его можно попытаться устрашить: прямоходящее существо имеет психологическое преимущество перед четвероногим, поскольку смотрит свысока и, таким образом, кажется крупнее и сильнее, хотя может и не иметь реального подтверждения своей мощи. Поднимание уровня взгляда для усиления впечатления на противника является универсальным способом среди всех позвоночных животных, поскольку в первом приближении работает принцип “кто выше, тот больше, а кто больше, тот сильнее”. Связь чувства превосходства с ростом ощущает на себе каждый; впрочем, с разных сторон, в зависимости от того, какой рост имеет он сам. Для приматов в саванне этот аспект мог иметь немаловажное значение.
Кроме того, экспериментально и на математических моделях доказано, что двуногое передвижение на большие расстояния со средней скоростью энергетически более выгодно, чем четвероногое: двигать надо в два раза меньше ног. Правда, это преимущество становится действительно преимуществом только в своем законченном варианте, а переходные от четвероногости к двуногости стадии оказываются энергетически проигрышными.
Важнейший момент – терморегуляция. Лесные приматы были животными дневными, тот же распорядок дня они перенесли и в саванну. Это по-своему выгодно, ведь все хищники активны в сумерках или ночью, когда можно залезть на дерево и спокойно почивать там, пока тебя ищут в траве. Тем более, двуногие приматы очень медленные, они не умеют резво убегать, а днем убегать и не надо. Кроме того, днем гораздо меньше конкурентов, можно не спеша кормиться, не отпихивая локтями посягающих на те же травки-зернышки. Но ведь отсутствие полуденной бурной жизни в саванне тоже сложилось не просто так. Сиеста нужна, чтобы пережить самое жаркое время и не спечься. Днем же надо как-то решать проблему перегрева. В саванне (а дело происходит в Африке близко к экватору) солнышко печет прямо в макушку, так что двуногий примат нагревается гораздо меньше четвероногого, под солнечные лучи попадают только его голова и плечи, а не вся спина. Ту же сложность можно так же эффективно преодолеть с помощью потения. Обезьяны, конечно, потеют и в лесу на деревьях, но без особого фанатизма, а в саванне это становится важным процессом. Но из-за пота слипается шерсть, а суточные перепады температуры в саванне бывают весьма ощутимыми; мокрая шерсть по ночам может привести к переохлаждению и простуде. Поэтому шерсть катастрофически укорачивается; сколь-нибудь существенное оволошение остается только на макушке, где припекает солнце, да на подмышках и в паху – для концентрации запаха. Редукция же шерсти создает новую сложность. В тропическом лесу длинная шерсть выполняет у обезьян две функции: во-первых, защищает от почти ежедневных дождей, а во-вторых, за нее цепляются детеныши. В саванне дожди идут только во влажный сезон, так что первое назначение шерсти теряет смысл. Со вторым сложнее. Хватательный рефлекс прекрасно сохранился и у современных детишек, это прекрасно известно всем родителям, у которых ненаглядные чада регулярно выщипывают клочки волос своими цепкими ручонками. Однако на волосах головы ребенка далеко не унесешь. Логично, что проще всего нянчить беспомощных малюток на руках. К этому добавляются те же факторы, что уже рассмотрены выше в социальной концепции: матери становятся медлительными и уязвимыми, тем более что саванна не лес, спасительные деревья тут растут далеко не на каждом шагу, добежать до них с ребенком на руках непросто. Опять же самцы должны кормить и защищать самок, опять же двуногим существам делать это гораздо проще.
Минусом гипотезы возникновения прямохождения в результате миоценового похолодания является факт, что некоторые из древнейших известных прямоходящих приматов жили в тропических лесах, а из современных приматов живущие в дождевых тропических лесах бонобо очень часто прибегают к прямохождению. Впрочем, палеоэкологические реконструкции – что дышло, какие данные учтешь, то и вышло.
Кстати, о пейзажах… Одно из новейших исследований на эту тему, видимо, дает самую достоверную и масштабную картину (Cerling et al., 2011b). Изучение 1300 образцов ископаемой почвы из всех основных восточноафриканских местонахождений за последние 6 млн лет на предмет соотношения изотопов углерода показало, что Ardipithecus ramidus жили в весьма открытых местообитаниях, где кроны деревьев закрывали менее 60 %, скорее 20–40 % земли, а то и меньше. Иначе говоря, передвигаться только по ветвям в таком “парке” уже никак не получалось. Правда, ардипитеки держались, видимо, самых лесистых мест, но “самые лесистые” все же были далеко не такими густыми, как им, может быть, хотелось, а островки деревьев окружала и вовсе открытая саванна. Крайне интересно, что после 4 млн лет леса снова стали наступать, так что ключевой вид так называемых грацильных австралопитеков – Australopithecus afarensis – жил в более густых зарослях с покрытием кронами 40–60 %. Около 3 млн лет назад начинается новое сокращение лесов, так что первым представителям нашего рода Homo надо было опять осваиваться в саваннах.Однако не всех исследователей удовлетворяют доводы “саванной” концепции.
“Гипотеза водной обезьяны” рисует совсем иную картину. Очень подробно ее разрабатывал, например, Я. Линдблад (Линдблад, 1991). Согласно ей, к прямохождению предков человека подтолкнули сложности жизни рядом с водой. Нельзя не признать, что в умеренном варианте “гипотеза водной обезьяны” имеет много сильных моментов. Действительно, находки восточноафриканских австралопитеков почти всегда обнаруживаются в водных отложениях, вероятно, они обитали недалеко от рек и озер и добывали в воде часть своего пропитания (впрочем, это может значить только то, что тут они просто хорошо сохранялись; кости ардипитеков и южноафриканских форм нашли свой покой в сухих местах). Древние гоминиды могли вставать на задние ноги, чтобы переправляться через водные преграды; примеры подобного поведения мы видим среди обезьян-носачей и горилл. В строении человека есть ряд признаков, свидетельствующих о значительной адаптации человека к плаванию и нырянию, в отличие от орангутанов, горилл и шимпанзе: положение волос на теле по направлению от макушки к ногам – по течению воды при нырянии, ориентация ноздрей вниз – для сохранения воздуха в носовой полости, способность задерживать дыхание, редуцированный волосяной покров на теле, неэкономное расходование воды организмом, что крайне нетипично для животных саванны, небольшие перепонки между пальцами. В конце концов, человек просто не боится воды, а многие жить не могут без купания! Это сильные стороны “водной гипотезы”. Проблема в том, что в крайнем варианте ее сторонников заносит чересчур далеко, вплоть до утверждений о происхождении человека от дельфинов или миллионах лет питания икрой, яйцами птиц, моллюсками и рыбой. “Водная гипотеза” – классический пример идеи, “в которой что-то есть”; она многократно подвергалась критике с разных сторон и в целом хуже согласуется с фактами, чем другие концепции, но некоторые ее положения нельзя игнорировать (например: Langdon, 1997).
Подводя итог, очевидно, что прямохождение возникло не по одной какой-то причине, а под воздействием целого комплекса условий и предпосылок.
Интересные параллели и аналогии человеческому прямохождению можно наблюдать среди многих современных обезьян. Лемуры-сифаки и гиббоны, будучи крайними древолазами, по земле передвигаются на двух ногах, ибо их руки уже не годятся для опоры о землю. Сифаки при этом скачут боком приставными шагами или подобно кенгуру. Мартышки-гусары и павианы, живущие в саванне, часто приподнимаются на задние ноги, чтобы сориентироваться или высмотреть опасность. Калимантанские обезьяны-носачи, обитающие в прибрежных мангровых зарослях, переходят затопленные участки на задних ногах, держа передние над водой, хотя группы, живущие в глубине острова, вообще никогда не слезают с деревьев. Похоже ведут себя гориллы в заболоченных джунглях долины Конго в Западной Африке: на сочных лугах, где нет деревьев, разрастаются травы, на них пасутся слоны и карликовые лесные буйволы. Гориллы же, как бы они ни были велики, встав на четвереньки, рискуют погрузиться в эти травы до ушей, а потому они часами ходят на двух ногах.
Интересно, что двуногость неоднократно возникала не только в самых разных группах животных – от динозавров и птиц до кенгуру и тушканчиков, – но и среди приматов. Так, из итальянских угольных шахт в Тоскане известны скелеты своеобразных обезьян Oreopithecus bambolii. Они удивительно хорошо были приспособлены для ходьбы на задних ногах, удобной в уникальном ландшафте – заболоченных кустарниковых зарослях, по которым ореопитеки передвигались, придерживаясь руками за нависавшие над топью ветви.
Итак, прямохождение возникло около 7 млн лет назад, но еще долго отличалось от современного варианта. Походка австралопитеков, вероятно, была несколько семенящей, с маленькой длиной шага. Некоторые австралопитеки и даже Homo habilis использовали и другие виды передвижения – лазание по деревьям, а некоторые, возможно, и хождение с опорой на фаланги пальцев рук. Полностью современным прямохождение стало только около 1,5 млн лет назад.
Рука, приспособленная к использованию и изготовлению орудий.
Рука человека заметно отличается от руки обезьяны. Морфологические признаки рабочей руки не являются вполне надежными, в немалой степени оттого, что определить их по скелету не так уж легко: мышцы на кисти крепятся часто на фасции и хрящи, а на костях могут не оставлять никаких следов. Кроме того, одно из главных препятствий – плохая сохранность и фрагментарность находок. Кости кисти невелики, даже если они сохранятся в отложениях, их еще надо суметь найти. Но нет таких крепостей, какие не брали бы палеоантропологи! Поэтому можно выделить следующий трудовой комплекс.
Сильное запястье определяется шириной относительно пясти. У австралопитеков, начиная с Ardipithecus ramidus и Australopithecus anamensis, строение запястья промежуточное между обезьянами и человеком. Почти современный вариант наблюдается у Homo habilis 1,8 млн лет назад. У человека по сравнению с другими обезьянами резко увеличена головчатая кость, расположенная более-менее в центре запястья, к которой крепится третья пястная, которая, в свою очередь, является основанием среднего пальца.
Большой палец человеческой кисти удлинен и противопоставлен остальным. В немалой степени благодаря этому человек способен выполнять точечный захват, то есть сводить все пальцы в одну точку или прикоснуться большим пальцем к любому другому (строго говоря, к точечному захвату способны и макаки, но они пользуются им редко). Это обеспечивается седловидной формой сустава между первой пястной костью и костью-трапецией. Первая пястная кость работает при этом фактически как еще одна фаланга, из-за седловидности сустава она может двигаться только в двух направлениях, не проворачивается, а как бы застревает в нужном человеку положении, позволяет удерживать тяжелые предметы без лишних усилий. У гориллы, скажем, этот же сустав потенциально может вертеться, но его фиксируют мощнейшие мышцы, что по-своему удобно, но резко снижает точность движений.

Рис. 4. Кисть шимпанзе (а), австралопитека (б) и человека (в).
Противопоставлять большой палец могли уже Ardipithecus ramidus, Australopithecus afarensis и Australopithecus africanus, хотя его длина у них была пока еще заметно меньшей, чем у нас. Противопоставление было полностью развито у Paranthropus robustus и Homo habilis 1,8 миллиона лет назад. Любопытно, что неандертальцы Европы в гораздо более поздние времена имели не седловидную форму первого запястно-пястного сустава, а плоскую или шаровидную. Раньше это расценивалось как их примитивный признак, но теперь ясно, что дело в специализации.
Кстати, об игуанодонах… Юрские и меловые птицетазовые динозавры-орнитоподы игуанодонтиды Iguanodontidae имели своеобразное строение кисти. Большой палец у них превратился в здоровенный шип, которым можно было пырнуть хищника, три следующих несли копыта для опоры, а вот мизинец был тонким, длинным и, как предполагалось раньше, противопоставлялся остальным. Долгое время палеонтологи считали, что игуанодонтиды могли ухватывать им ветви растений и притягивать их ко рту (сейчас от этой идеи отказались). Эх, если бы не примитивный мозг размером с батарейку – какие перспективы открывались! Но прогресс не определяется одним признаком, без комплекса не станешь ни трудолюбивым, ни разумным, ни вечным, разве что добрым…Широкие, уплощенные и укороченные конечные фаланги пальцев помогают удерживать предметы. У обезьян фаланги обычно длинные и изогнутые, даже при полном распрямлении пальцы оказываются несколько скрючены, чтобы легче было цепляться за ветви.
У древнейших прямоходящих гоминид – Orrorin, Ardipithecus и Australopithecus – форма фаланг была практически строго промежуточной между обезьяньим и человеческим вариантами. Видимо, эти виды могли использовать предметы как орудия, но не изготовлять каменные артефакты. Это логично: с одной стороны, простейшие деревянные орудия могут делать и шимпанзе безо всякой специализации кисти, а двуногие существа со свободными руками должны были развивать подобные способности, с другой – никаких археологических свидетельств орудийной деятельности для времени раньше 3,3 млн лет назад мы не знаем. Очень широкими – подчас даже более расширенными, чем у современного человека, – фаланги были у Paranthropus robustus, Homo habilis и всех более поздних гоминид. Не факт, что этот признак всегда связан с орудийной деятельностью. Например, южноафриканские парантропы по расширенности фаланг даже обгоняли “людей умелых”, хотя останки парантропов обычно залегают в слоях, не содержащих орудий, а нашим предком был все же Homo habilis.
Трудовая кисть в целом сформировалась около 1,5 млн лет назад. Весьма примечательно, что древнейшие известные каменные орудия обнаруживаются более чем за 1,5 млн лет до появления трудовой кисти. Иначе говоря, из трех с лишним млн лет трудовой деятельности более половины срока кисть еще не была приспособлена к труду. Очевидно, это время понадобилось для работы отбора. Надо думать, на первых порах отбор по строению кисти был очень слабым, поскольку вряд ли жизнь тогда сильно зависела от использования орудий, австралопитеки вполне могли обойтись и без них. Но те, кто использовал булыжники для раскалывания орехов или соскабливания мяса с костей, оказывались в среднем чуть более успешными. Не исключено, что тут поработали и факторы престижа, поскольку дележ мясом у современных шимпанзе – статусное занятие. Кто умел быстрее отделить мясо от туши, мог и сам наесться, и других оделить, получив через это почет, уважение и более высокий ранг, а стало быть – шанс оставить больше потомков. Впрочем, тут нам приходится больше сочинять, строго доказать мы этого не можем, а предполагаем, исходя из наблюдений за шимпанзе.
Орудия используют разные приматы, но специфика человека в том, что только он не может полноценно существовать без орудий. Это наша специализация, в омут которой первыми угодили хабилисы и эргастеры, и на этом месте стоит задуматься, ведь избыточная специализация ведет в тупик…
Пястная кость из Каитио: умелая ручка первого пролетария. Кисть “людей умелых” была почти совсем, но еще не совсем трудовой, поскольку имела и некоторые обезьяньи черты. К тому же от кисти хабилиса OH 7 сохранились далеко не все элементы. До самого недавнего времени в летописи гоминид оставался досадный пробел – для полного счастья антропологам остро не хватало кистей преархантропов и архантропов. Потому важной находкой явилась третья пястная кость KNM-WT 51260, найденная в Западной Туркане, в местонахождении Каитио (Ward et al., 2014). Датировка ее – 1,42 млн лет назад, то есть время перехода от Homo ergaster к Homo erectus. Кость сохранилась отлично, даже идеально. Казалось бы – невелика кость, но сколько ценной информации она несет! Самый важный признак – развитие шиловидного отростка. Этот треугольный выступ на основании кости направлен в сторону запястья. Он соединяется с похожим отростком на основании второй пястной кости, а вместе они входят в зазор между трапециевидной и головчатой костями запястья. Смысл такой конструкции – укрепление запястно-пястного сустава. Третья пястная кость при этом становится центральной опорой всей кисти, а весь средний луч (пястная с пальцем) оказывается достаточно жестко заклинен и минимально подвижен в стороны. Такой кистью, может, не так удобно хвататься за ветки, где нужны более свободные боковые движения при раскачивании, но очень хорошо удерживать что-то тяжелое более-менее неподвижно. Неспроста у человекообразных обезьян, афарских австралопитеков и седиб шиловидного отростка третьей пястной кости нет, а у неандертальцев и современных людей он велик. К сожалению, на кисти Homo habilis OH 7 третья пястная не сохранилась, зато есть вторая, а на ней отросток, долженствующий соединяться с шиловидным третьей, развит очень слабо, в противоположность человеческому варианту. Можно предположить, что хабилис OH 7 имел почти обезьяний вариант строения основания III пястной кости. Таким образом, “человек работающий” имел “трудовую кисть” – закономерно и логично. Более того, он приобрел ее впервые, даже “человек умелый” был в сравнении с трудягой жалким неумехой (не в пору ли переименовать его в “человека неумелого”?!). Неспроста, видимо, Homo ergaster смог усовершенствовать галечные орудия до ашельских. Дело не только в развитии мозга, как обычно считается. Своими мозолистыми ручищами этот человечище не мог уже так ловко хвататься за сучья, как его недавние предки, но ему это было и не надо. Взамен он приобрел способность крепко и уверенно держать в руке булыжник – оружие трудового человека. Минула пора, когда надо было спасаться от хищников в кронах, пришло время уже самим хищникам поджать хвосты и бежать от вооруженного человека. Торжество прогресса в действии! Заря пролетариата! Но: язвительная натура антрополога не позволяет за здорово живешь согласиться даже со столь простыми, наглядными и логичными выводами. Чутье подсказывает, что наверняка не все так просто. И что же: недолго порыскав по закромам, мы обнаруживаем, что гораздо большего размера шиловидный отросток III пястной имеется у гориллы! Конечно, очевидно, что у этой гигантской обезьяны кисть укреплена для поддержания огромного веса при хождении с опорой на фаланги пальцев, а к трудовому процессу никоим образом не причастна, тогда как эргастер не бегал на четвереньках. Однако гориллий феномен лишний раз показывает, что схожие структуры могут возникать независимо и по разным поводам и иногда не стоит спешить с глубокомысленными заключениями и широкими обобщениями на основании одной лишь черты строения. А антропологам и палеонтологам, работающим в Африке, пожелаем найти не только пястную кость, но и целую руку, крепко сжимающую для пущей убедительности ашельское рубило.Мозг.
Мозг современного человека сильно отличается от мозга человекообразных обезьян по размерам, форме, строению и функциям, однако, сколь бы ни был высокоразвит он у нас, непреодолимой преграды с другими приматами все же нет, и среди ископаемых форм можно найти множество переходных вариантов.
Однако изучать мозг трудно. Современный устроен чрезвычайно сложно – сложнее, чем что-либо еще во всей Вселенной. А ископаемый нам недоступен. Поэтому антропологи вынуждены исследовать эндокраны – слепки внутренней полости мозговой коробки. Специальные исследования показали, что общая форма при этом сохраняется, хотя размеры эндокрана несколько больше размеров самого мозга, а борозды и извилины практически не прослеживаются. Однако отпечатки венозных синусов и швов черепа делают возможным разграничить доли, а во взаимном расположении артерий и извилин мозга есть несколько закономерностей, которые позволяют прикинуть ход по крайней мере основных борозд. По данным палеогенетики, в ближайшем будущем будет возможно оценить и внутреннее строение мозга как минимум неандертальцев и денисовцев, но пока в этом направлении делаются лишь робкие первые шаги.
Типичные признаки мозга человека следующие.
Большие общие размеры мозга надежно отличают современного человека от приматов. Существует даже понятие “мозгового рубикона”, он обычно определяется около 700–800 граммов или кубических сантиметров (плотность мозга едва превышает единицу – 1,038–1,041 г/см³, так что измерение объема и массы дает почти одинаковые цифры). “Мозговой рубикон” символизирует сразу три важные границы: во-первых, он разделяет современных людей и обезьян; во-вторых, нормальных людей и микроцефалов – индивидов с патологически уменьшенным мозгом; в-третьих, ископаемых предков человека, еще не умевших изготавливать каменные орудия труда – австралопитеков, – и тех, кто уже был на это способен – “людей умелых”. Правда, все три границы неидеальны, но тенденции очень сильны.
Так, наименьший из достоверных размеров мозга психически нормального человека (46-летнего мужчины-европейца) – 680 г, а наибольший объем мозга гориллы – 752 см³. Понятно, что здоровенный самец гориллы не был интеллектуальнее того европейца, жившего всю жизнь спокойно обычной жизнью и не знавшего о своем рекордсменском статусе. Строение все же имеет значение. Также нет резкой границы между Australopithecus и Homo: так, у грацильных австралопитеков максимум достигает 500–550 см³, а у “людей умелых” минимум – 450–500 см³. Собственно, было бы странно, если бы между ними обнаружился резкий разрыв значений. Но австралопитеки каменных орудий почти никогда не делали, а хабилисы – вполне и даже зависели от них.

Рис. 5. Мозг шимпанзе (а), австралопитека (б), хабилиса (в), эректуса (г), хоббита (д), неандертальца (е) и человека (ж).
Заметным исключением из общей картины является “хоббит” – Homo floresiensis, живший в Индонезии по геологическим меркам еще совсем недавно, 50 тыс. лет назад. Его объем мозга – 426 см³ – почти в два раза меньше “мозгового рубикона”, что не мешало ему изготавливать каменные орудия труда. Видимо, тут дело в истории вида. “Хоббиты” возникли из гораздо более мозговитых – в среднем больше 900 см³ – Homo erectus и за без малого миллион лет эндемичной эволюции на Флоресе катастрофически уменьшились в размерах как всего тела, так и головы. Однако убыль мозга шла, видимо, неравномерно, за счет “лишних” участков – тех, что оказались неактуальны при жизни на уединенном острове при отсутствии конкуренции и минимуме хищников. Самые же важные участки, ответственные в числе прочего за орудийную деятельность, очевидно, сохранялись. Можно привести аналогию с собаками: мастифы или сенбернары не интеллектуальнее чихуахуа или той-терьеров, но размеры их мозгов различаются более чем в три раза – 140 против 45 г. Мозг волка еще крупнее, чем у самого выдающегося волкодава. Очевидно, что катастрофическое уменьшение размеров далеко не столь радикально сказалось на функциях. А вот если бы мозг волка изначально был как сейчас у чихуахуа, то столь сообразительными они вряд ли могли бы стать.
Размеры мозга в ходе эволюции менялись неравномерно. От проконсулов до шимпанзе и австралопитеков они мало изменились и составляли примерно 320–550 см³. У первых Homo порядка 2 млн лет назад мозг заметно подрос, но после, вероятно, опять несколько уменьшился. В целом же в дальнейшем происходил бурный рост величины вплоть до современных значений. Homo ergaster достигли “мозгового рубикона”, а у Homo heidelbergensis средний размер мозга был уже почти современным (на сотню граммов меньше, чем в среднем по сапиенсам, но как у некоторых нынешних популяций). Неандертальцы обладали очень большим мозгом, а первые кроманьонцы превзошли и их.
Причины резкого увеличения объема мозга у “ранних Homo” кроются в изменениях диеты. Последние, в свою очередь, явились следствием перемен экологии. Около 3 млн лет назад климат в очередной раз стал суше, а местообитания открытее. Многие представители мегафауны, более зависимые от воды и обильной растительности, вымерли, что привело к исчезновению и многих крупных хищников – саблезубых тигров и их неизбежных спутников – гигантских гиен-пахикрокут. Временно освободившуюся нишу падальщиков и хищников поспешили занять предки нынешних гиен, шакалов и леопардов (древнейшие леопарды известны как раз около 2 млн лет назад). Туда же устремились грацильные австралопитеки, теснимые из привычной экологической ниши собирателей семян гигантскими геладами. С мелкими падальщиками наши предки уже вполне могли конкурировать. Предыдущие миллионы лет жизни в саванне закалили австралопитеков, тем более что и прежде они были тоже не абсолютными вегетарианцами, если судить по приматам вообще и шимпанзе в частности.
Питание мясом привело к ряду заметных изменений в строении тела и поведении. Известно, что добывание мяса требует больших интеллектуальных усилий, чем растительноядное существование. Трава не сопротивляется и не прячется, а мясо обычно не хочет, чтобы его съели, – убегает, лягается и всячески активно избегает хищника. К тому же мясо гораздо более калорийно, чем фрукты и тем более листья растений. Чтобы наесться, надо съесть немножко мяса или целый день жевать растения. Неспроста хищники большую часть времени проводят в отдыхе, а травоядные постоянно жуют. Кроме того, растительная клетка имеет целлюлозную клеточную стенку, которую тоже надо разрушать – жевать, жевать и жевать, стирая зубы и напрягая челюсти. Мясо же есть намного проще. Поэтому жевательный и вообще пищеварительный аппарат мясоедов всегда меньше, чем растительноядных существ, а интеллект – выше. С эволюционной точки зрения вегетарианство – не путь к успеху; впрочем, и специализированными хищниками наши предки не были, оставшись всеядными.
Поскольку жевать надо было меньше, зубочелюстной аппарат уменьшался, а вслед за ним ослабевал рельеф черепа в виде костных гребней, служащих для прикрепления жевательных мышц. Происходило это не оттого, что маленькие челюсти были полезнее, а потому, что перестали быть вредными: теперь индивиды с маленькими челюстями не страдали от голода и спокойно выживали. Снижение биомеханического стресса привело к уменьшению толщины стенок черепа, а стало быть – массы головы. Поскольку плотность кости вдвое превосходит плотность мозга, открылись небывалые возможности для роста последнего: когда кость уменьшалась на один кубический сантиметр, мозг мог вырасти на два с сохранением общей массы головы и без усиления шейных мышц, поддерживающих голову. То есть кость уменьшалась немножко, а мозги пухли как на дрожжах! Эти изменения мы и наблюдаем: у разных видов австралопитеков масса мозга практически не менялась в течение нескольких миллионов лет, но с момента 2,5 млн лет у группы “ранних Homo” начала резко увеличиваться.
Возникали, конечно, и проблемы: более древние предки не были специализированными мясоедами, они не имели природных средств для охоты – больших когтей или клыков. Но они уже наверняка периодически использовали орудия труда (точно мы не можем это утверждать, но шимпанзе используют, а австралопитеки находились в более располагающих для этого условиях). Для охоты и срезания мяса с костей они стали использовать каменные чопперы. Многочисленные следы орудий на костях, частью поверх следов зубов хищников, свидетельствуют об активном использовании “ранними Homo” падали. Кстати, стоит помнить, что в африканских условиях понятие падали не так страшно, как это может представлять северный человек: туша погибшего животного часа за два уничтожается до костей гиенами, грифами, марабу и прочими любителями, так что мясо там всегда первой свежести. Иногда, напротив, следы зубов хищников обнаруживаются поверх следов орудий, так что наши пращуры были не чужды и активной охоты.
Второй сложностью были конкуренты. Хотя крупные хищники временно исчезли, мелкие никуда не делись, а при росте австралопитеков и “ранних Homo” от метра до полутора даже шакал выглядит вызывающе. Приходилось бороться с ненасытными антагонистами, что опять же способствовало социализации и развитию орудийной деятельности.
Таким образом, питание мясом давало потенциал роста мозга и оно же настоятельно требовало увеличить и усложнить нервную систему: люди смогли есть мясо, его калорийность позволяла уменьшить челюсти, уменьшение челюстей позволяло увеличить мозг, а добывание мяса побуждало увеличение мозга. Что и произошло. Трудно сказать, что тут было причиной, а что следствием: одно вызывало другое, а обратная связь усиливала проявление первого. Получилось как в известной байке про козу и дом, и даже лучше – тост из “Кавказской пленницы” реализовался за два миллиона лет до появления этого замечательного фильма: возможность чудесным образом совпала с необходимостью и реализовалась в выдающемся результате.
Одновременно происходили и структурные перестройки нервной системы. Несомненно, это было вызвано вторым важнейшим следствием перехода к мясоедению – преобразованием социальной структуры, усилением и усложнением общения между особями. Правда, про эту сторону эволюции нам остается больше догадываться, нежели оперировать фактами.
Приятно, что теоретические выкладки совпадают с наблюдаемыми признаками реальных находок: в палеонтологической летописи мы наблюдаем изменения фауны, в ряду “ранних Homo” уменьшаются размеры челюстей и растут размеры мозга, рука становится трудовой, а в слоях появляются многочисленные каменные орудия труда.
Антивеган: первые шаги. В последнее время обсуждение пользы и вреда вегетарианства, сыроедения и прочих стратегий питания стало очень модным. Терабайты забиты дискуссиями на темы, что лучше: есть только капусту с морковкой или можно пить хотя бы молоко, плоха ли диета из одних растений и допустимы ли яйца в рационе. А ведь такие проблемы вставали перед приматами еще миллионы лет назад. Одни стали сугубыми вегетарианцами, как колобусы, другие, напротив, увлеклись насекомыми, как долгопяты. Большинство же представителей нашего отряда придерживаются золотой середины: фруктовый салат они не забывают украшать кузнечиками, яйцами, антилопами и даже ближайшими родственниками. В человеческой линии переходы от диеты к диете происходили неоднократно. Одним из последних и ключевых достижений наших далеких предков на стадии становления рода Homo был переход от преимущественной растительноядности ко всеядности. Чем больше мяса попадало в желудки пращуров, тем умнее они становились. В целом картина рисуется вполне последовательная: питание мясом выгодно в плане соотношения калорийности и необходимости жевания, но требует напряжения мозгов для добывания упрямой добычи, борьбы с зубастыми конкурентами и – в случае со вчерашними вегетарианцами – некой орудийной деятельности хотя бы для соскабливания мяса с костей. Картина последовательная в целом. Но… Доселе в археологии существовал досадный разрыв: древнейшие каменные орудия труда датировались временем около 2,6 млн лет назад (а то и все 2,7!), а следы этих орудий на костях животных – примерно 1,8 млн лет. Было и несколько исключений, древнейшим из которых числились две обломанные кости из Дикики в Эфиопии с датировкой 3,39 млн лет, царапины на коих были интерпретированы как следы галечных орудий. Впрочем, другие исследователи подвергли это заключение основательной критике. Таким образом, доныне оставалось совершенно непонятным: зачем первые каменных дел мастера кололи свои чопперы? Получается, без малого миллион лет каменные орудия использовались вовсе не для резки бифштексов. Расхождение с вышеизложенной концепцией очевидно. Но на то и наука, чтобы искать ответы на вновь возникающие вопросы. Этим и занялась международная группа исследователей, опубликовавшая результаты своего изыскания в электронном журнале PLoS ONE (Ferraro et al., 2013). Ученые обратили внимание на ряд проблем. Главной из них является малое количество доступного материала. В местонахождениях, образовавшихся во временном интервале 2,6–1,8 млн лет, найдено не так много подходящих для изучения данной проблемы костей животных. А наука, как известно, зиждется на статистике. Другая сложность: длительность формирования отложений. Если она слишком велика, то и выводы будут размытыми. Наконец, всегда остается вопрос: насколько наблюдения в одном конкретном месте отражают общую тенденцию прогресса? Или же мы имеем лишь локальный феномен? Местонахождение Канжера Южная, расположенное на юго-западе Кении, оказалось близко к идеалу во всех указанных отношениях. Здесь было найдено много костей разных видов зверей – счет идет на сотни. Животные преимущественно саванные (антилопы, лошади, свиньи), но встречены и некоторые водные (бегемоты и крокодилы). В целом среда реконструирована как саванна; отсутствие “лишних” экологических вариантов свидетельствует о достаточно узком интервале образования отложений; вместе с тем имеется как минимум три слоя, дающих возможность проследить хронологические изменения и проверить достоверность выводов. Время формирования местонахождения определено достаточно надежно как по фауне (верхнюю границу задают архаичный слон-дейнотерий с примитивной свиньей, а нижнюю – лошадь), так и магнитометрически и составляет примерно 2 млн лет назад. И самое главное: масса костей несет на себе очевидные следы разделывания каменными орудиями! Следы надрезок имеются на фрагментах, происходящих из всех трех слоев; более того – на 1,9–6,3 % всех антилопьих костей конечностей. Это огромный процент, означающий, что каждая пятидесятая или даже шестнадцатая антилопа была съедена гоминидами. Для сравнения, следы зубов хищников имеются на менее чем 17–25 % костей конечностей, притом что хищники представлены, понятно, многими видами. То есть наши предки составляли неслабую конкуренцию когтистым и клыкастым. Надрезки расположены не где попало, а в определенных местах костей, из чего следует, что охотники выполняли две главные операции: срезание мяса с костей и расчленение суставов. Ели, понятно, преимущественно некрупных животных: надрезки на ребрах имеются на 9,7–12,9 % ребер мелких антилоп и только 5,0–7,5 % среднеразмерных. Исследование соотношений надрезок и отпечатков звериных зубов – когда они встречены на костях вместе – привело исследователей к выводу, что наиболее вероятен сценарий, по которому первыми потребителями мяса были именно гоминиды, а хищники получали лишь объедки. Этот момент был проверен с особой тщательностью путем сравнения с разными известными вариантами в современной и древней Африке. Настораживает, правда, тот факт, что среди остатков среднеразмерных антилоп, съеденных гоминидами, преобладают нижние челюсти и черепа, а длинных костей конечностей намного больше, чем кончиков ног, позвонков и ребер. В случае с мелкими антилопами картина иная, там разница по частям скелета не столь очевидна, а преобладают более аппетитные части типа плечевых костей и лопаток. Исследователи предлагают два возможных объяснения. Согласно первому, гоминиды могли относиться к мелким и среднеразмерным антилопам одинаково, но в последующем возникла разница из-за падальщиков, то есть гиены могли сгрызть мелкие части среднеразмерных антилоп. Не очень ясно, правда, почему они тогда игнорировали те же элементы мелких антилоп? Более вероятно, что мелкую антилопу древние охотники легко могли дотащить до обеденного стола и целиком, не тратя время на разделывание, тогда как от более крупных отрезали самые ценные части, оставляя тяжелые, но непитательные копытца на съедение жадным падальщикам. Как видно, особенно ценились головы: следы на внутренней поверхности нижних челюстей и мозговых полостей недвусмысленно указывают, что древние гурманы особенно любили языки и мозги. Наконец, обращает на себя внимание, что среди всех находок преобладают осколки диафизов, причем, судя по некоторым признакам, кололись свежие, а не сухие кости. Логично предположить, что гоминидам пришелся по вкусу и костный мозг. Как итог: мы можем гордиться своими предками! Находки в Канжере Южной являются древнейшими достоверными и притом массовыми следами хищнического поведения древних гоминид. Они на 200–500 тыс. лет (вдумайтесь в эту цифру!) старше, чем изученные доныне аналогичные археологические комплексы в Олдувае и других местах. Стоит особенно подчеркнуть, что речь идет именно о хищничестве, а не поведении падальщиков. Таким образом, образ Великого Предка – Отважного Охотника (для начала хотя бы и на мелких антилоп, потом дойдет очередь и до слонопотамов!) реабилитирован. Ведь сколь много говорилось (в том числе и автором этих строк) о том, что первые мясоедческие опыты гоминид были сделаны в компании вонючих гиен и трусливых шакалов, а не благородных львов, роскошных леопардов и стремительных гепардов. Теперь можно снова вернуться к эпическому варианту. Впрочем, между первыми изготовителями каменных орудий и временем гоминид из Канжеры Южной по-прежнему остается как минимум 600 тыс. лет, а то и больше миллиона… Что делали эти люди, как жили? Загадка ждет своего решения… Так что – до новых открытий! Человек антилопе – лев. Анализ следов жизнедеятельности древнейших людей в Олдувайском ущелье всегда был плодотворным. Ему посвящены уже сотни статей. Много лет исследователи спорят: могли ли первые люди активно гоняться за газелями и антилопами, или же их хватало только на подбирание падали за львами и гиенами? В качестве аргументов приводилось множество наблюдений. В частности, археологи очень тщательно разглядывали царапины на окаменевших костях, пытаясь понять, перекрывают ли следы от орудий отметины зубов хищников или сами перекрываются ими? Но даже в случае, если первичны царапины от чопперов (примитивных каменных орудий), оставалось неясным, поймали наши пращуры зверюшку или нашли уже готовую тушку раньше грифов и гиен? Бесспорной добычей был, правда, один древний еж, на челюсти которого имелись четкие следы отрезания мяса (вряд ли наши предки отважно отбивали его у оскалившейся стаи гиен), но еж – не слон и даже не газель. Очередная работа археологов пролила свет на способности наших предков к охоте (Bunn et al., 2012). Исследователи определили индивидуальный возраст добытых антилоп и газелей, на костях которых сохранились следы зубов хищников и каменных орудий; кости были найдены в Олдувайском ущелье (конкретнее – в локальном местонахождении FLK Zinj) и имеют датировку около 1,84 млн лет назад. Если бы возраст в обоих случаях оказался одинаковым, это могло значить, что Homo habilis подбирали остатки добычи хищников. Однако выяснилось, что картина иная. Кости мелких антилоп со следами орудий принадлежали только старым самцам. Современные леопарды предпочитают мелких антилоп в расцвете сил. Это ясно свидетельствует в пользу того, что Homo habilis не пользовались остатками трапез леопардов. Но тут все же возможны две интерпретации: либо Homo habilis ловили старых антилоп потому, что те медленнее бегают, либо находили туши животных, погибших собственной смертью. Последняя версия, однако, не проходит в случае с крупными антилопами. Охотясь на них, Homo habilis выбирали только взрослых, но нестарых особей, тогда как львы ловят животных всех возрастов без разбора. Если бы Homo habilis отбивали добычу у львов, в FLK Zinj тоже имелись бы кости крупных видов антилоп всех возрастов. Но, видимо, крупная антилопа вкуснее, когда она средних лет и самого большого размера. Молодые – мелкие, старые – жесткие. Хорошо бы поинтересоваться у современных африканских охотников – так ли оно? Конечно, новое исследование не может отменить всех предыдущих, в которых неоднократно было показано, что добыча падали и отбивание добычи у хищников занимали немаловажное место в жизни древнейших людей, но, как бы то ни было, всегда приятно осознавать, что наши предки все же были не совсем законченными коллегами гиен, а хоть временами, но сами – ловко и умело – ловили антилоп и газелей. Иначе как бы они стали людьми? Кстати, о малярии… Примерно 2,7–2,8 млн лет назад у предков человека произошла и закрепилась в популяции мутация одного из генов, поменявшая сиаловые кислоты в составе гликокаликса – надмембранного комплекса эритроцитов (Chou et al., 2002; Varki et Gagneux, 2009). Секрет в том, что молекулы именно этих кислот являются мишенями для малярийных плазмодиев – паразитов, разрушающих эритроциты. Мутация позволила нашим предкам избавиться от малярии, но создала новые проблемы. У всех прочих млекопитающих сиаловые кислоты остались прежними, посему при поедании мяса зверей в человеческом организме возникает пусть несильный, но иммунный ответ. Парадоксальным образом именно в это время предки Homo начали есть все больше мяса. Как обычно, понятие пользы и вреда относительно: из двух зол естественный отбор оставил меньшее. Впрочем, около 10 тыс. лет назад плазмодии приспособились-таки к человеческим сиаловым кислотам, появился новый вид Plasmodium falciparum (у горилл и шимпанзе свой плазмодий – Plasmodium reichenowi, безопасный для человека). Вероятно, плазмодиям помогла скученность и оседлость первых земледельцев и скотоводов. Так что после 2 млн лет отдыха человек вернулся на исходные позиции. Пришлось изобретать серповидно-клеточную анемию, эволюция продолжается…Мозг рос два миллиона лет. Однако в последние примерно 25 тысяч лет он снова стал уменьшаться.
Глупеем ли мы? Мозг верхнепалеолитических людей и даже неандертальцев был в среднем заметно больше современного. Средний мозг мужчин поздних неандертальцев по самой низкой оценке имел объем 1460 см³, чаще же приводятся цифры больше 1500 см³ (возможная разница обусловлена составом выборки, неточностями в определении объема мозга у фрагментарных находок и применением разных методов измерения). В верхнем палеолите показатели примерно такие же, около 1500 см³, может, даже большие, чем у палеоантропов. Для современных же мужчин всех рас средний размер равен примерно 1425 см³, а для мужчин и женщин – 1350 см³. Уменьшение мозга началось примерно 25 тыс. лет назад и еще около 10 тыс. лет назад продолжалось вполне ощутимо. Этот факт разные исследователи объясняют по-разному. Одни, особенно гордящиеся собственной разумностью, склонны туманно рассуждать о важности количества и качества межнейронных связей, о соотношении нейронов и нейроглии, о непринципиальности абсолютной массы мозга, об отсутствии корреляции между этой массой и уровнем интеллекта, о различиях массы мозга и объема мозговой полости черепа, о тонкостях методик. Однако о нейронах неандертальцев и кроманьонцев мы ничего не знаем, а о размере мозга – знаем. Есть и второй вариант: древние люди были умнее нас. Этот вывод обычно удивляет слушателей и ставит в некоторое замешательство. Главных аргументов “против” два: во-первых, если неандертальцы с кроманьонцами были умнее, почему же они имели более низкую культуру, во-вторых, разве объем мозга жестко связан с интеллектом? На первое возражение ответить проще. Древние люди жили в гораздо более сложных условиях, чем мы сейчас. К тому же они были универсалами. В одной голове один человек должен был хранить сведения обо всем на свете: как делать все орудия труда, как добыть огонь, как построить жилище, как выследить добычу, как ее поймать, выпотрошить, приготовить, где можно добыть ягодки-корешки, чего есть не следует, как спастить от непогоды, хищников, паразитов, соседей. Помножьте все это на четыре времени года. Да еще добавьте мифологию, предания, сказки и прибаутки. Да необходимость по возможности бесконфликтно общаться с близкими и соседями. Поскольку не было ни специализации, ни письменности, все это человек носил в одной голове. Понятно, что от обилия такой житейской премудрости голова должна была “пухнуть”. К тому же оперировать всей этой информацией древний человек должен был быстро. Последнее, правда, несколько противоречит большому размеру: чем длиннее и сложнее межнейронные связи, тем дольше идет сигнал. Мозг мухи работает быстрее нашего в немалой степени из-за своего мизерного размера. Но и задачи у мушиного мозга попроще человеческих. Современная жизнь резко отличается от палеолитической. Сейчас человек получает все готовое: и пищу, и вещи, и информацию. Крайне мало современных цивилизованных людей способны сделать какое-либо орудие труда из природных материалов. В лучшем случае человек комбинирует уже готовые элементы, например, прилаживает лезвие топора на топорище. Но он не изготавливает топор с самого начала – от добычи руды и срубания палки для топорища (тем более срубания орудием, лично изготовленным). Современный человек дров не носил, палок не пилил, руды не копал, железо не ковал – вот и нет ему ничего в смысле мозгов. Специализация – это не проблема XX века, как часто приходится слышать. Она появилась еще в раннем неолите, с первым большим урожаем, позволившим кормить людей, занимающихся не добычей еды, а чем-то еще. Появились гончары, ткачи, писцы, сказители и прочие специалисты. Одни стали уметь дрова рубить, другие – печь топить, третьи – кашу варить. Цивилизация сделала мощнейший рывок вперед, и количество общей информации сказочно выросло, но в голове каждого отдельного человека знаний заметно поубавилось. Цивилизация столь сложна, что один человек в принципе не может уместить в голове даже малой части общей информации – обычно он и не пытается, ему и не надо. Роль винтика устраивает подавляющее большинство цивилизованных людей. В окружении множества людей не так страшно что-то забыть или вообще не знать. Всегда есть возможность научиться у знатока, скопировать, подсмотреть, украсть мысль (что и было сделано автором этих строк, в чем он честно признается: мысль о воровстве мыслей сворована). Подражание – одно из любимых занятий обезьян, неспроста существует слово “обезьянничать”. Многочисленное постнеолитическое общество вкупе с повышенными способностями к обучению дает для этого широчайшие возможности, гораздо более богатые, чем есть у обезьян (собственно, вместо “обезьянничать” лучше бы говорить “человечничать”). Когда большинство людей могут жить годами, не особо напрягая интеллект, отбор на разумность оказывается ослаблен. Это не значит, что миром серых посредственностей правят некие выдающиеся гении или что мы обречены на тотальное поглупение. Просто интеллект распределяется по всему коллективу. Древний человек до всего доходил своим умом. При этом возможности обучения у него были минимальны. Продолжительность жизни была мала, отчего умудренных опытом стариков, да еще с педагогическим даром, было катастрофически мало. Вообще людей в группе было немного. Посему многие вещи приходилось постигать на личном опыте, причем очень быстро, да еще без права на ошибку. Сейчас же каждого сапиенса с рождения окружают толпы специально выдрессированных лекторов, наперегонки спешащих поведать обо всех тайнах мироздания (в которых, как правило, сами ориентируются только с надежной картой в виде статей, монографий и баз данных, накопленных долгими предшествующими поколениями). Современный человек берет нусом – коллективным разумом. У кроманьонцев нус не дорос, так что каждому приходилось работать своими мозгами. С усилением же специализации можно спокойно жить и с маленькой головой, это не критично. Пропал стабилизирующий отбор на крупные мозги, и генофонд стал разбавляться “малоголовыми генами”. А при всем при том мозг – энергетически жутко затратная штука. Большой мозг пожирает огромное количество энергии. Неспроста палеолитические люди часто имели мощное телосложение – им надо было усиленно кормить свой могучий разум, благо еще не истощенная среда со стадами мамонтов и бизонов позволяла. С неолита отбор пошел на уменьшение размера мозга. Углеводная диета земледельцев позволяла неограниченно плодиться, но не кормить большие тело и мозг. Выигрывали индивиды с меньшими габаритами, но повышенной плодовитостью. У скотоводов с калорийностью пищи дело обстояло получше. Неспроста в бронзовом веке размеры тела увеличились, а современный групповой рекорд величины мозга принадлежит монголам, бурятам и казахам. Но жизнь скотовода несравненно стабильнее и проще, чем у охотника-собирателя; да и специализация имеется, плюс возможность грабить земледельцев позволяет не напрягать интеллект. Все скотоводческие культуры зависят от соседних земледельческих. Посему размер мозга уменьшался почти у всех на планете. У многих на этом месте возникнет закономерный вопрос: почему же у современных охотников-собирателей объем мозга практически всегда очень мал? Австралийские аборигены, ведды, бушмены, пигмеи, андаманцы и прочие семанги – все как один имеют наименьшие значения размеров головы в мировом масштабе. Выходит, у них мозг уменьшался быстрее, чем у земледельцев и скотоводов. Неужели их жизнь стала настолько проще палеолитической, позволив не так сильно напрягать интеллект? Думается, есть разные причины особо активной редукции мозга именно среди охотников-собирателей. Во-первых, технический и культурный прогресс шел во всех группах людей. Жизнь австралийских аборигенов XIX века – не то же самое, что жизнь их предков 30 тыс. лет назад. За минувшие тысячелетия появились бумеранги, микролиты, собаки динго. Жизнь стала лучше, жизнь стала веселее! А подавляющее большинство других охотничье-собирательских сообществ жило в контакте с культурами производящего хозяйства. Бушмены, семанги и эвенки использовали железные наконечники стрел и копий, выменивали ткани и посуду у окружающих земледельцев-ремесленников. Вездесущая глобализация затрагивала охотников-собирателей, хотя бы и крайне слабо. Технологические задачи, стоящие перед многими современными охотниками, по всей вероятности, не так сложны, как те, что решали люди палеолита. Конечно, эта причина далеко не достаточна. Вторая, куда более серьезная причина резкого уменьшения мозга у охотников-собирателей – ухудшение условий их жизни. В палеолите такой образ жизни вели все, стало быть, плотность населения и конкуренция были минимальны, нагрузка на окружающую среду тоже была весьма слабой. Стада непуганых бизонов покрывали степи до горизонта, низкий уровень технологий не позволял извести их всех, но давал вполне достаточно пищи для поддержания большого тела и мозга. Нельзя сказать, что палеолит был золотым веком. Жизнь была тяжела и регулярно голодна. Но в целом, надо думать, неандертальцам и кроманьонцам жилось сытнее, чем нынешним бушменам в Калахари. Причина очевидна. Современные охотники-собиратели оттеснены земледельцами и скотоводами в самые неблагоприятные места. Все плодородные места в первую очередь были распаханы или заселены овцами. Охотники сохранились лишь на самых бедных окраинах, где самые тяжелые условия выживания и мало еды, которую к тому же трудно достать. В этом отношении показательно, что скелеты наиболее вероятных предков бушменов найдены не в Калахари или Намибе, а в пещерах южного побережья Африки. Останки древнейших австралийцев покоятся не в песках пустыни Виктории, а в самой плодородной юго-восточной части континента. Со временем пищи становилось меньше. Где-то – как в Австралии – ее за тысячи лет извели сами же охотники, где-то – в большинстве прочих мест – им помогли земледельцы и скотоводы. Мало еды – мало возможностей для поддержания большого мозга. Неспроста современные охотники почти всегда имеют и очень малые размеры тела, и весьма субтильное телосложение, даже близко не сравнимое с неандертальским. В свете всего этого закономерно, что с появлением производящего хозяйства размер мозга угнетаемых охотников-собирателей стал резко уменьшаться. Верхнепалеолитический рай закончился. Такая вот диалектика: технологический процесс улучшил жизнь, а рост населения и истощение ресурсов – ухудшили. И оба процесса вели к уменьшению мозга. Кстати, об осах… Уровень развития социума и размер мозга – взаимосвязанные вещи. Среди приматов есть четкая зависимость: чем больше особей в группе, тем крупнее мозг (Gowlett et al., 2012). Конечно, корреляция эта выявляется при сравнении видов, а не отдельных популяций. На этом основании была построена целая концепция “социального мозга”: дескать, сей замечательный орган увеличивался у предков человека главным образом для общения с себе подобными, а вовсе не для преодоления жизненных невзгод. Однако не все так однозначно. С появлением производящего хозяйства размер групп людей вырос на порядки, но мозги почему-то не ответили на это симметричным привесом. Может, взаимосвязь социальности и мозговитости не такая уж прямая, а скорее волнообразная? Возможно, социальность обезьян – совсем не та социальность, просто она еще не достигла того счастливого уровня, когда коллективный разум начинает избавлять индивида от надобности думать? Возможно, стоит поискать более продвинутых в общественном смысле животных, чем макаки и шимпанзе? И вот пожалуйста: среди ос размер грибовидных тел – аналога коры головного мозга у позвоночных – обратно пропорционален их социальности (O'Donnell et al., 2015). Одиночные осы оказались однозначно самыми мозговитыми. Может, это повод задуматься о нашем будущем? Во всех вышеприведенных рассуждениях одним из ключевых моментов является предположение о связи размера мозга с его функциональными возможностями. Тут стоит сделать подробное уточнение. Размер мозга напрямую не коррелирует с интеллектом в пределах вида. В рамках вида Homo sapiens размер мозга связан с размерами тела и качеством питания (отчего во многих странах в последние десятилетия наблюдается увеличение массы мозга – есть стали лучше, вот и подросли малость), а интеллект в основном зависит не от размера мозга (тем более что объем мозга процентов на 40 определяется глиальной тканью, а не нейронами; глия, конечно, тоже нужна, так как обеспечивает работоспособность нейронов, но не в ней происходят нервные процессы), и даже не от числа нейронов (ведь при увеличении размеров тела прежде всего будет увеличиваться число двигательных или чувствительных нейронов, но не они определяют интеллект), и даже не от числа ассоциативных нейронов, а от числа связей между нейронами. Число же связей меняется в пределах нескольких порядков и частично обусловлено наследственно, частично же определяется образом жизни и опытом. Учится человек, наращивает число связей – будет умнее; не учится – будет глупее. Стремление к обучению, впрочем, тоже имеет наследственную составляющую, так что мозговитый человек с огромной интеллектуальной потенцией может не хотеть тренировать свой мозг, не нарастит связи и останется простофилей. Существенно, что число нейронов в течение жизни катастрофически уменьшается, а способности мозга продолжают расти; это определяется именно появлением новых межнейронных связей. Таким образом, приходится признать, что большой мозг сугубо потенциально должен бы стать более умным, но оговорок так много, что фактически эта связь отсутствует. Доказывается это разными путями. Во-первых, известны великие мыслители и с большим, и с малым мозгом. Средняя величина по этим мыслителям получается практически средней по миру (на самом деле она получается больше среднемировой средней, но тут надо учитывать два важных обстоятельства: в выборку мыслителей всегда включают только мужчин и почти одних северных европеоидов – крупных телом и, стало быть, мозгом; если бы сюда добавить женщин и южных мыслителей – древних египтян, греков, римлян, итальянцев, майя, индусов, южных китайцев, то средняя по мегаинтеллектам сравнялась бы с общемировой). Во-вторых, старые люди с капитально уменьшившимся мозгом могут иметь два жизненных пути. Если в течение жизни они вели интеллектуальную жизнь (пели, плясали, читали, а лучше – сочиняли стихи, занимались наукой, искусством, просто делали что-то умное), то старческое слабоумие им не грозит. Среди университетских профессоров людей с деменцией несравнимо меньше, чем среди людей неинтеллектуальных профессий. Если же человек всю жизнь сидел на лавочке, лузгал семечки и не читал ничего сложнее астрологического прогноза, то перспективы его старости неутешительны. Учиться, учиться и учиться – как завещал нам великий В. И. Ленин, мышление в молодости спасет нас от маразма на пенсии. В-третьих, в популяционном смысле все то же самое. Великие достижения человеческой мысли принадлежат самым разным группам – и мозговитым, и не очень. К тому же в разное время главные на тот момент открытия делали люди из самых разных мест планеты. Пластинчатая техника, черешковые наконечники, копьеметалка, микролиты, шлифование камня с наибольшей вероятностью придумывались много раз; нам эти штуки кажутся примитивными, но в свое время это были новации, перевернувшие мир. Земледелие независимо изобрели на Новой Гвинее, Ближнем Востоке, в Китае и как минимум дважды в Америке; зернотерку, лук со стрелами и керамику изобретали неоднократно в тех же и других местах; письменность, математику, астрономию и государственность – в меньшем количестве мест, но тоже не единожды и независимо, причем как не самые мелкоголовые, так и не самые башковитые. С другой стороны, одна и та же популяция вполне могла долгое время опережать всех, а потом отстать или, напротив, сначала жить в дикости, а после вырваться вперед. Примеры бесчисленны – бушмены, папуасы, египтяне, норвежцы, китайцы… Фактически любой народ переживал периоды застоя и ускорения. Давно ли римляне писали о варварах кельтах и германцах? А давно ли жители самой Италии бегали в шкурах (а то и без них), притом что в Междуречье уже высились пирамиды? Размер же мозга при всех этих культурных и социальных преобразованиях не менялся. Неспроста рекордсмены по размеру мозга никогда не являются рекордсменами по достижениям – ни в индивидуальном, ни в популяционном смысле. Еще очевиднее факт отсутствия внутривидовой связи размера и функции мозга на примере собак. Песики разных пород не распределяются по интеллекту так же, как по росту. Мелкая левретка может быть столь же сообразительной, что и огромный ирландский волкодав. Число двигательных и чувствительных нейронов у разноразмерных собак различается капитально, а число связей между ассоциативными нейронами, видимо, остается более-менее постоянным. Единственно когда внутривидовая корреляция размера и функции мозга четко проявляется – в случае патологических крайностей. Ясно, что микроцефал не может быть особо умным по причине недоразвития коры, но и рекордсмены в сторону больших значений – частенько тоже с патологиями интеллекта и психики. Однако в межвидовом масштабе связь размера мозга и интеллекта вполне очевидна, с поправками на массу тела конечно. Мышь глупее слона, кошка глупее собаки. Шимпанзе никогда не достичь уровня человека. Кит имеет в три раза больший мозг, чем человек, но в тысячу раз превосходит его по весу тела, так что тоже не догоняет по разумности. Соразмерные с человеком неандертальцы и кроманьонцы (которые тоже вроде как Homo sapiens, но уж больно древние и специфичные) имели больший мозг. Хронологические изменения невозможно списать лишь на аллометрические связи размеров мозга и тела – тело-то не особо поменялось, а питание в целом стало как минимум стабильнее. Стало быть, изменения размеров связаны в первую очередь с интеллектом. С чего мы и начали. Каковы же перспективы? Усиливающаяся специализация и независимость от условий окружающей среды, обеспеченность выживания независимо от личных качеств делают прогноз неутешительным. С другой стороны, общий разум человечества неизмеримо растет. Обеспечит ли он счастливое будущее? Поживем – увидим…Строение долей мозга существенно отличается у разных приматов и менялось в процессе эволюции предков человека. К сожалению, на ископаемых эндокранах мы можем изучать только их общую форму и размеры, но и этого достаточно для оценки межвидовых различий. Выясняется, что изменения размеров и формы сменяли друг друга: как правило, сначала увеличивался размер, а потом преображались пропорции. Несинхронно эволюционировали и разные доли, и участки внутри каждой доли. Изменения длины, ширины и высоты происходили не одновременно, а последовательно.
По темпам изменения первое место занимает лобная доля, второе место за теменной, третье достается височной, а затылочная замыкает список (об изменениях островковой остается только догадываться по изменению общей ширины мозга).
В пределах лобной доли интенсивнее всего менялась нижнелобная область, а в ней – орбитная часть. Лобная доля отвечает за мышление в самом широком значении этого слова: сознание, способность общаться с другими людьми, этику, эстетику и логику. В задней части нижней лобной извилины расположен центр Брока – моторная зона речи. Грубо говоря, это место отвечает за говорение (на самом деле в большей степени за составление из слов связных предложений, а еще и за восприятие контекста). Как часто бывает, лучше всего функция понятна на примере нарушений: при повреждении центра Брока человек понимает, что ему говорят, может сформулировать мысль и, скажем, написать текст, но не может артикулировать свою речь, а даже если произносит отдельные слова, то неспособен выдать их последовательно в виде внятной фразы. Понятно, что у обезьян на этом месте тоже не дырка, у них этот же участок мозга отвечает если не за речь, то за похожие действия – движения гортани, в том числе издавание звуков при общении. Но у человека относительный размер центра Брока вдвое больше, а абсолютный превосходит обезьяний вариант в 6–6,6 раза!
Участок, соответствующий центру Брока, был совершенно не развит у австралопитеков, но у некоторых “ранних Homo” тут появляется заметный рельеф. Это не значит, что Homo habilis уже умели говорить, но раз нейронов становилось больше, какой-то очевидный прогресс в этом направлении шел. Еще сильнее выступала та же область у Homo erectus (отчего, кстати, Э. Дюбуа назвал свою находку не Pithecanthropus alalus – “Обезьяночеловек бессловесный”, как предлагал Э. Геккель), а у неандертальцев тут были основательные бугры. Опять же это не значит, что питекантропы и неандертальцы болтали без умолку, но свидетельствует о значительном развитии коммуникативных голосовых возможностей. Кстати, у современного человека никакого особого рельефа тут нет, но это говорит лишь о том, что отлично развиты соседние области.
Кстати, о песнях… Сразу впереди от речевого центра Брока расположена самостоятельная зона пения. При повреждении зоны Брока – моторной афазии Брока – человек теряет способность членораздельно говорить, однако может пропеть любую фразу. Другое следствие сего странного разделения – то, что заикающиеся люди поют без всяких проблем. Заикание – это отсутствие торможения в центре Брока: слово произносится, но сигнал не гасится, и человек раз за разом повторяет одно и то же. Однако сей дефект совершенно не влияет на певческие способности. Кстати, может быть и обратная ситуация – прекрасный оратор, совершенно не умеющий петь. Трудно понять, какая надобность создала у человека разделение способностей к пению и говорению. В любом случае это значит, что пение – не разновидность речи, а совсем особое свойство, на развитие которого шел самостоятельный отбор. Видимо, представляя своих предков хриплыми троглодитами, общающимися гортанными криками, мы сильно недооцениваем их; вероятно, среди них было немало талантливых вокалистов.У неандертальцев, кроме прочего, наблюдается рельеф в области венечного шва, примерно там, где должна располагаться прецентральная извилина. У современного человека тут находится так называемый “двигательный человечек” – цепь полей, отвечающих за сознательные движения. Надо думать, контроль за своими движениями у неандертальцев был на высоте.
В теменной доле наиболее важным процессом было расширение. Хорошо можно проследить изменения в нижней теменной дольке, занятой множеством функций, сводящихся в целом к координации чувствительности руки со слухом, зрением и движениями, то есть, иначе говоря, – трудовой деятельностью, а также ориентацией в пространстве, в том числе на местности со сложным рельефом или, скажем, в лесу. Рельеф тут появляется как минимум у Homo erectus, а у неандертальцев достигает наибольшего развития.
Кстати, о картах… Понятно, что способности к ориентированию были еще у древесных приматов. Однако до сих пор неясно, когда и где люди научились выражать эту способность к абстрагированию особенным способом – в виде карт. На роль древнейших схем претендовали разные артефакты: с Киево-Кирилловской стоянки и Межиричей на Украине, Павлова, Пшедмости и Дольни-Вестонице в Чехии, из пещер Эль-Пендо и Льонин в Испании, Гаргас во Франции. Однако во многих или даже большинстве из этих случаев реальность “карт” весьма сомнительна. Поэтому особенно интересны гальки из испанской пещеры Абаунц (Utrilla et al., 2009). В слоях с позднемадленскими изделиями и датировками 13,66 тыс. лет назад были найдены несколько галек с замечательными гравировками. На камушках нацарапаны разные звери – олени, козлы, лошади и какие-то другие. Но исследователи обратили внимание на окружающие зверюшек полосы, загогулины и закорючки. На первый взгляд они довольно беспорядочны. Стало быть – нужен второй взгляд! Раскрасив линии на гальках в нужные цвета, сравнив их с реальной картой и местным пейзажем и слегка прищурившись, можно увидеть, что с большой вероятностью на камнях изображены именно схемы и виды: самая большая местная гора, речка под ней, кусты вдоль речки, даже место переправы, чуть ли не мостик. Ясно, что многие археологи настроены в этом отношении крайне скептически: если долго смотреть на гальки с царапинами, там можно увидеть что угодно. Но рисунки лошадей-то с оленями настоящие! Отчего бы кроманьонцы не могли заняться и картографией?..Височная доля мозга, как и прочие, эволюционировала неравномерно. Височная доля отвечает за многие вещи, но ее верхняя часть – в основном за слух. В задней части верхней височной извилины, на границе с теменной долей, расположена зона Вернике – слуховая зона речи. Показательно, что рельеф тут усилен уже у архантропов и крайне силен у неандертальцев.
Затылочная доля отвечает в основном за сознательное распознавание зрительных образов. Она долго и не спеша увеличивалась, но со времен раннего верхнего палеолита до современности существенно сократилась – как раз в основном этим обусловлено уменьшение мозга, о котором говорилось выше. Этот факт можно интерпретировать двояко. Либо зрение было намного важнее для людей каменного века (пишу я, поправляя очки на носу), либо поля, расположенные у нас в задней части теменной доли, у троглодитов занимали переднюю часть затылочной и лишь потом “переползли” вперед.
Минутка фантазии. Передняя часть височной доли, как гласит “Практикум по анатомии мозга человека” С. В. Савельева и М. А. Негашевой (2005), обеспечивает “контроль за храпом, кряхтением и икотой”, расположенный чуть выше и назад участок отвечает за “ритмические движения жевания, глотания, лизания и чмоканья”. Задняя же часть занята “агностическим слуховым полем”. Для неандертальцев более типичен вариант с большим развитием задней части, а для сапиенсов – передней. Возможно, стены неандертальских пещер по ночам сотрясались от кряхтения и богатырского храпа (бочкообразная грудная клетка тому порукой), а от икоты и смачного причмокивания с потолка сыпалась шуга. Ну не получалось у неандертальцев обуздать сии порывы – нейронов не хватало. Слышали же они при этом преотлично, плоская лобная доля не могла сдержать бурные эмоции, большая затылочная доля и рельеф ангулярной извилины позволяли найти храпуна в темноте пещеры, а результатом был кровавый мордобой. Выживали только индивиды с самым толстым черепом и мощными надбровными дугами. В пещерах же кроманьонцев царили тишина и покой: даже во сне они сдерживали храп и причмокивание, а посредственный слух оставлял соплеменников равнодушными даже к этим жалким всхлипам. Если же кому-то и не спалось, то высшая лобная ассоциативная зона позволяла держать себя в рамках приличия. Вероятно, сапиенсы прошли отбор на эти признаки в опасной африканской саванне, где лишние звуки привлекали леопардов, рыщущих в ночи. Неумолчный же тропический ночной гам – стрекот цикад, цоканье квакш и хохот гиен – слушать необязательно. Или же отбор был искусственным – союз рубила и хорошей координации движений гарантировал выживание только тихо храпящих и плохо слышащих… Все сходится!Стоит особо уточнить, что все рассуждения об эволюционной судьбе конкретных участков мозга довольно спекулятивны. Пупырышки и бугорки на эндокранах могут отражать рельеф черепа, а не мозга, или вообще быть следствием плохой сохранности. Многие могут с пренебрежением сказать: “Что это еще за френология в XXI веке?” Но у палеоневрологов есть три оправдания. Во-первых, это пока единственный способ изучать древние мозги, а для существ древнее миллиона лет наверняка так и останется единственным (палеогенетика столь далеко, думается, заглянуть не может, поскольку ДНК так долго просто не сохраняется). Во-вторых, антропологи изучают межвидовую изменчивость: если внутри вида конкретный рельеф обычно случаен и ничего не значит, то в масштабах отличия видов разница оказывается вполне уловимой и хорошо измеримой. В-третьих, антропологи обращают внимание не на каждый выступ на эндокране, а закономерно расположенный и подтверждаемый статистикой, а статистика у нас, слава археологам, уже достаточно представительная.
Уголок занудства. Множество эндокранов позволяет оценить детали эволюции мозга (дробышевский, 2012). Длина лобной доли в эволюции гоминид резко изменялась два раза: росла при переходе от австралопитековых к Homo erectus и уменьшалась с начала верхнего палеолита. Ширина достигла максимума у Homo neanderthalensis, после чего начала уменьшаться. Нижнелобная область в наибольшей степени увеличилась в промежуток времени от австралопитековых до Homo erectus (возможно, до “ранних Homo”, среди малой выборки которых имеются все варианты строения этой доли). Орбитная часть достигла максимальной выраженности у Homo neanderthalensis в виде бугров, сгладившихся в дальнейшем за счет роста соседних областей. В эволюции теменной доли наиболее важным кажется процесс неуклонного расширения (абсолютного или относительного) в области надкраевой извилины (передней части нижней теменной дольки). Темпы изменения ширины превосходили таковые длины и тем более высоты. Процессы преимущественного роста в длину и ширину сменяли друг друга. Важно отметить переменное преобладание темпов эволюции то лобной, то теменной доли. Теменная доля отвечает в основном за чувствительность и ориентацию в пространстве. Надкраевой (передний) участок нижней теменной дольки отвечает за чувствительность рук, определение на ощупь веса, формы, влажности, температуры и рельефа поверхности предметов, производит третичный высший анализ и синтез уже обобщенных и отвлеченных сигналов из соседних областей мозга, отвечает за интеграцию слуховых, зрительных и тактильных ощущений, координацию чувствительности и двигательной активности – трудовую деятельность, обеспечивает самоконтроль. Угловой (задний) участок обеспечивает ориентацию в пространстве и трудовые действия. Верхняя теменная долька отвечает за схему тела и интеграцию зрения с движениями всего тела. У височной доли возникли два основных варианта пропорций: первый – расширенный в задней части и удлиненный снизу (австралопитеки, некоторые “ранние Homo”, Homo erectus, европейские неандертальцы), второй – расширенный в передней части и удлиненный сверху (некоторые “ранние Homo”, Homo heidelbergensis, ранние ближневосточные палеоантропы, верхнепалеолитические и современные Homo sapiens). Заметно менялись размеры и пропорции височной ямки, очень широкой и мелкой у одних групп (массивные австралопитеки, часть “ранних Homo”, яванские Homo erectus или Homo heidelbergensis из Самбунгмачана, европейские неандертальцы) и глубокой и узкой у других (часть Homo erectus, ранние ближневосточные палеоантропы, верхнепалеолитические Homo sapiens). Размеры затылочной доли эволюционировали несинхронно: от австралопитековых до “ранних Homo” резко увеличилась ширина при сохранении длины; далее длина стала плавно увеличиваться, но вплоть до Homo erectus рост в ширину преобладал; после начали превалировать темпы увеличения длины, от палеоантропов к Homo sapiens ширина начала уменьшаться при сохранении длины. С верхнего палеолита до современности опять темпы изменения ширины, но теперь в сторону уменьшения, получили превосходство над темпами укорочения доли. При всех этих изменениях неуклонно увеличивалось преобладание верхней части доли над нижней. Мозжечок с самых ранних этапов вплоть до верхнего палеолита увеличивался, причем полушарие становилось относительно все длиннее и уже. С верхнего палеолита тенденция принципиально изменилась, и к современности все размеры уменьшились, а полушарие относительно расширилось.В целом австралопитеки имели почти обезьяний мозг, единственной прогрессивной чертой грацильных форм было некоторое удлинение теменной доли, а массивных – расширение и повышение всего мозга. У “ранних Homo” большинство признаков мозга оставалось на прежнем уровне развития, с поправкой на бóльшие размеры. Homo erectus – первые гоминиды, у которых сугубо обезьяньи черты мозга окончательно были вытеснены специфически человеческими: появились прогрессивные черты лобной и теменной долей, упомянутые выше; мозг преимущественно расширился. Homo heidelbergensis – очень неоднородная группа, среди них самыми прогрессивными были африканские и европейские формы, а Ява была местом, где жили самые дремучие и специализированные люди. Особенно преуспели гейдельбергенсисы в высоте лобной доли, а ее расширение обгоняло расширение всего мозга. Теменная доля, особенно область надкраевой извилины, прогрессировала настолько резко, что мы можем надежно отличать этот вид от предыдущего по ее размерам (редкий пример, когда признак на эндокране оказывается важнее признака на черепе). Височная доля у гейдельбергенсисов уже почти современная, а затылочная с мозжечком, напротив, не отличаются от варианта Homo erectus.
Неандертальцы имели самый широкий мозг из всех известных для гоминид и самую большую затылочную долю, тогда как лобная и теменная были относительно невелики и заметно уплощены, хотя и с описанным выше рельефом, а височная почти не отличалась от нашей.
Ранние кроманьонцы еще сохраняли в строении мозга некоторые архаичные черты, например увеличенные размеры затылочной доли. Причем такая архаика продержалась до достаточно поздних времен – как минимум до 28 тыс. лет назад. То есть от трети до половины времени существования нашего вида (а сапиентность определяется в основном по внешним признакам черепа) мозг был еще не вполне сапиентным. Но в целом мозг кроманьонцев отличался от нашего в основном лишь несколько большими размерами при уже современных пропорциях.
Минутка фантазии. В мире животных есть простое правило: чем сильнее вооружен вид, тем лучше у него отлажен врожденный ритуальный контроль за агрессией. Скажем, когда дерутся два волка, проигравший подставляет горло – самую уязвимую часть – победителю, тот изображает укус и на этом битва заканчивается. Реально никто никого не убивает, иначе вид бы быстро вымер. Если же дерутся два хомячка, они запросто могут поубивать друг друга, у них нет подобных рыцарских ритуалов. Неандертальцы были очень мощными и сильными, поэтому логично, что они должны были как-то ограничивать свою агрессию. Вместе с тем лобная доля, обеспечивающая сознательный контроль над порывами души, была у них приплюснутой и относительно не слишком большой. А вот запредельная ширина мозга неандертальцев может означать мощное развитие подкорковых центров – ядер полосатого тела и в целом лимбической системы. А одна из важнейших функций этих центров – подсознательный (читай: инстинктивный) контроль за эмоциями. Так может, при драках неандертальцы тоже “подставляли горло” (а может, даже и без кавычек)? И вот в Европу приходят кроманьонцы – прагматичные ребята с креативным мышлением, но не такие мускулистые, а стало быть, с неразвитой врожденной программой “не бей лежачего”. Грядет борьба за ресурсы, гром сраженья раздается, технически продвинутые кроманьонцы теснят неандертальцев, у тех срабатывает врожденный защитный механизм, они подставляют прытким супостатам горлышко или пузико, ожидая инстинктивной – безусловной – милости… Но у кроманьонцев нет нужного тумблера в лимбической системе, они радостно колют сдавшихся на милость своими высокотехнологичными гарпунами и осваивают захваченные земли…С изменениями мозга тесно связаны изменения поведения, хотя найти уникальные черты в поведении человека не так-то легко.
Крупный мозг дает преимущества в выживании, потому что позволяет решать нестандартные задачи. Приматы пошли по этому пути дальше прочих животных, а человек – дальше всех приматов. Люди – большие спецы по преодолению форс-мажоров. Они могут действовать нестандартно, обманывая как своих жертв, так и врагов, функционирующих по строгой программе. Поскольку задачи стали бесконечно разнообразны, нашим предкам уже не хватало мозга кошачьего размера, вот он и вырос.
Поведение человека в значительной мере обусловлено обучением и воспитанием, генетически наследуемых форм поведения у человека минимум, а сложных врожденных нет и в помине. Без обучения человек не формируется психически нормальным. Без культуры и общества человек не может полноценно существовать, что наглядно демонстрируется печальными примерами людей-маугли, выросших вне коллектива. Впрочем, сами способности и стремление к обучению заданы генетически, так что не стоит недооценивать врожденную составляющую поведения человека. В настоящее время генетики ведут активный поиск генов, определяющих интеллектуальные способности, уровень агрессии и асоциального поведения, способности к изучению языков и многого другого.
В целом весь этот комплекс можно определить как устойчивую внегенетическую межпоколенную передачу информации, без которой особи не существуют. Время его формирования невозможно определить точно, но, видимо, человеческие очертания он приобрел с момента начала активного изготовления орудий, что явно требовало длительного обучения.
С шимпанзе и гориллами дело обстоит вроде бы так же – без воспитания и общения они не могут вырасти нормальными. Однако есть одна тонкость. У обезьян не так уж много форм поведения, специфичных для отдельных групп, причем от таких особенных навыков они не зависят принципиально. У разных групп шимпанзе есть своего рода культуры – самые дремучие не используют никаких орудий, другие умеют только ловить термитов палочками, третьи – колоть орехи кола камнями, четвертые кладут при этом орехи на наковальню, пятые подпирают наковальню дополнительным камешком, шестые умеют и ловить термитов, и колоть орехи… Эти навыки не врожденные, они могут переноситься из группы в группу с умелыми особями, а детенышам передаются исключительно путем обучения. Но без них можно жить, обходясь общешимпанзиными ценностями.
Человек обладает еще одним уникальным свойством – способностью обучать и вообще обеспечивать связь поколений за счет передачи информации на искусственных носителях в виде, например, письменности. Этот признак человека совсем не обязательный (письменность была создана недавно и до сих пор есть не у всех народов), скорее это побочный эффект, зато сугубо специфичный, а потенциальные способности к обучению чтению и письму есть у всех людей.
Человек не только использует, но и изготовляет орудия труда. Шимпанзе и некоторые другие животные тоже способны на это, но далеко не в человеческих масштабах и, опять же, не зависят от этой способности. Шимпанзе могут размусолить зубами палочку для ловли термитов, но могут всю жизнь прожить, ни разу не занявшись этим благородным делом. Древнейшие каменные орудия известны в местонахождении Гона в Эфиопии с датировкой 2,6–2,7 млн лет назад, а в Ломекви – 3,3 млн лет назад, их сложность уже запредельна для обезьяньего разума. Все современные люди однозначно зависимы от искусственно изготовленных (хотя бы и не собственноручно) орудий. Без них человек перестает быть человеком, это наша странная специализация, примерно такая же, как зависимость муравья от муравейника.
Человек активно использует небиологическую энергию. Неизвестна ни одна группа сапиенсов, которая бы не использовала огонь. Иногда приходится читать, что где-то на краю Земли якобы есть дикие племена, не умеющие добывать “красный цветок”. Особенно не повезло с такой славой тасманийцам и огнеземельцам. Но этнография однозначно свидетельствует, что они знали даже несколько способов возжигания пламени. Другое дело, что в сыром туманном климате это дело хлопотное, так что проще пойти и занять уголек у соседей. Но если у них с этим тоже были проблемы, то куда деваться – приходилось и тасманийцам, и огнеземельцам добывать искры в поте лица своего.
Впрочем, свойство использовать небиологическую энергию, как ни странно, тоже не полностью уникально. Примеров множество. Самые банальные примеры – бактерии-хемотрофы, скажем использующие энергию неорганических реакций в серных источниках. Правда, это может показаться чересчур уж отдаленной аналогией. Тогда пожалуйста, есть жуки-пожарники, питающиеся животными, погибшими при пожаре, – чем не использование огня? Есть виды сосен, семена которых прорастают только и исключительно после обгорания в низовом пожаре. Конечно, ни жуки, ни сосны не могут сами развести костер, так что человеческий вариант огнезависимости действительно по-своему уникален.
Древнейшие следы использования огня, иногда даже с выкладками камней вокруг очага, обнаружены в Африке в местонахождениях Гомборе I (Эфиопия) 1,6–1,7 млн лет назад, Кооби-Фора FxJj20E (Кения) 1,4–1,6 млн лет назад и Чесованжа GnJi1/6E (Северная Кения) 1,375–1,46 млн лет назад.
Человек сознательно и целенаправленно модифицирует среду своего обитания, чего не делает ни одно животное. Этот признак человеческого поведения сформировался, видимо, позже всех, как результирующая использования орудий и преобразования энергии в начальной форме – с охотничье-собирательским образом жизни примерно с 2,5 млн лет назад, в выраженной форме – с освоением огня около 1,5 млн лет назад, а в законченной характерен уже только для обществ с производящим хозяйством со времени около 12–10 тыс. лет назад, когда распашка, ирригация, вырубание лесов и капитальное строительство стали катастрофически преображать лик Земли. Полвека назад люди добрались и до космоса.
Меняют и, более того, разрушают свою среду обитания так или иначе все виды. Всем известны достижения бобров и термитов. Белки грызут орехи, так что те больше никогда не прорастут, слоны расковыривают баобабы, лошади и коровы способны загадить любой луг так, что невозможно пройти, овцы выжирают все до корней включительно… Другое дело, что у животных обычно не хватает численности и целеустремленности для достижения коллапса такого масштаба, какой способен организовать человек. К тому же животные чаще ограничиваются уничтожением лишь одного какого-то особо любимого ими ресурса, тогда как люди подходят к делу куда как более основательно. Люди заняли все экологические ниши и стали сверхконкурентами для всех живых существ, включая бактерий. Насколько хватит запаса прочности у биосферы?..
Тело человека от докембрия до наших дней (история в четырнадцати звеньях с прологом и эпилогом). Часть третья, масштабная, в коей широкой (местами малярной) кистью живописано эпичное полотно эволюции и поведано, откуда растут ноги у рук, где у нас жабры и отчего в автобусах поручни наверху.
Пролог. Начало цепи: появление жизни и первых клеток.
Гоминидной триадой специфика человека, конечно, не ограничивается. За миллионы лет до того, как по Африке пошла гулять двуногая обезьяна, ее особенности были предопределены жизненными нуждами бесчисленных предков – от первых бактерий и даже раньше.
Начинать долгий путь к человеку надо, по большому счету, с Большого взрыва, определившего фундаментальнейшие свойства нашей Вселенной. Не помешало бы повести речь и о первых звездах, посмертно снабдивших нас всеми элементами тяжелее гелия, ведь из одних водорода да гелия много не намастеришь, разве что еще одну звезду. Нелишним было бы поведать об особенностях нашего Солнца, Юпитере – щите от комет и астероидов, а также об уникальных свойствах Земли, ее расположении, железном ядре и магнитном поле, оберегающем нас от космической радиации, о приобретении воды и рождении океанов, полужидкой мантии и дрейфе континентов, о Луне, ведающей приливами и отливами… Но это увело бы нас слишком далеко от темы, а я не чувствую себя слишком компетентным в космогонических вопросах, так что Читатель может узнать об этих интереснейших гарантах нашего появления, существования и развития из других книг.
Мы же начнем с собственно зарождения жизни. Старт был задан в начале архея, 3,7–3,8 млрд лет назад. Строго говоря, пока никто точно не может сказать, как возникла жизнь (современное состояние вопроса: Кунин, 2014). Но ее следы мы можем найти даже в межгалактических облаках в виде аминокислот. Трудно сказать, были ли занесены “споры жизни” из холодных глубин Вселенной, как считают некоторые. В принципе, среда на первичной Земле была вполне подходящая, и спонтанное образование даже не самой простой органики было продемонстрировано в экспериментах с воспроизведением условий, царивших на нашей планете примерно 4 млрд лет назад. Ныне многие биологи склоняются к концепции “РНКового мира” и молекулярной эволюции. Согласно ей, довольно долго органические соединения спонтанно возникали и разрушались, но самые устойчивые из них сохранялись, и шел своего рода отбор на устойчивость химических молекул. Зарождение жизни можно начинать отсчитывать с появления самоподдерживающегося комплекса РНК и белков. Поэтому жизнь можно определить, вслед за К. Ю. Еськовым (2007), как “автокаталитические системы высокомолекулярных соединений углерода в неравновесных условиях”.
Важнейшее свойство РНК – изменчивость. Эта молекула велика, она может меняться в мелочах, что необязательно критично сказывается на общей устойчивости, но модифицирует частные свойства. На примере кристаллов мы видим, что без изменчивости может быть рост и даже размножение, но нет развития. Кристаллическая решетка может быть несколько искажена (если, например, кристалл упирается в препятствие), но из “поколения в поколение” будет воспроизводиться по одному извечному шаблону. РНК же, а впоследствии ДНК за счет размера и сложности дают возможность почти бесконечной вариабельности.
Древнейшие осадочные породы и древнейшие следы жизни обнаружены в отложениях Исуа в Гренландии с датировкой 3,7–3,8 (а возможно, даже 3,86) млрд лет назад. От этих времен нам достались основные способности адаптации, диапазон условий, в которых мы можем жить, – температурных, кислотных, зависимость от воды, даже предельные размеры клеток, которых тогда еще не было.
Собственно, клетка – это важно. Можно определять жизнь как автокаталитические системы, функционирующие за счет градиента условий внутри и снаружи. А границей между “внутри” и “снаружи” явилась клеточная мембрана. РНК с белками, окруженная липидной мембраной, – это уже клетка. За счет перепада концентрации веществ по обе стороны мембраны обеспечивается метаболизм – обмен веществ, а также обмен информацией. Могут ли быть неклеточные формы жизни? Это вопрос вопросов. Мы знаем лишь наш вариант.
Древнейшие клетки известны из архея: первые цианобактерии и даже их сообщества – строматолиты – найдены в отложениях Южной Африки и США и имеют возраст 3,55 млрд лет. Надо думать, примерно тогда же появилась ДНК, оказавшаяся более устойчивой и надежной, чем РНК.
В принципе, с возникновением бактерий и, более того, автотрофных бактерий эволюцию живого мира можно считать завершенной. С энергетической и обменной точки зрения это так: ведь если сейчас с планеты убрать всех эукариот – организмы с клеточным ядром, – то энергобаланс планеты изменится лишь в пределах погрешности. Все, на что мы склонны обращать максимум внимания – слоны, бизоны, секвойи, водоросли, кукушки, пчелы, – все это незначительная пыль и мимолетное отклонение от основной биомассы – бактерий. Но мы эгоцентричны, поэтому нам кажется, что самое интересное – впереди, ведь впереди – мы…
Глава 6. Звено 1: появление клеточного ядра. (протерозой, 1,9±2,4 млрд лет назад).
Первые ядерные организмы – эукариоты – возникли 1,9–2 млрд лет назад. Одной из наиболее аргументированных гипотез является симбиотическая. Собственно, симбиоз оказался итогом несварения: одна клетка глотала другую, но не растворяла, а использовала в мирных целях. Видимо, ядро было когда-то археей, а из бактерий получились митохондрии.
Ядро – очень важный элемент клетки. Оно защищает ДНК, что повышает надежность сохранения информации и дает возможность разнообразить биохимические процессы. В цитоплазме бактерий ДНК неуютно, злые ферменты того и гляди норовят порвать ее в клочья. Кроме прочего, ДНК – это кислота, так что реакции с образованием щелочей бактериям противопоказаны, иначе ДНК нейтрализуется и выпадет в виде соли. Да и вообще, много ли проведешь противоречащих друг другу реакций в одной тесной бактериальной клетушке? Поэтому и ДНК у бактерий обычно маленькая, много генов ей и не надо. И форма у нее кольцевая – так ферментам труднее ухватиться, нет кончика, с которого бы можно было начать есть бедную молекулу. Но опять же кольцо не сделаешь слишком длинным – вырастет вероятность разрыва.
Другое дело в ядре! Любо там, тишь, благодать, примиренье. ДНК надежно спрятана за ядерной мембраной. Теперь ее можно раскольцевать в длинные хромосомы, а их самих напихать в клетку сколько душе угодно (у папоротника-ужовника их 1260 в каждой клетке). Беспрецедентное увеличение генетического материала позволяет ввести в эксплуатацию новые, невиданные доселе обменные процессы, усложнить их, что в будущем станет залогом сначала колониальности, а после и многоклеточности.

Рис. 6. Эукариотическая клетка с ядром и митохондриями.
Все опасные обменные процессы идут снаружи, в цитоплазме, да еще разнесены по отдельным пузырькам. С этого момента в полные права вступает “пузырькование”; через это странное слово можно определить всю сущность жизни. Жизнь как пузырькование пузырьков в пузырьках, емкостей, без конца вдавливающихся друг в друга и выпучивающихся наружу: на уровне клетки, эмбриональных бластул и гаструл, мозговых пузырей и зачатков органов чувств, трофобластов, амнионов и желточных пузырьков, мозговой, грудной и брюшной полостей, полых внутренних органов и даже вне организма – нор, гнезд и домов. Но стоп! Мы забежали слишком далеко вперед. В протерозое дело ограничилось лишь ядром и митохондриями.
ДНК эукариот защищена ядерной мембраной от вторжения извне – вирусов и горизонтального переноса генов от других организмов, что можно рассматривать как прогресс, так как позволяет сохранить свое “я”. Но изменчивость бактерий – в своем роде залог их успеха, благодаря ей они могут очень быстро приспосабливаться к новым условиям. Получив стабильность, мы – эукариоты – утеряли пластичность.
Митохондрии синтезируют АТФ, что дает огромные энергетические возможности. Энергию можно запасать по-разному: в жирах, углеводах, белках, но АТФ – лучшая батарейка, хотя и недолговечная. Первые эукариоты, поглотившие бактерий, умевших синтезировать АТФ, получили такое преимущество, что все другие тут же проиграли эволюционную гонку. Сейчас на планете нет организмов, живущих без АТФ. Правда, остается под вопросом, существовали ли предки эукариот, не умевшие синтезировать АТФ, или они утеряли эту способность, положившись на новообретенные генераторы. В любом случае из поглощенных бактерий получились митохондрии, у них и до сих пор имеется бактериальная кольцевая ДНК и собственные рибосомы, они делятся самостоятельно и живут как внутриклеточные симбионты, причем в одной нашей клетке их может быть до двух тысяч. Но часть своих генов они сдали на хранение в более надежное ядро, так что теперь не так легко понять, где граница между собственно нами и нашими жильцами. Обретение митохондрий преобразило жизнь эукариот, благодаря им мы можем активно двигаться. Например, ими насыщена красная скелетная мускулатура, скажем прямые мышцы спины, держащие нас вертикально. Иначе говоря, метаболические нужды протерозойских одноклеточных обеспечили наше прямохождение.
Глава 7. Звено 2: аэробная атмосфера – многоклеточность и твердые части тела. (поздний протерозой и ранний кембрий, 850–540 млн лет назад).
Докембрийский мрак скрывает много тайн. Как возникли первые нервные клетки? Как появилось разделение на два пола? Слишком много гипотез, слишком мало фактов. Но все же о некоторых вещах мы можем говорить достаточно уверенно.
В катархее, архее и начале протерозоя в атмосфере было много углекислого газа, метана, сероводорода, аммиака и водяных паров, но почти не было кислорода. Примерно 2,5 млрд лет назад или даже раньше цианобактерии начали производить свободный кислород, но он поглощался горными породами и шел на образование озонового слоя. Кстати, спасибо им за это, без него нам было бы нелегко, ведь озоновый слой защищает нас от космической радиации. Ко времени 850–600 млн лет назад упорные цианобактерии нафотосинтезировали катастрофически много кислорода и отравили им всю атмосферу (справедливости ради надо сказать, есть версия, что кислород сам высвободился из мантии Земли, без помощи бактерий). Для преобладавших в тогдашних экосистемах анаэробов (организмов, живущих в бескислородной среде) кислород был страшным ядом. По всей видимости, это привело к глобальному вымиранию. Приятно сознавать, что не только человек способен так загадить окружающую среду, что потом сам не может в ней жить. Мы же – потомки тех редкостных протерозойских аэробов, которые поначалу с трудом привыкали к ужасному яду в недрах цианобактериальных матов, зато потом попали просто в райские условия.
Кислородный обмен – хорошая вещь. С его помощью можно получать гораздо больше энергии, чем при анаэробном существовании. А с помощью этой энергии можно делать новые чудесные вещи, например увеличивать размеры тела и синтезировать новые вещества. В большей клетке можно хранить большее количество ДНК, а за счет этого усложнить свое строение.
В числе прочего появляется возможность стать многоклеточным. Жить толпой надежней и веселей, неспроста еще на уровне бактерий совершались попытки в этом направлении. Но истинно многоклеточное существо внутренне противоречиво. С одной стороны, все его клетки содержат одинаковую генетическую информацию, с другой – работать в разных клетках она должна по-разному. Основная проблема возникает с размножением. С появлением многоклеточности в мире появились дряхлость и смерть. Одноклеточные не умирают от старости – они могут погибнуть лишь от случайности, голода или хищника. Главная цель любой приличной клетки – стать двумя клетками, жить вечно. Даже если такие организмы соберутся в кучку и станут как-то общаться между собой, они еще не станут многоклеточным организмом, их можно назвать лишь колонией – бесформенной кучей одиночек-эгоистов. В истинно многоклеточном общежитии нужен строгий контроль за размножением, большинство клеток гарантированно умрут, а потенциальным бессмертием обладают лишь гаметы – половые клетки. Убедить рядовую – соматическую – клетку не размножаться, а жить и добровольно сгинуть для обеспечения бессмертия гаметы очень трудно, для этого нужно много сложных генов (притом что гены во всех клетках одни и те же), а их можно хранить лишь в большой клетке с ядром. Поэтому бактерии так никогда и не смогли стать многоклеточными, а некоторые эукариоты таки преодолели сложность.
Правда, и у многоклеточных бывают рецидивы, когда клетка “вспоминает”, что она свободна, никому ничего не должна и может делиться сколько влезет – тогда возникает рак. Причина – мутация, поломка генов-ограничителей, держащих эгоизм в узде.
Получив многоклеточность, мы стали большими и сложными, но потеряли индивидуальное бессмертие, да еще получили в нагрузку шанс умереть от собственных клеток, стремящихся к бессмертию. Адекватна ли цена?..
Многоклеточность бывает разная. Первые опытные образцы, судя по современному трихоплаксу Trichoplax adhaerens, больше напоминали кляксу. Потом тело стало шариком; затем оно завернулось кувшинчиком, причем двухслойным – это уровень кишечнополостных и плоских червей. Но такая форма имеет маленький недостаток: вход и выход из пищеварительной системы – это одно и то же отверстие. Стало быть, нельзя есть непрерывно, а ведь хочется! Более того, такой пищеварительный тракт невозможно дифференцировать на части. Посему величайшим достижением неких протерозойских животных стало обретение анального отверстия. Тело преобразовалось из кувшина в трубку (каковой и пребывает доселе), теперь стало возможно лопать сколько влезет, а пищеварительный тракт – подразделить на сегменты: глотку, пищевод, желудок, переднюю кишку, заднюю кишку. Конечно, не все эти отсеки возникли одновременно, но главное было начать. А в разных отделах можно выделять разные ферменты, переваривать разные вещества, лучше их усваивать, а через то – повышать обмен веществ.
История возникновения пищеварительной системы каждый раз повторяется в нашем эмбриогенезе: сначала из бластулы впячиванием стенки внутрь образуется гаструла с одним отверстием – бластопором – наружу и полостью – гастроцелью – внутри, будущей пищеварительной системой. Фактически это уровень гидры или медузы. Потом с противоположной бластопору стороны вдавливается второе отверстие и соединяется с гастроцелью – это уровень круглых червей (условно, конечно). Человек – тоже трубка. Из сего, кстати, следует интересный казус: полость пищеварительной системы – это на самом деле внешняя среда по отношению к человеку, а бактерии-симбионты, сидящие в нашем кишечнике, сидят в реальности снаружи от нас. Они и рады бы стать паразитами, да иммунная система внутрь не пускает. Потому же так просто решается загадка, столь мучащая многих школьников, постигающих анатомию: почему многие железы внешней секреции открывают свои протоки в желудок и кишечник? Вроде же они внутри человека? На самом деле протоки открываются вполне себе наружу, просто “наружа” завернута в нас и даже проходит сквозь нас.
Кстати, о ртах… Многоклеточные животные в первом приближении делятся на две масштабные группировки – первично– и вторичноротые. К первым относятся, например, моллюски и членистоногие, ко вторым – иглокожие и хордовые. У первичноротых отверстие, появляющееся у гаструлы, становится в последующем ртом, а возникающее позже – анальным. У вторичноротых все наоборот, первым закладывается именно анальное отверстие. Долгие годы зоологи и эмбриологи спорили: свидетельствует ли такая разница о независимом происхождении этих групп, или она второстепенна. Точку в дискуссии поставило открытие Hox-генов – особого семейства генов, определяющих закладку переда, середины и зада. Оказалось, что эти гены мало того что весьма схожи от червей до человека, так они еще и жутко консервативны. Различия же первично– и вторичноротых определяются только разницей в последовательности формирования в общем-то одинаковых частей. Мы начинаем формироваться сзади наперед, а мухи – спереди назад. Конечно, эмбриологи не могли удержаться и не поиграться с включением-выключением Hox-генов; идеальные для этого объекты – дрозофилы, ведь им от жизни надо немного, они выживают даже при довольно серьезных нарушениях эмбриогенеза. Так вот, если выключить определенный Hox-ген, отвечающий за формирование третьего сегмента груди с последними ножками и жужальцами, то срабатывает другой ген, третий сегмент развивается по образцу второго и получается четырехкрылая муха. Теоретически, если включать гены лишний раз, можно вывести и мушиную многоножку. Если запустить первый Hox-ген и спереди, и сзади, должен получиться дрозофилий Тянитолкай с двумя головами с обеих сторон. Иногда такие нарушения возникают сами собой, и не только с Hox-генами, но и другими, отвечающими за верх-низ, право-лево, конечности, глаза и прочие части тела. Тогда могут рождаться сиамские близнецы, двухголовые, трехрукие и прочие подобные индивиды. Это, ясно, явная патология, но между нормой и патологией грань, как ни странно, очень туманная, так что эволюция подобных регуляторных генов была главным движителем эволюции, ответственным за появление частей тела, отделов черепа и позвоночника, формирование грудной клетки и конечностей, а также всего прочего, чего в протерозое еще не было, но что было вот-вот готово появиться. Существуют и другие гены, необычайно похожие у первично– и вторичноротых, до того, что после пересадки гена PAX6 от мыши к мухе чужие гены продолжили работать и дали правильный результат! У мухи с мышиными генами стали появляться дополнительные глаза, причем не мышиные, а фасеточные, ведь гены PAX6 сами не определяют форму и строение органов, а лишь запускают другие нужные в данном месте тела гены.Большая часть протерозойских живых существ жила в воде, причем в верхнем слое, так как их собственные остатки делали воду мутной, отчего в нижних слоях было слишком темно, чтобы там могли жить водоросли, так что у дна кислорода фактически не было. Да и в верхнем слое кислорода было не слишком много, ведь от солнца вода нагревается, а в теплой воде газы растворяются плохо (для проверки этого тезиса достаточно согреть бутылку газировки).
Некоторое время спустя, в начале кембрия (542 млн лет назад), появились эффективные планктонные фильтраторы, что-то вроде нынешних рачков. Они ели органическую муть, плавающую в толще воды, и склеивали ее в виде пеллетов, быстро падавших на дно. От этого мутность воды снизилась, а водоросли смогли жить в более глубоких водах. Около дна увеличилось содержание кислорода, так что и эта часть планеты стала доступной аэробам. И тут произошел прорыв!
Увеличение размера клетки ограничено прочностью клеточной мембраны, иначе клетка растечется или даже лопнет. Надо как-то укреплять границы. Можно нарастить толстую клеточную стенку, как сделали растения и грибы. Но она ограничивает подвижность – трудно бежать, когда ты дерево. Можно нарастить внеклеточную оболочку вокруг всего тела, например хитиновый панцирь членистоногих. Но это в любом случае тяжелая штука, тянущая на дно, где утонувшие задыхались без кислорода. Пока у дна условия были анаэробные и царила тьма, там могли жить лишь чудаковатые хемосинтетики-анаэробы, а животные и растения не могли стать большими и прочными. Когда же около дна появился кислород, проблема исчезла и перед живыми существами открылись невиданные доселе перспективы. Дальше дна не провалишься. Теперь стало возможным ползать по субстрату, становясь сколь угодно большим и тяжелым. Унылое и безжизненное доселе дно повеселело, расцвело и зашевелилось. Реализация открывшихся возможностей известна как “кембрийская революция”. Собственно, так палеонтологи с геологами и различают слои докембрия и кембрия: в первых мы не видим крупных животных с твердыми покровами, а во вторых их полно. Долгое время “кембрийский взрыв” был загадкой для ученых. Получалось, что мшанки, кораллы, моллюски, брахиоподы, трилобиты и прочая членистоногая нечисть возникли ниоткуда. В реальности их предки жили уже в докембрии, но имели микроскопические размеры и зачаточные твердые покровы.
В венде – преддверии кембрия – существовали и сравнительно крупные существа, но все они были бесскелетными, а потому их отпечатки сохраняются крайне редко. Самый известный их пример – эдиакарская фауна, сборище фантастических тварей инопланетного облика, лишь малая часть коих имеет родство с современными животными.
Так скажем же спасибо безымянным героям – докембрийским цианобактериям и кембрийским фильтраторам – за наши кости, зубы и ногти, прочность и стойкость, улыбку и прическу, маникюр и педикюр.
Кстати, о морозе… В конце протерозоя грянуло Лапландское оледенение. Уже одно его название должно нагонять страху на нас, тропических зверей. Но хуже того, оно действительно было самым сильным за всю историю планеты. Земля чуть ли не целиком была скована льдами, а жизнь висела на волоске. Расчеты показывают, что полное покрытие планеты снегом и льдом чревато необратимым остыванием: большая часть доходящего от Солнца тепла будет отражаться обратно в космос, а оставшегося не хватит на растапливание ледников. Если бы такой печальный сценарий реализовался, еще неизвестно, смогли бы выжить хоть какие-то организмы. Наша Земля могла превратиться в аналог Марса. С другой стороны, не исключено, что именно похолодание сыграло положительную роль, так как в холодной воде кислород растворяется лучше; недаром именно арктические и антарктические моря особо богаты жизнью – водорослями, рачками, рыбами и китами.Глава 8. Звено 3: хорда, трубчатая нервная система и зрение. (ранний кембрий, 530–535 млн лет назад).
Враннем кембрии в палеонтологической летописи появляется множество новых животных, в том числе первые хордовые. Некоторые из них так примитивны, что далеко не все палеонтологи признают их принадлежность к хордовым. Например, Haikouella lanceolata и Yunnanozoon lividum, жившие 520–525 млн лет назад в Китае, внешне похожи на ланцетника, но в деталях очень уж от него отличны. Например, наличие у них хорды и жаберных дуг сомнительно, а расположенные на спине сегменты могут быть не миомерами – мышечными сегментами, а членистой кутикулой – плотной защитной оболочкой. Как бы то ни было, подобные существа совершенствовались, и развитие мы видим в лице Pikaia gracilens из среднего кембрия (505 млн лет назад) Канады. У пикайи кутикула погрузилась внутрь и стала “спинным органом”, своеобразным заменителем хорды, хотя и истинная хорда тоже имелась (Conway Morris et Caron, 2012). Была у нее и нервная трубка, а также настоящие миомеры, но хватало и странностей: жабры наружные и ветвящиеся, а на голове красовались длинные усики. Бóльшую датировку, но и более продвинутое строение имеет Haikouichthys ercaicunensis из нижнего кембрия (530–535 млн лет назад) Китая. Он уже обладал настоящими жаберными дугами и глазами. Наконец, 500–515 млн лет назад в Канаде мы обнаруживаем уже “прорыбу” Metaspriggina walcotti, у которой пока нет плавников и почти нет черепа, зато есть орган обоняния и глаза. Современным аналогом являются ланцетники Branchiostoma, одиннадцать видов которых населяют ныне прибрежные зоны морей всего мира.
Таким образом, в первые миллионы лет кембрия формируются хордовые, типичными признаками которых являются хорда и нервная трубка, а приятным дополнением – глаза.
Хорда – эластичный штырь, идущий вдоль тела хордовых, который служит опорой телу в целом и мускулатуре в частности. Вероятно, хорде предшествовал “спинной орган” пикайи, который выполнял примерно ту же функцию, а сам образовался из спинной кутикулы, но эта гипотеза пока не может считаться полностью обоснованной. Правда, у большинства позвоночных (то есть высших хордовых) хорда имеется только в эмбриональном состоянии, зато вокруг нее образуется позвоночник. У нас ее остатки можно видеть внутри межпозвоночных хрящей.
Наружный панцирь членистоногих – экзоскелет – красив и прочен, надежно защищает от всяких невзгод, но тяжел и негибок. Если мы будем увеличивать, скажем, жука до размеров собаки или коровы, то толщина хитина при сохранении прочности должна увеличиваться такими темпами, что вес панциря будет совершенно неподъемным. Самая же главная проблема с экзоскелетом – ограничение роста. Когда хитин застывает, то не дает возможности увеличиваться. Можно, конечно, наращивать новые членики в длину, но для приличного роста приходится линять. А линяющее членистоногое крайне уязвимо, его всяк готов обидеть. Едва ли не большинство смертей таких животных происходит именно во время линьки.

Рис. 7. Pikaia gracilens (а), Haikouichthys ercaicunensis (б), Metaspriggina walcotti (в) и ланцетник (г).
Внутренний скелет лишен этих недостатков, с ним можно расти сколько угодно, а его собственный вес увеличивается далеко не такими темпами, ведь хорда имеет вид палки короче и тоньше животного, а не изогнутой пластины длиной и шириной больше животного. Для свободно плавающего существа, к тому же регулярно втыкающегося в песок, схема с хордой самая подходящая. Впрочем, на уровне первых хордовых выгоды внутреннего скелета были далеко не столь очевидны, как может показаться с нашей точки зрения. Ведь хищники имели хелицеры, радулы и прочие колюще-режущие штуки, которыми так легко покромсать мягкое тельце вкусного хордового, и никакая внутренняя хорда не сможет этому помешать. Кто бы мог подумать в начале кембрия, что из столь уязвимого создания вырастет гроза природы? К счастью, тогда никто не мог подумать, ибо мозгов еще не было. Но они появлялись…
Нервная трубка – великое достижение. У большинства мало-мальски продвинутых беспозвоночных нервная система состоит из ганглиев – кучек нейронов, связанных между собой пучками аксонов вдоль и поперек. У вытянутых животных она приобретает вид лестницы, отчего называется лестничной. У такой системы есть существенный недостаток: при увеличении объема ганглия клетки, находящиеся в его глубине, перестают получать достаточное снабжение, потому что все вкусное забирают нейроны, расположенные на поверхности. Можно, конечно, увеличить число ганглиев, вытянув тело. Скажем, немертины Lineus longissimus могут достигать 60 м длины! Сложность системы от этого, однако, не увеличивается, ведь все ганглии одинаковы. Насекомые решили эту проблему, обзаведясь грибовидными телами – похожими на поганки выростами мозга; за счет вытянутой формы их площадь довольно велика, и они выполняют роль коры мозга.
Но хордовые превзошли всех. Их нервная система представляет собой трубку, опутанную снаружи кровеносной системой, а изнутри заполненную спинномозговой жидкостью, которая образуется все из той же крови и выполняет сходные функции. То есть обмен веществ поддерживается и снаружи, и изнутри. Стенки трубки сразу можно сделать вдвое толще, а если раздуть это все пузырями, а пузыри потом покрыть бороздами, то объем нервной ткани можно увеличивать если и не до бесконечности, то уж точно до огромных величин. Правда, у кембрийской пикайи и современного ланцетника эти потенциальные возможности еще не реализованы, но главное – задатки. Хордовые, жившие полмиллиарда лет назад, строго говоря, не имели никаких интеллектуальных преимуществ перед тогдашними членистоногими, но именно благодаря их нервной трубке написаны эти строки, а Читатель может их прочитать.
Каким именно способом из ганглиозной системы получилась трубчатая, не вполне ясно. Интригует тот факт, что у нехордовых беспозвоночных нервная система расположена на брюшной стороне, ниже пищеварительной системы, а у хордовых – на спинной. Как из первой системы сформировалась вторая – загадка. Есть несколько интересных предположений. Например, некие предки хордовых могли перевернуться на спину и начать плавать кверху пузиком. Также они могли освоить жизнь на боку, подобно современной камбале (которая, сама повернувшись на бок, то ли вернулась в исходное положение, то ли окончательно перевернулась), из двух цепочек ганглиев одна исчезла, а вторая несколько сместилась и оказалась над кишечной трубкой, что у уплощенного животного не требовало больших перестроек. В пользу второй версии свидетельствует, например, асимметрия личинки ланцетника: она заметно перекошена, примерно так, как и должно быть искажено лежачее на боку существо. А лечь на бок предки хордовых могли в силу своего придонного образа жизни, тут аналогия с камбалой просто напрашивается.
Конечно, проблема возникновения нервной системы далеко не решена (Holland, 2015). Ведь на самом деле среди вторичноротых есть довольно различающиеся ее варианты. Интригует тот факт, что нервная система хордовых была, вероятно, исходной, примитивной, а полухордовые и иглокожие в этом случае оказываются эволюционно продвинутыми. Что ж, надо признать, мы взобрались по лестнице эволюции ниже морских ежей и баланоглоссов. Кстати, открытие аксохорда – морфологического, эмбриологического и генетического аналога хорды – у кольчатых червей показывает, что зачаток хорды, видимо, имелся у общих предков первично– и вторичноротых (Lauri et al., 2014). Затем первичноротые его большей частью потеряли, а мы донесли до современности – в буквальном смысле на своих хребтах – дремучий примитивный докембрийский вариант строения.
Незамысловатый образ жизни ланцетникообразных предков до сих пор виден в нашем строении. По всей нервной системе на задней стороне расположены чувствительные элементы (кроме обонятельных), а на передней – двигательные и обонятельные. Ведь ползали они вдоль дна на брюшке, все напасти валились на них сверху, а искали пищу они хеморецепторами, расположенными на передне-нижнем конце рядом со ртом. Мозг человека до сих пор ориентирован как у четвероногого животного и даже как у ланцетника (хотя у ланцетника головного мозга как бы и нет). Поэтому, например, передние корешки спинного мозга двигательные, а задние – чувствительные, в прецентральной извилине расположен “двигательный человечек”, а в постцентральной – “чувствительный”, сосцевидные тела и гиппокампальная извилина, расположенные спереди, отвечают за обоняние, а затылочная доля сзади – за зрение.
Кстати, о зрении. Видимо, первые фоторецепторы возникли еще в докембрии, по крайней мере очень похожие на глаза штуки вроде бы есть у некоторых эдиакарских животных. У самых ранних хордовых начала кембрия – Haikouichthys ercaicunensis – уже есть настоящие глаза. Глаза совершили революцию. Раньше, чтобы что-то понять, надо было ткнуться носом или хотя бы прикоснуться усиками, в лучшем случае – унюхать. Но хеморецепция не дает понятия о расстоянии и не позволяет как следует распознать направление на источник запаха. В слепом мире докембрия не имел значения цвет, а форма определялась голой функциональностью, не было понятия красоты и грации. Зрение все изменило: теперь стало можно издали и надежно распознать как добычу, так и опасность, найти спутника жизни или вовремя сбежать от нежелательного знакомства, на других посмотреть и себя показать. Впрочем, у первых хордовых глаза были не ахти какие зоркие, скорее это были просто скопления светочувствительных клеток, различавшие свет, тьму и тени набегающих хищников. А враги и соперники меж тем эволюционировали куда как резво. Например, трилобиты того же времени имели мало того что фасеточные, да еще в буквальном смысле хрустальные глаза. У более поздних членистоногих может быть множество глаз: у скорпионов до шести пар, у пчелы два сложных и три простых. Даже у гребешка – морского двустворчатого моллюска – имеется до сотни глаз, хотя бы и совсем простеньких.
Прозрачность ланцетникоподобных предков сыграла с нами очередную злую шутку: светочувствительные клетки оказались повернуты аксонами вперед. Для прозрачных животных ориентация рецепторов не имела ни малейшего значения: свет доходил со всех сторон, а задачей глазка было не разглядывать детали в определенном направлении, а фиксировать тень от хищника. Случайно получилось так, что аксоны оказались направлены наружу, а потом загибались обратно к нервной трубке. У нас же теперь в глазу есть слепое пятно: аксоны со всей сетчатки сходятся вместе в зрительный нерв, разворачиваются задом наперед и выходят через стенку глаза назад – к мозгу – через зазор среди рецепторов. Конечно, мы этого пятна не замечаем, но только благодаря работе мозга, который все время должен додумывать: что там, на месте “черной дыры”? Не было бы слепого пятна, мозги не загружались бы еще и этой работой. Другое дело – головоногие моллюски: их предки предусмотрительно расположили свои рецепторы аксонами назад, так что глаз, например, осьминога не имеет слепого пятна. В остальном же глаза головоногих удивительно похожи на наши – это один из лучших примеров конвергенции, независимо появившегося сходства. Впрочем, мы опять забежали далеко вперед, до всего этого оставались еще миллионы и миллионы лет…
Ланцетникоподобные или даже более древние червеподобные предки оставили нам много и прочего наследства. Еще до зрения главным видом чувствительности была хеморецепция. В числе прочего она работала как система определения “свой – чужой”. В последующем – уже у позвоночных – из примитивного обонятельного органа развился особый вомероназальный, или якобсонов, орган. У млекопитающих он расположен в нижней части носовой перегородки и представляет собой трубочку с невнятными на вид клетками внутри. Но сколь много значит этот древний невзрачный пережиток для судеб человечества! Якобсонов орган определяет химический состав феромонов – специфических для каждого человека химических молекул. Особое коварство якобсонова органа заключается в том, что информация от него не проецируется прямо на новую кору конечного мозга, то есть на сознание. Для человека как бы и чувства-то никакого нет; потому в языке отсутствует даже слово для самого ощущения. Но древние части мозга не дремлют, каждое мгновение они придирчиво распознают флюиды, витающие в воздухе. Если феромоны другого человека похожи на молекулы нюхающего, то мозг решает: “У этого человека химия такая же, как у меня, родимого, стало быть, у него такая же генетика, значит, он из моей популяции, он не конкурент за ресурсы”. До сознания же из дремучих недр подкорки доносится гулкий железобетонный вывод: “Этот товарищ – свой в доску! Он хороший!” Горе тому, у кого феромоны отличны, подкорковые ядра соображают: “У него другая химия, инородная генетика, он из другой популяции – однозначно конкурент, чужак!” В сознание вплывает непоколебимое убеждение: “Он плохой! Наверняка и детишек-то он не любит, и бабушек через дорогу не водит, ворует, бездельничает и вообще аморальный тип! Надо бы держаться от него подальше, а еще лучше – избавиться; если же и может быть от него какая польза, то лишь на соляных рудниках или хлопково-сахарных плантациях”. Самое неприятное, что убеждения эти исходят из самой глубины души, они донельзя искренни и не подразумевают проверки. Да и о какой проверке речь, когда система была отработана во времена, когда и мозга-то головного толком не было, не говоря уж о коре и интеллекте? Многие животные успешно пользуются якобсоновым органом; Читатель мог наблюдать это на любимой кошечке, которая иногда осторожно касается языком какого-нибудь предмета, а потом, полуоткрыв ротик, смешно дышит, загибая язык и прикасаясь им к небу. Это она отправляет взятые на пробу феромоны в резцовый канал, откуда они идут прямиком в якобсонов орган. У млекопитающих это чувство играет огромную роль в коммуникации (некоторые животные, впрочем, используют его своеобразно: змеи двумя кончиками раздвоенного языка собирают феромоны грызунов, чтобы успешнее охотиться на них; так они повернули общение мышей против них самих). У человека вомероназальный орган сильно редуцирован, он работает еле-еле (если честно, толком непонятно, работает ли он у человека вообще или, может, работает, но не у всех: Meredith, 2001; Monti-Bloch et al., 1998), но он оставил отчетливые следы на нашем черепе. На небе позади резцов есть резцовый канал – отверстие, соединяющее ротовую и носовую полости, через него как раз проходила трубка органа. Но напрасно вы, Уважаемый Читатель, пытаетесь нащупать языком дырку: она уже заросла мягкими тканями и не функционирует; сам орган лежит на сошнике – кости носовой перегородки, феромоны попадают в него через нос.
Как многие явления природы, якобсоново чувство имеет две крайности.
С одной – темной – стороны, вомероназальный орган может быть в немалой степени ответственен за расизм: ведь именно у представителей разных рас феромоны отличаются в наибольшей степени. Именно из-за подсознательности работы органа расизм так легко возникает сам собой и столь сложно с ним бороться. Ведь убеждение о том, что отличающийся феромонами человек плохой, входит в сознание исподволь из подкорки, на полном автомате, для этого ничего не надо делать. Для того же, чтобы понять, в чем истинная причина неприязни и что моральные, интеллектуальные и прочие личностные качества человека не зависят от его химии, надо немало потрудиться новой корой конечного мозга, иметь информацию и уметь ее обрабатывать, а это уже не каждому дано. Конечно, стоит помнить, что не в одном якобсонове органе дело: зрение, слух и злобная пропаганда тоже делают свое черное дело, но эти воздействия прямо проецируются на неокортекс, так что с ними легче разбираться; якобсоново же чувство глубоко личное и внутреннее.
Есть у работы якобсонова органа и противоположная – светлая – сторона. Если феромоны другого человека почти идентичны собственным, но все же отличаются, да он еще другого пола, что еще надо?! Якобсонов орган включает программу “Любовь с первого взгляда”. Впрочем, и тут есть доля вероломства: ведь опять же реальные свойства человека не зависят от его феромонов. Проходит время, как любое чувство, якобсоново притупляется, ан уж печать в паспорте, детишки в детском саду, поздно включать неокортекс…
Так что, если при встрече с новым человеком в вас проснется немотивированное внутреннее убеждение “Он плохой!” или “Он хороший!” – подумайте, не попутал ли вас якобсонов орган, притормозите на секунду, включите неокортекс. Система, помогавшая выживать ланцетникам, рыбам и зверообразным рептилиям, в наши дни может давать трагические сбои и направлять наше поведение по ложному пути.
Из прочего докембрийского багажа до нас дошел общий план опорно-двигательного аппарата. Так, мышечная система в виде чередующихся миомеров явственно видна и в нашем теле: спинные, межреберные и брюшные мышцы, хотя и заметно перепутались, все же остаются принципиально сегментированными.
Первые хордовые были животными незатейливыми, у них, например, глотка занималась одновременно и глотанием, и дыханием, и выведением половых клеток. У членистоногих эти системы разделены: жабры, легкие или трахеи – сами по себе, глотка, желудок и кишечник – отдельно, а яичники и семенники имеют свои протоки. Муха в этом смысле сложнее нас, у нее трахеи пронизывают все органы напрямую, в том числе головной мозг, так что ветер в буквальном смысле гуляет у нее в голове. Правда, эта же особенность – одна из главных причин, не дающих насекомым вырасти до очень больших размеров, иначе им пришлось бы превратиться в губку из трахей, ведь площадь трубочек растет в квадрате, а объем тканей – в кубе. Кроме того, в трахеи запросто могут попасть зловредные бактерии, и победить их сложно, ибо такая дыхательная система отделена от кровеносной и иммунной.
В отличие от членистоногих, кислород у нас доставляется к органам с помощью кровеносной системы, так что есть возможность делать это избирательно и прицельно (вспомним красивые цветные картинки томограмм мозга, на которых отмечается именно активность кровотока, а не работа нейронов как таковая), а лейкоциты по пути избавляют организм от болезнетворных микробов. Наши предки дышали фактически стенками пищеварительной системы, мы делаем так же, но стенки эти у нас вздулись в виде очередных пузырьков, что позволяет обеспечить высокий обмен, столь необходимый для мышления. Кстати, происхождение нашей дыхательной системы из пищеварительной привело к тому, что в бронхах наших легких есть вкусовые – “горькие” – рецепторы (Deshpande et al., 2010).
Через те же самые жаберные отверстия у первых хордовых выводились и половые клетки. Созревали эти клетки в гонадах, да вот беда – специальных протоков для их транспортировки предусмотрено не было. Наружные слои гонад и стенки тела рвались, половые клетки выходили в околожаберную полость, а оттуда через дыхательные отверстия – наружу. Для мелкого животного, сделанного из нескольких слоев клеток, это не проблема, но потомки-то выросли. И до сих пор у женщин половые клетки (стадия под названием “овоцит II порядка”) выходят через разрыв наружного слоя яичника прямо в полость тела. Однако ж разрывать брюшную стенку уже не покажется такой безобидной затеей, да и глотка “уехала” далековато, а единственное оставшееся жаберное отверстие закрылось барабанной перепонкой, так что пришлось эволюции открыть изначально замкнутую вторичную полость тела женщины с помощью маточных труб. Система на редкость путаная, с точки зрения членистоногих.
Вот что хордовым действительно удалось, так это кровеносная система. Правда, у ланцетника специальной выстилки мелких сосудов вообще-то нет, так что его “капилляры” – это просто трубкообразные щели в мускулатуре, а кровеносная система фактически незамкнутая, но это мелочи. Выстилка все же появилась, замкнутость замкнулась, и теперь снабжение всем полезным органов может быть точечным и прицельным. У членистоногих и моллюсков сердце представляет собой открытую спереди трубку со щелями по бокам, перебалтывающую гемолимфу, которая омывает все внутренние органы. Для мелкого животного такая система идеальна – не надо тратиться на лишние сосуды и занимать ими и так незначительное пространство. Но при увеличении размеров тела и толщины тканей такая система перестает полноценно работать – до глубоких слоев клеток питательные вещества уже не доходят. Зачем первые хордовые приобрели сосуды – вопрос, но теперь мы можем быть большими и умными. Впрочем, человеку есть над чем еще работать, ведь у нас сердце высоко, а тело большое, качать кровь снизу проблематично, чуть что – появляются варикозные расширения вен. То ли дело у миног и миксин: у них в венозной системе имеются три дополнительных сердца – в голове, печени и хвосте; варикоз им не страшен!
Глава 9. Звено 4: учетверение генома, обретение скелета, зубов и мозга. (ордовик, 470–480 млн лет назад).
Долго ли, коротко ли, прогресс шел своим чередом, но идти ему было нелегко. Ведь для появления каких-нибудь новых замечательных усовершенствований необходимы новые гены. Если же мутируют уже имеющиеся гены, то старые признаки модифицируются, но медленно, пока они станут чем-то принципиально новым, скорее всего, минует очень много времени. Гораздо веселее процесс пойдет, если генетического материала станет много. И тут позвоночным повезло, причем дважды (а некоторым и трижды). У неких хордовых, существовавших уже после отделения линии, ведущей к современному ланцетнику, произошло полногеномное удвоение – дупликация, а потом случилось еще одно удвоение (Putnam et al., 2008). Второе, вероятно, свершилось уже после отделения линии современных миног, хотя это пока не вполне ясно. У человека, таким образом, геном увеличен в четыре раза по сравнению с ланцетником, а учитывая изначальную диплоидность – 24=8, – фактически мы октаплоиды!
В момент удвоения половина генов продолжала работать как прежде, а вторая могла беспрепятственно мутировать. Понятно, что бóльшая часть генов при этом просто поломалась, но часть смогла получить новые функции. Позвоночные получили два отличных шанса быстро и безопасно усложниться, и они их использовали. Закономерно, что новые гены отвечают в основном за регуляцию активности других генов и эмбриональное развитие, а также работу нервной системы и передачу сигналов. Сколько еще миллионов лет понадобилось бы для появления человека, не случись этих дупликаций?
Кстати, о рыбах, лягушках и мечехвостах… В третий раз геном удвоился 350 млн лет назад у предков костистых рыб, а у предков южноамериканских украшенных рогаток Ceratophrys ornata примерно 40 млн лет назад – удвоился даже дважды относительно обычных лягушек. То есть рогатки – октаплоиды в мире амфибий и совсем уж невероятные полиплоиды в сравнении с ланцетниками. Может, поэтому костистые рыбы сейчас самая разнообразная и многочисленная группа позвоночных? Ведь если считать по числу видов, то мы живем в эру костистых рыб, а вовсе не млекопитающих. А лягушки, быть может, еще не разогнались и у них все впереди? Мир захватят рогатки?! Удвоение генома случалось и с беспозвоночными, например с бделлоидными коловратками Adineta vaga. Совсем неожиданным оказалось, что две полногеномные дупликации случились у предков мечехвостов – до крайности примитивных с виду ракообразных, почти не менявшихся с палеозоя. Почему нашим предкам увеличение числа генов пошло на пользу и резко ускорило эволюцию, а на мечехвостах никак внешне не сказалось? Пока это загадка…Меж тем жизнь ставила перед хордовыми особые задачи. Подросшее тело и мало-мальски подвижный образ жизни требует нового уровня обмена веществ. Кальций и фосфор – дефицитные элементы и при этом чрезвычайно важные для жизни, они участвуют в регуляции обмена как на уровне клетки, так и всего организма. Поэтому, когда животное находит источник столь ценного ресурса, хорошо бы не только потребить его, но и запастись на будущее. Когда же такая заначка становится достаточно крупной, обнаруживается ее новое свойство – она тверда! И вот такие гранулы начинают скрипеть на зубах хищника, портить ему аппетит, – это уже защитная функция. Если же такие гранулы скопить во рту, то можно и самому кого-нибудь ухватить за бочок. Дальше – больше, и вот уже плывет по морю этакий червячок с зубами – конодонтоноситель, а если он обзавелся и хрящевым позвоночником, то это уже бесчелюстная рыба Agnatha. Если же постараться и сконцентрировать кальция еще больше, то получится настоящая кость. Неспроста у хрящевых рыб в хрящах содержится больше минеральных веществ, чем у костных, ведь у последних функции хряща и кости расходятся, гибкость и прочность перестают быть синонимами и становятся противоположностями.
Первыми по-настоящему твердыми элементами хордовых стали зубы. Они есть у конодонтоносителей и бесчелюстных рыбообразных, в том числе современных миног и миксин. Зубы возникали неоднократно, например, у крупнейшей хищной рыбы девона Dunkleosteus intermedius края челюстей были покрыты зазубренными клыкоподобными пластинами, но не зубами в нашем варианте. Хрящевым рыбам идея так понравилась, что они целиком покрылись зубами: шершавая кожа акулы или ската сплошь усеяна именно ими, точно такими же, что и во рту, только мелкими. Впрочем, в ордовике все было проще: без челюстей ни прилично укусить, ни тем более прожевать ничего невозможно, но можно вцепиться и не отпускать. Так и делают нынешние миноги: вцепляются в бок рыбы, выделяют прямо в тело жертвы пищеварительные соки, а потом всасывают то, что получилось. Миксины хищнее – они вцепляются в добычу, потом завязываются узлом, прогоняют этот узел вдоль себя (чему способствует обильная слизь) и вырывают кусок мяса.
Первые рыбы были совсем небольшими животными, и добыча их была невелика, но, видимо, иногда достаточно прытка, так что зубы в целом оказались полезным приобретением. А уж в далеком будущем функции их необычайно расширились, вплоть до демонстративной и сигнальной. В следующий раз, когда будете улыбаться белозубой улыбкой, с благодарностью припомните жизнелюбивых ордовикских червячков, которые не хотели быть проглоченными первыми рыбами, отчего последние были вынуждены обзавестись крючками во рту.
Таким образом, части с твердыми минеральными составляющими первоначально, видимо, не были предназначены ни для защиты, ни для опоры. Но в ордовике появились новые напасти: пик расцвета переживали головоногие моллюски наутилоидеи Nautiloidea с прямой раковиной – смертоносные торпеды, самые гигантские из которых – Endoceras – имели раковины до 9,5 м длины! От крупного хищника, как известно, есть два надежных спасения: можно либо спрятаться, либо убежать (можно еще принять бой, но такая стратегия обычно заканчивается плачевно, ведь хищник на то и хищник, что вооружен лучше жертвы). Беспозвоночные в подавляющем большинстве прятались если не в норы, то в разного рода скорлупки. Некоторые хордовые последовали их примеру. Например, одна из древнейших рыб Arandaspis prionotolepis, жившая 470–480 млн лет назад, имела на переднем конце панцирь из множества чешуек. У Astraspis desiderata они слились в уже сплошной спинной щит. Правда, и про бегство они не забывали: хвост оставался свободным, гибким и подвижным, а у большинства хордовых того времени – конодонтоносителей – наружного панциря вообще не было. Но если мелкие и легкие конодонтоносители и ланцетники вполне могли уплыть от хищника без особых усилий, то рыбам двигать подросшее тело, да еще наполовину закованное в доспехи, было нелегко. Гибкая хорда уже не справлялась с задачей точки опоры для мышц, поэтому вокруг нее образовался позвоночник. На первых порах, правда, хорда и позвоночник не исключали друг друга, и у современных миног и некоторых рыб они вполне сосуществуют, но в дальнейшем хорда оказалась уже не столь актуальной, сохранившись лишь у эмбрионов. Позвоночник тоже далеко не сразу стал таким, как у нас. Сначала он был хрящевым, а у круглоротых и хрящевых рыб остается таковым и поныне. Лишь в конце силурийского периода, около 420 млн лет назад, появляются первые костные рыбы. Впрочем, они были не единственными изобретателями кости: в это же самое время очень похожий принцип окостенения выработали бесчелюстные Osteostraci.
Рыбы как минимум дважды вступали на скользкую дорожку бронирования – с появлением панцирных бесчелюстных Heterostraci и панцирных челюстных Placodermi; и это только по-крупному, без учета мелких поползновений типа кузовков и панцирных щук. Ведь как заманчиво замкнуться в уютной скорлупке, отгородиться от всех невзгод и супостатов надежной броней и стагнировать так миллионы лет, прикидываясь пылесосом где-нибудь около илистого дна. Слава эволюции, что наутилоидеи в ордовике, ракоскорпионы в силуре и аммониты в девоне хотели хорошо кушать и изобретали всё более изощренные способы вскрывания консервов, какими становились панцирные рыбы. Благодаря аппетиту гигантских беспозвоночных часть рыб рвалась ввысь, в толщу воды, избегая смерти быстротой и маневренностью. Они расстались с обманчиво спасительными доспехами и миновали опасность превратиться в очередной аналог членистоногих с наружным панцирем. А ведь у некоторых – например, у девонского антиарха Asterolepis – уже и плавники становились членистыми! Такие бы никогда не вышли из воды на твердь земную или, по крайней мере, не смогли бы стать крупными существами, ведь внешняя броня должна утолщаться опережающими темпами, чтобы при увеличении площади не терять прочности, от этого она становится чрезмерно тяжелой, и ее невозможно носить на суше. Это одна из причин, почему наземные членистоногие никогда не могли вырасти до приличных размеров. Хордовые избежали этой ловушки. Но вернемся в ордовик…
Первые рыбообразные обрели головной мозг. У ранних хордовых и ланцетника нервная трубка лишь слегка утолщена в передней части. Но жизнь становилась сложнее, банальное утолщение уже не отвечало новым реалиям. И передний конец нервной трубки стал пузыриться: всего получилось пять последовательных пузырей, причем потом передний стал еще и парным (кстати, момент появления головного мозга логично считать и моментом обособления головы, ведь у ланцетника ее фактически нет, есть лишь головной конец). Неравномерное разрастание стенок вздутий дает пять отделов головного мозга. Передний из них – конечный мозг – ясное дело, занимался обонянием. Обоняние было одним из первых органов чувств, а обонятельные рецепторы закономерно расположены на самом конце головы; неспроста и у нас нос занимает почетное место в первом ряду. Сейчас мы конечным мозгом думаем, но о мышлении ордовикских рыб говорить было бы слишком смело; впрочем, они не были и простыми роботами, скорее их душевные движения можно было бы назвать простейшими эмоциями. Параллельно развивались и иные структуры мозга, в том числе совершенствовалась память: животным с развитой хеморецепцией и несовершенным зрением важно запоминать запахи, связанные с пищей, опасностью и общением. Наследие тех далеких времен в полной мере сохранилось в нашем мозге: лимбическая система отвечает как раз за обоняние, эмоции и память (в полной мере она сформировалась уже у амфибий и рептилий, но корни следует искать у истоков – у первых рыб). Когда на улице дуновение ветерка донесет до вас запах из детства и нахлынут воспоминания, а на лице при этом мелькнет улыбка или сами собой нахмурятся брови – это предки просыпаются в ваших гипоталамусе, гиппокампе и полосатом теле.
Впрочем, первые позвоночные не имели очевидных преимуществ перед беспозвоночными. Хитиновый панцирь или разного рода раковины были у кого угодно, а радула моллюсков и позже, с середины силура, хелицеры ракоскорпионов легко расправлялись с телом первых рыб. Ганглии моллюсков и членистоногих размерами почти не уступали головному мозгу хордовых. Именно головоногие моллюски и другие беспозвоночные были главными хищниками первой половины палеозоя. До торжества позвоночных было еще ой как далеко…
Глава 10. Звено 5: обретение конечностей, челюстей и ребер. (начало силура, около 440–430 млн лет назад).
Как уже говорилось, первые рыбообразные плавали, просто изгибая тело. В лучшем случае у них имелись плавниковые складки вдоль тела – на спине, животе и по бокам. Они позволяли держать равновесие, не перекувыркиваться кверху брюшком; у придонных форм возникали также шипы для закрепления в иле. Потом выяснилось, что такие складки можно волнообразно изгибать – ундулировать – и за счет этого плыть. Но у панцирных бесчелюстных с гибкостью были основательные проблемы, особенно на переднем конце. Хвост как основной движитель – это здорово, он хорошо толкает вперед, но не позволяет маневрировать, а резкие повороты в суровом силурийском море – залог выживания. Поэтому плавниковые складки стали дифференцироваться, подразделяться на более отчетливые элементы, превратившиеся в настоящие плавники; они были уже у самых продвинутых бесчелюстных (например, Thelodonti) и еще самых примитивных челюстноротых.
Показательно, что плавники возникали несколько раз независимо; так, самостоятельно приобрели их бесчелюстные Osteostraci. Однако у большинства первых рыб план плавников уже вполне современный: парные представлены грудными и брюшными. В дальнейшем их вариации были бесчисленными, а начиналось все более чем скромно.
Минутка фантазии. Потенциально плавниковую складку можно подразделить и на другое количество плавников. А у некоторых уже развитых рыб акантод (например, Climatius и Euthacanthus с границы силура и девона) между грудными и брюшными плавниками имелись еще до шести пар промежуточных шипов. Это, правда, не были настоящие плавники, но и настоящие первоначально сформировались из примерно таких же шипов. Так что наши две руки и две ноги – в некотором роде дань экономии природы. В принципе, и парные плавники, и – в дальнейшем – ноги могли быть множественными. Почему осьминогам можно, паукообразным, насекомым, ракам и многоножкам тоже, а позвоночные должны довольствоваться несчастными четырьмя? Было бы неплохо иметь 16 конечностей. Или хотя бы шесть для начала. Отличные бы вышли кентавры. Как знать, может, разумные существа со свободными и умелыми руками появились бы на миллионы лет раньше, ведь проблема устойчивости перед ними не стояла бы?Другие важные преобразования происходили на голове. Еще у кембрийских хордовых жаберные отверстия укрепились маленькими дужками, которые не позволяли краям отверстий спадаться. Позже, как уже говорилось, во рту появились зубы, но челюстей еще не было, рот представлял собой просто дырку или трубку. Если добыча не только активна, но и прочна, ее надо раскусить, а для этого нужны челюсти. Эволюция лепит новые элементы из старых, уже существующих. Нужна твердая основа для зубов? Что там рядом? Ага, жаберные дуги! И первые жаберные дуги стали челюстями. Впрочем, принцип оказался более чем удачным: наши слуховые косточки и хрящи всей средней части дыхательных путей, а также мышцы головы и некоторые железы сделаны из тех же жабр. Процесс этот был долог и сложен, но не будем уходить в тонкости, про это написана не одна книга. Главное – своим жеванию, слуху, мимике, речи и даже здоровью мы обязаны крепежу дыхательной системы древних рыб. Мы жуем жабрами, улыбаемся и хмуримся жабрами, говорим жабрами, вертим головой жабрами, слышим благодаря жабрам, сморкаемся и то их выделениями.
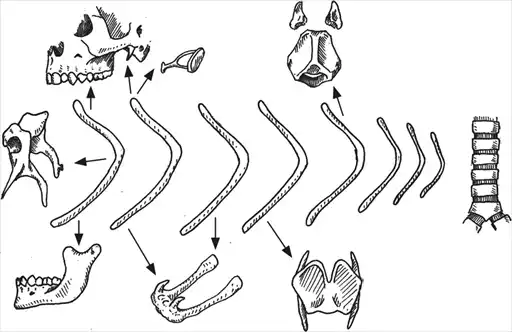
Рис. 8. Схема эволюции жаберных дуг.
Уголок занудства. Жаберные дуги стали основой многих элементов головы, шеи и верхней части туловища. Из верхней половины первой дуги формируется верхняя челюсть, из середины – слуховые косточки молоточек и наковальня, из нижней половины – нижняя челюсть; из верхней половины второй дуги формируется стремечко и шиловидный отросток височной кости, из нижней половины – малые рога и верхняя часть тела подъязычной кости; из третьей дуги – большие рога и нижняя часть тела подъязычной кости; из четвертой – щитовидный хрящ гортани, из пятой – перстневидный и черпаловидный хрящи гортани, из последующих – хрящи трахеи. Элементы первых трех пар жаберных дуг участвуют в закладке языка, из первой жаберной щели образуется слуховой проход и евстахиева труба, из первого жаберного кармана – полость среднего уха и евстахиева труба, из второго жаберного кармана – небные миндалины, из третьего – две паращитовидные и вилочковая железы, из четвертого – еще парочка паращитовидных. Из мезенхимы жаберных дуг образуются жевательные и мимические мышцы, а также мышцы гортани и глотки.Вторые жаберные дуги и щели хорошо видны у человеческого эмбриона примерно в месячном возрасте, а в редких случаях отверстия сохраняются и у взрослого человека по бокам шеи и ведут прямо в глотку. Конечно, такому человеку не суждено стать Ихтиандром, ведь жабра – это не только отверстие, да даже и будь развиты функциональные жаберные лепестки и тычинки, их не хватило бы для снабжения всего человека кислородом, для этого нужны жабры с площадью не меньше, чем у легких. Но одна – первая – жаберная щель у нас все же сохраняется навсегда: она преобразовалась в евстахиеву трубу, а первый жаберный карман – в барабанную полость среднего уха. Впрочем, сквозного отверстия уже нет, снаружи все это прикрыто барабанной перепонкой, но это мелочи. Евстахиева труба выравнивает давление в среднем ухе изнутри от барабанной перепонки, приводит его в соответствие с наружными условиями. Жаберная щель спасает нас от закладывания ушей, когда мы взлетаем или приземляемся на самолете или погружаемся в пучины океана на батискафе (лучше всего при смене высоты сидеть, широко открыв рот, но поскольку в самолете сотня человек с разинутыми ртами выглядела бы слишком сюрреалистично, то пассажирам часто выдают сосательные конфетки – не по доброте душевной, как некоторые думают, а чтобы люди сглатывали слюнки и тем самым пользовались своей жаберной щелью). Вот уж воистину – ухо жаброй не испортишь!
Кстати, о муренах… Челюсти хорошо, а две – лучше! У мурен, кроме стандартных верхней и нижней челюстей, имеются еще и внутренние челюсти, сделанные тоже на основе жаберных дуг и выдвигающиеся вперед при захвате добычи. Чудастик из фильма “Чужой” не так уж оригинален, как многим может показаться.Рыбы оставили нам богатое наследство, в том числе зевоту. Когда человек устал и засыпает или же, напротив, еще не вполне проснулся, тонус дыхательной мускулатуры слаб, вдох становится менее глубоким, организм недополучает кислорода, а в крови накапливается углекислый газ. Специальные рецепторы в стенках кровеносных сосудов регистрируют эти изменения и посылают сигнал в продолговатый мозг, в ретикулярную формацию. Мозг соображает: “Кислорода маловато, что-то, видать, приключилось… Что же? Ага! Жабры засорились!” Что же нужно сделать? Широко открыть рот, расправить жабры и током воды через глотку прочистить жаберные щели, выгнать оттуда ил и песок. И человек добросовестно “промывает жабры” – открывает рот и расправляет несуществующие хрящевые дуги, то есть открывает челюсти. И неважно, что жабр нет уже сотни миллионов лет, ведь тонус мышц немножко поднимается, вдох углубляется, организм получает кислород – задача выполнена, система работает!
Кроме плавников и челюстей, примерно в это же время были изобретены ребра. У бесчелюстных их нет, они им и не нужны: это либо длинные тонкие создания, так что хорды для прочности им вполне хватает, либо с головным панцирем; да и усилий они прилагают немного. Но удобно, когда мускулатура крепится не только на хорду, но и на дополнительные прочные штуковины, расположенные вдоль тела. Получается, что рыба отталкивается от собственных ребер, изгибы тела получаются энергичнее, можно быстрее спасаться от злых ракоскорпионов. Кто ж знал, что спустя миллионы лет опорные элементы станут защитой для внутренних органов и, что гораздо важнее, – каркасом движителя дыхательной системы. За счет реберного дыхания мы можем достигать того уровня метаболизма, что необходим для содержания нашего многозатратного мозга.
Кстати, о сосудах… В середине силурийского периода совершилась очередная революция, повлиявшая на судьбы мира и обеспечившая в будущем наше появление, – растения научились убивать свои клетки! Это было одно из важнейших достижений после появления многоклеточности. Ведь все клетки имеют одинаковый генетический аппарат, все хотят жить, трудно устроить так, чтобы отдельные продолжали благоденствовать, а какие-то добровольно умерли. Зато из мертвых клеток можно сделать трахеиды – по сути целлюлозные трубочки с дырочками со всех сторон, хорошо проводящие воду в разных направлениях, но преимущественно снизу вверх. Пройдут миллионы лет, и на основе трахеид будут созданы настоящие сосуды и качественная механическая ткань, которая вознесет высоко над землей густые кроны, в которых будут резвиться приматы. А пока – 423 млн лет назад – первые сосудистые растения куксонии Cooksonia робко высовывались из воды и озеленяли берега водоемов…Глава 11. Звено 6: появление легких, хоан и шеи. (ранний девон, около 415 млн лет назад).
Вначале девона рыбы сделали еще один шаг, вернее, гребок в сторону прогресса – разработали легкие. Первоначальная функция легких точно не ясна. Возможно и очень вероятно, они с самого начала функционировали как элемент дыхательной системы, были дополнительным жаберным карманом, увеличивающим площадь всасывания кислорода.
Не исключено также, что первым их назначением была балансировка тела. Стенки рыбьей глотки обогащены кровеносными сосудами, ведь у рыб газообмен осуществляется через жабры. Но если есть орган, способный быстро сконцентрировать газ или, напротив, выделить его обратно в воду, то можно сделать на этой основе отличный поплавок. Дело в том, что у древнейших рыб были проблемы с устойчивостью и всплытием-погружением. Первая сложность решается уплощением брюха и наращиванием длинных плавников: два длинных крыла по бокам и высокие кили на спине и хвосте – узнаёте акулу? Вторая более трудноразрешима. У хрящевых рыб есть жировое тело, обеспечивающее нулевую плавучесть, но быстро поменять глубину акуле сложно. Неспроста она приближается к добыче суживающимися кругами – хищница делает это не из-за садистских наклонностей, не чтобы лишний раз потрепать жертве нервы. Просто быстро всплыть из глубины акула не может, она двигается как самолет: для поднятия или снижения ей нужно преодолеть гораздо большее расстояние по горизонтали, а грудные плавники работают как рули высоты. Двигаясь кругами, акула просто старается не потерять цель из виду; можно, конечно, “взлетать” по длинной прямой с разворотом, но тогда можно и упустить обед.

Рис. 9. Схема возникновения легких, плавательного пузыря и неба.
А вот костистые рыбы имеют плавательный пузырь – вырост глотки, снабженный кровеносными сосудами, да не простыми, а двусторонними: в передней части пузыря кислород выделяется из крови в пузырь, а в задней всасывается обратно. Таким образом, дыхательная система становится двигательной. Можно быстро, в пару вздохов накачать газа и всплыть наверх или, напротив, в пару выдохов погрузиться в пучины. Пока акула будет наворачивать свои круги, продвинутая рыба поменяет глубину, и злобная вражина будет вынуждена снова крутиться (правда, делает она это убийственно быстро).
А если есть обширный орган, способный быстро качать кислород в кровь, почему бы не использовать его как продолжение дыхательной системы? Особенно если в мелкой прогретой воде кислорода не хватает и приходится заглатывать воздух ртом, всплывая на поверхность. А это уже и есть легкие.
Однако версия возникновения легких из плавательного пузыря имеет огромный недостаток, ведь древнейшие известные рыбы с достоверным плавательным пузырем появляются заметно позже, чем рыбы с легкими. Посему более вероятно, что цепочка событий была прямо противоположной: легкие возникли у рыб, живших в регулярно пересыхавших водоемах, и лишь дополняли жабры, а после на их основе возник плавательный пузырь. Девонский период был чрезвычайно жарким, за всю историю Земли теплее было только в кембрии. Слаборазвитая корневая система растений плохо держала берега, водоемы были неустойчивыми, быстро наполнялись от дождей и еще быстрее испарялись и утекали в песок, а горячая вода содержала мало газов. Из-за неразвитости корней деревья то и дело падали в воду, а на их гниение опять же уходила масса кислорода. В итоге заморы были обычнейшим бичом девонских рыб.
Дополнять дыхательную систему легкими надо еще и потому, что жаберные щели в мелком грязном водоеме легко забиваются илом, а ведь совсем немножко выше – и воздуха хоть отбавляй. Современные двоякодышащие Dipnoi: четыре вида протоптеров Protopterus из Африки, чешуйчатник Lepidosiren paradoxa из Южной Америки и рогозуб Neoceratodus forsteri из Австралии – при спячке во время сухого сезона могут дышать вообще только легкими, причем месяцами. Наземные четвероногие возникли, впрочем, не из двоякодышащих, а их родственников – кистеперых Rhipidistia, типа девонской Gyroptychius agassizi, имевших аналогичное строение легких. Сейчас существует лишь два вида их родственников латимерий Latimeria (из некогда разнообразной группы целакантов Coelacanthiformes), живущих на больших глубинах в Индийском океане, а потому потерявших дыхательную функцию легких.
А теперь, Уважаемый Читатель, наберите в ваши легкие побольше воздуха и для лучшего проникновения осильте следующий абзац на одном вдохе…
С очень большой вероятностью похожие органы появлялись неоднократно. Ведь легкие двоякодышащих и кистеперых рыб – это вырост нижней части глотки, а плавательный пузырь костистых – верхней. Правда, легкое могло и переползти с нижней стороны наверх. В пользу этого говорит, во-первых, расположение легких у двоякодышащих: хотя соединяются с глоткой они снизу, сами лежат на верхней стороне тела, огибая глотку справа, вслед за ними загибаются и кровеносные сосуды, в том числе с левой стороны на правую; у рогозуба же легкое непарное, хотя и с намеком на раздвоенность. Во-вторых, у костистых рыб эритрин Erythrinus плавательный пузырь открывается на боковой стороне глотки, а сам расположен сверху; к тому же его передняя часть имеет альвеолы и выполняет роль легкого. В-третьих, очень своеобразная и даже загадочная костистая (не двоякодышащая!) рыба многопер Polypterus имеет вполне развитые парные легкие, расположенные на нижней стороне тела. Тут мы встречаемся с очередной упущенной возможностью. Наши кистеперые предки перед выходом на сушу жили, судя по всему, на мелководье, а сами были не такими уж маленькими. Метровому полену, лежащему в луже, трудно задирать голову так высоко, чтобы заглотнуть воздух ртом (они, конечно, старались, благодаря чему мы приобрели еще и шею в качестве бесплатного приложения; шея сделана в основном из жаберных мышц и, похоже, возникала независимо в разных линиях рыб и первых амфибий: Шишкин, 2000). Обширная поверхность ротовой полости быстро сохнет, да к тому же в иле и грязи широкой пастью недолго наглотаться всякой гадости. А ведь наверху морды есть аккуратные маленькие ноздри. У обычных рыб носовые полости функционируют исключительно как обонятельные органы, у них даже есть пара ноздрей с каждой стороны – для входа и выхода воды. В новых условиях возникают хоаны – внутренние носовые отверстия, соединяющие носовую полость с глоткой, так что воздух идет по прямой в новообретенные легкие. Кстати, хоаны, по-видимому, тоже возникали независимо у двоякодышащих и кистеперых: одна задача – одно решение, но несколько разными способами. И кто ж мог знать, что такое очевидное усовершенствование станет проблемой у человека, который появится через четыреста с лишним миллионов лет? Ведь ноздри и хоаны открываются в глотку сверху, а легкие сформировались как нижний вырост глотки. Получился перекрест дыхательных и пищеварительных путей. Для рыб это, видимо, не было великой проблемой, ведь они не жуя глотали крупную добычу, которая в любом случае не могла провалиться в легкие, а вот у наземных существ начались сложности: при глотании (особенно хорошо пережеванной пищи) еда того и гляди может шмякнуться в гортань или трахею. Конечно, возникли предохранительные клапаны – небо наверху и надгортанник внизу; у всех приличных млекопитающих они смыкаются, а потому звери либо глотают (и тогда на полном автомате надгортанник опрокидывается пищей, закрывая гортань, а небо поднимается, перекрывая носоглотку), либо дышат. Посему они в принципе не могут подавиться. Так же система работает и у шимпанзе, и у новорожденного человека, поэтому младенец либо дышит (обычно он при этом еще и вопит), либо сосет молоко (обычно утверждается, что он делает это одновременно, но на самом деле попеременно). Но два миллиона лет назад – четыре сотни миллионов после появления легких и хоан – человек стал делать первые попытки говорить. Голосом общаться удобно, но для обогащения набора сигналов нужно усложнение звукопроизнесения, членораздельность речи. Кто четко и внятно сообщает информацию окружающим, тот имеет больше шансов на выживание, да и на прекрасный пол может произвести должное впечатление, так что его гены будут увеличивать свою частоту. Но для говорения нужна подвижность гортани: расположенная за толстым языком, она и сама не имеет нормальной амплитуды, и языку мешает. И вот гортань начинает свое движение вниз, в свободную часть шеи. У зверей в таком случае либо удлиняется мягкое небо, либо надгортанник, но грандиозность задачи у человека не оставила ему таких возможностей – если бы небо и хрящ увеличились пропорционально длине шеи, то не получилось бы уже ни глотать, ни дышать. Поэтому свершилось ужасное – мягкое небо и надгортанник разомкнулись, расстались навсегда. Их разлучение позволило нам говорить, но оказалось роковым – теперь мы можем погибнуть подавившись. Ведь пища уже вовсе не гарантированно попадает в горло и пищевод, геометрически ей гораздо проще угодить в гортань – дыхательную систему. Конечно, возникли рефлекторные защитные механизмы, но уж больно своевольно наше сознание: мы можем захотеть и говорить, и дышать одновременно, тогда надгортанник останется открытым, а мы подавимся. Это редкостный случай возникновения откровенно вредного признака в качестве побочного эффекта, а возможно такое, ибо польза от говорения намного перевешивает опасность. Все же далеко не каждый болтун гибнет, подавившись едой, зато теперь каждый может повышать свою приспособленность говоря. А упущенная возможность, о которой упоминалось в начале этого бесконечного абзаца, проста: будь мы потомками не кистеперых, а костистых рыб, у которых плавательный пузырь – бывшее или потенциальное легкое – вырост верхней стенки глотки, или возникни мы чуть позже из более продвинутых двоякодышащих, у которых не только легкое, но и вход в него мог бы переползти наверх, у нас не было бы злосчастного перекреста. Запросто могла бы возникнуть некая горизонтальная перегородка между дыхательной и пищеварительной системами, да и без нее сила тяжести вела бы пищу куда следует – в пищевод и желудок, а не в трахею и легкие. Кто знает, может, речь возникла бы намного раньше? И ведь есть же прецеденты среди костистых рыб – те же илистые прыгуны, дышащие на суше кожей и наджаберным дыхательным органом – полным аналогом легкого. Но в девоне костистых рыб еще не было, так что воздушную среду захватили потомки кистеперых, а после конкуренция с их стороны была уже непреодолима, и у костистых не было шансов стать новыми, более совершенными четвероногими. Поспешишь – людей насмешишь…
Уффф… Можно выдохнуть. Спасибо кистеперым рыбам за их нелегкую болотную жизнь, обеспечившую нас способностью так здорово дышать!
Соединение носовой и ротовой полостей имело и иные последствия: диалектически оформился и их разделитель – небо. Его задняя часть – мягкое небо, а его самый большой вырост – язычок, который очень наглядно показан в мультиках, где он эффектно болтается, когда кто-то кричит. Мягкое небо, как уже говорилось, во время глотания поднимается, перекрывая носоглотку. Но у системы есть недостаток: если человек лежит на спине и при этом очень расслаблен – смертельно устал, вдребезги пьян – или у него ожирение и язычок просто тяжел, мягкое небо свисает вниз и закрывает носоглотку. Поскольку человек упорно продолжает дышать, воздух, идущий через нос, колеблет язычок и возникает храп (конечно, существуют и другие его причины). Спасти положение можно, повернув человека на живот или хотя бы на бок (чтобы язычок свесился в другую сторону и открыл путь воздуху) или же приведя его в чувство – растолкав или хотя бы громко хлопнув, крикнув, пнув (чтобы мышцы пришли в тонус и подняли мягкое небо). Бывает, впрочем, что ничего не помогает, а окружающие ни в чем не виноваты. Тогда приходится идти на крайнюю меру – удаление язычка мягкого нёба. Правда, без него не получится жадно глотать еду большими кусками (иначе сокращение глотки будет толкать пищу в том числе и в нос), но, может, оно и к лучшему, особенно если причиной храпа было ожирение. Нездорово будет и пить в лежачем положении: вода будет выливаться через нос. Но на какие жертвы не пойдешь ради блага близких!
Впрочем, когда я излагал эту тему на одной лекции, один из студентов рассказал, что некоему его знакомому-родственнику сделали такую операцию, а он таки храпеть не перестал. Каким органом он продолжал это делать, науке неизвестно; вероятно, языком, который тоже может заваливаться в глотку. Можно предложить еще одну операцию…
Вряд ли девонские кистеперые рыбы храпели, но именно их жизнь создала наши свойства – приятные и не очень.
Глава 12. Звено 7: руки-ноги. (поздний девон, 385–365 млн лет назад).
Большинство девонских кистеперых рыб жило в не очень глубоких пресных водоемах. Но времена были дикие, качественные редуценты были в дефиците, поэтому растения (а к середине девона уже появились деревья приличного размера), падавшие в воду (деревья-то появились, а корневая система у них была крайне непрочная, поэтому они то и дело падали, а корни были маленькие, потому что несовершенные редуценты и вообще почвообразователи не могли обеспечить должного развития почвы, чтобы имело смысл отращивать большие корни; в общем – время еще не пришло), оставались лежать там большими кучами, загромождая пространство. Теплая вода – девон, как мы помним, был очень жарким – плохо растворяет кислород, поэтому в близких к анаэробным условиях несчастные редуценты, как ни старались, не могли быстро переработать утонувшие стволы. В следующем – карбоновом – периоде такие завалы еще увеличились, и из них получились такие грандиозные залежи каменного угля, что человечество жжет их уже сотни лет и все никак не изведет. Но и в девоне бардака хватало. Свободно плавать в таких условиях было сложно, тем более довольно крупным хищникам. Поэтому они стали ползать по дну и всем этим топлякам. Плавники у них видоизменились в толстые конические отростки, неспроста вся группа в целом называется лопастеперыми Sarcopterygii, а их важнейшее подразделение – кистеперыми Rhipidistia. Среди их современных потомков латимерия, перешедшая к жизни в глубоком море, все же не отказалась от старых привычек и тоже может ходить по дну, поочередно переставляя мясистые “ноги” с прочным основанием. Некоторые ископаемые кистеперые тоже жили в море; например, Tinirau clackae из Невады (387 млн лет назад) по некоторым чертам строения оказывается ближе к четвероногим, чем многие пресноводные родственницы.
Позднее рыбы неоднократно изобретали хождение по дну. Этим занимаются родственники удильщиков Antennarius, Brachionichthys и Sympterichthys, а также короткорылый нетопырь Ogcocephalus darwini, они делают это практически так же, как и амфибии, – шагая на видоизмененных плавниках, на которых даже появляются аналоги пальчиков. Bathypterois grallator стал ходячим треножником, он опирается на чрезвычайно удлиненные лучи плавников. Десяток видов илистых прыгунов Periophthalmidae вообще едва ли не большую часть времени проводят на суше и даже преимущественно на деревьях, вернее, на корнях мангровых деревьев, поднимающихся над водой выше человеческого роста (рыба, живущая на корнях деревьев, торчащих над водой, – не самый стандартный образ!). Неспроста они очень похожи на амфибий, а их грудные плавники, хотя и совсем не похожие на ноги, используются именно как лапки: ими они могут обхватывать стволики и веточки (в этом им помогают брюшная присоска и толстый хвост, служащий опорой), на них они прыгают, подобно лягушкам.

Рис. 10. Antennarius (а), Brachionichthys (б), Sympterichthys (в) и короткорылый нетопырь Ogcocephalus darwini (г).
Ближе к концу девона среди нескольких линий кистеперых параллельно возникли аналоги ног. Сколько всего было таких попыток – точно неизвестно. Из среднедевонских кистеперых к амфибиям наиболее близки Eusthenopteron, Tinirau и особенно Platycephalichthys. Но с “почти ногами” рыбы получили новые возможности. Ведь к этому времени на суше скопилось много всего вкусного: уже зеленели леса, а по ним ползали скорпионы и многоножки, первые пауки и насекомые-ногохвостки. Такой банкет никак нельзя было пропустить. Хотя первые насекомые были слишком мелкими для того, чтобы их ловили рыбы, но кормили собой тех, кем кормились рыбы.
Были и иные причины выползать на берега – например, для откладки икры в уединенных мелких бочажках, куда не доберутся злые хищники (кстати, кистеперые и сами были злыми хищниками). Так или иначе, но около 385–375 млн лет назад кистеперых “прорвало”: Panderichthys rhombolepis из Латвии и России, Elpistostege watsoni и более поздний, но и более распиаренный Tiktaalik roseae из Северной Канады, а также, без сомнения, другие подобные твари поползли сначала по дну, а потом и по илистым пляжам. Их конечности еще трудно назвать ногами, поэтому обычно их все же считают рыбами Elpistostegalia. Но план строения наших рук и ног тут уже хоть и с трудом, но узнаётся. Остается удивляться, как быстро шел прогресс: не минуло и десятка миллионов лет, как уже появились амфибии Ichthyostegalia. Древнейшие из них – Elginerpeton pancheni из Шотландии – имеют ту же датировку, что и пресловутый тиктаалик – 375 млн лет назад. Дальше – больше: Ventastega curonica из Латвии, Hynerpeton bassetti из США, Acanthoostega gunnari и Ichthyostega stensiovi из Гренландии, Tulerpeton curtum из Тульской области – все они зашлепали по девонским болотам. Завоевание суши удалось.

Рис. 11. Platycephalichthys (а), Panderichthys rhombolepis (б) и Tiktaalik roseae (в).
Минутка фантазии. Многие из первых четвероногих около 365 млн лет назад имели нестандартное с нашей точки зрения число пальцев. Так, Tulerpeton curtum обладал шестью пальцами на передней и шестью на задней лапах, Ichthyostega stensiovi шевелила семью пальцами на задней ноге, а Acanthoostega gunnari – аж восемью на передней. Количество же лучей в плавниках кистеперых может быть еще намного большим. То, что все наземные позвоночные в итоге оказались потомками пятипалой рыбоамфибии, просто-напросто случайность – одна из миллионов, сопровождавших нашу эволюцию. Как знать, будь мы правнуками восьмипалой акантостеги, может, и умелые ручки возникли бы раньше? Какие бы перспективы перед нами открылись! Клавиатуры компьютеров в полтора раза шире, сложнейшие жестовые языки, удивительные театры пальцев, чудесные манипулятивные способности – мечта фокусника и карманника… Впрочем, тогда мы бы мечтали о десятке пальцев. Порадуемся же, что наши предки не растеряли и тех пяти, что имели. Совсем иное строение конечностей мы могли бы иметь, произойди наши предки от двоякодышащих. Плавник рогозубов имеет хрящевую основу в виде членистого стебля с двумя рядами “веточек” по бокам. Такая структура совсем не похожа на наши руки и ноги. Из нее вышли бы отличные ногощупальца с бахромой гибких пальцев, которыми можно было бы обвивать предметы куда более изящно, чем это делаем мы своими фалангами… Впрочем, прочность подобной структуры невелика, неспроста она проиграла в девонском конкурсе освоителей суши.От тех времен нам досталась одна странность. В предплечье локтевая и лучевая кости в расслабленном положении, когда ладонь повернута назад, расположены наперекрест. Вроде бы логичнее, если бы они были параллельны, как берцовые кости в ноге. Но эволюционная логика бывает странна. Ведь первые наземные четвероногие ползали на растопыренных в стороны лапах, у них локтевая и лучевая действительно не пересекались, а кисти торчали вбок. Примерно такое же расположение сохраняется и у рептилий. Однако когда зверообразные рептилии – предки млекопитающих – выпрямляли свои передние ноги, более эффективным оказалось развернуть кисть пальцами вперед, так толчок получается мощнее, шаг бодрее. Но кости в предплечье уже не могли поменяться местами и оказались скрещенными.
Надо сказать, что человеческая пятипалая рука сохраняет крайне примитивный план строения. Даже у банальной лягушки, будь она трижды амфибия, кисть более специализирована, чем у нас, хотя бы потому, что у нее и число костей в запястье, и число пальцев уменьшено по сравнению с исходным вариантом. Остается удивляться, как весь бесконечный ряд предков человека умудрился донести до наших времен столь архаичный вариант, ничего не растеряв по пути.
Очередное наше везение заключается в том, что некоторые амфибии эволюционировали слишком медленно. Например, у современных лягушек кости предплечья, а также малая и большая берцовые кости сращены, чтобы было легче скакать. Из таких лапок труднее получить хватательные руки-ноги, чтобы лазить по деревьям (квакшам, впрочем, это удается, но за счет подвижности стопы и присосок на пальцах). Если бы амфибии быстро достигли своего прыгучего совершенства, то, возможно, древесные млекопитающие никогда не возникли бы. А не будь древесных предков, не было бы и слезших с дерева потомков…
Подытожим: руки и ноги развились из плавников, чьим первоначальным предназначением было плавание, а вторым – ползание по дну.
Кстати, о семенах и деревьях… Предки семенных растений – Runcaria heinzelinii – росли в Бельгии в среднем девоне 385–387 млн лет назад (Gerrienne et al., 2004). Они еще сыпали спорами, но уже не простыми, а особыми, разного размера: мелкими, имеющими претензию быть настоящей пыльцой, и крупными в мегаспорангии, окруженном специальной оболочкой-интегументом, которая того и гляди станет семенной кожурой. Чуть позже китайский плаун Sphinxiocarpon wuhanensis вплотную приблизился к созданию истинных семян. Не прошло и двадцати миллионов лет – и вот в позднем девоне, около 365 млн лет назад, в Северной Америке мы уже встречаем первые семенные растения, Elkinsia polymorpha и Moresnetia zalesskyi. Семена имеют защитные оболочки и питательные вещества, существенно повышающие выживаемость зародышей и позволяющие избежать зависимости от воды. Гаметы более примитивных споровых растений распространяются водой, так что плауны, хвощи и папоротники привязаны к берегам или как минимум очень влажным местообитаниям. Семена растений совершили тот же переворот, что спустя много миллионов лет удалось амниону рептилий: растения окончательно и бесповоротно захватили сушу, сделав возможным выход на нее крупных животных. Пройдут еще многие миллионы лет, и на основе семян голосеменных возникнут плоды покрытосеменных, которые станут основной пищей приматам и создадут человека. В середине девонского периода совершилось еще одно великое событие, которое в тот момент вроде бы не предвещало появления человека, но было его необходимейшим залогом: возникли деревья! В начале девона – как минимум до 400 млн лет назад – деревьев точно не было, а наземные растения представляли собой невзрачные тонкие слабоветвящиеся псилофиты, не имевшие настоящих листьев и корней и жавшиеся к берегам водоемов. Но 385–386 млн лет назад планета обрела уже настоящие леса. Древнейшим известным деревом является папоротникоподобный Eospermatopteris, или Wattieza, чьи как минимум восьмиметровые стволы возвышались там, где сейчас находится штат Нью-Йорк в США (Stein et al., 2007). Но более того, тщательные исследования показали, что в этом древнейшем лесу было как минимум три вида крупных растений: вокруг папоротников обвивались лианоподобные предки голосеменных Aneurophytales, а между ними пейзаж разнообразили древовидные плауны Lycopsida (Stein et al., 2012). Благодаря постоянному затоплению (это даже не “допотопный”, а настоящий “потопный” лес) многие части стволов и ветвей сохранились в своем окаменевшем великолепии, а палеоботаники могут изучать экосистему конца среднего девона. Казалось бы, при чем тут деревья? Однако они несколько раз сыграли ключевую роль в эволюции наших предков. Некоторые исследователи считают, что пни, торчавшие под водой, и упавшие стволы, загромождавшие водоемы, способствовали развитию конечностей еще у полностью водных кистеперых рыб, которые, будучи крупными животными, не могли свободно резвиться в подводном буреломе, а были вынуждены ползать по этим завалам, цепляясь зачатками пальцев за кору. Кроме того, леса стали гостеприимным домом для многочисленных членистоногих, которые, в свою очередь, послужили пищей предкам земноводных и, стало быть, оказались важнейшим условием выхода позвоночных на сушу. Без лесов и букашек в них рыбам нечего было делать на неуютных песчаных берегах. Далее, надо думать, леса обеспечили тень. Казалось бы – мелочь, но для животных, еще не приспособившихся жить вне воды, высыхание было огромной проблемой. Лучи солнца быстро сушили несчастных пионеров суши, а в вяленом состоянии эволюционировать трудно. Даже современные амфибии предпочитают не выползать под прямой солнечный свет. Тощие и низкорослые псилофиты не могли дать приличной тени, так что потенциальным первооткрывателям вневодных пространств пришлось ждать появления более основательной защиты. Неспроста на границе среднего и позднего девона одновременно появляются и деревья, и первые переходные водно-наземные рыбоамфибии. Наконец, в далеком-далеком будущем именно деревья стали домом приматам, но до этого должно было произойти много всего интересного…Выход на сушу сопровождался и иными достижениями: на глазах появились мигающие веки, смачивающие глаз слезой. Сам глаз обрел способность к аккомодации – наведению резкости изображения. Стала гораздо менее актуальна боковая линия – фактически ухо, растянутое вдоль всего бока от головы до хвоста. Она сохраняется у головастиков и лишь редко у взрослых амфибий (например, у прибрежной саламандры Stereochilus marginatus). Взамен появилось среднее ухо со слуховой косточкой.
Были и странности: дыхательная система уползла из глотки (жабры) в грудную клетку (легкие), и сердце последовало за ней, а мозги остались спереди. У рыб артериальная кровь из жабр попадает первым делом в рядом расположенные мозги, но у амфибий система перекосилась: в сердце кровь оказывается смешанной, мозги получают не чистую артериальную кровь. Обычно в школе появление двух кругов кровообращения преподносится как великое прогрессивное достижение, но для амфибий это был, вообще-то, регресс. На самом деле малый круг (от сердца к легким и назад, в котором венозная кровь становится артериальной) возник как попытка выправить возникшее нарушение идеально действовавшей доселе системы, причем первый блин оказался комом. Частично это компенсируется кожным дыханием, у самых продвинутых жаб – появлением частичной перегородки в желудочке (в школе она упоминается как изобретение рептилий, но это не так), но все-таки, когда начинаешь дышать выростом пищеварительной системы и наружными покровами вместо приличных жабр, сразу все не отрегулируешь.
Усовершенствовался у амфибий мочевой пузырь – место хранения воды, чтобы не засохнуть. У амфибий его стенки могут впитывать воду обратно в кровь. Особенно здорово запасаются жидкостью пустынные австралийские жабы Litoria platycephala, из которых аборигены выдавливают воду, чтобы напиться. Если бы над первыми амфибиями не нависала опасность высыхания, наши представления о гигиене выглядели бы совсем иначе.
Согласитесь – у земноводных уже почти наше строение, не хватает пары мелочей. И эти “мелочи” не замедлили появиться…
Глава 13. Звено 8: амнион. (средний карбон, около 340–315 млн лет назад).
Амфибии заселили сушу, но не до конца. Они по-прежнему были привязаны к воде, например необходимостью смачивать голую кожу. Но главным тормозом на пути окончательного завоевания сухих просторов был тип размножения. Амфибии откладывают икру в воду, и головастик живет в воде, дышит наружными жабрами и вообще представляет собой фактически рыбку, причем бесчелюстную. И икра, и головастик при высыхании гибнут. Многие амфибии пытаются решить эту сложность: обвиваются вокруг икры в норе (Ichtyophis), строят гнезда из листьев и слизи (Phyllomedusa и Rhacophorus), вынашивают икру в собственной спине (Pipa и Gastrotheca), голосовом мешке (Rhinoderma darvini) и даже желудке (Rheobatrachus), но все это полумеры. Хорошим выходом является живорождение, его смогли освоить водные червяги Typhlonectes, саламандры Hydromantes, лягушки Limnonectes larvaepartus и жабы Nectophrynoides occidentalis. Любопытно, что у последних головастики в организме матери дышат через хвост! Чем не альтернатива плаценте? Если вдуматься, мы в такой же ситуации дышим животом через пупочный канатик – тоже странное приспособление. Но в карбоне амфибии, видимо, были еще не столь изощренны, так что им пришлось искать иные решения. На кону стоял большой куш, нашедшему доставались все ресурсы пространств, простиравшихся дальше родных болот. Ведь карбоновые растения уже обрели впечатляющие размеры, а некоторые – достаточно развитые корни. Большинство из них, правда, росло наполовину в воде (тут и процветали разнообразнейшие амфибии-“стегоцефалы”), но папоротникоподобные глоссоптерисы потихоньку осваивали более сухие земли, а расплодившиеся насекомые и многоножки так и просились, чтобы кто-нибудь их съел. И к середине периода земноводные изобрели амнион.
Амнион – водонепроницаемая зародышевая оболочка, заполненная амниотической жидкостью, по сути – индивидуальный бассейн для зародыша. В нем он может спокойно плавать, а чтобы никто его не тревожил, из внешней оболочки трофобласта можно сделать прочную скорлупу – кожистую или даже известковую. Получается яйцо, теперь его можно положить куда угодно, закопать в песок или листья, и ничего с ним не сделается. Главное, чтобы оно не замерзло, но этой проблемы в первой половине карбона, кажется, не было. Открытие амниона настолько важно, что рыбообразные и амфибии называются анамниями, а рептилии, птицы и млекопитающие – амниотами, то есть ящерица существенно ближе к нам, чем к тритону или лягушке.
Кстати, о грибах и стрекозах… Климат в начале карбона был отличный, но в течение всего периода холодало, а завершился он ледниковым периодом. Огромные массы растений захоранивались в виде угля, то есть углерода, а это значит, что из атмосферы постоянно убирался углекислый газ. А углекислый газ создает парниковый эффект, согревающий планету. Когда количество углекислого газа в атмосфере уменьшается десятки миллионов лет, немудрено, что планета зябнет. Как знать, может, так бы и превратилась она в ледышку, если бы не спасительные грибы. Они самоотверженно научились переваривать лигнин – самый несъедобный компонент растений. Поток углекислого газа освежил атмосферу, и вторая половина пермского периода ознаменовалась радикальным потеплением. Восславим же гнилостные грибы за спасение планеты и наше счастливое настоящее! С другой стороны, многочисленные растения, аккумулируя в своих стволах углерод и выделяя кислород, насытили последним атмосферу, позволив возникнуть гигантским членистоногим: полутораметровым многоножкам Arthropleura, стрекозам Meganeura с размахом крыльев до 65 см и прочим исполинам. Ведь их трахейная дыхательная система – один из главных ограничителей размера, а при избытке кислорода даже с трубочками в мозгах можно подрасти. Насекомые расцвели. Одни карбоновые тараканы чего стоят! А мимо такой усатой шуршащей братии невозможно пройти равнодушным. Если есть так много еды, уползающей и улетающей от водоемов, найдутся и те, кто за ней устремятся. Ради таких вкусняшек не грех и амнион отрастить. Так, в погоне за тараканами, из наших предков-амфибий выковывались наши предки-рептилии.Стадия головастика у нас никуда не делась, просто сместились сроки вылупления и метаморфоза: у амфибий сначала головастик выходит из икры, а потом теряет жабры и отращивает челюсти; у нас же, напротив, сначала исчезают зачатки жабр и формируются челюсти, а потом ребенок рождается.
Конечно, одним амнионом сушу не завоюешь. Окончательный выход на сухие просторы требует перестройки кожных покровов, органов чувств и конечностей. Кожа становится непроницаемой для воды, глазам и ушам теперь необязательно чувствовать в воде, их можно усложнить (в частности, появляются задние – слуховые – холмики четверохолмия среднего мозга), ноги должны бегать по земле, а грести им уже не надо, в мозге заметно увеличивается мозжечок. Появляется реберное дыхание. Вообще-то амфибии дышат наполовину кожей (безлегочные саламандры так и вообще только ей), а в легкие воздух накачивают горлом, но на суше держать кожу влажной невыгодно, а одним горлом много не надышишь. У современных амфибий ребра обычно редуцированы напрочь, в лучшем случае имеются лишь их маленькие рудименты, ведь они немало весят, а с низким обменом веществ таскать лишнюю тяжесть ой как нелегко. Но массивным карбоновым “стегоцефалам” ребра были нужны для поддержания формы тела, по совместительству же они стали обеспечивать вдох. Исчезни ребра раньше появления амниона – не быть нам теплокровными, не быть нам умненькими-разумненькими.
Но это все – дело наживное. И вот в середине карбона Канады (312–315 млн лет назад) мы встречаем первых рептилий Hylonomus lyelli и Paleothyris acadiana. Внешне они были не очень презентабельны – невзрачные как бы ящерки, – но какой это был прорыв! Актуальность приобретения независимости от воды наглядно подтверждается обилием попыток рептилизации: это нижнекарбоновые Whatcheeridae, Crassigyrinidae, Casineria kiddi и Westlothiana lizziae, а также иные твари. Даже в следующем – пермском – периоде несколько групп амфибий продолжали заново изобретать черты пресмыкающихся.
Тут нам снова повезло. На самом деле не все рептилии стали совсем рептилиями. Как обычно бывает, нашлись консерваторы и ретрограды, сохранившие массу амфибийных черт, например голую кожу без чешуи, но с многочисленными железами. Именно из таких недорептилий и возникли после млекопитающие. А не то трудно было бы создавать потом шерсть и молочные железы. Но это уже совсем другая история…

Рис. 12. Hylonomus lyelli и пень Sigillaria.
Кстати, о пнях и елках-палках… Деревья карбонового периода были не совсем такими, как сейчас. Исполинские плауны сигиллярии Sigillaria, похожие на раздвоенные двадцатиметровые кисточки, имели очень слабую древесину в середине и прочную кору снаружи. Когда дерево падало, пень быстро выгнивал изнутри и превращался в огромную бочку-ловушку. Во время паводков туда заносило несчастных зверюшек, а после спада воды они уже не могли выбраться наружу. Благодаря такому коварному устройству стволов сигиллярий мы теперь имеем останки первых рептилий гилономусов Hylonomus: их скелеты так и пролежали в пнях больше 300 млн лет. Однако пни с трещинами просто наверняка служили тем же существам отличным домом-убежищем, тут они могли чувствовать себя в безопасности, ведь по окрестным болотам ползало немало ужасных хищников. С тех пор пни и дупла исправно служат общежитием для мириад разнообразнейших существ. Отлично описал это Дж. Даррелл в книге “Зоопарк в моем багаже”: Обкуривать дупло – дело долгое и сложное, своего рода искусство. Прежде чем за него приниматься, надо выяснить, ждет ли вас добыча, заслуживающая таких усилий. Если в самом основании ствола есть большое отверстие, выяснить это сравнительно просто. Вы засовываете внутрь голову и просите кого-нибудь постучать по стволу палкой. И если в дупле прячутся животные, вы, как только стихнет гул, услышите беспокойное движение или во всяком случае догадаетесь о присутствии зверя по ливню гнилой трухи… Теперь можно разжигать костер… Дым будет уходить в полый ствол, как в дымоход. Дальше могут случиться самые неожиданные вещи, ведь в дуплах обитает все на свете – от плюющей кобры до циветты, от летучей мыши до гигантской улитки. Половина интереса в том и заключается, что невозможно предугадать, с чем вы встретитесь[2]. Не исключено, что именно такие места заронили в наших предков склонность к жизни в уютной тесноте – в ней кроется половина смысла самого слова “уют”, немалая часть оставшейся половины – сопутствующий полумрак. Другим вариантом были норы, но их еще надо копать, а пни всегда готовы. Неспроста людей – особенно детишек – так и тянет залезть под выступающие корни и в дупла, когда таковые находятся. В последующем вибриссы млекопитающих стали отличным определителем защищенности; например, когда крыса чувствует со всех сторон стены, ей хорошо, а если ее посадить в обширный вольер, где она не ощущает спасительного окружения, то может и умереть от такого ужаса. Конечно, до млекопитающих в карбоновом периоде было еще не слишком близко, но желание ощущать стены-защиту со всех сторон восходит, по-видимому, еще к тем временам. Когда вам в следующий раз захочется завернуться в одеяло и обложиться подушками, свернуться с ногами калачиком на кресле с высокими подлокотниками и вжаться в его глубокую спинку, обставить квартиру комодами и шкафами непременно темного дерева, с многочисленными полочками, дверцами и таинственными недрами, вспомните о гилономусах в сигилляриевых пнях… Древесина не только сигиллярий, но и плаунов-лепидодендронов Lepidodendron, и древовидных хвощей-каламитов Calamites была очень слабой и рыхлой, сделанной из первичной ксилемы, прочность ствола обеспечивалась в основном мощной корой, у хвощей к тому же щедро сдобренной кремнеземом. Корни тоже были довольно хилыми, что компенсировалось увеличением их размеров или, иногда, огромным корневищем. Недоразвитость механической ткани не давала возможности таким деревьям обильно ветвиться, даром что высотой они могли быть до 35 м. Метелки с чешуевидными недолистьями-филлоидами язык не поворачивается назвать кронами, а плауновидные Lophiodendron и Tomiodendron так и вообще были чем-то вроде столбов. На таком дереве особо не порезвишься, так что и древолазящие животные в это время даже не предполагались. Но в конце карбона – 323–299 млн лет назад – наконец-то появились голосеменные-кордаиты Cordaites, обзаведшиеся вторичной ксилемой, то есть приличной механической тканью, позволившей им отрастить ветвистые кроны наподобие современных сосен и нормальные устойчивые корни. По сути, растения приобрели внутренний скелет взамен наружного; произошла смена “беспозвоночных членистоногих” растений (хвощи такие и есть – членистостебельные) “позвоночными”. С этого момента стала принципиально возможной жизнь на деревьях. До нее оставались миллионы лет, но именно тогда – в зеленых кронах каменноугольных кордаитов – были заложены предпосылки возникновения приматов и человека.Глава 14. Звено 9: классы зубов, уши и шерсть. (пермь, 300–250 млн лет назад).
Пермский период был временем чудес. В морях плавали странные акулы Helicoprion с циркулярками во рту, по болотам ползали огромные “стегоцефалы” типа Eryops и Mastodonsaurus с метровыми головами, а Platyoposaurus stuckenbergi успешно изображал из себя крокодила, в лужах бултыхались рогатые Nectridea, амфибии Seymouriamorpha и Chroniosuchidae все еще упорно пытались стать рептилиями. Diadectomorpha настолько странны, что и не разберешь – земноводное это или пресмыкающееся. Среди собственно рептилий тоже что ни тварь, то феномен. По озерам плавали надувные Pareiasauria с третьим глазом на макушке и гавиалоподобные Mesosaurus с полным ртом зубов, Eunotosaurus africanus был похож на длиннохвостую черепаху, по ветвям порхали Coelurosauravidae с фестончатым черепом, невероятно сходные с современным летучим дракончиком Draco. Хватало и других.
Самой же странной и одновременно преуспевающей группой пермского периода стали зверообразные рептилии Theromorpha, известные также как синапсиды Synapsida, в особенности их основная часть – терапсиды Therapsida. Строго говоря, появились синапсиды еще в самом конце карбона, но интересующие нас черты приобрели в перми.
Одно из самых заметных приобретений зверообразных – гетеродонтная зубная система, то есть разделение зубов на классы. Передние обычно уменьшены и используются для отщипывания чего-то не очень прочного; чуть подальше зубы, напротив, резко увеличиваются и становятся клыками, нужными для демонстраций, удержания и убивания добычи или выковыривания корешков; самые задние зубы, на которые приходится самое большое давление, так как они приближены к челюстному суставу, становятся либо острыми режущими гребнями, либо широкими жевательными жерновами. Гетеродонтия возникала в животном мире неоднократно. Уникальны, например, растительноядные динозавры Heterodontosauridae и крокодилы Pakasuchus kapilimai, чья зубная система феноменально напоминала нашу.
Но зверообразные рептилии сделали особую ставку на свои зубы. Если у примитивных пеликозавров Pelycosauria разница в размерах зубов еще не очень заметна, то у всех прочих она уже чрезвычайно велика. Особенно полюбились тероморфам клыки – они огромны почти у всех зверообразных, как хищников (Titanosuchia, Eotitanosuchia и Gorgonopsia), так и растительноядных (Tapinocephalia), а у продвинутых дицинодонтов Dicynodontia остались вообще единственными зубами. Среди Venjukoviamorpha Ulemica invisa имела большие направленные вперед резцы и, видимо, была аналогом грызунов.
Параллельно с зубами менялись жевательная мускулатура и нижняя челюсть; в частности, зверообразные научились жевать, появилась восходящая ветвь нижней челюсти и скуловая дуга на черепе. Теперь стало можно использовать пищу гораздо более эффективно. Когда крокодил ест добычу, чуть ли не больше половины он теряет, потому что может только оторвать кусок и проглотить его целиком. А уже в желудке крупный неразжеванный шмат мяса переваривается, понятно, очень медленно и неэффективно. Еще хуже растительноядным, ведь у растений есть прочная целлюлозная клеточная стенка, недаром травоядные черепахи такие медленные во всех отношениях. Предки млекопитающих справились с этими сложностями: пища меньше теряется, пережевывается, мясо размельчается, клеточная стенка разрушается, и в итоге еда лучше усваивается, а на этой основе можно и обмен повысить.

Рис. 13. Схема классов зубов.
В последующем некоторые млекопитающие полностью утеряли часть достижений пращуров; например, у дельфинов все зубы одинаковы, а у муравьеда их вообще нет, но у большинства жизнь прямо зависит от гетеродонтности. Неспроста систематика млекопитающих – это в основном систематика зубов, а учитывая, что зубы – самый прочный элемент организма и в ископаемом состоянии сохраняются в основном именно они, эволюция зверей представляется обычно как эволюция зубов. Предки и родственники человека – не исключение. Взаимные пропорции резцов, клыков и моляров надежно отличают, скажем, грацильных австралопитеков от понгид, а парантропов от “ранних Homo”.
Уголок занудства. Зубы современных млекопитающих делятся на классы: спереди это резцы – плоские и широкие зубы, нужные для откусывания кусочков не очень прочной пищи; далее следуют клыки – по первоначальной задумке большие и острые, нужные для убивания или удержания добычи, но часто используемые только как сигнальные приспособления; после – премоляры (они же предкоренные) с назначением промежуточного раздавливания пищи; заканчивают ряд моляры (они же коренные; кстати, стоит подчеркнуть, что “коренные” не значит “постоянные”, это не генерация, а класс зубов) – широкие и часто бугристые, необходимые для пережевывания и перетирания еды. Классы зубов обозначаются латинскими буквами: резцы – I, клыки – C, премоляры – P, моляры – M. Номер верхних записывается верхним индексом (например, I¹), а нижних – нижним (например, M3). Для простоты зубы считают только в половинке челюсти; количество зубов называется зубной формулой. У человека формула такова: 2123/2123, то есть в верхней челюсти с одной стороны 2 резца, 1 клык, 2 премоляра и 3 моляра, в нижней – то же количество; всего 32 постоянных зуба. Исходная формула для приматов – 2143/2143, причем у предков человека исчезли первые два премоляра в каждой челюсти, так что первый человеческий премоляр в общеприматном масштабе на самом деле P3, а второй – P4. Молочные зубы обозначаются маленькими латинскими буквами: i, c и m. Секрет в том, что у ребенка на том месте, где у взрослого будут постоянные премоляры, растут зубы, морфологически похожие на постоянные моляры (отчего они называются молочными молярами; соответственно, молочная формула 212/212, всего 20 молочных зубов), а того места, где будут постоянные моляры, у малого дитятки вообще пока нет, так как челюсть короткая. По мере роста челюсти появляется место для постоянных моляров. Правда, для третьего иногда простора не хватает, тогда он упирается в соседние, и начинаются проблемы; прорезывается он позже всех прочих и потому называется “зубом мудрости”. Впрочем, он может и вообще не вырасти. Закавыка, однако, состоит в том, что постоянные моляры являются на своем месте на самом деле первой генерацией зубов, так что в действительности они молочные, просто остающиеся на всю жизнь, а постоянных моляров у нас, строго говоря, вообще нет. Ежели дожить лет до девяноста и донести до этого почтенного возраста зубы – малореальное сочетание, – то можно осчастливиться третьей генерацией зубов (чаще это происходит с резцами), но это бывает крайне редко. Впрочем, иногда такое случается и в подростковом возрасте, когда, например, уже постоянный премоляр выпадает, а на его месте появляется новый зуб. Когда люди научатся искусственно регулировать эти процессы, можно будет выращивать зубы сколько влезет. Разные животные могут выращивать неодинаковое число генераций зубов. У акул и рептилий они растут по необходимости. Скажем, аллигатор сменяет каждый зуб в среднем полсотни раз. У большинства млекопитающих все как у людей (хотя, конечно, зубные формулы у всех свои), но у некоторых встречаются экзотические варианты. У некоторых неполнозубых нет молочной генерации зубов, а у кроликов и морских свинок молочные могут сменяться постоянными еще до рождения. У слонов и сирен – ламантинов и дюгоней – новые коренные зубы появляются в задней части челюсти и со временем смещаются вперед, замещая стертые передние, которые по надобности выпадают; таких генераций может быть сколько угодно. У слонов новые зубы перестают закладываться лет этак в двадцать, прорезываться – в сорок, а окончательно стираются в шестьдесят.Зубами можно ухватить добычу, но сначала ее надо найти. В этом может помочь слух. Рептилии слышат в значительной степени через нижнюю челюсть, ведь они ползают, прижимаясь к земле, неспроста они именуются пресмыкающимися; колебания от почвы через кости передаются к уху. Может, они бы и рады гордо поднять голову, но у них не очень получается, ведь уровень их метаболизма низок, в мышцах мало митохондрий, отчего мускулатура белая и не может долго тонически сокращаться. Поэтому рептилии движутся “мультяшно” – рывками, дерганно. По-своему это удобно: можно быстро метнуться из засады, как это делают крокодилы или удавы, можно даже взлететь – грудные мышцы некоторых птиц устроены все так же, но плавных изящных движений, упругой походки и долгой тяжелой работы без устали рептилиям совершать не дано.
Зверообразные рептилии ускоряли свой обмен веществ и совершенствовали конечности. По крайней мере, они смогли поднять свою переднюю часть тела над землей (в частности, они обрели истинный коракоид – особую независимую кость плечевого пояса; у человека коракоид срастается с лопаткой между 11 и 16 годами, превращаясь в клювовидный отросток, до этого времени ребенок еще немножко зверообразная рептилия). Но челюсть рассталась с почвой, а слышать хотелось. Большинство рептилий, а после и птицы решили эту проблему, усовершенствовав барабанную перепонку и прикрепив ее к задней части щеки, но пеликозавры были неудачниками, они не смогли развить аналогичное строение из-за особой формы височной области и слишком низкого прикрепления нижней челюсти: необходимость повышенного обмена веществ, начинающееся подразделение зубов на классы и, соответственно, боковые жевательные движения челюстей не позволяли приделать барабанную перепонку, как у рептилий, иначе она рвалась бы от нагрузок на челюсть. Укрепление задней части черепа и массивность единственной слуховой косточки-стремени грозили глухотой, а потому тероморфы пошли своим путем. Благо основание черепа и нижняя челюсть предков были сделаны из целой кучи костей. Одна из задних черепа – квадратная – и одна из задних челюсти – сочленовная, соединявшиеся с барабанной перепонкой, “переползли” вглубь, уменьшились и стали наковальней и молоточком. Вокруг они были окружены угловой костью (тоже из задней части нижней челюсти), превратившейся в барабанное кольцо, держащее и барабанную перепонку. Со всех сторон наползли элементы височной кости и скрыли кусок нижней челюсти – по совместительству среднее ухо – внутри черепа. Раз барабанная перепонка углубилась в череп, не мешает приспособить снаружи рупор – ушную раковину, благо ее не так сложно сделать из окружающей кожи. Иначе говоря, наружное ухо – это компенсация компенсации, попытка избежать потери слуха из-за побочных эффектов попытки избежать потери слуха, а не великое прогрессивное достижение.
От былой мозаики нижней челюсти у нас осталась лишь зубная кость. Так мы потеряли подвижность и растяжимость челюстей, навсегда утратили способность заглатывать предметы больше собственной головы (а жаль, иногда очень хочется!), зато по крайней мере не оглохли. Птицы, обладающие единственной слуховой косточкой и не имеющие наружного уха, слышат не хуже млекопитающих. Но зато мы можем жевать, а челюсти наши прочны.
Как уже говорилось, способность пережевывать пищу была одним из элементов, обеспечивающих повышенный обмен веществ. В ускоряющемся мире перми одной из главных ценностей была скорость. Обмен веществ тут как раз более чем важен. Ферменты в клетках обычно работают при определенной температуре, причем в довольно узком диапазоне, важно не остыть и не перегреться. Даже мы, гордящиеся своей теплокровностью, одеваем чего потеплее уже при плюс пятнадцати и жалуемся на жару при плюс тридцати. Холоднокровным же животным тем более непросто. Особенно остро вопрос стоит по утрам: кто первый успел растопить свою ферментативную топку, тот и первый съест хотя бы и холодных, но вкусных медляков или, напротив, успеет убежать от еще не раскачавшихся хищников.
Не раз животные изобретали способы собственного разогрева: бабочки и шмели делают это, трепеща крылышками, тунцы – сокращая мышцы. Много раз амфибии и рептилии независимо изобретали гребни-радиаторы на спине, обогащенные кровеносными сосудами, нагревающиеся прохладным утречком в восходящих лучах солнца и отдающие тепло в полуденную жару. Внешний вид таких животных удивительно схож: амфибия-темноспондил Platyhystrix rugosus, текодонты Arizonasaurus babbitti, Ctenosauriscus koeneni и Lotosaurus adentus, пеликозавры Edaphosaurus и Dimetrodon, динозавры орнитопод Ouranosaurus nigeriensis, зауропод Rebbachisaurus garasbae, тероподы Spinosaurus aegyptiacus и Deinocheirus mirificus, а также многие иные – все они обладали удлиненными остистыми отростками позвонков, между которыми была натянута кожа, а стегозавры Stegosauria ощетинились пластинами, расположенными в два ряда на спине, пронизанными множеством сосудов и выполнявшими всю ту же роль обогревателя или, напротив, охладителя.
Как видно из приведенного перечня, подобным путем пошли и некоторые ранние зверообразные – пеликозавры, причем как растительноядные, так и хищные. Но ползать, а уж тем более бегать с парусом на спине не очень-то удобно. Поэтому продвинутые зверообразные стали теплокровными. Этому способствовали разные приспособления; наверняка примерно в это время легкие обрели альвеолы – пузырьки, за счет которых поверхность выросла во много раз, обеспечивая организм бóльшим количеством кислорода, разогревающим телесную печку.
Усложнение органов чувств не ограничилось ушами. Зверообразные рептилии сохранили голую кожу без чешуи, но с железами. Такая кожа чувствительна и не мешает эти осязательные способности усилить. И вот морды тероморф ощетинились вибриссами – “усами”, которые каждый может лицезреть на любой кошке. Мы – люди, кстати, не уберегли столь ценное наследие. Даже у шимпанзе есть вибриссы, хотя и совсем короткие, незаметные снаружи среди обычных волос. Почти три сотни миллионов лет млекопитающие старательно берегли столь ценное приобретение, а наши предки в самый последний момент потеряли! Конечно, нет худа без добра: исчезновение вибрисс обусловлено мутацией-делецией части гена андрогенового рецептора, то есть регулятора стероидных гормонов, а такие изменения могли существенно сказаться на социальном поведении, взаимоотношении полов и стать важной вехой становления человеческих качеств психики (McLean et al., 2011).
Вибриссы – орган осязания, но принцип их устройства может быть использован и для формирования более основательных покровов. Длинные тонкие белковые выделения кожи (столь медленно выделяющиеся и столь прочные, что кажутся выростами, хотя по существу не отличающиеся, скажем, от затвердевшего пота) – богатейший источник новаций. Все уже догадались, что речь идет о шерсти. Строго говоря, точно мы не знаем, была ли шерсть у зверообразных рептилий, но ряд косвенных данных свидетельствует, что по крайней мере поздние цинодонты Cynodontia – наши непосредственные предки – были уже мохнаты. Шерсть – замечательная новация. Ведь усилившийся обмен позволяет нагреть тело, но этого мало, надо полученное тепло еще и сохранить. И мех тут действует как нельзя лучше. Причем для животных с несовершенной терморегуляцией это свойство даже важнее, чем для продвинутых. Даже современные яйцекладущие звери: утконосы, ехидны и проехидны – имеют густой мех, хотя теплокровными могут считаться лишь с некоторой натяжкой. А дальше из шерсти можно получить много всего интересного: иглы, хохлы, гривы, бороды и даже носорожьи рога.
Человек имеет занятный атавизм, доставшийся нам с тех времен: если нас напугать или выставить на мороз, то волоски на теле – руках, ногах, голове – поднимаются. Называется это пиломоторный рефлекс. У каждой шерстинки для этого имеется своя мышца, тянущая за волосяную луковицу. Вздыбливание шерсти помогает произвести впечатление на противника, увеличив видимый размер (для проверки сравните спокойную и испуганную кошку), или сохранить тепло. Человек – зверек тропический, почти совсем лысый, но нелегкая жизнь предков до сих пор двигает остатками нашей шерсти.
Кстати, о диалектике… Пермский период ознаменовался двумя великими событиями, кардинально повлиявшими на судьбы еще не созданного человечества. Во-первых, материки в последний раз сползлись на экваторе в суперконтинент Пангею, перекрыв экваториальные течения и вызвав похолодание и осушение климата. Это дало преимущества рептилиям с повышенным обменом веществ и вызвало расцвет зверообразных. Во-вторых, появились массовые насекомые с водными личинками – веснянки Plecoptera, ручейники Trichoptera и основная часть поденок Ephemeroptera (примитивные поденки появились раньше), которые аккумулировали в своих щуплых тельцах скапливающиеся в водоемах ценные химические элементы – прежде всего азот и фосфор, – а при разлете взрослых разносили эти вещества по водоразделам. Хотя каждая козявочка эфемерна, но вместе они – сила! Появился надежный канал возврата жизненно важных элементов из воды на сушу, что позволило растениям удалиться от берегов. Парадоксальным образом один из самых засушливых периодов стал временем озеленения пустынь: до этого лесами обрастали в основном берега морей, озер и рек, теперь же леса распространились вглубь континентов. В частности, в перми возникли засухоустойчивые хвойные вольциевые Voltziaceae. Где растения, там и животные – и вот по равнинам и по взгорьям заковыляли пеликозавры, дицинодонты и диноцефалы, за ними погнались горгонопсы и эотитанозухи, а под ногами у них путались тероцефалы и цинодонты – наши предки. Такая вот диалектика: материки сползались, насекомые разлетались, а вместе они делали общее дело – создавали человека.Менялось и зрение, причем частично в очень нестандартную сторону. Дело в том, что у первых амфибий и рептилий было не два, а три глаза. В рудиментарном виде третий сохраняется у некоторых современных лягушек, ящериц и гаттерий, причем может даже иметь хрусталик, сетчатку, нерв и вполне различает свет от тьмы, хотя и покрыт снаружи кожей; расположен он посреди головы. Третий глаз образуется на основе либо пинеального, либо парапинеального органа. У продвинутых зверообразных рептилий парапинеальный орган исчез совсем, а пинеальный погрузился вглубь увеличившегося мозга и стал эпифизом. У нас он выполняет массу функций, но многие из них по-прежнему завязаны на суточные ритмы. Конечно, свет на эпифиз прямо попасть уже не может, но зрительный нерв и тракт от стандартных глаз оканчивается в нескольких миллиметрах от эпифиза и связан с ним напрямую, так что с поступлением сигналов проблем нет.
На свету в эпифизе вырабатывается серотонин – один из главных нейромедиаторов, благодаря чему нам не хочется спать. У человека серотонин еще образно называют “гормоном счастья”, так как он отвечает в числе прочего за хорошее настроение. Совмещение функций приводит к тому, что настроение на свету действительно повышается, есть даже такой способ если и не лечения, то облегчения депрессии – освещение солнечным светом. В темноте в эпифизе серотонин преобразуется в мелатонин, и человек засыпает (на этой основе сделано отличное снотворное). Конечно, сон и бодрствование определяются многими другими факторами, ведь слепые люди тоже хотят спать, но регуляция через освещенность у нас преобладает. Кстати, любопытно, у ночных лемуров “гормоном счастья” является мелатонин?
Можно добавить, что некоторые особо экзальтированные граждане пытаются “открыть себе третий глаз” (иногда буквально – просверливая дырку в черепе), чтобы “связаться с космическими информационными потоками”, но делают это почему-то со стороны лба. На самом деле, из-за беспрецедентного разрастания конечного мозга эпифиз у нас оказался обращен назад; если уж и открывать себе третий глаз, то надо делать это на затылке, между мозжечком и затылочными долями полушарий. Впрочем, как раз в этом месте под черепом находится синусный сток – место соединения венозных синусов с кровью от мозга, так что попытка открывания “заднего глаза” гарантированно кончится фатально. Лучше мозг вообще не трогать…
Минутка фантазии. Третий глаз – это, конечно, круто, но наши зверообразные предки могли бы позавидовать миксинам. У этих бесчелюстных рыбообразных светочувствительные рецепторы, кроме собственно двух глаз, расположены еще и вокруг клоаки. Вот ежели бы этакую способность да развить бы!.. Это вам не банальный третий глаз на лбу, это ж круговой глаз вокруг… сами понимаете чего. Какие безграничные возможности утеряны! Впрочем, миксины здравствуют и поныне, может, через сотню-другую миллионов лет они еще возьмут реванш?Зверообразные рептилии имели массу замечательных достижений: прогрессивный мозг, хорошо развитые обоняние и зрение, наверняка более сложное поведение и, вполне вероятно, заботу о потомстве (хотя по-прежнему откладывали яйца). Позднепермская Dvinia prima, даром что рептилия, для неискушенного зрителя выглядит скорее как крыса. Кстати, как обычно бывает в эволюции, сразу несколько групп зверообразных рептилий попытались стать млекопитающими. Представители обширнейшей группы Therocephalia занимались этим миллионы лет, но так и не смогли обогнать наших предков Cynodontia.
Что же случилось? Что вызвало все эти события? Прогресс зверообразных рептилий был инициирован и подстегивался ужасным похолоданием на границе карбона и перми – одним из самых мощных за всю историю планеты, почти достигавшим значений плейстоценовых оледенений. Лавразия и Гондвана сомкнулись в единую Пангею, перекрыв экваториальное течение и нарушив мировые циркуляции тепловых потоков. В центре суперконтинента климат к тому же стал засушливым, зима отделилась от лета. Теплокровность, шерсть и эффективное пережевывание были в такой ситуации более чем уместны. Нам повезло, что похолодание наступило до того, как пресмыкающиеся успели закоснеть в своей рептилийности; трудно представить, как кожные железы и мех могут развиться на основе, скажем, черепах (впрочем, рептилийность черепах, как это ни покажется странным, сама по себе большой вопрос, но это совсем другая история). Слава пермскому оледенению – оно создало все основные предпосылки для появления в будущем млекопитающих.
Но все эти великие достижения не дали тероморфам решающих преимуществ. Дело в том, что их задние конечности оставались на удивление примитивными, они отставали от прогресса передних. Это отражалось и на внешнем виде: зверообразные выглядят как бы вечно присевшими на корточки, тщящимися поднять переднюю часть тела, но бессильно осевшими сзади. Техническое решение не находилось слишком долго, а конкуренты не дремали, тем более что холода закончились и уже к границе перми и триаса на всей планете сменились жарой, сопоставимой с девонской и эоценовой. В самом конце перми по России и Польше враскорячку бегал Archosaurus rossicus, а к концу триаса архозавры нашли способ поставить тело на прямые ноги. Теперь они могли быстро бегать, затрачивая намного меньше энергии, ведь стопы оказались прямо под центром тяжести. Архозавры, правда, в противоположность тероморфам не смогли толком выпрямить передние ноги, но это было не так критично, они просто встали на две задние. А эффективная терморегуляция со способностью согреваться изнутри – да кого она интересует в термоэру, когда и за полярным кругом снег не выпадает? Зверообразные безнадежно проиграли – на долгих 180 миллионов лет…
Глава 15. Звено 10: первые млекопитающие. (триас, 225 млн лет назад).
Граница перми и триаса ознаменовалась великим вымиранием – самым масштабным из тех, что затронули позвоночных, а возможно – вообще самым грандиозным из всех. Масса животных исчезла бесследно. Особенно пострадали морские организмы, но и по суше как Мамай в обнимку с Гитлером прошли – 75 % наземных видов было сметено с лица Земли. Бóльшая часть амфибий и рептилий канули в Лету. Но, как это обычно бывает, освободившееся место поспешили занять выжившие.
Пангея треснула и начала медленно расползаться, высвобождая пути для океанических течений, перемешивающих свои воды и согревающих планету. Заметно потеплело.
Триас – уникальный, чрезвычайно интересный и важный период, полсотни миллионов лет безвременья, когда не было никого “самого главного” – доминирующей группы животных, но появились все, кто играл главные роли на сценах будущего: перепончатокрылые и двукрылые насекомые, акулы более-менее современного типа, хрящевые ганоиды Chondrostei и костистые рыбы Teleostei, примитивные лягушки, черепахи, ихтиозавры, крокодилы, динозавры, птерозавры, птицы и млекопитающие. На первые места было много претендентов, порой весьма неожиданных; например, амфибии Trematosauroidea попытались завоевать море – странно для животных с проницаемой голой кожей; до сих пор непонятно, как им это удавалось, нынешние земноводные в соленой воде жить не могут.
На суше тоже все желающие столбили высвободившиеся места под солнцем. Впрочем, некоторые занимали места под луной: в ночной прохладе наработки зверообразных рептилий весьма пригодились, терапсиды выправили имевшиеся недостатки, и к середине триаса можно говорить уже о млекопитающих. Древнейший известный нам зверь – Adelobasileus cromptoni из Северной Америки (225 млн лет назад). Позже появились и другие подобные создания. Внешне все они напоминали землеройку. К сожалению, мы знаем об этих животных до крайности мало, ведь до нас дошли преимущественно зубы и обломки челюстей. Но мы видим, что зубная и слуховая системы у них были уже явно не рептильными.
Впрочем, черты пресмыкающихся не могли исчезнуть сразу и навсегда. Так, Morganucodon watsoni (205 млн лет назад) имел свободные шейные ребра, не имел эпифизных окостенений длинных костей (что весьма странно) и, скорее всего, был яйцекладущим. Крайне мелкие размеры – 10 см без хвоста при весе 20–30 г – и сравнение с современными однопроходными показывают, что из яиц появлялись, скорее всего, фактически эмбрионы. Этой особенностью первые млекопитающие принципиально отличались от рептилий, у которых вылупившиеся детеныши полностью самостоятельны и отличаются от взрослых лишь размерами и неспособностью к размножению. Очевидно, мизерных и беспомощных детенышей надо старательно выращивать. По всей вероятности, уже в триасе, а то и в перми мамы начали выкармливать малюток молоком. Первоначально молочные железы возникли из потовых, особой разницы между ними у однопроходных нет. У утконоса, ехидны и проехидн нет сосков, а молоко выделяется прямо на животе, на двух молочных полях, фактически потеющих молоком, которое детеныши слизывают.

Рис. 14. Adelobasileus cromptoni (а) и Morganucodon watsoni (б).
Выкармливание детенышей некими выделениями типично не только для млекопитающих. У рабочих пчел вырабатывается маточное молочко, и если им кормить личинку, то из нее разовьется новая матка, – поистине царская диета (будущих рабочих кормят пергой – смесью пыльцы и меда). У некоторых скатов и акул еще в утробе матери эмбриону в рот впячивается специальный вырост, выделяющий аналог молока. Кожными выделениями кормят молодь рыбки дискусы Symphysodon aequifasciata, а также самцы индийских сомиков-мистов Mystus aor и M. seenghala. В зобе голубей образуется “птичье молоко”, которым они кормят птенчиков в первые дни после вылупления; пингвины и фламинго выделяют аналогичное вещество стенками пищевода и желудка, причем у последних “молоко” розовое – как и сами птицы.
Выкармливание молоком повлияло и на зубы млекопитающих. У рептилий после вылупления зубы успевают смениться несколько раз, а челюсть растет, в итоге положение зубов относительно друг друга получается довольно хаотичным. У млекопитающих до некоторого момента зубы не нужны и даже вредны. У детенышей их нет, число смен сокращается, а когда зубы появляются, челюсти уже имеют более-менее крупные размеры, так что зубы выстраиваются в более постоянном и стандартном порядке, чем у рептилий. Становится возможным точное смыкание-окклюзия, а это опять же повышает эффективность хватания, разрывания и жевания пищи.
Забота о беспомощном потомстве неизбежно должна способствовать и развитию мозга и усложнению поведения.
Уголок занудства. Млекопитающие унаследовали от зверообразных предков и развили целый комплекс особенностей. Теплокровность-гомойотермия и интенсивный обмен веществ обеспечиваются интенсификацией дыхания, что возможно благодаря исчезновению брюшных ребер, появлению диафрагмы, тянущей легкие в новом направлении, и альвеолярному строению этих легких. Млекопитающие обрели поясницу: поясничные ребра окончательно срослись с поперечными отростками позвонков (нынешний поперечный отросток поясничного позвонка – это большей частью именно реберный отросток, то есть бывшее ребро, а настоящий поперечный если и виден, то в виде маленького пупырышка – добавочного отростка). Дело в том, что диафрагма отделила грудную полость от брюшной, так что дыхательная функция поясничных ребер стала неактуальной. С другой стороны, конечности стали вертикальными и переместились под тело, а из-за этого горизонтальные движения позвоночника грозят неустойчивостью и падением (рептилиям проще – у них ноги враскорячку, да и вообще они лежат на пузе, а не приподняты над землей, так что можно изгибаться вбок сколько угодно, не упадешь). Со звериным положением ног лучше изгибать позвоночник вверх-вниз, но поясничные ребра этому мешают, стучась друг об друга, поэтому млекопитающие от них избавились. Навсегда пропали у млекопитающих брюшные ребра: защищать живот у маленькой и в любом случае уязвимой зверюшки нет смысла, а спасаться гораздо проще, убегая, извиваясь и протискиваясь в щели, чему лишние кости только мешают. Итогом стала вертикальная подвижность поясничного отдела позвоночника, теперь мы можем наклоняться вниз. Без этого гораздо труднее было бы создать поясничный лордоз, прямохождение и собирательство руками в полусогнутом положении. Как бы мы копали картошку и дергали морковку на даче с поясничными и брюшными ребрами? По той же причине и тому же принципу исчезли и шейные ребра. Теплую кровь разносит по телу четырехкамерное сердце, а из двух дуг аорты сохраняется только левая (птицы, что характерно, избавились как раз от левой, оставив правую – симметричное и равное по сути решение): это дает экономию сил, ведь в одном сосуде трение крови о стенки вдвое меньше, чем в двух. Полученное тепло сохраняется благодаря шерсти, которая заодно усиливает осязательные способности. Кожа сохраняет и развивает многочисленные кожные железы, в том числе запаховые, сальные, потовые и на их основе – молочные. Конечности совершенствуются, выпрямляются под тело (хотя и не сразу, и не у всех). Безъядерные эритроциты млекопитающих лучше переносят кислород. Замечательно, что у амфибий эритроциты очень большие, но плотность их невелика, ведь этим задумчивым животным надо не так много кислорода. У рептилий красные кровяные клетки заметно меньше и вытянутее, ведь более бодрый характер подразумевает большие затраты кислорода, а при уменьшении объема площадь уменьшается медленнее, так что в том же объеме крови можно иметь большую площадь мембран и, стало быть, переносить больше кислорода. Птицы и млекопитающие теплокровны, но по-разному решили геометрическую задачу дальнейшего прироста площади клеток. Эритроциты птиц стали еще мельче и еще вытянутее – так их можно уложить плотнее, зазоров остается меньше. Млекопитающие же (начиная с яйцекладущих), кроме уменьшения размера, избавились от ядра и вогнули стороны эритроцитов внутрь, а некоторые – копытные, которым надо много бегать, – еще и вытянули. Такие “плюшки” можно сложить еще плотнее (и плотность действительно растет на порядки), больше кислорода – больше метаболизма, лучше работа мышц и мозга. Крупный головной мозг с развитыми полушариями конечного мозга, покрытыми новой корой неокортексом, – общая черта всех млекопитающих, от однопроходных до человека. Некортекс в числе прочих взял на себя функцию управления сознательными движениями, импульсы которых пошли по новому корковоспинномозговому пути (соответственно, возникли элементы этого пути – ножки мозга, продольные волокна моста и пирамиды продолговатого мозга). Не обошлось и без “мусора”: вентральный таламус, управлявший движениями у рыб и амфибий, у рептилий, птиц и особенно млекопитающих стал простым переключателем импульсов; по большому счету, он тормозит процесс, без него мы могли бы двигаться быстрее, но коли он уже есть в мозге, то деться никуда не может. Мутация, которая провела бы аксоны коры сразу до мышц без переключения на вентральном таламусе, слишком маловероятна. Самые первые млекопитающие имели мозг в 3–4 раза больше, чем у тероморф того же размера, заметно бо́льшую улитку внутреннего уха, гораздо более крупные и сложные обонятельные полости (сопоставление данных по современным животным показывает, что в разы увеличилось число обонятельных рецепторов). Изменения сказались и на внешности: у рептилий – и в том числе зверообразных – носовые отверстия на черепе разделены широким костным промежутком. У млекопитающих он сузился до тонюсенькой носовой перегородки, ушедшей внутрь (опять впячивание – универсальный процесс формообразования, проходящий красной нитью через всю эволюцию), так что снаружи осталось непарное носовое отверстие, хотя ноздри на мягком носе сохранились парными, разделенными лишь хрящом. Благодаря этому теперь мы можем вставлять в носовую перегородку кольца, косточки и прочие красивые бирюльки – очевидный прогресс по сравнению с рептилиями.Высокий обмен веществ у млекопитающих обеспечивается массой приспособлений. Одним из них является диафрагма – куполообразная мышца, разделяющая грудную и брюшную полости. Как ни странно, в эмбриональном состоянии диафрагма образуется из шейных мышц. Если же вдуматься, это логично, ведь легкие – вырост глотки – снизу должны быть ограничены именно мышцами, расположенными рядом с глоткой, то есть именно шейными. Иначе говоря, у нас низ головы провалился аж до живота (другими же словами, немалая часть нашего тела выше диафрагмы – это рыбья голова). Вообще, такое уползание части шеи до середины туловища было возможно, видимо, у созданий, у которых шея была еще существенно недоделанной – на уровне самых первых рептилий или даже амфибий. Так что зачатки диафрагмы, видимо, появились заметно раньше зверей.
Кстати, и строение легких, и уровень обмена у млекопитающих уступают птичьим. Правда, у птиц диафрагма не содержит мышечных волокон, а выполнена лишь соединительной тканью, зато у них есть воздушные мешки – выросты легких, проникающие между органами и даже внутрь костей. Благодаря этому у птиц двойное дыхание: на вдохе воздух из легких уходит в передние воздушные мешки, часть пришедшего снаружи воздуха заполняет сами легкие, а часть со свистом пролетает в задние воздушные мешки; на выдохе из передних мешков использованный воздух таки выдыхается окончательно, а из задних идет в легкие. Таким образом, насыщение крови кислородом происходит непрерывно. Благодаря этому и обмен птиц куда выше звериного; скажем, у колибри даже в состоянии покоя сердце выдает 500 ударов в минуту, а в полете тарабанит со скоростью 1200 ударов в минуту, то есть 20 в секунду! Впрочем, не факт, что птицы были в триасе, а если и появились, то им было далеко до колибри. Но крокодилы, динозавры и птерозавры наверняка уже тогда обладали диафрагмой.
Минутка фантазии. Птицеподобные существа в триасе однозначно имелись. Об этом свидетельствуют, во-первых, следы на песке в Аргентине, оставленные 220–225 млн лет назад, во-вторых, кости протоависа Protoavis texensis из Техаса с датировкой 210 млн лет. Далеко не факт, что эти двуногие животные могли летать, но они с большой вероятностью обладали многими птичьими чертами, в частности теплокровностью и оперением. Если бы они так не увлеклись полетом, то быстро могли бы стать весьма развитыми животными. Современные птицы имеют очень сложное поведение; например, вороны интеллектом не уступают мелким приматам. Главное и очевидное ограничение – размер мозга. С большой умной головой не очень-то полетаешь. Птицы так и не развили настоящего неокортекса. Зато они компенсировали его отсутствие сложностью мозжечка и полосатого тела, которое у них устроено сложнее, чем у млекопитающих. Полосатое тело – комплекс ядер конечного мозга – отвечает у человека в основном за память и эмоции, а птицы им еще и думают. Это, кстати, весьма любопытно: птицы мыслят, но совсем не тем местом, что мы. Если бы птицы не стали летать, они могли бы развить свои способности гораздо лучше. Разумные птицы могли бы быть гораздо моральнее людей, так как размышляли бы теми же центрами, что управляют эмоциями. Могли бы поумнеть и вернувшиеся на землю птицы (а такие появлялись уже в меловом периоде, стоит вспомнить патагоптериксов Patagopteryx deferrariisi, гаргантюависов Gargantuavis philoinos, бапторнисов Baptornis advenus и гесперорнисов Hesperornis regalis). Если бы птицам не мешали жить динозавры, например на каком-нибудь уединенном острове, а условия располагали к интеллектуализации, то, глядишь, появилось бы пернатое “парачеловечество”. Как не повезло птицам! Как повезло нам!Многим млекопитающие могут показаться прямо-таки совершенством. Но не так казалось в триасе. Все помянутые замечательные свойства еще долго не давали млекопитающим преимуществ перед рептилиями. Несколько раньше – как минимум 231 или даже 243 млн лет назад – появились динозавры: двуногие, быстрые, зубастые. Что толку в теплокровности и выкармливании детенышей молоком, если и так тепло, а здоровенный ящер может проглотить тебя целиком? При мелких размерах теплокровные животные становятся заложниками своего обмена веществ: они уже не могут делать ничего, кроме поддержания этого обмена, должны все время есть, есть и есть. Крупных зверообразных динозавры вытеснили, первыми изобретя вертикальные задние ноги, а потом было поздно: в крупный размерный класс путь млекопитающим оказался заказан до конца мезозоя. На долгие миллионы лет воцарилось динозавро-тероподное иго.
Оставалось прятаться, уйти во мрак ночи и микролабиринты лесной подстилки. Жизнь, конечно, на любителя, но тоже не такая плохая. Судя по некоторым местонахождениям, звери и по численности, и по видовому разнообразию частенько существенно опережали динозавров, так что еще вопрос, как правильнее называть мезозой – “веком динозавров” или “веком млекопитающих”. Но жизнь во тьме зарослей диктует свои условия. Зрение первых млекопитающих ухудшилось, зато они стали лучше нюхать. На каждый обонятельный рецептор приходится свой собственный ген, получаемый, впрочем, незамысловатым удвоением одного из предыдущих с некоторой его модификацией. В итоге из примерно сотни рецепторов, имевшихся у предков тероморф, получилось более тысячи у особо чувствительных современных зверей, известные рекорды принадлежат крысе – 1284 и мыши – 1194 (Kishida, 2008). Между прочим, это заметный процент генома! Многие приматы имеют примерно пятьсот рабочих генов (плюс еще триста нерабочих) и, соответственно, обонятельных рецепторов, но предки человека простились со значительной их частью, сохранив лишь 387 действующих штук (Fleischer et al., 2009). Хуже человека запахи чувствует только утконос (262 рецептора) и китообразные, у которых почти все или даже все обонятельные гены поломаны. Но свято место пусто не бывает даже в геноме: упрощение обоняния у приматов компенсировалось совершенствованием зрения, которое у нас лучше, чем у любых других зверей. Впрочем, в триасе до приматов было еще далеко…
Глава 16. Звено 11: живорождение и плацента. (юра, 160 млн лет назад).
Млекопитающие триаса и первой половины юрского периода были большей частью яйцекладущими. Живыми примерами служат однопроходные – проехидны, ехидны и утконосы. Но яйца по-своему уязвимы. Неспроста в самых разных группах животных возникает живорождение. Среди онихофор, насекомых, акул, костных рыб, земноводных и рептилий полно примеров такого способа размножения. Чем млекопитающие хуже? И вот в юрском периоде они тоже научились вынашивать детенышей. Собственно, поначалу разница была небольшой: просто раньше сначала самка откладывала яйцо, а после из него вылуплялся малыш, теперь же сначала детеныш вылуплялся, а потом рождался. Такой вариант называется яйцеживорождением, он типичен, например, для части скорпионов и гамазовых клещей, некоторых гадюк и ужей, морских змей и многих ящериц.
Но если вылупление происходит еще в организме матери, то зачем нужна скорлупа? Почто тратить дефицитный кальций? Лучше внешнюю оболочку – трофобласт, из коей раньше делалась скорлупа, сделать проницаемой и питать через нее растущий плод (до сих пор у однопроходных это обеспечивал желток яйца, но много ли запасешь его в яйце размером в сантиметр, где еще и детеныш поместиться должен?). И тут возникает настоящее живорождение. Для млекопитающих это уровень сумчатых. Однако когда плод вырастает чуть побольше, трофобласт уже не может в достаточной мере снабжать его питанием, ведь объем плода растет в кубической степени, а площадь трофобласта – в квадратной. Чуть вырос – надо рожать, пока не задохнулся, поэтому новорожденный, скажем, кенгуренок – фактически эмбрион. Он только и может, что проползти, извиваясь, по шерсти матери и присосаться к соску. Понятно, что смертность от всяческих невзгод такого недоделанного потомства будет очень большой. Конечно, мать не тратит слишком много энергии для его вынашивания, но все равно нехорошо, когда уже родившийся потомок гибнет.
Чтобы повысить жизнеспособность детенышей, хорошо бы их подращивать до мало-мальски приличного состояния еще в утробе матери. А для этого надо подкармливать эмбрион, поставлять ему вещества и энергию. Трофобласт с этим явно не справляется. Как увеличить площадь, чтобы она догнала скорость увеличения объема? Нарастить на ней ворсинки! И они появляются, так что трофобласт становится хорионом – ворсинчатой оболочкой. Ворсинки контактируют с кровеносной системой матери, получая из нее все нужное. Если же капилляры плода и матери сплетаются так, что уже и не разберешь, где чей сосуд, то это уже можно назвать плацентой. Появление плаценты – уникального органа, сформированного двумя организмами, матери и детеныша, – стало величайшим достижением, позволившим рожать достаточно развитых детенышей, что снизило их смертность и стало залогом будущего прогресса.
Понятно, что такое замечательное решение не могло возникнуть однажды. Плацента в том или ином виде имеется у онихофор Onychophora (животных, похожих на червей, появившихся еще в конце докембрия – венде), акул-молотов Sphyrnidae, усатых собачьих акул Leptochariidae и многих других хрящевых, ночных ящериц Xantusiidae и сцинков Tiliqua rugosa. Даже растения имеют аналог плаценты! Среди сумчатых бандикуты Peramelemorphia тоже обзавелись хориоаллантоисной плацентой, но очень маленькой, почти игрушечной, причем безворсинчатой, так что их детеныши несильно обгоняют в развитии других сумчатых сверстников.

Рис. 15. Схема образования плаценты.
Но плацентарные млекопитающие превзошли всех. Они даже разработали несколько вариантов ворсинчатой плаценты, каждый из которых имеет свои особенности и позволяет осваивать разные стратегии размножения, а через это – самые разные стили жизни. У приматов один из самых жестких для матери вариантов – гемохориальная плацента, в которой ворсинка плода с капилляром пробивает насквозь капилляр матери и омывается ее кровью со всех сторон. Это обеспечивает ускоренное питание дитяти, но гарантирует обильные кровопотери роженицы, ведь вся плацента (а это, напомним, наполовину – слизистая матки) целиком отторгается. Соответственно, детеныш-ребенок оказывается хорошо подрощенным (что, впрочем, не означает какой-либо самостоятельности), а мать должна долго восстанавливать свое основательно подорванное здоровье.
Кстати, для формирования плаценты и зародышевых оболочек должна произойти имплантация – погружение бластоцисты (одной из ранних зародышевых стадий дитятки) в слизистую матки. И тут дремучесть пращуров опять настигает нас. У рыб закон развития един для всех икринок независимо от оплодотворения, ведь оно же внешнее. И организм современных женщин продолжает штамповать яйцеклетки по штуке в месяц независимо ни от чего, причем даже если они не оплодотворяются, слизистая матки подготавливается к их имплантации, а потом они расточительно отторгаются вместе с этой слизистой, создавая массу проблем, – система, очевидно, дурацкая, но, как и многие подобные, возникшая как побочный результат незамысловатости жизненных нужд и реалий далеких предков.
Но это еще не все проблемы, ведь с точки зрения матери растущий внутри нее плод – паразит, мало того что высасывающий ценные вещества, кислород и дефицитный кальций, так еще и гадящий продуктами своего обмена. Ко всему прочему плод имеет половину чужой – отцовской – генетики, у него, например, может быть совсем другая группа крови. Конечно, иммунная система героически пытается его истребить и отторгнуть. Однако размножение важнее личного блага, так что материнская иммунная система должна быть подавлена, но и совсем выключать ее нельзя, ведь мать и так ослаблена – все лучшее детям. Для избирательной регуляции собственной защиты – ослабления около плода – была разработана целая хитроумная система. И один из ключевых элементов этой системы – ген-подавитель иммунитета в плаценте – был заимствован млекопитающими у вирусов (Kjeldbjerg et al., 2008). Как говорят в народе: “С паршивого вируса – хоть гена клок”. Вирусы – мастера лицемерия, ведь их существование (жизнь ли это – еще вопрос) напрямую зависит от умения обманывать рецепторы клеток хозяина и прикидываться своим. Но эволюция, как Читатель уже знает, любит причудливые кульбиты. Злобный патоген дал нам возможность растить и рожать деток, а не эмбрионы. Иначе как бы выглядели классические изображения “мать и дитя” – страшно подумать…
Казусы анатомии настигают нас и после рождения. Ведь нить жизни – пупочный канатик – связует нас с матерью через живот. У родившегося ребенка на этом месте зарубцовывается шрам – пупок. А проходит он не где-нибудь, а в весьма ответственном месте – через белую линию живота, мощный сухожильный апоневроз, на котором сходятся все мышцы брюшного пресса. Ведь брюшные ребра давно исчезли, теперь напору внутренних органов изнутри и напастям снаружи противостоят только четыре слоя мышц. Стоит нам перенапрячь свой пресс, сдавливаемому кишечнику некуда деваться, и он устремляется в единственном возможном направлении – в пупок, выпячиваясь в виде грыжи.
Строго говоря, мы не знаем, когда появились первые плацентарные звери, ведь сама плацента, понятное дело, не сохраняется, а определить тип выращивания детенышей по зубам – задачка покруче, чем решал Шерлок Холмс. Но палеонтологи всю жизнь только такие задачки и решают. Поэтому Juramaia sinensis, жившая в Китае 160 млн лет назад, признана именно древнейшим плацентарным млекопитающим (Luo et al., 2011).
Юрский период был в целом спокойным временем: пятьдесят миллионов лет субтропического климата, почти одинакового по всей планете. Флора и фауна менялись не спеша. Впрочем, нельзя сказать, что это был застой. Именно в юре появились осетры, червяги, саламандры и лягушки, многие группы морских рептилий и динозавров, археоптериксы и, вероятно, другие птицеподобные создания. Именно в юре вымерли последние зверозубые рептилии. Многие из них достигли, кстати, поразительного сходства с современными млекопитающими, блестящими примерами чего могут служить Kayentatherium wellesi и Bienotherium yunnanense, чьи зубы были специализированы до крайности. Группа докодонтов Docodonta вообще непонятно к кому относится – рептилиям или зверям. И дело не в плохой сохранности, а именно в переходности черт. Особенно привлекают внимание Castorocauda lutrasimilis – аналог бобра – и Haldanodon exspectatus – копия выхухоли. Совсем настоящие млекопитающие (хотя и не плацентарные) тоже были разнообразны, чего стоит, например, китайский Volaticotherium antiquum – планирующий наподобие летяги зверь.
Весь этот праздник жизни вершился на фоне и в зарослях голосеменных растений – хвойных, гинкговых, беннеттитов и саговников. Но эти деревья были не банальными елками, а весьма продвинутыми. В конце юры появляются гнетовые Dinophyton и Eoantha, беннеттиты Manlaia и Baisia. Их шишки имели вид цветов, привлекавших насекомых-опылителей. Но раз “цветы” поддельные, то логично, что и “бабочки” тоже ненастоящие. И действительно, в роли бабочек выступали сетчатокрылые Kalligrammatidae и скорпионницы Aneuretopsychidae. Впрочем, в начале юрского периода появились и настоящие бабочки – Archaeolepis mane порхала по Англии уже 190 млн лет назад, – но еще долго они не занимали ведущего положения в экологической нише опылителей. Коллективных насекомых, вероятно, еще не было.
Есть, правда, намеки – в виде специфической пыльцы и древесины, что местами уже возникли и первые настоящие покрытосеменные (некоторые палеоботаники доказывают, что цветковые были уже в среднем триасе: Hochuli et Feist-Burkhardt, 2013), но даже если это и подтвердится, широкого распространения они точно не получили. По голосеменным же скакать по крайней мере скучно, а порой и нелегко: толстые прямые ветки расходятся однообразными мутовками и могут образовывать довольно густую жесткую сеть. На земле же травянистых растений в юрском периоде фактически не было, их суррогатом выступали низкие папоротники, хвощи и плауны – в них трудно прятаться, а сами они малопитательны. Листовой опад был беден, наверняка немного было живущих в нем червей и насекомых – лучшей пищи для мелких теплокровных зверьков. Посему, при всем разнообразии юрских млекопитающих, они никак не могли реализовать свой потенциал в полной мере. Но время шло, приближалась революция…
Глава 17. Звено 12: древесность, прыгучесть, хватательная кисть. (средний и позднейший мел, 115–108 и 65 млн лет назад).
Середина мелового периода ознаменовалась радикальной сменой флоры и фауны насекомых. Растения все эти миллионы лет тоже не скучали, а изобретали цветок, привлекающий опылителей красивыми лепестками и вкусным нектаром, двойное оплодотворение, обеспечивающее новое поколение питательными веществами эндосперма, а также околоплодник, который, будучи съеден или прилепившись к шерсти и перьям, гарантирует распространение семян. Все эти замечательные свойства в комплекте сложились у покрытосеменных, или цветковых, растений к середине мела. Примерно 115–108 млн лет назад грянула революция: цветковые захватили планету. Параллельно появились и новые насекомые – бабочки, мухи, термиты, муравьи, пчелы и наездники (некоторые из них возникли раньше, но развернуться в полный рост смогли только сейчас). Как при любой революции, не обошлось без жертв: вымерли многие и многие голосеменные и связанные с ними насекомые.
Кстати, о плодах и термитах… Попытки изобрести цветок и плод предпринимались разными растениями еще в юрском периоде. Тогда цвели “цветы”, сделанные из шишек и их чешуй беннеттитов и гнетовых. Их опыляли юрские аналоги бабочек типа сетчатокрылой Kalligramma haeckeli и скорпионницы Pseudopolycentropus latipennis. Но это были неправильные “цветы” и неправильные “бабочки”, и они не делали совсем никакого меда. Наверное, на их основе тоже можно было развить что-то большее, но, как обычно бывает в эволюции, если какой-то комплекс сложился не полностью, то успех вовсе не обеспечен. Первые попытки вырваться из мира шишек потерпели неудачу. Появление цветковых растений покрыто завесой тайны. Есть несколько гипотез их происхождения, а остатки пыльцы интерпретируются порой противоречиво, но ясно, что, хотя они могли появиться еще в юрском или даже триасовом периоде, первые надежные их останки датируются раннемеловым временем 135–140 млн лет назад, а расцвета цветковые достигли только в середине мела, около 115 млн лет назад. Показательно, что цветковые появляются в отложениях сразу в большом количестве и разнообразии, практически невозможно назвать самого древнего представителя. Это говорит о том, что до середины мела цветковые уже прошли немалый эволюционный путь, только мы об этом знаем пока недостаточно. Цветковые отличаются от своих предков массой особенностей, но главные из них взаимосвязаны размножением: это цветок, закрытая со всех сторон тканями завязи семяпочка, образующийся из этих тканей околоплодник и двойное оплодотворение, когда яйцеклетка, оплодотворенная одним спермием, становится зародышем, а центральная клетка, оплодотворенная другим, превращается в питательный эндосперм – фактически брата-близнеца, предназначенного для съедения зародышем (для пущей тучности эндосперм обычно триплоидный, а иногда даже полиплоидный: больше генов – больше синтеза белков – больше еды новому поколению). Завязь условно можно сопоставить с маткой у млекопитающих: она заботливо окружает и защищает эмбрион. Пыльцевое зерно не просто падает сверху на яйцеклетку, а должно прорастать сквозь столбик пестика: это уменьшает риск оплодотворения не тем видом, от которого заведомо не будет проку, и поражения бактериями или грибами. Семя, окруженное околоплодником, составляет настоящий плод. Получающийся из завязи околоплодник предназначен для распространения семян, очень часто с расчетом на то, что животное съест мякоть, но не сможет разгрызть семя, содержащее зародыш, ради которого все и затевается. Ради защиты дитятки семя, во-первых, окружено очень жесткой семенной кожурой; во-вторых, может быть ядовитым; в-третьих, растения отдают на откуп животным сахара в мякоти, сдабривая их ароматами (для наглядности можно вспомнить сливу). Животные с точки зрения растений делятся на хороших – которые едят околоплодник, но не уничтожают семена – и плохих – кои старательно разгрызают именно семена, добираясь до самого питательного и разрушая самое ценное. Приматы в целом хорошие, так как у них обычно не хватает силы жевательных мышц и прочности зубов, чтобы разгрызть семенную кожуру. Показательно, что в тропических лесах от 25 до 40 % семян распространяют именно приматы (например: Chapman, 1995); почти все остальные проценты приходятся на птиц. Лучший пример плохих животных – грызуны, чьи резцы заточены именно на разгрызание твердых оболочек. Впрочем, среди приматов тоже встречаются злодеи: например, некоторые шимпанзе умеют колоть орехи кола камнями. Если вы, Уважаемый Читатель, съедая яблоко, оставляете сердцевину нетронутой, вы – хороший примат. Я же, признаюсь, примат зловредный… Некоторые цветковые растения, впрочем, умудрились даже семеноядность зверей и птиц поставить себе на службу. Злаки рассчитаны на то, что их будут есть, но зерна прикреплены на стебель непрочно; пока животное съедает несколько зернышек, оно стряхивает на землю еще с десяток. Правда, коварные люди селекцией вывели плохо осыпающиеся сорта злаков, но и это пошло им на пользу – ведь с помощью земледельцев эти растения захватили такие площади, какие и не снились их диким предкам. Эволюция цветковых растений подстегнула эволюцию насекомых. Некоторые из тех, что прочно ассоциируются у нас с цветами, были и раньше, например, древнейшая бабочка Archaeolepis mane летала по раннеюрской Англии уже 190 млн лет назад. Но подлинный бум начался именно с появлением цветов и нектара. Бабочки создали спрос на нектар, а нектар сделал из грызущих молей приличных бабочек. И понеслось… Древнейшие пчелы Melittosphex burmensis навеки завязли в бирманских янтарях 92–100 млн лет назад, а муравьи Palaeomyrmex arnoldii и Sphecomyrma freyi – 80 млн лет назад. Мир преобразился, наполнился цветами, жужжанием и порханием, благоуханием и вкусными плодами. С этого момента барельефные натюрморты в лучших традициях сталинского барокко будут неотступно преследовать нас; весь долгий путь к человеку будет усыпан огрызками. Напрямую не связанные именно с цветковыми, но участвовавшие в среднемеловой революции термиты появились, исходя из филогенетической логики, еще в конце юрского периода, а древнейший известный термит грыз древесину уже в раннем мелу, 137 млн лет назад (Engel et al., 2009). Трудно сказать, насколько существенным звеном в экосистеме были те термиты, но точно известно, что их далекие потомки стали важным блюдом для австралопитеков, а прочность их домов послужила одним из стимулов развития орудийной деятельности.Млекопитающие получили от этой революции все, чего им не хватало: нектар, сочные плоды, толпы восхитительных насекомых да еще отличное убежище в придачу, – чего еще желать?! И звери радостно бросились обживать новый роскошный ресторан-гостиницу. Как весело скакать по раскидистым ветвям, выглядывая из густой листвы в поисках вкусняшек и скрываясь от злобных динозавров! Как уютно шуршать в плотной траве и опаде – здесь не страшны кровожадные тероподы! Неспроста во второй половине мела число млекопитающих быстро росло и превзошло число динозавров.
Трудно сказать, какие конкретно из десятков меловых млекопитающих стали в итоге приматами, но, учитывая данные по древнейшим приматоморфам, можно очертить их облик довольно внятно. Это были древесные животные размером с мышь, причем умеющие не просто лазать, но и неплохо прыгать. Питались они всем подряд. И, судя по палеоценовым находкам, были они многочисленны.

Рис. 16. Реконструкция Purgatorius.
Почти живым воплощением этого Великого Предка является Purgatorius – древнейший предок приматов, известный, правда, лишь по одному зубу из самого верха мела Монтаны. Зато из самых низов палеоцена тех же местонахождений с аналогичными датировками 65 млн лет назад имеются уже десятки находок пургаториусов, включая таранные и пяточные кости ног (Chester et al., 2012). Древесный образ жизни и всеядность меловых предков приматов определили всю их последующую эволюцию. Благодаря этим особенностям у приматов слабое обоняние, хорошее зрение, отличная координация, хватательная кисть и сложное поведение – и все это легло в основу главных человеческих качеств. Об этом еще пойдет речь впереди, здесь же упомянем лишь некоторое наследие, доставшееся нам с позднемеловых времен.
Жизнь на ветвях предполагает умение за эти ветви хвататься – коготками не уцепишься за тонкий прутик при лихих прыжках. Да и детенышам приходится цепко держаться за шерсть матери, чтобы не рухнуть вниз. Для этого нужны руки и ноги, хорошо поворачивающиеся кистями и стопами внутрь, а также цепкие пальцы. Казалось бы, мы давно слезли с деревьев, но посмотрите внимательно на себя: согнуть кисть в сторону мизинца можно гораздо дальше, чем в сторону большого пальца. Стопы же легко обратить друг к другу (речь не о “носки вместе – носки врозь”, а именно о повороте нижней стороны стопы), но почти нереально вывернуть наружу. Кроме того, сжать пальцы можно с гораздо большей силой, чем разжать. Если взять один свой кулак в другой и одну руку усиленно сжимать, а другую разжимать (для этого, однако, сначала надо напрячь мозг), то сжимающая победит. Опять же – бицепс, сгибающий руку в локте, сильнее трицепса, разгибающего ее (у четвероногих наземных вообще-то прямо наоборот: ведь им надо держаться на выпрямленных передних лапах, но усиленно сгибать их нет большого прока). Смысл ясен: нам надо держаться за ветки и маму, но усиленно разжимать пальцы почти никогда не требуется. По той же причине в руке намного лучше развиты пронаторы – мышцы, поворачивающие кисть ладонью внутрь и назад (кости предплечья при этом будут перекрещены), нежели супинаторы, разворачивающие ладонь вперед. Если полностью расслабить руку, она все же повернется ладонью назад, рука немножко согнется, а пальцы слегка скрючатся, несмотря на то, что “анатомически правильное” положение совсем иное: локтевая и лучевая кости предплечья должны бы быть параллельны, а пальцы выпрямлены. Собственно, в совсем-совсем расслабленном положении рука может находиться либо в глубокой фазе сна, либо у вусмерть пьяного, либо у действительно неживого человека. Благодаря древесной жизни предков, загребущие движения удаются нам гораздо лучше, чем щедро раздающие.
Уголок занудства. Ограничение поворота кисти в сторону мизинца обеспечивается упиранием гороховидной кости запястья в шиловидный отросток локтевой кости; в сторону большого пальца – кости-трапеции в шиловидный отросток лучевой кости. Шиловидный отросток локтевой кости гораздо меньше, чем лучевой, что и позволяет сильнее сгибать кисть в сторону мизинца. Ограничение поворота стопы вбок (в сторону мизинца) обеспечивается латеральной (наружной) лодыжкой – нижним концом малой берцовой кости, внутрь (в сторону большого пальца) – медиальной (внутренней) лодыжкой – выростом на нижнем конце большой берцовой кости. Латеральная лодыжка торчит вниз гораздо дальше, чем медиальная, поэтому заворот стопы внутрь удается лучше, чем разворот наружу: ноги тоже загребают, они тоже должны обхватывать ветки. Мышцы-сгибатели пальцев и запястья крепятся большей частью к медиальному надмыщелку плечевой кости; мышцы-разгибатели – к латеральному. Из-за большей актуальности сгибателей медиальный надмыщелок намного крупнее латерального. Портняжная мышца начинается от верхней передней подвздошной ости и заканчивается на большеберцовой бугристости. Она обеспечивает замечательнейшее движение: отводит и вращает бедро кнаружи, но сгибает ногу в колене и поворачивает голень внутрь. Иначе говоря – это универсальный обхватыватель мам детенышами и стволов взрослыми.Ясно, что сгибатели в руке важнее разгибателей: если мы повредим первые, мы не сможем лазать по деревьям, если же вторые – мы всегда разожмем пальцы, просто расслабив сгибатели. Поэтому сухожилия разгибателей идут прямо под кожей по тыльной стороне запястья и кисти – их не жалко. А вот сухожилия сгибателей надо беречь! Для усиленной их защиты они проходят через запястный канал, ограниченный со стороны большого пальца костью-трапецией, а с обратной – крючковидной костью. Места же там весьма немного, тем более параллельно идут артерии, вены и нервы. Посему все богатство заключено в одну на все “жилы” фасциальную оболочку. К сожалению, такая система может давать сбой. Когда, скажем, человек радостно щекочет пушистое пузико любимого котика (“Ути-пути, мой хорошенький!..”), гордый зверь может не оценить такой фамильярности. А когти он не чистит, так что, когда котик пропарывает запястный канал (“Ах ты ж, проклятая тварь!..”), злобные микробы устремляются по единому каналу к кончикам сразу всех пальцев (в кисти фасциальная оболочка разветвляется подобно перчатке). А там – в тупике, тепле и комфорте – бактерии начинают бурно размножаться, рука пухнет, краснеет, синеет, чернеет, так что дело может дойти вплоть до ампутации по локоть. Жаль, что эволюция не предусмотрела щекотание пушистых пузиков…
Древесные животные должны отлично оценивать расстояние до объектов, ведь прыгать надо очень точно. Для этого возникает бинокулярное зрение, когда оба глаза повернуты в одну сторону, а поля зрения двух глаз в значительной степени перекрываются. У наземных животных, существующих фактически в двухмерном мире, особых проблем с этим нет. Каждый их глаз, расположенный сбоку головы, показывает плоскую, зато очень широкую картинку, суммарный обзор составляет иногда чуть ли не 360°, а если поля зрения и пересекаются, то где-то далеко перед носом и далеко за ушами, на расстоянии, на котором животное может особо уже и не видеть. Монокулярное зрение не позволяет точно оценить расстояние (чтобы в этом убедиться, достаточно закрыть один глаз, крутануть головой – чтобы мозг забыл относительные размеры предметов – и попробовать уверенно дотронуться до чего-нибудь пальцем), но так ли это важно, скажем, корове? Расстояние до хищника можно примерно прикинуть по размеру, а трава никуда не убежит. Зато можно не вращать глазами, что сказывается и на внешнем виде. Например, глаза лошади или зайца очень выразительные за счет того, что весь видимый глаз занимает радужка и зрачок. Если у лошади виден белок, это значит, что либо она очень испугана, либо у нее серьезный дефект. На качающихся же ветвях надо много двигать глазами, у гляделок должен быть запас подвижности, склера – тот самый белок – становится видна.
Бинокулярное зрение возникает либо у хищников, либо у древесных прыгающих животных. Первым надо точно оценивать расстояние прыжка до добычи, вторым – до ветки. Именно ко вторым относятся приматы. Кстати, показательно, что полная бинокулярность возникла далеко не у первых приматоморфов и даже не у полуобезьян уровня лемуров, а только у собственно обезьян. Люди же спустились с деревьев на плоскость, но полученные в древесных кронах адаптации получили новое назначение. Очень удобно, что теперь мы можем заниматься трудовой деятельностью – скажем, колоть отщепы или водить автомобиль, – не особо рискуя отшибить себе палец или врезаться в едущую впереди машину.
Для скакания по ветвям нужна еще и отличная координация. В частности, в лобной доле человека хорошо развита премоторная зона, отвечающая в числе прочего за согласование поворота глаз и шеи в разные стороны. То есть если непрерывно смотреть на некую точку и вертеть головой, то шейные мышцы будут двигать голову, скажем, влево, а мышцы глаза – поворачивать глазное яблоко вправо. Причем в зависимости от расстояния до объекта скорость движения глаз и шеи будет неодинаковой. А объект может еще к тому же двигаться сам по себе. Эта способность концентрировать взгляд была до крайности актуальна для прыгающих по качающимся веткам приматов, ведь надо очень точно прицелиться, и делать это надо быстро. На конце подгибающейся ветки долго думать вообще вредно, ведь она может согнуться или даже обломиться; коли уж собрался прыгать, необходимо делать это уверенно и бесповоротно. Не потому ли многих людей качает вперед на краю пропасти? У некоторых возникает внутреннее желание сигануть вниз, когда они взглядывают с большой высоты, – решительные предки говорят в нас.
Есть и нехорошие последствия древесной жизни: она сделала нас неряшливыми. Зачем следить за судьбой отходов, если они падают куда-то вниз, в неведомые недра леса, и никогда не возвращаются? Съел, швырнул, нагадил и забыл, что мне за дело до соседей на первом этаже? К сожалению, бесконечно далеки мы от кошек и барсуков…
Древесные предки живут в нас. Показательно, что при опасности человек не зарывается в землю, не прячется в палой листве, не ныряет в воду. Половина охотничьих баек – про то, как охотник, встретившись в лесу с медведем/кабаном/волком, запрыгнул на высоченную (или не очень) елку, без памяти взлетел на ее верхушку, а потом не знал, как спуститься. Так же инстинктивно люди – не хуже мартышки – вскакивают на деревья от злых собак, перепрыгивают через двухметровые заборы, спасаясь от преследователей, и совершают прочие подобные чудеса ловкости. Что характерно, человек обычно при этом сам не знает, как туда залез – “без памяти”.
Столь же показательно устройство наших автобусов, троллейбусов и трамваев: они оборудованы искусственными ветками над головой, за которые люди хватаются, задрав руки вверх. Возникни разумные существа из собак, разве стали бы они делать столь нелепые поручни? Скорее уж, устлали бы пол уютными ковриками, на которых можно устойчиво улечься. А вторые полки в поездах? А ведь некоторые персонажи умудряются ехать и на третьих багажных…
Всеядная диета предков приматов сделала нас удивительно равнодушными к составу и качеству пищи. То есть, конечно, каждый склонен придуриваться по-своему, но в целом человек по-настоящему всеяден. Столь беспринципных пожирателей всего подряд еще поискать: разве что гиены, шакалы да свиньи могут составить нам достойную компанию. Но два вида пищи, бесспорно, преобладали в первобытной диете: насекомые и фрукты.
Фрукты даже на экваторе зреют не каждый день и не на каждом дереве, причем на них находится много желающих, которых надо обогнать; насекомых требуется еще отыскать и выковырять из щелей, а некоторые из них невкусны или даже опасны. Для такого типа питания необходимо обладать острым умом и отличной памятью, в том числе пространственной, причем трехмерной – дело ведь происходит в лесных кронах. Трудность добывания пищи поселила в наших пращурах неискоренимое любопытство. Любознательность – визитная карточка приматов, человек развил ее до небывалых высот, но как бы он сделал это без предка-пургаториуса? Поиск букашек меловым зверьком гарантировал то, что Уважаемый Читатель дочитал до этого места и горит желанием узнать, что же было дальше…
Глава 18. Звено 13: потеря синтеза витамина C, обретение носа и возвращение красного цвета. (палеоген, 55–30 млн лет назад).
Граница мела и палеогена ознаменовалась исчезновением динозавров. На самом деле вымирание коснулось в основном морских организмов, а на суше пострадали еще лишь птерозавры да энанциорнисы. Многие насекомые и растения вообще не заметили какой-либо разницы. Опустим сорок сороков гипотез мелового вымирания, упомянем лишь, что популярная “астероидная” версия, как бы ни была она эффектна, вряд ли что-то объясняет; ее упоминание лишь вызывает либо веселый заливистый смех, либо скрежет зубовный и рефлекторное – по И. П. Павлову – выделение яда у профессиональных палеонтологов. То есть астероид был, но он не стал причиной катастрофы. Метеориты падали и до, и после. Для нашей же истории довольно и вымирания динозавров. Ведь уже 180 млн лет они были доминантами среди позвоночных – по размерам тела и положению в пищевой цепи. И вот млекопитающие получили свой шанс и смогли, наконец, в полной мере реализовать свои замечательные способности. Правда, в палеоцене и даже эоцене подавляющее множество зверей было по-прежнему мелкими крысоподобными существами, а верх пищевой цепочки занимали гигантские бегающие хищные птицы вроде Gastornis и многочисленные наземные крокодилы – как мезозухии Mesosuchia, так и эузухии Eusuchia. Однако уже в палеоцене появились и крупные всеядные млекопитающие типа тениодонтов Taeniodonta и пантодонтов Pantodonta – существа, немыслимые для мезозоя.
В эоцене мир заполнили тропические леса. Сколь бы странным это кому-то ни показалось, доселе мир не знал такого биома. В мезозое мир был теплым, но все же не тропическим. Лишь в эоцене континенты переползли в нужное положение, циркуляция воздушных и водных потоков поменялась и появилась климатическая зональность, а с ней и тропики (Еськов, 2007). Собственно, именно эти климатические и биотические перемены позволили приматам окончательно стать приматами (до этого момента правильнее говорить все же о “приматоморфах”). Даже вымирание динозавров было далеко не столь важным. Высокие деревья с густой листвой и смыкающимися кронами, обилие насекомых и фруктов – вот то, что создало из пургаториусов и плезиадаписовых – приматов.
Тема фруктов не отпускает нас. На них рады налегать любые приматы. Но особенно они пришлись по вкусу нашим предкам в начале эоцена, около 55 млн лет назад или несколько раньше. Такая любовь, впрочем, наградила нас очередной неприятностью. Вообще-то почти все млекопитающие, включая лемуров, умеют сами синтезировать в собственном организме витамин C. Но во фруктах его содержится огромное количество, тем более что приматы ели плоды прямо с ветки – свежее некуда. Когда возникала мутация, нарушающая синтез аскорбиновой кислоты, то ничего страшного не происходило: ценное вещество в избытке поступало в организм с пищей. Стабилизирующий отбор перестал работать, высшие приматы – начиная с долгопятов – потеряли ценную способность, да для них она и не была ценной (Ohta et Nishikimi, 1999). А вот когда люди выбрались за пределы тропической и субтропической зоны, начались проблемы. Хуже всех было, конечно, морякам дохолодильниковой эры. При недостатке витамина C развивается цинга – смертельное с некоторой стадии нарушение обмена веществ. Может, генные инженеры поправят положение?.. Кстати, приматы в своей беде не одиноки. Среди грызунов тоже есть любители фруктов, разучившиеся синтезировать C, например морские свинки; у них, впрочем, конкретная мутация была иная (Nishikimi et al., 1992).
Любовь к фруктам живет в нас и поныне. Сладкое любят все люди, хотя не все в этом признаются. Главное тут, конечно, сахар. Правда, во фруктах не совсем те углеводы, что в свекле, так что современные любители сладкого чая или булочек с сахарной пудрой рискуют заработать диабет или ожирение. Предкам столько легко усваиваемых углеводов зараз никогда не доставалось. До сих пор организм рассуждает как в старые голодные времена: “Всё, что есть, надо съесть”, а что съедено лишнего, будет срочно запасено в виде жира на черный день. И тут встает неожиданная проблема современного цивилизованного общества: черный день никак не наступает! Круглосуточные супермаркеты завалены едой, холодильник до потолка вмещает явно больше, чем желудок. Свободное время в сочетании с неестественной жизнью, вызывающей постоянный стресс, подстегивают жировую клетчатку к росту – а вдруг завтра будет плохо? Но завтра опять магазин открыт, холодильник полон, а электрическая лампочка позволяет не спать и найти холодильник в ночи… Впрочем, в палеогене до холодильников было далеко.
Примерно в это же время – с эоценовых долгопятоподобных предков – начинается эра носа. У полуобезьян нос кожистый, с мощной хрящевой основой, срощенный с верхней губой. У долгопятов и всех высших приматов нос отделен от верхней губы. Редукция ли обоняния тому виной или потребности общения, а скорее всего – сочетание того и другого, но нос наконец отлепился ото рта. Нос – это центр лица, можно сказать, лицо лица! Неспроста карикатуристы обращают именно на него основное внимание. Собственно, главным итогом появления носа стала мимика, ведь мышцы верхней губы получили возможность работать по новым осям и с большей свободой. Рот человека окружен целым веером мышц, тянущих губы во всех возможных направлениях и обеспечивающих подавляющую часть наших мимических способностей. Мышцы глаз намного беднее в своих возможностях, а мышцы носа и ушей вообще пора заносить в Красную Книгу.
Уголок занудства. Веер мышц рта (начиная от центра снизу): подбородочная мышца, мышца, опускающая нижнюю губу, мышца, опускающая угол рта, мышца смеха, щечная мышца, мышца, поднимающая угол рта, большая скуловая мышца, малая скуловая мышца, мышца, поднимающая верхнюю губу, мышца, поднимающая верхнюю губу и крыло носа. Вокруг все это окружено круговой мышцей рта.Рептилии и птицы имеют четыре вида светочувствительных белков-опсинов в колбочках сетчатки глаза: они видят ближний ультрафиолет, синий, зеленый и красный цвета. Предки млекопитающих миллионы лет прятались от динозавров в лесной подстилке и выползали из листьев только по ночам. В темноте да в валежнике не очень-то поглядишь. Поэтому древнейшие звери потеряли “ультрафиолетовые” и “красные” колбочки, сохранив только “синие” (и тех немного) и “зеленые” (утконос утратил только один вид колбочек, но он и с ними почти слепой). Большинство зверей различают только синий и зеленый, а главными рецепторами становятся палочки, обеспечивающие сумеречное нецветное зрение. Строго говоря – и зачем видеть красный? Цветочки, что ли, разглядывать? Трава – она и есть трава… Кстати, это приводит к любопытному казусу: защитная окраска оленят – ярко-оранжевая с белыми пятнышками. Человек без особых проблем увидит олененка на зеленой траве, но для волка это неразрешимая задача – оранжевый и зеленый для него одинаковы, а пахнуть олененок отказывается. Большинство зверей – дальтоники, не различающие красный и зеленый.
А мы можем гордиться своими предками: первые обезьяны, перешедшие порядка 30–40 млн лет назад к дневному образу жизни и преимущественной фруктоядности (и тут фрукты!), вновь приобрели способность видеть красный цвет. Это важно – найти спелые плоды и молодые, зачастую красноватые листья, содержащие больше белков, в зеленой листве. Правда, до ящериц и воробьев нам по-прежнему далеко, но хоть бобров превзошли – и то хорошо. Приятно сознавать, что мы небезнадежны: человеческие гены, кодирующие опсины, весьма полиморфны, причем они могут находиться в хромосомах в нескольких копиях и в разных вариантах, так что некоторые люди фактически видят два разных красных цвета (Verrelli et Tishkoff, 2004).
Крайне интересно, что у узконосых и широконосых обезьян вторичное обретение “зеленых” рецепторов произошло независимо. Тут нам опять повезло: у узконосых (то есть наших предков) это получилось удвоением-дупликацией одного из двух остававшихся “цветных” генов, причем для обретения “красного видения” понадобились всего три мутации. У широконосых обезьян – обитателей Южной Америки – “красный” ген возник как аллель старого опсинового гена, расположенного на X-хромосоме, так что все самцы и часть самок остаются “зелеными дальтониками” и только гетерозиготные самки отличают красный от зеленого. Спасает положение развитая социальность, а особые способности избранных самок могут повышать их значение в группе – воинствующий феминизм торжествует. Среди южноамериканских обезьян лишь ревуны продвинулись до обретения полноценного “красного” зрения и равенства полов по этой важной способности (Dulai et al., 1999).
Кстати, некоторые австралийские сумчатые вроде бы тоже заново обрели прежние рептилийные способности, причем, вероятно, в полной мере, так что нам не стоит зазнаваться.
Кстати, о раках и сказках… Все эти способности в буквальном смысле блекнут в сравнении с беспозвоночными. У бабочек и пчел пять типов колбочек. Но и это не предел: всем далеко до раков-богомолов, у разных видов которого в глазах двенадцать, шестнадцать или даже двадцать один вид цветовых рецепторов (Thoen et al., 2014). Так что то разноцветье кораллового рифа, которое видим мы, – жалкое подобие реальности, отражающейся в глазах и ганглиях раков-богомолов. Даже с нашим умным-преумным мозгом мы в принципе не можем представить, в каком радужном мире живет это сказочное существо. Неспроста даже для наших убогих глаз рак-богомол выглядит чрезвычайно нарядно. Между прочим, колбочки функциональны только на ярком свету. В сумерках работают только “черно-белые” палочки; неспроста же в темноте все кошки серые. С другой стороны, сей физиологический факт можно использовать, например, при съемках фильмов, когда надо создать сказочный эффект: если на черном ночном фоне человек видит яркие цвета, это крайне необычно и воспринимается как что-то фантастическое, ведь в темноте не может быть ничего цветного. По тому же принципу действует салют: на темном небе расцветают сочные вспышки красного, синего и зеленого, и это настолько неестественно, что невозможно оторвать взгляд. Может быть, и притягательная сила ночного костра отчасти имеет корни в принципах работы наших палочек и колбочек? Если смотреть на вопрос шире, в природе просто не так много источников энергии, чьей мощности хватает для возбуждения наших колбочек: кроме Солнца, это Луна (которая, собственно, отражает свет того же Солнца), звезды, вулканы, пожары, светлячки и морские флуоресцирующие животные. Человек добавил к ним множество новых, теша свои колбочки и ассоциативные зоны мозга.Конечно, менялось не только зрение. Слуховой аппарат у полуобезьян включает барабанные капсулы, образованные каменистой частью височной кости. Принципиально похожее строение сохраняется у широконосых обезьян Южной Америки, хотя у них капсулы малы, а барабанная пластинка не полностью соединяется с остальными частями. У узконосых же обезьян, к коим имеем честь принадлежать и мы, барабанная пластинка целиком срастается с каменистой и чешуйчатой частями, ограничивая костный слуховой проход. Такой вариант сформировался около 30 млн лет назад; по крайней мере, у чуть более древних проплиопитековых Propliopithecoidea вдоль барабанной пластинки сохранялась щель, а у Saadanius hijazensis ее уже нет. Однако, как часто бывает, древние предки периодически дают о себе знать: если у ребенка барабанная пластинка не полностью срастается с каменистой частью височной кости, а между ними остается зазор, это грозит глухотой, так как получается, что барабанная перепонка частично крепится на мягкие ткани, отчего звуковое колебание передается хуже.
Уголок занудства. Височная кость приматов состоит из трех главных частей: чешуйчатой, каменистой и барабанной (или тимпанической). Чешуйчатая включает чешую, закрывающую мозговую коробку сбоку, а также скуловой отросток, закономерно соединяющийся со скуловой костью. Каменистая часть в числе прочего включает пирамиду, внутри которой расположено внутреннее ухо с органами слуха и равновесия. Барабанная часть у человека представлена тонкой пластинкой, ограничивающей слуховой проход снизу-спереди и срастающейся передним краем с чешуйчатой частью, а задним – с каменистой. Детали строения височной кости эволюционно весьма изменчивы и широко используются для установления родства животных.Во времена первых обезьян исчез подшерсток. Полуобезьянам и долгопятам он нужен, так как они маленькие и быстро остывают, причем активны по ночам, когда холоднее. Некоторые современные широконосые тоже обладают подшерстком, но узконосые – никогда, стало быть, его утрата приходится на момент сразу после разделения эволюционных ветвей обезьян Старого и Нового Света. Кстати, значит ли это, что широконосые, не обладающие пухом, избавились от него независимо от узконосых? Крупные размеры, фруктовая диета и дневной образ жизни в тропиках сделали утепление неактуальным. Как часто приходится жалеть об этом долгими северными зимами!..
Мы стремительно близимся к развязке… Прошло уже почти четыре миллиарда лет, как появилась первая жизнь, и разница между долгопятом и человеком, по сути, ничтожна – в глобальном масштабе от первых РНК и белков.
Глава 19. Звено 14: прощание с хвостом, прямохождение и разум. (неоген, 15–18,5, 7–4 и около 2 млн лет назад).
Увеличение размеров тела привело к появлению новых способов передвижения – медленного лазания и брахиации (когда обезьяна перехватывает ветки только руками, без помощи ног). До этого момента при лихих прыжках был нужен балансир – хвост, но при весе даже в десяток-другой килограммов система такой балансировки уже не очень-то работает. Неспроста даже у лишь сравнительно крупных лемуров типа индри или широконосых типа уакари хвост заметно укорочен. Другая функция хвоста – сигнальная, его можно распушить и красиво покрасить (например, в полосочку, как у кошачьего лемура), задирать его и размахивать им (как павианы), обвиваться им с хвостом соседа (как делают южноамериканские обезьяны-прыгуны). Но крупные серьезные человекообразные обезьяны выросли из подобных дурачеств, у них есть более основательные способы общения, нежели легкомысленное повиливание хвостиком. Как итог – хвост стал неактуальным. Он исчез.
Многие люди искренне полагают, что отсутствие хвоста – сугубо человеческая черта. Ан нет, его не было уже у проконсулов Proconsul heseloni и Nacholapithecus kerioi как минимум 15–18,5 млн лет назад (Nakatsukasa, 2004; Nakatsukasa et al., 2003, 2004; Ward et al., 1991) или даже раньше. Впрочем, в память нам остался копчик – чаще всего четыре позвонка-кругляшка, еще к тому же срастающиеся между собой, а иногда и с крестцом (кстати, у орангутанов обычно всего три копчиковых позвонка, так что они обогнали нас по бесхвостости). В итоге наружного хвоста у нас нет, но есть внутренний. Обычно он никак не выдает своего существования, но это лишь до поры до времени. Те, кто ломал копчик, подтвердят: перелом хвоста – ужасная вещь. Ни встать, ни сесть, ни лечь…
Иногда хвост проявляется еще более зловещим образом. Ведь он по исходной задумке покрыт тонкой кожей, да к тому же пушист. Сейчас копчик углубился в мышцы, но генеральный план никуда не делся. Иногда у человека формируются первые хвостовые мышцы, но, раз костная основа укоротилась, мышцы становятся трубочкой с пустотой внутри; посему наружная кожа хвоста оказывается вывернутой наизнанку, как чулок, так, чтобы прилегать к верхушке копчика. В итоге образуется как бы хвост наоборот, отрицательный, вдавленный сам в себя хвост. Такая штука называется копчиковым ходом (кстати, он не обязан открываться наружу отверстием, вполне может и зарасти, тогда получается полость между мышцами). Но он же, как полагается приличному хвосту, пушистый, с кисточкой на конце. Растущие внутрь трубки волосы колют и раздражают кожу. Не дай бог туда попадут бактерии, ведь в тепле, уюте и обилии пищи они начинают радостно жить и плодиться. Тогда копчиковый ход ужасно воспаляется, и человеку… ампутируют хвост! Ход прочищают и дезинфицируют, атавистические мышцы удаляют, отверстие зашивают. Операция эта не столь уж редкая, можно сказать – рядовая.
Кстати, об атавизмах… Во все справочники по эволюции и школьные учебники вошел пресловутый “хвостатый мальчик” как пример редкостного атавизма – проявления древнего признака. Однако в хорошо исследованных случаях такие хвосты оказываются грыжами спинно-мозговых нервов или опухолями, просто вытянутыми кожными отростками без костной основы. Копчик у таких людей вполне стандартный.Вообще же человек может и пожалеть об утрате столь ценного органа. Вот паукообразные обезьяны используют хвост как пятую руку: они могут висеть на хвосте, брать им предметы, обнимать соседа. Какие возможности мы утеряли! Кстати, нижняя сторона хвоста у цепкохвостых обезьян без шерсти, а голая кожа покрыта папиллярными узорами – как у нас на пальцах. Это показывает, зачем вообще существуют “линии судьбы”: они улучшают сцепление с корой дерева при древолазании. Между прочим, дерматоглифические узоры имеются и на лапках коал – ведь эти милые зверушки всю жизнь проводят на ветвях. Кроме прочего, гребешковая кожа намного чувствительнее гладкой, причем ощущения усиливаются при движении пальца поперек линий, а за счет извилисто-кругового расположения узоров мы прекрасно ощущаем фактуру любой поверхности при любом положении рук.
После того как наши предки покинули кроны, гребешковая кожа пригодилась при орудийной деятельности: булыжник не выскользнет из шероховатых рук трудового человека.
Пока обезьяны скакали по ветвям, они ели свежие фрукты (ох уж эти фрукты – они просто преследуют нашу эволюцию). Когда же человекообразные подросли и потяжелели, они стали жить больше внизу. Теперь все чаще им приходилось подбирать упавшие на землю плоды. А брожение – процесс быстрый, бактерии тоже любят сахарок и не упускают возможности полакомиться. Перекисшие плоды содержат фактически сидр – алкоголь, то есть яд. Естественный отбор не мог не среагировать и одарил первых наземных приматов какой-никакой, но устойчивостью к отравлению этанолом в виде особо эффективной алкогольдегидрогеназы – фермента, разлагающего этот спирт. У подавляющего большинства приматов – лемуров, широконосых, мартышковых, гиббонов и орангутанов – аналогичные ферменты работают на порядки слабее. А вот у горилл, обоих видов шимпанзе и человека все по-человечески: прокисшие фрукты им не так страшны (Carrigan et al., 2014). К великому сожалению, во-первых, некоторые не слишком сознательные граждане воспользовались столь ценной способностью для изобретения и потребления алкоголя, а во-вторых, многие популяции людей уже в последующем вновь ее утеряли, но это уже совсем другая история…
Любопытно, что аналогичную способность независимо развила мадагаскарская руконожка ай-ай, причем даже мутация у нее точно такая же. И тут этот замечательный примат держится в авангарде эволюции. Но о руконожке – позже…
Кстати, с ядовитыми свойствами спирта можно бороться и другими, даже более эффективными способами. Перохвостая тупайя, слизывающая перебродивший нектар бертамовой пальмы в джунглях Малайзии, способна потреблять смертельные по человеческим меркам дозы алкоголя (Wiens et al., 2008) – и ни в одном глазу, даже лапки не заплетаются! Не столь устойчивы к спирту, но тоже любят нектарное пиво обыкновенная тупайя, медленный лори и некоторые грызуны. Так что и в этой области человек не может считаться ни первопроходцем, ни рекордсменом.
Причины и последствия прямохождения рассмотрены в других частях книги, тут же отметим лишь несколько моментов.
Во-первых, выход в саванну был бы невозможен без появления самой саванны. Как ни странно, до сих времен степей в современном смысле просто не существовало. А ведь обширные травяные биомы появились лишь в середине эоцена в Южной Америке, в конце эоцена – в Центральной Азии, в олигоцене – в Северной Америке (Еськов, 2007). В Африке изменения шли медленнее, сюда новые веяния дошли лишь в миоцене. Немалую роль в образовании саванн играют крупные копытные травоядные животные, вытаптывающие и выедающие ростки деревьев. В Южной Америке роль саваннообразователей играли нотоунгуляты Notoungulata и прочие экзотические американские копытные – литоптерны Litopterna, астрапотерии Astrapotheria, пиротерии Pyrotheria и ксенунгуляты Xenungulata. В Северной Америке появились, а в Азии развились, а потом в обновленном виде вернулись в Америку непарнокопытные Perissodactyla, в том числе разнообразные носорогообразные животные и лошади, а также парнокопытные Artiodactyla. В Африке, как ни странно, крупных копытных поначалу не хватало или они были полуводными и листоядными, как, например, хоботные Proboscidea. Лишь когда из Евразии прискакали более-менее готовые лошади и носороги и с энтузиазмом стали топтать африканские опушки, то леса поддались под их копытами. Только тут из болот вылезли слоны и принялись помогать носорогам, гиппарионам и антилопам, выедая даже крупные деревья. Где бы мы были без копытных? Повторимся: появились они в Северной Америке, в степи вышли в Центральной Азии, а решающую роль в появлении человека сыграли в Африке, создав там саванны. Конечно, дело решилось не только вытаптыванием и выеданием, но и подходящей сменой климата, но о миоценовом похолодании речь уже шла выше и еще пойдет ниже. К тому же даже при неизменном климате животные играют часто определяющую роль в формировании биома. Отличные тому примеры – оголившиеся острова, куда добрые моряки заселили коз, отечественные степные заповедники, при полном запрете выпаса скота начинающие зарастать деревьями, а также африканские заповедники, напротив лишающиеся последних баобабов при слишком большой концентрации слонов. Если бы не травоядные, болтаться бы нам по-прежнему на ветвях.
Но ранние австралопитеки покинули кроны.
Обратим внимание на нашу походку, только не на ноги, а на руки. Практически все люди, если ничего не тащат с собой, при ходьбе размахивают руками. Кому-то может показаться, что так проще держать равновесие или что руки болтаются сами собой, по инерции. Ан нет. На самом деле, так наш мозг, а вслед за ним мускулатура отрабатывают четвероногий бег. Более того, не так уж просто заставить себя на ходу держать руки неподвижными строго по швам, идти иноходью или двигать руками с другой частотой, нежели ногами, – такие аллюры были нетипичны для наших предков. Когда еще мозг забудет, что мы не четвероногие?..
Освобождение рук и от четвероногости, и от древолазания напрочь поменяло смысл многих мышц. Например, широчайшая мышца спины изначально нужна была для шагания: она отводила переднюю лапу назад и толкала тело вперед. У древолазов ее назначение поменялось: теперь она подтягивала тело вверх, к руке, ухватившейся за ветку. Поэтому у гориллы такая широченная – практически метровая – спина, ведь весит это животное порой больше двух центнеров, а подтягивается даже на одной руке. Современному же человеку вообще не очень понятно, зачем надо усиленно опускать руку; не исключено, что в не слишком отдаленном будущем широчайшая мышца спины перестанет быть такой уж широчайшей. Так что современные бодибилдеры, с одной стороны, используют исчезающую возможность покрасоваться “крыльями” (впрочем, смешными с точки зрения гориллы и даже шимпанзе с их квадратной спиной – заметьте, без допинга, спортзала и спецдиеты!), а с другой – хвалятся фактически атавистическим признаком. Можно бы еще гордиться третьими молярами, широко разевая рот и тыча пальцем в недра: “Гляньте, какой у меня здоровый вырос!” – или копчиком: “Зацените, а у меня шесть позвонков!”.
То же можно повторить и про большую грудную мышцу: она была важна четвероногим для сведения передних лап, чтобы стоять на них выпрямленных. Древесным обезьянам она помогала сводить руки, чтобы прочнее держаться на ветвях. А мы с четверенек поднялись, с дерева слезли… Человеку активно сутулить плечи уже не так актуально; обнимашки, конечно, важное занятие, но не обязательно же ломать любимым ребра.
Для стопы наземного существа боковые движения не только не актуальны, но даже вредны, ведь из-за такого вихляния запросто можно вывихнуть лодыжку. Собственно, польза от подобных поворотов есть лишь хищникам, заграбастывающим добычу в смертельные объятия, норным зверям для копания да горным козлам и баранам, которым приходится ставить ногу на любую неровность скалы. Все же сугубо наземные звери имеют весьма граненый голеностопный сустав, с резким ограничением движений – только вперед и назад, нисколько вбок! Идеально геометричен он у лошадей и коров. Человек слез с деревьев не так уж давно, поэтому у нас форма голеностопа промежуточная – уже не древесная, но еще не вполне наземная, тут эволюции еще есть над чем поработать. Поэтому люди так склонны подворачивать ноги, а бегать быстро не умеют.
Кстати, смысл потеряла и наша малая берцовая кость. Ведь изначально она была нужна как раз для поворота стопы. Теперь же эта кость бесполезна, ведь к большой берцовой она прикрепляется ниже коленного сустава, так что нагрузка на нее не идет, вплоть до того, что даже со сломанной костью вполне можно ходить – будет очень больно, но технически позволительно. У всех приличных наземных бегающих животных малая берцовая за ненадобностью редуцируется – или просто исчезает, или срастается с большой берцовой. У нас этот процесс только начался: развилось довольно прочное и тесное связочное соединение нижних концов малой и большой берцовых костей, в отличие от древесных обезьян, для которых важнее подвижность. Иногда у людей даже встречается врожденное отсутствие малой берцовой кости. Так что наше будущее – без нее.
Кстати, о всадниках… У людей, много ездящих на лошади, может развиться “комплекс всадничества” (Бужилова, 2001; Ражев, 1996). Один из важнейших его элементов – усиленный рельеф на нижних концах берцовых костей. Дело в том, что всадник, сколько бы он ни катался на лошадке, рано или поздно с нее таки спрыгивает. Лошадь – зверь не такой уж низкий. От удара стопы о землю напрягаются межберцовый синдесмоз (соединительнотканное соединение нижних концов двух берцовых костей), а также передняя и задняя межберцовые связки. Иногда могут даже случиться микротравмы – порвется какое-нибудь микроволокно, лопнет капиллярчик; при этом ничего в общем-то не болит, но день за днем нарушения накапливаются. Обычно человек прыгает на одну и ту же привычную сторону, так что одна нога страдает больше. Рано или поздно связки начинают окостеневать; для начала это отражается в усиленном рельефе в районе малоберцовой вырезки большой берцовой кости и участке над латеральной лодыжкой малой берцовой – как раз там, где кости соединяются. В предельном же варианте кости вообще могут срастись. Но всадник от этого не очень-то страдает: вертеть стопой ему не надо – нога всегда в сапоге, пешком он почти не ходит – вся жизнь в седле, может, так нога будет только прочнее в стремени сидеть. Конечно, подобные же изменения костей можно заработать и не катаясь на лошади. Можно, например, поработать гребцом на галерах: давление ног на пяточные упоры дает совершенно аналогичный эффект.Мышцы стопы человека по количеству и местам прикрепления принципиально те же, что у обезьян, хотя функционально уже не те. Человеку не очень нужно шевелить пальцами ног и хвататься ими за ветки. Поэтому мышцы переквалифицировались: во-первых, они поддерживают продольный и поперечный своды стопы, а во-вторых, выполняют роль амортизатора при ходьбе. Обе функции для мышц довольно бестолковы. Своды гораздо эффективнее было бы поддерживать связками. У человека же этим занимаются мышца, отводящая большой палец стопы, мышца, приводящая большой палец стопы, короткий сгибатель большого пальца стопы, короткий сгибатель пальцев и квадратная мышца подошвы – сплошь хватательные мышцы, которыми мы должны бы цепляться за сучья.
Кстати, о жирафах… Надо брать пример с жирафа: у него от затылка до крестца тянется здоровенное сухожилие, еще с эмбриональных пор растущее медленнее скелета и мышц. Получается, что в шею и спину у него вмонтирована мощнейшая пружина, постоянно тянущая голову назад; жираф не затрачивает ни малейших усилий, чтобы держать шею вертикально. Фактически это победа над гравитацией. Впрочем, проблемы у жирафа возникают, когда ему надо наклонить голову, ведь ему приходится прикладывать неимоверные усилия передних мышц, чтобы растянуть это сухожилие. Да и длинные ноги мешают, приходится странно раскорячиваться каждый раз, когда хочется, например, попить водички. Поэтому жирафы крайне редко пьют и несмотря на то, что живут не в пустыне, превосходят даже верблюдов своей засухоустойчивостью. Если бы человеческая стопа была снабжена снизу связками, растущими медленнее стопы, мы тратили бы гораздо меньше энергии при ходьбе и стоянии, а плоскостопие если и не исчезло бы из медицинских справочников, сделалось бы редкостью и гораздо реже мучило людей.Амортизация веса тела мышцами – совсем нелепая затея. Конечно, неприятно было бы стучаться костями об землю, но для смягчения походки гораздо лучше задействовать жировую или соединительную ткань, как это было реализовано у динозавров зауропод и стегозавров и ныне – у слонов.
Мы стопоходящи, имеем несовершенные суставы ноги и недоделанный позвоночник, то и дело дающий сбои. Мы очень медленно бегаем – даже мышь и кошка нас обгоняют! Однако человек на удивление хороший ходок. Миллионы лет прогулок по саваннам сделали человека великим путешественником. Настолько великим, что человеку плохо без ходьбы. Если надо подумать, человек задумчиво вышагивает, нервничает – мечется по комнате из угла в угол, надо отдохнуть – прогуливается в парке, надо набраться впечатлений – идет в поход, читает лекцию – маячит перед доской, общается с избранницей или избранником судьбы – опять же гуляет по разным интересным местам. Часто можно прочитать, что человеку, чтобы сохранить здоровье, надо ходить минимум пять километров в день. Очевидно, такое усреднение имеет мало смысла – и сами люди, и условия их жизни очень различаются, но доля правды в этом есть. Много стоящий или постоянно сидящий человек имеет все шансы заработать себе один из сотни диагнозов, связанных с гиподинамией – малоподвижностью.
Как уже говорилось, скорость нашего передвижения смехотворна. Однако народ не перемудришь, давно сказано: тише едешь – дальше будешь. Мелкими шажками австралопитеки начали свой путь по африканским саваннам, а уже сапиенсы решительным маршем обошли всю планету – аж до Огненной Земли и еще дальше – до Северного и Южного полюсов. В этом беспрецедентном кругосветном путешествии люди стали удивительно устойчивы ко всяким невзгодам. Скорость человек компенсирует выносливостью. Например, бушмены загоняют зебр, а индейцы – лосей, просто не спеша преследуя их. Зверь мчится гораздо быстрее охотника, но не может бежать два-три дня. А люди – могут. Люди берут измором кого угодно, причем во всех климатических поясах. Великие адаптационные способности были заложены еще в миоценовой африканской саванне. Неспроста первыми людьми на Северном полюсе были европеец, негр и четыре эскимоса – представители трех больших рас человечества.
Однако, как бы далеко ни убрели скитальцы от прародины, тропическое прошлое сквозит тут и там. Человек плохо переносит холод. Он изобрел одежду, приручил огонь, но подшерсток не вернулся на его тело, разве что в виде шубы. Поднятый край, ограничивающий дно гайморовой пазухи (полости внутри верхнечелюстной кости), не создавал трудностей в Африке, но вне тропиков стал проблемой: теперь из-за этого бордюра при насморке в пазухе скапливается слизь, так что можно довести дело до воспаления – гайморита. По этой же причине лучше всего сморкаться, низко наклонив голову. Кстати, мартышкообразные обезьяны в процессе эволюции избавились от гайморовой пазухи – не осталось даже следов, так что им гайморит не страшен; человекообразные же сохраняют примитивное строение, имевшееся еще у самых первых обезьян (Rossie, 2005).
Прямохождение создало одну уникальную черту пищеварения человека: оно у него стало частично внешним. Освободившиеся руки и умная голова позволяют богато манипулировать пищей: резать ее, тереть на терке, отбивать колотушкой, сбраживать и ферментировать сотней способов, жарить на вертеле или сковородке, варить в горшке или бизоньем желудке, тушить, запекать в земляной печи или духовке. Мы не обходимся лишь своей слюной (хотя именно от нее зависит успех приготовления кавы и чичи), как пауки, миноги или некоторые жуки. Мы поставили себе на службу бактерий и дрожжевые грибы, лимоны и даже циветт (любителям кофе “Лювак” посвящается). В свою очередь, готовка пищи увеличивает ее усвояемость и позволяет уменьшить жевательный аппарат и пищеварительный тракт, что делает человека зависимым от наружного пищеварения (истинная ода кулинарии: Рэнгем, 2012). Цепная реакция в действии. Каков апофеоз этого процесса – трубочка из баночки прямо в вену?..
Эволюция – странный процесс, в ней плюсы запросто оборачиваются минусами и наоборот. В саванне много опасностей и мало укрытий, ушами хлопать тут нельзя (впрочем, мышцы уха редуцировались заметно раньше), только вздремни – тут же окажешься в чьем-то желудке. А потому первые саванные приматы стали больше бодрствовать. Исследования показывают, что человек действительно спит заметно меньше – в среднем семь часов, – чем другие приматы, некоторые из которых умудряются проводить в объятиях Морфея до семнадцати часов (Samson et Nunn, 2015)! Кроме хищников, видеть сны мешали и недружественные соседние группы других австралопитеков, поскольку от них спрятаться на открытой местности тоже некуда. Казалось бы, синими кругами под глазами и головной болью тут не отделаешься. Но нет худа без добра. Если спать приходится меньше, то будем спать лучше, будем спать глубже! У предков человека в пять раз с 5 до 25 % – удлинилась фаза быстрого сна, наступило Время Снов. А эта фаза необходима для переработки информации, полученной мозгом во время бодрствования, в частности – перевода кратковременной памяти в долговременную, то есть усвоения знаний. Высвободившиеся же дневные часы можно занять полезным и важным, например изобретением чего-то новенького, а полученные навыки лучше усвоятся за счет новообретенного качественного сна. Удобно! К тому же можно уделить больше времени общению с сородичами и воспитанию детишек, что опять же повышает общий интеллектуальный уровень, способствует сплочению группы и снижению агрессии, а в сумме – обеспечивает выживание. Так трудности создавали человека, так закалялся разум.
Несколько миллионов лет от прямохождения до разума – мгновение в общем масштабе. Примерно 2 млн лет назад по планете ходили уже разумные существа. О предпосылках и последствиях этих событий много говорится в других частях этой книги. Здесь же помянем лишь два момента.
Человек отличается от животных развитым чувством юмора. Конечно, у животных оно тоже есть, и всюду процитирована шутка гориллы Коко, называвшей себя “хорошей птичкой”, но юмор обезьян довольно топорный, это настоящая его заря. Ясно, что происхождение и эволюция юмора – огромнейшая тема, достойная отдельной монографии, но попробуем осветить ее с одной из сторон: шутка как обман.
Когда человек шутит, он обманывает, сбивает с толку и провоцирует другого человека. Неспроста один из самых востребованных видов юмора – черный. Выдается некая тревожащая информация, адресат приходит в тонус, ведь все необычное потенциально опасно. Опасность надо на всякий случай отпугнуть, лучший способ для этого – показать свои клыки. Человек начинает ощериваться, губы растягиваются, готовые показать зубы… Но потом жертва шутки соображает, что в реальности опасности никакой нет. А коли опасности нет – так это же здорово, это же просто отлично! Это радость! Происходит разрядка напряжения. Оскал превращается в улыбку, набранный для вопля ужаса воздух судорожно вырывается из груди – человек начинает смеяться. Неспроста крик страха и смех слабо отличимы, по крайней мере в своем начале; вот продолжение у них может быть разное – протяжное в первом случае и отрывистое во втором.
Шутник же решает свои задачи. С помощью шутки очень здорово привлекать к себе внимание и, соответственно, успешно достигать поставленных целей. Например, если лектор вещает студентам полтора часа на одной ноте, то, сколь несомненно важные и нужные вещи он бы ни сообщал, студенты имеют все шансы заснуть и пропустить информацию мимо ушей. Человеку трудно долго удерживать внимание, ведь мы хоть и не легкомысленные шимпанзе, но и не хищники-засадники, способные часами сторожить мышку у норки. А вот если лектор разбавит свой монолог парой удачных шуток, это выведет слушателей из ступора, приведет их в сознание (шутка в лекции – что-то странное, неспроста это, надо прислушаться!), и цель будет достигнута. Если бы я написал классический учебник по антропологии, он был бы короче и информативнее, но шансов на прочтение у него было бы меньше, чем у популярной книжки, текст которой разбавлен всяческими хохмами.
Таким образом, юмор – это обман первоначальных ожиданий. Когда начальник на планерке с суровым видом заявляет: “Завтра всех уволю”, то первой нормальной реакцией будет ужас. Если обстановка такая, что это явно не шутка, то засмеется только дурак или же смех будет натянутым, деланым и противоестественным. А вот если после первой доли секунды оторопи до сотрудников начинает доходить, что это неправда, они распознают обман, и притом обман явственно безопасный, то они начинают весело смеяться.
Потому и люди без чувства юмора вызывают подозрительное к себе отношение. Если человек неспособен генерировать и распознавать шутки, то он не может отличить реальность от нереальности, значит, он не так уж адекватен. Чрезмерная и постоянная серьезность – вовсе не повышенная реалистичность, а напротив – уход от действительности! Конечно, к такому человеку надо относиться как минимум с настороженностью.
Чем разумнее существо, тем меньше у него врожденных форм поведения. Ведь разум – это способность реагировать нестандартно, оперировать разнообразной информацией, делать прогнозы, обучаться. Чем разумнее становился человек, тем больше времени уходило на его обучение. А обучение наилучшим образом удается как раз в детстве, когда мозг еще не закостенел и взрослые проблемы не мешают постигать новое. Чем сложнее становилась культура, тем дольше надо было постигать ее тонкости, зато и жить становилось лучше, жить становилось веселее. Смертность уменьшалась, детей требовалось рожать меньше. Закономерным образом детство удлинялось, а этап взрослой жизни относительно укорачивался.
У мартышкообразных обезьян детство составляет 3–5 лет, у шимпанзе – 7–9 лет, у человека – около 15-ти. Но столь долгое время организм не может совсем не расти, эволюционно выгоднее и технически гораздо проще отложить лишь половое созревание, а не весь ростовой процесс. Поэтому у людей появляется особый период – подростковый, когда размеры тела и потенциальные возможности мозга уже почти взрослые, а полноценно размножаться еще нельзя.
Взросление австралопитеков шло скорее по обезьяньему сценарию, но на неком этапе развития Homo стало истинно человеческим. Такие процессы для ископаемых видов изучать очень трудно, но мы точно знаем, что у современного человека на детство приходится чуть ли не половина жизни, по крайней мере ее треть. Ведь половое созревание происходит в лучшем случае лет в 12, а то и сильно позже. А средняя продолжительность жизни “в естественных условиях” – лет 35–40, разве что едва больше, а иногда и меньше. Это и логично, ведь вместе со снижением смертности до возможного минимума удлинение детства автоматически приводит к сокращению взрослости: если в 15 лет появляются первые дети (новые с интервалом в два года), то в возрасте родителей около 30 лет их дети уже рожают внуков. Для поддержания стабильной численности популяции родителям пора бы и умирать. Делая скидку на смертность – длина жизни в 35–40 лет оказывается в самый раз. Иначе численность популяции будет расти, ресурсы перерасходуются и всем станет плохо. Судя по определенному скелетному возрасту, такая система существовала у неандертальцев и сапиенсов вплоть до появления производящего хозяйства. Правда, у людей всегда имелись два универсальных выхода: во-первых, можно было заселить новые территории, а во-вторых, задействовать новый ресурс. Сапиенсы в этом смысле были, похоже, пластичнее неандертальцев.
Кроме того, сказанное про средний возраст не означает, что все прямо-таки обязаны были умирать строго в 40 лет. Конечно, всегда были отдельные люди, жившие дольше, пример этого есть даже в Дманиси с датировкой 1,8 млн лет назад. Но лишь в верхнем палеолите сапиенсы сделали одно из величайших открытий в своей истории – они изобрели бабушек. Вероятно, впервые процент пожилых людей, уже не размножающихся (это важно, чтобы численность оставалась постоянной, а ресурсы не переистощились; кстати, тут впервые у приматов появляется пострепродуктивный возраст), не охотящихся и даже ничего не собирающих, но активно участвующих в общественной жизни, вырос до таких значений, что стал важным фактором развития. Пожилые люди обладали ценнейшим ресурсом каменного века – жизненным опытом. Они могли делиться им с зеленой молодежью, чтобы та постигала хитрости выживания не на собственных ошибках. Причем времени у пожилых людей всегда не в пример больше, чем у любых других возрастов, они могут сидеть с детьми хоть сутками. Родители получают свободное время и могут потратить его с пользой. В итоге всем хорошо: дети учатся, родители отдыхают или занимаются своими важными взрослыми делами, опыт прошлых поколений не исчезает, а передается дальше и может быть развит. Очевидно, вся группа получает существенное преимущество перед “безбабушковыми” соседями. В кратчайшие сроки такая значительная новация должна была распространиться по всему миру, а отставшим от прогресса оставалось завидовать и стареть.
Многие исследователи считают, что именно с появлением бабушек (дедушки тоже, конечно, были, но вероятность их выживания была намного меньше, чем у бабушек) связано бурное развитие культур верхнего палеолита, появление искусства, мифологии, даже окончательное формирование языка и в целом – успех именно сапиенсов в освоении Ойкумены. Да здравствуют бабушки!
Эпилог. Конец цепи или продолжение истории?
Предки человека прошли долгий и хитрый эволюционный путь. Эволюция – не мудрая тетя с задумчивым взглядом и благими целями, а отбор – не злобный дядька с охряпником наперевес. Это статистические процессы дифференцированного воспроизводства генов в определенных условиях среды. Человек собран большей частью вовсе не из человеческих частей. В нашем теле переплелись элементы, возникавшие для сиюминутных нужд выживания всех предков – от первых клеток до собственно людей: бактериальные митохондрии и рыбьи жабры, амнион рептилий и лапки пургаториуса. Органы зачастую возникали вовсе не для того, для чего мы используем их теперь. Мы берем яблоко производными плавниковых складок, откусываем отвердениями кожи – запасниками кальция, фосфора и фтора, слышим и жуем жабрами, дышим частью пищеварительной системы, а думаем об этом переразвитым обонятельным анализатором. Условия для этого обеспечили девонская жара и пермские холода, отсутствие нормальных корней в девоне и появление их в карбоне, деревья и плоды, ракоскорпионы и динозавры, термиты и пчелы, лошади и носороги. Уберите элемент – получится ли картина? Или она окажется совсем иной?
Потерь на этом пути было не меньше, чем приобретений. Где отличное обоняние предков, где ближний ультрафиолет, где наш хвост? Было бы нам лучше с ними? Или это был бы уже не совсем человек?
Будет ли продолжение истории? Для этого надо не уничтожить свою планету, свою среду обитания. Пока человек не очень преуспел в созидании, а пора бы. Хочется верить, что книга эволюции человека не закончилась, что впереди еще много занимательных страниц, что кто-то в будущем сможет написать на них: “Неокортекс, двуногость и живорождение, как это ни странно, были свойственны нашим примитивным предкам, но именно благодаря им…”.
Корни разума. Часть четвертая, совсем короткая, но очень важная, рассказывающая о том, как набраться ума-разума, в некотором роде подводящая итог части третьей и необходимая для постижения части пятой.
Что сделало приматов приматами? Какое уникальное сочетание признаков стало достаточным для появления разума? Как это ни странно, крайне сложно выявить признаки, однозначно свойственные всем приматам и одновременно отличающие их от других отрядов. Однако не все безнадежно. Принципиальными экологическими особенностями первых приматов, необходимыми для появления человека, представляются: дневной образ жизни, древесность, прыгание по тонким ветвям, всеядность с преобладанием фруктоядности, малое количество детенышей и большая продолжительность жизни.
Дневной образ жизни был, вероятно, свойствен древнейшим предкам приматов, по крайней мере, многие тупайи активны именно днем, а некоторые плезиадапиформы имели маленькие глазницы. Таким образом приматы могли избежать конкуренции с большинством млекопитающих, ведь те-то были как раз ночными. Это же выводило приматов из-под гнета большинства хищников, ориентировавшихся на серое большинство, мельтешащее по ночам. Днем проще общаться, это способствует социальности. На свету удобно пользоваться зрением, сохраняется и развивается цветное зрение.
Очевидно, что одной из важнейших черт приматов является их древесность. Однако давно было замечено, что приматы обладают массой особенностей, отсутствующих у других древесных животных.
Жизнь на деревьях позволила сохранить и развить хватательные способности кисти, ее пятипалость и способствовала совершенствованию осязания. Хотя некоторые приматы – потто, галаго, паукообразные обезьяны, игрунки, колобусы, гиббоны – в итоге приобрели крайне специализированные формы кисти, у большинства видов во все времена сохранялись умеренные ее пропорции и противопоставление большого пальца. Хватательная же функция кисти, в свою очередь, позволяет использовать ее для манипуляции пищей, что опять же должно быть обеспечено развитием мозга.

Рис. 17. Кисти разных приматов: потто (а), игрунки (б), гиббона (в), колобуса (г), коаты (д).
Древесность бывает разная. Приматы в большинстве своем передвигаются по деревьям быстро, в основном прыжками, причем способны бегать по тонким ветвям и даже их кончикам (Orkin et Pontzer, 2011). Резвые скачки в сложном мире качающихся веток должны иметь мощное обеспечение в виде большого мозга. Конечно, на каждую стройную концепцию есть свои белки, не знающие о необходимости цефализации, но тенденция тем не менее очевидна. Секрет не слишком мозговитых белок в том, что они передвигаются в основном вдоль стволов и толстых веток. С дерева на дерево эти зверьки предпочитают перебираться или по почти соприкасающимся толстым ветвям, или по земле, а длинные прыжки с тонких веток на другие тонкие ветки совершают крайне редко. Даже летяги прыгают со ствола на ствол, большая прицельность при этом не нужна. Но и среди белок есть свои исключения. Восточная серая белка Sciurus carolinensis способна, в отличие от прочих родственников, кормиться на кончиках тонких веток без адаптаций, свойственных приматам. Кроме того, есть тупайи, поссумы и хамелеоны, тоже кормящиеся на кончиках тонких веток, но не обладающие великим интеллектом, ногтями и бинокулярностью (хотя все они не прыгают подобно приматам). Таким образом, жизнь на кончиках веток могла быть важнейшим фактором эволюции приматов только при условии отсутствия приспособлений к другим способам добывания пищи (Orkin et Pontzer, 2011) – вывод замечательный, учитывая столь часто постулируемую экологическую и этологическую пластичность приматов!
Для лихих прыжков необходима отличная координация, ее обеспечивает целый комплекс. Бинокулярное – объемное – зрение возможно благодаря повороту глаз вперед. Очевидно, закрепляется ведущая роль зрения среди всех органов чувств, ведь прыгать по кронам на слух, на ощупь или по запаху просто самоубийственно (летучие мыши могли бы поспорить, но не могут – летать с большим мозгом не получается). Ясно, что жизнь на деревьях также способствовала развитию вестибулярного аппарата. Полученная от зрения, осязания и органа равновесия информация о трехмерном расположении объектов должна обрабатываться в мозге очень быстро, ведь ветки качаются, ветер дует, к плодам крадутся конкуренты. Важно правильно оценивать расстояние между собой и местом, куда прыгаешь, чтобы не ухнуть вниз. Вместе с тем обоняние редуцируется – на вольном ветру, гуляющем в листве деревьев, оно не столь актуально.
Кстати, о медведях и собачках… Вестибулярный аппарат обезьян развит не в пример лучше многим и многим животным. Бесконечное перемещение по ненадежным ветвям сделало нас устойчивыми. Без миллионов лет скакания в кронах спуск на землю не завершился бы появлением двуногости. Все же на четвереньках стоять надежнее, да и падать в случае чего ниже. Конечно, можно и медведя научить ездить на велосипеде, и собачку – ходить на двух ногах, причем даже на передних, но им это дается с трудом и в целом ни к чему. Чуть что, они стремятся вернуться в устойчивое положение. А первые австралопитеки ничтоже сумняшеся поднялись вертикально (точнее сказать – не опустились обратно, ведь перед спуском на землю они лазали по деревьям именно вертикально). Качающееся обезьянье прошлое, кстати, позволяет людям осваивать профессии монтажников-высотников и моряков. Хорошо быть обезьяной!Некоторые ученые предположили, что специфика приматов обусловлена ориентацией на зрение в совокупности с жизнью на ветках и насекомоядностью (Cartmill, 1972), но эта точка зрения подверглась основательной критике (Sussman, 1991). Уже самые первые приматоморфы имели склонность ко всеядности, чем они, собственно, и отличались от насекомоядных. Переход с преимущественно насекомоядной диеты на всеядную мог быть первым толчком к появлению приматов. Избегание пищевой специализации – необязательная, но весьма характерная черта нашего отряда. Редкие случаи насекомоядности приматов относятся как раз к сравнительно поздним временам: галаго, золотые потто, лори, долгопяты являются одними из самых специализированных форм и ориентируются в основном на слух, а не на зрение.
Слепая кишка имеется у всех приматов, свидетельствуя об их исходной всеядности. С другой стороны, специализированно растительноядные формы возникали среди приматов тоже не так уж часто. Крайность в этом направлении представляют тонкотелые Colobinae, у которых в связи с исключительной листоядностью даже возникает многокамерность желудка, подобная варианту жвачных копытных Ruminantia. Однако даже самые листоядные приматы стремятся получать более питательную пищу, регулярно поедая фрукты и насекомых. Цветное зрение помогает современным колобусам выискивать среди зелени красноватые листья, более богатые белками, обезьяны предпочитают есть их, оставляя зеленые нетронутыми (Moffat, 2002). Возможно, подобно вели себя уже плезиадапиформы.
Очевидно, именно из-за всеядности ранние приматы – за исключением самых специализированных форм – не утеряли клыки и мало кто из них обзавелся большой диастемой между передними и задними зубами, столь характерной для сугубо растительноядных животных. Клыки сохранялись и по причине повышенной социальности приматов, так как играли важнейшую роль в регуляции внутригрупповых взаимоотношений.
Высокоэнергетическая всеядность, ориентированная на жирных насекомых и сахаристые фрукты, кроме прочего, позволяла укоротить пищеварительный тракт (с толстым животиком не очень-то попрыгаешь) и ослабить жевательный аппарат. Возможно, важнейшим признаком, обеспечившим в далеком будущем и наше появление, стало соотношение жевательной мускулатуры и мозговой коробки. Жевательные мышцы крепятся у млекопитающих на сагиттальном гребне, тянущемся по верху мозговой коробки; таким образом, они окружают ее, уже с младых ногтей своим давлением способствуют раннему зарастанию швов черепа и препятствуют росту мозга. У приматоморфов, начиная с плезиадапиформов, стала усиливаться тенденция к ослаблению обоняния и развитию стереоскопичности зрения. Это привело к повороту глазниц вперед, уменьшению обонятельных луковиц и решетчатой кости, а в итоге – появлению заглазничного сужения черепа в том месте, где у всех приличных зверей находится обонятельный мозг (для гоминид сильное сужение – примитивный признак, а для приматов как отряда – прогрессивный, таковы причуды эволюции). Таким образом, значительная часть сагиттального гребня оказалась в передней части мозговой коробки, а коробка, соответственно, сдвинулась от мышц назад, освободившись от их гнета и получив возможность увеличиваться более долгий срок в онтогенезе (раньше нагрузка жевательных мышц передавалась на кости всего свода и приводила к раннему зарастанию швов, так что мозг не мог расти). Фактически редукция мозга привела к росту мозга! Парадокс, но факт.
Эволюция ранних приматов шла в тесной связи с эволюцией цветковых растений (Sussman, 1991). Даже стремление приматов забираться на кончики веток может быть связано именно с питанием цветами и плодами. В этой связи никак нельзя пройти мимо того факта, что главный “эволюционный бум” среди млекопитающих, согласно исследованиям по коннексии палеонтологических и генетических данных, случился отнюдь не в начале палеоцена, а намного раньше – около 80 млн лет назад (Bininda-Emonds et al., 2007; Meredith et al., 2011). Заметно меньший всплеск семействообразования приходится на время около 100 млн назад лет и примерно такой же – на начало палеоцена. Тогда как последний, очевидно, связан с вымиранием динозавров, два древнейших примерно совпадают с появлением цветковых растений и установлением их доминирующей роли в мире растений. Приматы по таким расчетам возникли от 90 до 70 млн лет назад. Что любопытно, согласно этой концепции, приматы появились раньше тупай, что крайне странно, учитывая очевидную примитивность последних (Meredith et al., 2011). Древнейшие плацентарные или близкие к плацентарным звери – начиная со среднеюрской Juramaia sinensis и продолжая меловыми азиатскими и американскими видами – в современной фауне больше всего схожи именно с тупайями, которые, таким образом, выглядят самыми примитивными плацентарными современности, по крайней мере в экологическом смысле (Luo et al., 2011). Даже насекомоядные экологически более прогрессивны, поскольку ведут преимущественно наземный образ жизни, тогда как исходным был, видимо, древесный. Хотя тупай уже давно не включают в отряд приматов, все же родство этих групп несомненно.
Наконец, все приматы – сторонники так называемой K-стратегии размножения. Это значит, что детенышей рождается мало – почти всегда только один, зато родители без устали пекутся о нем, кормят, чистят, воспитывают, холят и лелеют. Ненаглядная кровинушка растет в условиях, близких к идеальным. Детская смертность оказывается минимальной (конечно, все познается в сравнении). Кроме приматов, так же ведут себя слоны и киты. Противоположный вариант – r-стратегия, предполагающая огромное число потомков, подавляющая часть которых гибнет. Она типична, например, для большинства насекомых, костистых рыб и амфибий.
Детеныш у приматов рождается беспомощным, но – за счет немногочисленности и относительной крупноразмерности матери – с заранее большим головным мозгом. За долгое детство он успевает обучиться всем жизненным премудростям, тогда как жестко врожденных форм поведения у приматов фактически нет. Продолжительность жизни в целом у приматов тоже велика; опять же это приводит к накоплению опыта. В сочетании с повышенной социальностью все это обеспечивает передачу этого опыта следующему поколению через обучение. Так социальность становится залогом выживания и успеха и получает шанс усложняться до человеческих высот. Хочется верить, что и до бóльших…
Уголок занудства. Принципиальные экологические особенности первых приматов, необходимые для появления человека: дневной образ жизни, древесность, прыгание по тонким ветвям, всеядность с преобладанием фруктоядности, малое количество детенышей, большая продолжительность жизни. Итоги дневного образа жизни: древесность, выход из-под гнета большинства хищников, социальность, сохранение и развитие цветного зрения. Итоги прыгательной локомоции: хватательная конечность и развитие осязания руки, развитие вестибулярного аппарата, развитие бинокулярного зрения и закрепление ведущей роли зрения, большая скорость нервных реакций, редукция обоняния. Итоги всеядности с упором на фруктоядность: избегание пищевой специализации, редукция обоняния, развитие зрения, ослабление жевательного аппарата и укорочение пищеварительного тракта, смещение жевательных мышц в переднюю часть черепа и высвобождение задней из-под давления этих мышц, увеличение головного мозга. Итоги малого количества детенышей при сравнительно крупных размерах и большой продолжительности жизни: развитие головного мозга, накопление жизненного опыта, развитие социальности. Принципиальные экологические особенности человекообразных приматов, сделавшие возможным появление человека: укрупнение размера тела, выход в саванну, увеличение доли мясной пищи в диете. Итоги укрупнения размеров тела у древесных человекообразных обезьян: ограничение возможностей к прыганию, исчезновение хвоста, тенденция к спусканию на землю, увеличение головного мозга. Итоги выхода в саванну: завершение становления прямохождения, некоторый рост головного мозга, расширение диеты, освобождение рук, усиление трудовой деятельности, усиление социальности. Итоги увеличения доли животной пищи в рационе первых людей: ослабление жевательного аппарата, размеров зубов и массивности черепа, увеличение мозга, появление каменных орудий труда, усиление социальности.Этапы прогресса, или Чем мы отличаемся от ежей? Часть пятая, которая многим покажется не имеющей отношения к человеку, так как в ней говорится о ежах и слонах, прыгунчиках и китах, о том, почему они не стали людьми, но исподволь подводящая Уважаемого Читателя к мысли, почему книгу читает он, а не муравьед.
Человеческая линия эволюции уникальна, как и вообще любая эволюционная линия. Но ведь планету населяли миллионы разных существ. Почему же среди них не нашлось других, которые смогли бы стать разумными?
Отличия человека от моржей, львов и даже кротов для большинства людей вполне очевидны. Вопрос об отличии от ежей может показаться странным, но это как поглядеть. С палеонтологической точки зрения вопрос актуален, животрепещущ и совсем не прост.
Приматы – удивительно разнообразная группа животных. У нормального человека при слове “примат” в мыслях, наверное, появляется облик макаки, шимпанзе или мартышки из мультфильма. Ассоциация с лемуром, думается, возникает лишь у статистически незначимого меньшинства. Однако немалую часть своей истории приматы были преимущественно лемуроподобными существами, да и в настоящее время примерно треть видов относятся к ним. Впрочем, мультфильм “Мадагаскар” в последнее время мог выправить статистику в этом отношении. Но вот долгопятов, надо думать, вспоминают уж совсем редкостные чудаки. А ведь палеонтологически долгопятоподобные приматы составляли огромную и очень важную группу приматов. А от долгопятов и лемуров недалеко и до плезиадаписов. А от плезиадаписов до ежей – рукой подать…
Глава 20. Примитивные млекопитающие.
Древнейшие млекопитающие типа Morganucodonta, их позднетриасовые предки – протомлекопитающие типа Adelobasileus cromptoni и Sinoconodon rigneyi, равно как и предки этих предков – циногнатовые Tritylodontidae, не отличались разнообразием внешности и образа жизни, ограничиваясь стилем землеройки (хотя большинство тритилодонтов были растительноядными). С ранней юры среди докодонтов Docodonta и других млекопитающих появились довольно разнообразные формы, однако подавляющее большинство их не имеют к современным зверям прямого отношения. Тем более удивительны примеры конвергенции – необычайного сходства некоторых мезозойских и современных зверей. Особенно интригует недавнее открытие Agilodocodon scansorius, среднеюрского докодонта из Китая, внешним видом и образом жизни напоминающего тупайю или даже лемура (Meng et al., 2015). Его моляры похожи на зубы полуобезьян, а резцы – игрунок. Этот зверек лазал по деревьям и питался смолой, надгрызая кору деревьев. Уровень развития докодонтов был в среднем ниже, чем даже у утконоса с ехидной, но надо же было с чего-то начинать. Как знать, может, скоро обнаружатся другие, более продвинутые юрские “параприматы”?
Общими предками и насекомоядных, и приматов, и рукокрылых, и хищных, и панголинов могли быть примитивные верхнемеловые звери вроде Cimolestes. Они имеют настолько “обобщенное” строение, что никак не помещаются в формальные классификационные схемы, зато годятся на роль всеобщих пращуров. Предложено выделение отряда цимолестов Cimolesta, объединяющего массу верхнемеловых и раннепалеоценовых зверей, включая разномастные подотряды пантолестов Pantolesta, дидельфодонтов Didelphodonta, тениодонтов Taeniodonta, апатотериев Apatotheria, пантодонтов Pantodonta, тиллодонтов Tillodontia, палеориктид Palaeoryctidae и даже, возможно, панголинов Pholidota с заламдолестесами Zalambdalestidae, но рамки такого отряда кажутся чересчур резиновыми; сам Cimolestes иногда включается и в палеориктид Palaeoryctidae, и в дидельфодонтов Didelphodonta.
Видимо, основной бум возникновения новых отрядов пришелся на верхний мел, тем более что в начале палеоцена отряды становятся более-менее различимы. Впрочем, и тогда разница между насекомоядными, первыми копытными и хищными вовсе не всегда очевидна. Иллюстрацией могут служить дидимокониды Didymoconidae, относившиеся к креодонтам Creodonta или мезонихиям Mesonychia, а ныне выделенные в собственный отряд дидимоконид Didymoconida (Лопатин, 2001). Последовательность возникновения отрядов остается невыясненной по палеонтологическим остаткам. Тут могут помочь данные генетики.
Известно, что классификации, построенные по генетическим данным, резко отличаются от “морфологических”. Например, по генетическим данным ежиные с землеройковыми и рукокрылые попадают в разные подразделения группы лавразиатериев Laurasiatheria, приматы с шерстокрылами и тупайи – в разные ветви эуархонтоглиресов Euarchontoglires (или в одну – в зависимости от схемы), а тенреки с прыгунчиками – в афротериев Afrotheria; на высоком уровне лавразиатерии с эуархонтоглиресами объединяются в бореоэвтериев Boreoeutheria и противопоставляются афротериям с неполнозубыми Xenarthra. По морфологии же все они: ежи, землеройки, тенреки, прыгунчики, летучие мыши, тупайи и шерстокрылы – до крайности схожи и вполне могут быть включены в единую группировку.
На первый взгляд, разница морфологической и генетической схем огромна, однако на второй – парадокс легко разрешим. В меловом периоде среди примитивных плацентарных дифференциация еще не зашла настолько далеко, чтобы можно было различать их на надсемейственном уровне; однако некий набор мутаций в разных группах различался, не влияя, впрочем, на внешний вид, принципиальные особенности морфологии и этологии; с тех пор этот набор незначимых генетических отличий еще заметно усилился. В итоге мы имеем несколько современных линий, примитивные представители которых сохранили морфологический план предков, но имеют генетические расхождения, восходящие к самым основам плацентарных.
В сущности, разница “морфологических” и “генетических” схем – это разница “горизонтальной” классической и “вертикальной” кладистической таксономии. У обоих подходов есть плюсы и минусы. Морфологический – единственный применимый в палеонтологии, но резко ограничен неполнотой палеонтологической летописи и случаями конвергенции и резкой специализации. Генетический подход дает нам представление о последовательности расхождения филогенетических линий, что лишь редко и с трудом удается определить по ископаемым находкам. Однако генетический подход на современном уровне не дает представления о сущности и масштабе находимых генетических отличий и пока мало надежен для определения времени расхождения эволюционных линий. “Вертикальная” систематика опирается только на точки дивергенции – расхождения линий и, в сущности, зависима от времени: давно разошедшиеся группы считаются резко различными, даже если за миллионы лет они практически не поменялись, тогда как недавно дивергировавшие таксоны не имеют шансов получить высокий ранг, сколь бы ароморфными ни были их достижения. Те незначительные мутации, которые в настоящее время различают какие-нибудь виды одного рода, в далеком будущем могут быть расценены как значимые для выделения отрядов. То есть сейчас мы считаем их видами одного рода, а систематики далекого будущего будут вынуждены числить их в разных отрядах, даже если за это время у них не появится существенных отличий в строении и поведении. Или же – в гипотетическом пределе – два древних детеныша из одного помета, у одного из которых появилась некая мутация, должны быть с точки зрения “генетической” кладистики отнесены к разным отрядам, очень древних – к разным классам, а очень древних – к разным типам. У “горизонтальной” систематики свой труднопреодолимый минус – вечная проблема выбора приоритетных для систематики признаков. Компромиссный путь пока не выработан; видимо, он должен быть “двух-” или даже “трехмерным” – учитывать и время расхождения линий, и суть появляющихся отличий.
Кстати, об игуанах… Противоречия между морфологическими и генетическими данными – обычнейшее явление. На первых порах развития молекулярной систематики генетики были склонны крайне свысока относиться к “устаревшим” морфологическим методам классической систематики, сваливая все нестыковки на конвергенцию, специализацию и субъективность анатомов. Но в последнее время все больше данных свидетельствует о неоправданности такого высокомерия. Морфологи-герпетологи оправились после потрясений, вызванных успехами генетики, собрались с силами и провели блистательное исследование филогенетических взаимоотношений ящериц (Gauthier et al., 2012). Расхождения с молекулярной систематикой, особенно в части филогенетического положения игуан, вышли не в пользу последней; для ее оправдания приходится предполагать слишком много обратных мутаций и возвращений признаков в исходное примитивное состояние после миллионов лет специализации, причем признаков как морфологических, так и этологических, определенных как на современных, так и ископаемых видах, как у взрослых, так и эмбрионов. Очевидно, в данном случае генетика дает какие-то сбои, специалистам не стоит расслабляться и уповать, что секвенаторы и кластерный анализ автоматически покажут всю правду. Еще есть над чем работать, а приматологи, глядя на игуан, должны крепко задумываться и не терять навыки морфологического анализа.Позднемеловые и палеоценовые звери эволюционировали странными путями (Кэрролл, 1993а, б; Основы палеонтологии, 1962). Внешне они были большей частью весьма сходны – мелкие землеройкоподобные создания с остренькой мордочкой, пятипалыми лапками и длинным хвостом. Сугубо внешностью сходство не ограничивалось. Хотя выделяют несколько отрядов палеоценовых млекопитающих, различия их бывают слабоуловимы даже для специалистов. Дополнительной сложностью является то, что большей частью от этих зверюшек сохранились лишь зубы. А строение зубов, понятно, сильно привязано к питанию, а питание, понятно, у всех было, во-первых, схожим, то есть отсутствовали строгие различия между отрядами, а во-вторых, могло и меняться от вида к виду, то есть внутриотрядное разнообразие было большим. Лучше могли бы работать признаки основания черепа – например, набор костей в составе слуховой капсулы, – но основание черепа сохраняется плохо, у зверюшек размером с мышь и подавно, и известно для небольшого количества древних видов.

Рис. 18. Hadrocodium wui.
Такая ситуация приводит к тому, что описан целый ряд видов, родов, семейств и даже более крупных таксонов, “зависающих” где-то между отрядами. Например, апатемииды Apatemyidae, выделяемые обычно в собственный отряд Apatotheria, зависают между насекомоядными, плезиадаписовыми и приматами; анагалиды Anagalidae вроде бы очень похожи на тупай (которые сами промежуточны между насекомоядными и приматами), но тоже имеют специфику, позволяющую считать их самостоятельным отрядом Anagalida; Amphilemuridae включались в приматов, но ныне зачислены в надсемейство или отряд ежиных Erinacoidea или Erinaceomorpha. Как минимум два семейства шерстокрыловых – Mixodectidae и Placentidentidae – имеют необычайное сходство с насекомоядными. Целое надсемейство микросиопоидов Microsyopoidea имеет спорный статус, его коренное семейство Microsyopidae от схемы к схеме плавает между грызунами, насекомоядными, шерстокрылами и приматами. Picrodontidae раньше считались насекомоядными, теперь – плезиадапиформами. Adapisoriculidae гуляют от сумчатых и насекомоядных до тупай и плезиадапиформов.
Древнейшие млекопитающие или их непосредственные предки были крошечными животными, примером чему служит Hadrocodium wui из ранней юры Китая: он достигал всего 3,2 см в длину и весил 2 грамма (Luo et al., 2001). Правда, еще более древние позднетриасовые млекопитающие типа Morganucodon или Megazostrodon (иногда объединяемые в отряд Morganucodonta) были все же побольше – аж целых 10 см, но тоже входили в весовую категорию землероек. Понятно, что сохранилось от них немного, кости столь малых созданий могут не очень явно отражать какие-то особенности строения мускулатуры, да и оценить таксономические различия на таком материале крайне сложно.
Уголок занудства. Один из важнейших для систематики млекопитающих признаков – строение слуховой капсулы. Оно может варьировать в пределах одного отряда, но в общем и целом отражает родство. У тупай слуховая капсула образована энтотимпаником – внутренней барабанной костью; такое же строение имеется у лептиктид, некоторых насекомоядных, некоторых прыгунчиковых, анагалид, рукокрылых и множества более далеких групп. У шерстокрылов слуховая капсула образована, кроме энтотимпаника, еще и эктотимпаником – наружной барабанной костью, что встречается у грызунов, зайцеобразных и разного рода копытных. У приматов ее основным элементом является каменистая кость – редкостный вариант, имеющийся только у некоторых ежиных, тенреков и прыгунчиковых (у других ежиных, тенреков и прыгунчиковых встречаются и другие варианты строения, в том числе уникальные). Таким образом, приматы отличаются от подавляющего числа других отрядов, включая тупай и шерстокрылов. Свидетельствуют ли эти факты в пользу особо близкого родства приматов и насекомоядных и отдаления их от тупай и шерстокрылов? Скорее всего, нет. У некоторых ранних групп приматообразных животных окостеневшая слуховая капсула могла отсутствовать или не прирастать к черепу, в этом уличены Ignacius, Phenacolemur и Microsyops из плезиадапиформов, а вот адаписовые – например, Pronycticebus – уже имели каменистую слуховую капсулу, сросшуюся с основанием черепа. То же прослеживается в ранней эволюции ежиных – у древнейших форм капсула не окостеневала. Таким образом, окостенение капсулы появилось позже сложения таксономических групп и не может явно говорить об их родстве.У многих групп палеоценовых и эоценовых млекопитающих проявилась тенденция к развитию длинных долотоподобных передних зубов, далеко выступающих вперед, с постоянным ростом и редуцированной эмалью. Этим отличались многобугорчатые, некоторые сумчатые, залямбдалестиды, тиллодонты, поздние тениодонты, апатемииды, некоторые ископаемые землеройки и ежи, грызуны, зайцеобразные, даманы, паромомиоиды, микросиопоиды, плезиадапиформы и плезиопитециды, не говоря о совсем уж экзотичных хоботных, пиротериях, десмостилиях и нотоунгулятах. С одной стороны, эта особенность сама по себе мало о чем говорит, так как сопровождается самыми разными вариациями строения прочих зубов и возникала по разным поводам. Склонность резцов к увеличению обеспечивалась за счет разных мутаций, и в разных группах увеличивались разные резцы (у тениодонтов вместо резцов ту же форму приняли вообще клыки). Показательно, что, несмотря на неоднократное возникновение такой зубной системы среди разных линий приматов, в наши дни ее имеет лишь один вид – мадагаскарская руконожка. Вероятно, остальные владельцы больших резцов не выдержали конкуренции с грызунами, а руконожку спасла ее крайняя специфика и изоляция (впрочем, гигантской руконожке, вымершей около тысячи лет назад, и это не помогло).
Кроме строения зубов и слуховой капсулы, приматы отличаются от насекомоядных крупными размерами глаз. Насекомоядные вообще видят плохо, глаза у них крошечные. Приматы видят хорошо и имеют большие глаза. Эти различия возникли, думается, очень рано, еще до стадии плезиадапиформов, и были, вероятно, связаны с образом жизни: насекомоядных – в лесной подстилке и приматов – на деревьях и кустарниках. Соответственно, обонятельный орган у насекомоядных велик, а у приматов – мал. Впрочем, у прыгунчиков большие глаза, а у Palaechton из плезиадапиформов – маленькие, так что и этот признак неидеален.
Мораль: практически нет каких-то универсальных и к тому же легко проверяемых признаков, которые бы помогли оценить эволюционную близость групп млекопитающих. Поэтому палеонтологам приходится хитрить и мудрствовать, чтобы выявить преемственность или, напротив, конвергенцию сходных форм.
Почему насекомоядные не стали разумными?
Древнейшие насекомоядные – Paranyctoides – известны из середины верхнего мела, чуть более раннего времени, чем древнейшие приматоподобные существа. Впрочем, как обычно бывает, таксономическая принадлежность этих ранних форм спорна. Они равно могут быть сближены с ежеподобными и землеройкоподобными. Достоверные насекомоядные в узком смысле Eulipotyphla появляются в палеоцене. Тогда в Америке, Европе и Северной Африке широко были распространены палеориктиды Palaeoryctidae – землеройкоподобные животные, но они, как и землеройки Soricidae, с самого начала были привязаны к земле и оказались достаточно специализированными роющими животными, к тому же особо-насекомоядными, судя по очень высоким и острым бугоркам зубов (что в будущем сделало из них хищников – Creodonta и Carnivora). В среднем и позднем палеоцене уже имеются представители семейства ежовых Erinaceidae, например североамериканский Mackennatherium и германский Adunator. Ежовые, таким образом, чуть ли не самое древнее из современных семейств млекопитающих, исключая разве что броненосцев Dasypodidae. Неудивительно, что они сохранили массу примитивных черт, а потому плохо отличимы от прочих древних зверей и имеют множество сходств с совершенно разными современными млекопитающими.
Никтитерииды Nyctitheriidae – существа, возможно, не только землеройкоподобные, но и близкородственные собственно землеройкам Soricidae, известны из палеогена. Любопытно, что первоначально они были древесными, в противоположность современным родичам и, возможно, потомкам – землеройкам Soricidae и кротам Talpidae. К среднему эоцену насекомоядные имели уже почти современный облик и вели нынешний образ жизни. С деревьев они были почти полностью вытеснены более развитыми приматами. Впрочем, вытеснялись они, возможно, не только вниз – в почву, но и вверх – в воздух, ведь часть никтитериид, вероятно, дала летучих мышей. Зубы никтитериид и рукокрылых почти неотличимы, и не исключено, что часть палеоценовых родов, известных лишь по зубам, относятся к древнейшим летучим мышам.
Между насекомоядными и шерстокрыловыми промежуточны палеоценовые Mixodectidae, а Г. Осборн считал их грызунами. Предками миксодектид могли бы быть палеориктиды, ежиные или их близкие родичи (Szalay, 1969). Близки к предкам приматов лептиктиды Leptictida – особый отряд палеогеновых зверей, хотя даже самые ранние их представители – Gypsonictops из верхнего мела – оказываются более специализированными, чем миксодектиды. Лептиктиды были хищными и явно специализировались к передвижению на задних ногах, причем не только прыжками, но и бегом (Leptictidium), некоторые стали внешне несколько похожи на современных прыгунчиков, а размеры их колебались от мышиных до длины в полметра и даже больше. Строение лептиктид (кстати, во многом похожих на ежиных), с одной стороны, примитивно, с другой – у них имеются явные черты специализации; это позволяет говорить о близости лептиктид ко всем примитивным отрядам млекопитающих, включая приматов, но не позволяет утверждать, что лептиктиды были их прямыми предками. Имеются и другие верхнемеловые млекопитающие, имеющие в целом примитивное строение, но с элементами специализации, например Procerberus. Как итог, их систематика остается крайне спорной.
Апатемииды Apatemyidae – одна из групп неопределенного положения; их относили и к насекомоядным, и к плезиадапиформам и выделяли в собственный отряд апатотериев Apatotheria, говорилось о близости апатемиид к грызунам, копытным, хищным, тениодонтам, тиллодонтам, кондиляртрам и, конечно, приматам. Впрочем, их зубы оказались слишком специализированы уже к началу палеоцена, чтобы можно было выводить из апатемиид кого-либо. Сильно увеличенные передние резцы – особенно нижние – делали их похожими на плезиадапиформов, грызунов и кускусов, близки они были и по стилю жизни, но сильно уступали большинству конкурентов в размерах, так как были величиной с мышь. Апатемиид отличала очень массивная голова, вытянутые тонкие пальцы и крайне длинный хвост. Жили они на деревьях. По всей видимости, апатемииды питались преимущественно насекомыми, которых добывали из-под коры деревьев подобно руконожкам и новогвинейским полосатым поссумам Dactylopsila – простукивая стволы, прогрызая в них дырочку мощными зубами и доставая добычу удлиненными вторым и третьим пальцами. Апатемииды известны со среднего палеоцена Европы и Северной Америки; поздние виды дотянули до среднего олигоцена, но, по всей видимости, проиграли эволюционную гонку приматам, грызунам и – в особенности – дятлам (Koenigswald et Schierning, 1987). Древнейшие дятлы, хотя еще и без своей знаменитой долбежной адаптации, известны из того же среднеэоценового местонахождения Мессель в Германии, что и апатемиид Heterohyus; отверстия, похожие на следы работы дятлов, найдены в стволах эоценового леса в Аризоне. Поздние апатемииды увеличились в размерах и, вероятно, пытались перейти на новые источники пищи, но дятлы победили. Ставка на специализацию, как обычно, оказалась роковой. Аналогичная адаптация, возможно, возникла у крупного плезиадапида Chiromyoides в позднем палеоцене Северной Америки и Европы. Любопытно, что предок руконожки Plesiopithecus teras с характерной специализацией зубов известен из верхнего эоцена Египта, но и сюда добрались зловредные дятлы, так что руконожка нашла убежище лишь на далеком лесистом острове. На Мадагаскаре и Новой Гвинее дятлов нет, поэтому только тут сохранились экологические аналоги апатемиид – руконожки и полосатые поссумы.
Уголок занудства. Первые приматы имели менее высокие и не такие острые бугорки моляров, более мощные и широкие скуловые дуги и не столь вытянутую мордочку, нежели ежиные. Верхние зубы ранних приматов поперечно более узкие, чем у насекомоядных, есть и более специфические отличия в строении зубов; в частности, пониженная разница между высотой тригонида – “трехбугорчатой” части – и талонида – “пятки” нижних моляров (Szalay, 1969). Например, древнейший приматоморф Purgatorius из верхнего мела США – вернее, единственный известный нижний моляр – определен как приматоморф именно по сочетанию квадратных очертаний с притупленностью бугорков тригонида, точно такие же зубы известны из нижнего палеоцена (хотя у Purgatorius тригонид высокий, а талонид узкий, и имеется стилярная полка, что не позволяет однозначно определить его как примата). Все эти особенности иногда связывают с переходом с сугубо насекомоядной диеты на смешанную, включающую фрукты и листья (Szalay, 1969). Конечно, судить о питании по зубам получается не всегда. Например, у современных шерстокрылов зубы остробугорчатые, “насекомоядные”, тогда как питаются эти звери листьями и плодами. Может, меловые предки приматов имели подобное же сочетание зубов и диеты, а потому мы не узнаём их среди прочих насекомоядноподобных зверюшек?Все насекомоядные в широком смысле имеют очень слабое развитие мозга. Интеллект у ежа понятно какой. Да и каким ему быть, коли масса мозга у него – чуть больше трех граммов, извилин на нем нет, а большая часть отвечает за обоняние? Ежу понятно, что извилинами с таким мозгом не пошевелишь – извилин-то нет! Малые размеры тела, правда, обеспечивают землеройкам рекордные показатели относительной массы мозга, но они же приводят к необходимости высочайшего метаболизма – опять же рекордного для млекопитающих. Необходимость согревать махонькое тельце не оставляет энергии и возможностей для сколь-либо существенного интеллекта и, кроме прочего, сокращает продолжительность жизни. Насекомоядные – заложники своего размера и прожорливости. Ежи, впрочем, зимой превращаются фактически в холоднокровных животных, но спячка еще в меньшей степени способствует разумности.
Почему грызуны и зайцеобразные не стали разумными?
Грызуны возникли, вероятно, как группа роющих существ, питающихся твердыми растительными кормами; по крайней мере, многие древнейшие представители вели именно такой образ жизни. Часть даже самых ранних верхнепалеоценовых и нижнеэоценовых родов – Paramys и Ischyromys – имели белкоподобный облик и, возможно, лазали по деревьям, но конкуренция со стороны плезиадаписовых – тоже древолазящих и грызуноподобных в строении черепа, но более интеллектуальных – очевидно, была слишком велика. Поэтому, несмотря на то, что в последующем – где-то с верхнего эоцена и после – многие грызуны перешли к древолазанию и питанию фруктами, а многие стали не прочь съесть и чего животного (летяги – страшные враги всех певчих птиц), грызуны не смогли выйти на новый эволюционный уровень. К этому времени в тропиках приматы уже прочно заняли соответствующую экологическую нишу, а вне тропиков, видимо, не хватало фруктов и развесистых деревьев, так что у белок, сонь и древесных дикобразов не осталось шансов стать разумными. Впрочем, не исключено, что спустя миллионы лет грызуны отыгрались и “сказали-таки свое веское слово” в вымирании парантропов, но это можно считать лишь пакостной местью неразумных созданий, но никак не заявкой на эволюционно-интеллектуальное превосходство. Однако примитивность в сочетании с неимоверными темпами видообразования – максимальными среди млекопитающих – оставляют грызунам надежду на разумное будущее.
Вероятно, грызуны начали эволюционную гонку несколько позже приматоморфов. Мелкие размеры (отдельным видам – Phoberomys pattersoni из верхнего миоцена Венесуэлы и Josephoartigasia monesi из плиоцена Уругвая – удалось достичь размеров очень крупной коровы или маленького носорога, но исключения – одно из основных свойств живой природы, да и большими мозгами такие мегакрысы похвастаться не могли: Sánchez-Villagra et al., 2003; Rinderknecht et Blanco, 2008), преимущественная растительноядность, значительная морфологическая специализация, малая продолжительность жизни, большое количество детенышей – достаточные причины для сохранения простого строения мозга и слабой социальности. Даже самые социальные суслики и голые землекопы особым интеллектом не блещут, простота добывания корма и мощный пресс хищников способны задавить всякие проблески разума. Грызуны смогли вытеснить многобугорчатых Multituberculata (которые вымерли как раз в конце эоцена – одновременно с расцветом грызунов), но “приматный” путь развития им был уже заказан. И это притом, что эволюционный корень приматов и грызунов был един! Впрочем, есть еще серые крысы – они и всеядны, и социальны, и не так уж бестолковы для своего размера; на них вся надежда на возрождение разума после исчезновения людей.
Древнейшие грызуны Rodentia известны из позднего палеоцена Северной Америки, а примитивнейшие – из нижнего эоцена Азии; в Азии в верхнем палеоцене тоже имеется несколько “грызуноподобных” видов, так что возникнуть отряд мог и там и там. Эти архаичные формы очень схожи с азиатскими анагалидами Anagalida. Получается интересная ситуация: анагалиды признаны неродственными приматам, приматы – близки к грызунам, а грызуны тем не менее потомки анагалид. Путаница была распутана новейшими исследованиями, в которых было показано, что сходство грызунов с анагалидами конвергентно. В настоящее время в качестве предкового для грызунов и зайцеобразных (или же только зайцеобразных) называется эндемичный азиатский отряд миксодонтов Mixodontia, и даже конкретнее – мимотониды Mimotonida и эвримилоиды Eurymyloidea (Лопатин, 2004), известные с раннего палеоцена. Любопытно, что древнейшие приматоморфы связывают Северную Америку с Европой, а грызуны – Северную Америку с Азией; вероятно, это связано с распространением в области с наименьшим сопротивлением со стороны других отрядов. Не значит ли это, что в палеоцене и эоцене в Азии кто-то составлял приматам серьезную конкуренцию? Впрочем, дело может быть просто в благоприятности экологических условий. Может, в Азии в палеоцене было меньше густых лесов, где могли бы жить приматы?
Как итог, грызуны имели с приматами одних предков в верхнем мелу, но в палеоцене их линии уже заметно разошлись – как экологически и морфологически, так и по эволюционной судьбе.
Близки к грызунам зайцеобразные Lagomorpha. Препятствия на пути “приматизации” зайцеобразных были теми же, что и для грызунов, хотя и с любопытной поправкой. Строение челюстей, тип прикуса и механика пережевывания пищи зайцеобразных – с боковыми движениями – позволяют каждому виду осваивать широкий спектр экологических условий и огромные ареалы без особой морфологической перестройки. Грызуны же специализируются именно на морфологическом уровне. Поэтому современные зайцеобразные насчитывают от силы полсотни видов, тогда как грызуны – несколько сотен родов и около 1700 видов. Таким образом, зайцеобразные с самого начала своей эволюции ступили на путь “специализации к неспециализации”, столь часто постулируемый как особо прогрессивный и якобы давший приматам невероятные эволюционные преимущества. Однако зайцеобразные “слишком рано” “вышли в саванну” – специализировались к наземному бегу и, хотя древесные зайцы тоже в природе существуют, так и не развили сколь-либо выраженной подвижности и цепкости “рук”. Зацикленность на растительной пище у зайцев еще большая, чем у грызунов, так что особых поводов для увеличения мозга и усложнения поведения в их истории не возникало. Пищухи Ochotonidae достаточно социальны, но не настолько, чтобы их можно было сравнивать даже с лемурами. Да и возникли зайцеобразные слишком поздно – лишь в среднем эоцене, так что шансов составить конкуренцию приматам у них уже не оставалось.
Почему копытные не стали разумными?
Еще одна крайность – копытные травоядные Ungulata. Среди палеогеновых млекопитающих особым разнообразием отличалась группа кондиляртр (Condylarthra), возникшая в самом начале палеоцена. Древнейший – Kharmerungulatum vanvaleni – найден в позднем мелу Индии (Prasad et al., 2007). Несколько лучше представлены североамериканские роды кондиляртр Protungulatum, Oxyprimus, Baioconodon и Mimatuta. Protungulatum gorgun был найден в слоях, содержащих зубы динозавров, а потому обычно упоминается как позднемеловой. Выяснилось, однако, что течением реки слои позднего мела и раннего палеоцена были перемешаны; Protungulatum с наибольшей вероятностью является раннепалеоценовым.
Как и для всех прочих плацентарных, корни кондиляртр теряются в густом тумане границы мела и палеоцена; в качестве предков назывались желестиды Zhelestidae – мелкие зверьки позднего мела Средней Азии, Европы и Северной Америки, – но родство этих групп поставлено под основательное сомнение (Archibald et Averianov, 2012; Wible et al., 2007). Сами кондиляртры с наибольшей вероятностью являются сборной группой, но известные черты ее представителей столь плохо различимы, что практически невозможно адекватно разделить ее на части (Wible et al., 2007).
Среди кондиляртр можно найти формы, весьма напоминающие приматов: их зубы тоже имеют притупленные бугорки, более-менее прямоугольную форму коронок и прочие тонкости, схожие с признаками нашего отряда. Неспроста статус некоторых животных долгое время оставался или до сих пор остается под вопросом: кондиляртры это или приматы? Примером могут служить Decoredon anhuiensis из палеоцена Китая, Hyopsodus и Promioclaenus из палеоцена и эоцена Северной Америки. Первоначально кондиляртры были стопоходящими всеядными животными, причем в диете немалую роль играли плоды и листья – как и у приматов, а сами они могли лазать по деревьям. Неудивительно, что некоторые тенденции эволюции самых ранних – нижне– и среднепалеоценовых – представителей группы весьма напоминали эволюцию приматов. Например, бугорки на молярах тоже стали понижаться, зубы стали закругляться и вытягиваться. Однако в дальнейшем кондиляртры пошли большей частью по пути приспособления к наземному бегу и питанию жесткой растительной пищей, дав в числе прочих парно– и непарнокопытных Artiodactyla и Perissodactyla. Посему морда их стала удлиняться, а не укорачиваться, как это было у приматов, жевательные зубы резко увеличились, выросло и число бугорков на них, конечности стали менее гибкими и полупальцеходящими, а первый палец не только не получил тенденции к противопоставлению, но вообще стал редуцироваться, вместе с пятым. Когти преобразовались не в ногти, а в копыта. Предполагалось, что некоторые примитивнейшие копытные с когтями на пальцах – эоценовые североамериканские агриохериды Agriochoeridae – могли даже лазать по деревьям, хотя вряд ли очень ловко, так что конкуренции на этом поприще с уже существовавшими тогда приматами они, конечно, выдержать не могли. Показательно, что древнейшие копытные отличались примитивным строением черепа и зубов, но имели довольно специализированные конечности. Учитывая, что большую часть сведений о древних млекопитающих мы извлекаем из зубов, этот факт заставляет задуматься.

Рис. 19. Кондиляртры Hyopsodus (а) и Chriacus (б).
Одним из “звоночков”, которые могли определить будущую судьбу кондиляртр, является приспособленность самых ранних представителей не просто к жизни на земле, но к рытью. Хорошим примером может служить род Chriacus, разные виды которого жили в Северной Америке на протяжении всего палеоцена и в начале эоцена. Chriacus имел гибкие конечности с пятью пальцами, увенчанными когтями; он мог бегать, лазать по деревьям, ел все подряд – фрукты, насекомых, мелких животных; его нижние резцы даже приобрели вид “зубной щетки” для чистки шерсти – как у лемуров. Но его передние конечности явно предназначены иногда копать – и этим кондиляртры отличаются от приматов. Кондиляртры были универсальнее, приматы – специализированнее, а потому первые не смогли вытеснить последних на деревьях, а последние не могли спуститься на землю. Некоторые кондиляртры довольно долго вели соревнование с приматоморфами за жизнь на деревьях: белкоподобные гиопсодонтиды Hyopsodontidae появились на границе палеоцена и эоцена – тогда же, когда настоящие приматы и грызуны. Те, другие и третьи были очень схожи экологически и, следовательно, имели массу параллелей в морфологии. Однако приматы и грызуны имели более длинную историю становления древесности, а землю уже захватили потомки кондиляртр, так что гиопсодонтидам не оставалось ничего, кроме вымирания (хотя поначалу они, как всякие малоспециализированные формы, были крайне многочисленны и часто представляют большинство млекопитающих в местонахождениях).
Большинство потомков кондиляртр стали специализированными растительноядными копытными животными, однако некоторые и после имели шанс вступить на “приматный путь”. К примеру, среди пантодонтов Pantodonta монгольская нижнеэоценовая Archaeolambda planicanina, насколько можно судить по ее зубам, была всеядно-насекомоядной, приматы тогда в Монголии почти отсутствовали (достоверно известен лишь один вид Altanius orlovi), так что некоторые пантодонты могли занимать их экологическую нишу; впрочем, вряд ли археолямбда была очень похожа на приматов, учитывая внешний вид других пантодонтов. Но пантодонты не смогли превзойти даже представителей южноамериканской фауны, известных своей низкой конкурентоспособностью, – в раннем палеоцене Южной Америки жил пантодонт Alcidedorbignya inopinata, а в последующем эта группа там исчезла. (Одновременно сей факт говорит о наличии хотя бы ограниченной связи между материками в раннем палеоцене, так что теоретически приматоморфы могли заселиться в Южную Америку уже тогда; а может, и заселились, но после исчезли? Вдруг новейшие изыскания откроют нам южноамериканских палеоценовых плезиадапиформов?).
Как выглядели и жили некоторые ранние растительноядные, можно представить, наблюдая современных даманов Hyracoidea, хотя современные даманы, без сомнения, достаточно специализированы и не могут считаться “живыми ископаемыми”. Часть их признаков отдаленно напоминает вариант приматов, например стопо– или полустопохождение, плоские ногти на пальцах (коготь сохраняется на первом пальце задней ноги – точь-в-точь как у лемуров), способность лазить по деревьям (впрочем, за счет влажности подушечек пальцев, а не их хватательной способности). Однако все же подавляющая часть их черт явно сближается с более крупными растительноядными; явного родства с приматами у даманов, конечно, нет.
Переход к растительноядности независимо повторили несколько групп млекопитающих. Например, ранние среднепалеоценовые диноцераты Dinocerata были похожи на ранних кондиляртр и креодонтов, но скоро превратились в огромных носорогоподобных зверей с рогами и копытами. Такая же судьба ожидала и многих других зверей. Эволюция их совершалась, как правило, очень быстро, даже самые ранние представители уже имеют все главные признаки своей группы. Впрочем, некоторые смогли сохранить некоторые первоначальные черты вплоть до современности. Хорошим примером могут служить свиньи Suina. Свинообразными были самые первые парнокопытные. Их примитивные зубы – низкокоронковые бугорчатые – во многом напоминают, с одной стороны, зубы приматов, с другой – сохраняют общий план у современных свиней. В немалой степени этому способствует, конечно, всеядный характер питания. Масса примитивных признаков, кстати, сохраняется у них и в строении конечностей. Фактически свиней можно рассматривать как эволюционно очень продвинутый экологический аналог наземных приматов (наше далекое будущее?).
Все наземные растительноядные невыгодно отличаются от приматов низким интеллектом и упрощенно-механизированными конечностями, движущимися лишь в одной продольной плоскости и потерявшими всякие шансы стать хватательными. Низкокалорийность растительной пищи приводит к усложнению и специализации пищеварительной системы, оттягивающей на себя энергетические и эволюционные акценты. С другой стороны, корневища, трава и листья не прячутся, не убегают и активно не сопротивляются. Добыть их несложно, а цвет почти всегда зеленый, что не способствует развитию цветного зрения. Все это в совокупности приводит к малой интеллектуальности копытных, вошедшей в массу поговорок и ругательств.
Почему хищные не стали разумными?
Обратная крайность – хищники. Хищный образ жизни вели предки млекопитающих еще до появления этой группы. Древнейшие млекопитающие все были хищниками в широком смысле слова. Впрочем, поеданием червячков и букашек дело не ограничивалось, о чем недвусмысленно свидетельствуют кости пситтаккозавра в желудке триконодонта Repenomamus robustus из нижнего мела Китая (Hu et al., 2005). А ведь родственный ему Repenomamus giganticus был вдвое больше – около метра в длину.
Хищники уже с самых ранних форм – нижнепалеоценовых кондиляртр арктоционид Arctocyonidae и верхнепалеоценовых креодонтов Creodonta – достаточно специализированы, но в их строении проглядывает более древнее состояние: когти не очень острые, зубы не имеют хищнического лезвия и в целом похожи на зубы насекомоядных и приматов, в скелете имеется хорошо развитая ключица, конечности стопоходящие. Многие из них хорошо лазали по деревьям. Вероятно, они были еще не абсолютно хищными, а всеядными. Из родственников современных хищных уже в нижнем палеоцене виверравиды Viverravidae были заметно специализированными к питанию насекомыми. Вместе с тем у среднепалеоценовых миацид Miacidae на фоне усиления хищнического комплекса имелся такой почти “приматный” признак, как умеренное противопоставление большого пальца. Виверравиды и миациды в настоящее время часто определяются как Miacoidea и исключаются из хищных в узком смысле слова, а настоящие хищные современного отряда Carnivora появляются в середине эоцена. Впрочем, преемственность всех этих групп достаточно очевидна, а экологически они не особо отличались.
Таким образом, хищники в широком смысле Carnivoramorpha успели занять свою экологическую нишу, по сути дела, раньше приматов, что объясняет, почему приматы не стали хищнее, чем могли бы. Конечно, гоминиды в итоге отыгрались по полной программе (все крупные и многие мелкие хищники сейчас в Красной книге), но в палеогене до этого было еще далеко. Впрочем, многие хищные вторично вернулись ко всеядности и – вспоминая панду – даже специализированной растительноядности. Показательно, что, например, у енотовых Procyonidae в связи с этим моляры приобрели квадратную форму и притупленные бугры, а лапки развили необычайные манипулятивные способности. Еще больше похожи на зубы приматов моляры большой панды Ailuropoda melanoleuca.
Причина “неприматизации” хищников видится в несоциальности всеядных форм и хищнической специализации социальных; про специализированных несоциальных можно вообще не вспоминать. Медведи Ursidae могут собираться группами при изобилии корма – например, нерестовом ходе лосося или созревании ягод, – но при этом никак не общаются между собой, а, напротив, стремятся держаться подальше друг от друга. Вероятно, так же вели себя медведеподобные по стилю жизни мезонихии Mesonychia – странные звери с огромными челюстями, маленькими мозгами и копытами на ногах, появившиеся в самом начале палеоцена в Азии и дожившие до начала олигоцена.
Социальные львы – специализированные хищники, охотники на крупных копытных; впрочем, все прочие кошачьи Felidae несоциальны.
Наверное, максимально приближены к “приматному идеалу” шакалы Canis и носухи Nasua – они и социальны, и всеядны. Но хищнические корни завели морфологию шакалов далеко по пути специализации, так что трудно представить, как они могут перейти к орудийной деятельности. А вот у древесных носух с их подвижными пальцами и общительностью, наверное, неплохие шансы – не зря они так напоминают лемуров. Настораживает лишь одно – долгие миллионы лет носухи остаются носухами и все никак не станут чем-то большим. Вероятно, препятствием на пути разумности становятся слишком длинные когти и носы? Енотовые Procyonidae появились в начале олигоцена – намного позже приматов, – может, у них все еще впереди?
Почему китообразные и ластоногие не стали разумными?
Древнейшие звери, приспособленные к водному образу жизни, известны уже из середины (Castorocauda lutrasimilis: Ji et al., 2006) и конца (Haldanodon exspectatus: Martin, 2005) юрского периода. Бесконечно далеки они от приматов!
Водные млекопитающие обычно довольно интеллектуальны (есть, конечно, дюгони Dugongidae и ламантины Trichechidae, но морская корова и есть корова, хотя и морская). В воде можно почти бесконечно наращивать размеры мозга, тем более что ресурсы позволяют.
Китообразные Cetacea появились в самом начале эоцена, 48–56 млн лет назад. Замечательными примерами четвероногих китов, похожих на помесь крысы с крокодилом, являются Himalayacetus subathuensis из Индии, а также Pakicetus attocki и Ambulocetus natans из Пакистана. Они имели огромную пасть, коротенькие лапки и длинное гибкое тело. А вот мозгами похвалиться они никак не могли. Интересовала их только рыба. Довольно быстро китообразные ушли в море и приобрели современный облик. Еще в олигоцене они достигли церебральных показателей – по абсолютным размерам и складчатости поверхности – уровня продвинутых гоминид (Lilly, 1977), а многие современные виды вдвое превосходят по ним человека. Нынешние китообразные известны своей повышенной социальностью и сложными способами общения, в том числе межвидового.

Рис. 20. Мозг дельфина.
Однако столь же общеизвестной истиной является малая относительная величина мозга китов и дельфинов, а преобразование лап в ласты – не лучший зачин для освоения трудовой деятельности. Кроме того, ловля рыбы и креветок – не самый идеальный стимулятор умственного прогресса. Как бы сложно стая дельфинов ни загоняла косяк рыбы, это остается загоном рыбы; не так сложно обхитрить селедку. (Критики возразят: “А приматы что? Вообще за кузнечиками гонялись да бананы с ветки рвали!” Но в том-то и дело, что приматы занимались разными вещами, долгопяты-кузнечиколовы остаются таковыми и по сей день, а разум появился у всеядных охотников на крупную дичь и собирателей всего подряд в саванне, полной конкурентов.) Что бы энтузиасты и фантасты ни говорили о необычайных достижениях дельфинов, о подводных цивилизациях и светлом будущем нетехнократической цивилизации пацифистов в океанских просторах, шансов на разумность у них немного.
То же можно повторить и о ластоногих Phocidae, Otariidae и Odobenidae (или, обобщенно – и пусть геносистематики покосятся на меня! – Pinnipedia). Пищевая специализация, превращение ног в ласты, а тела в жировой бурдюк не способствуют развитию интеллекта.
Возможно, есть шансы у каланов Enhydra lutris. Эти забавные звери обладают всеми задатками: они высокосоциальны, у них хватательная кисть и богатая трудовая деятельность по раскалыванию морских ежей и раковин гальками. С ними сложность та же, что с енотами: видимо, им слишком хорошо в их среде обитания, миллионы лет они остаются счастливыми обитателями ламинариевых лесов и не собираются переходить на следующий уровень. Видимо, им не хватает своего экологического коллапса, в преодолении которого пришлось бы поумнеть. Может, своего рода саваннизация севера Тихого океана еще осчастливит мир разумными каланами? Правда, для этого надо убрать уже имеющихся конкурентов…
Почему многобугорчатые и сумчатые не стали разумными?
Комплекс, похожий на раннеприматный, развился у многобугорчатых Multituberculata, представляющих самостоятельный подкласс Allotheria, особенно у птилодонтид Ptilodontidae, чья зубная система удивительным образом сочетала специализированность и универсальность. Емко охарактеризовала их В. И. Громова: выступающие вперед “длинные резцы служили для прокалывания и прогрызания твердых плодов, большой задний нижний переднекоренной – для разрезания оболочек более мягких и размельчения крупных плодов, а многобугорчатые заднекоренные – для их раздавливания” (Основы палеонтологии, 1962). Такая зубная система функционально близка к совершенству и может использоваться для питания как растительными кормами, так и животными. Некоторые многобугорчатые вели древесный образ жизни, а Ptilodus даже имел хватательный хвост и мог спускаться по деревьям вниз головой, как белки. Однако многобугорчатые уступали приматам заметно меньшим развитием мозга. То же можно сказать о тиллодонтах Tillodontia: они были всеядны, стопоходящи, сохраняли ключицу, могли лазать по деревьям и имели потенциально хорошие эволюционные шансы. Однако достаточно одного взгляда на их мозговую коробку – узкую, низкую, со всех сторон стиснутую жевательными мышцами, – чтобы понять причины их вымирания. Те же особенности гарантировали ту же судьбу еще нескольких отрядов млекопитающих. Гладкий маленький мозг свел в могилу половину ранних зверей, притом что их образ жизни и размеры колебались от землеройкоподобных до слонопотамовидных.
Другой причиной вытеснения многобугорчатых приматами и грызунами было несовершенство их онтогенеза. Судя по малому отверстию между двумя половинками таза, многобугорчатые рожали очень мелких недоразвитых детенышей, подобно современным сумчатым (имеются и сумчатые кости, но они прямо не связаны с сумкой, поскольку обнаружены также у циногнатовых Tritylodontidae и одного из древнейших плацентарных – Eomaia scansoria: Ji et al., 2002). Сочетание с малыми размерами тела и короткой жизнью оказалось буквально убийственным: такие животные не могли быстро нарастить мозги и накопить жизненный опыт, так что их интеллектуальный уровень оставался крайне низким. К тому же челюсти многобугорчатых могли двигаться только по вертикали и вперед-назад, а жевательные движения им были недоступны. Пока достойных конкурентов не было, все было хорошо – так продолжалось, кстати, примерно 100 млн лет подряд, – но когда приматы и грызуны достаточно развились, они задавили многобугорчатых интеллектом и обогнали их в скорости пережевывания пищи (“хорошо пережевывая пищу, ты помогаешь обществу!”). А ведь еще были тениодонты Taeniodonta и тиллодонты Tillodontia – роющие животные, питавшиеся корневищами, крупные и сильные, так что конкуренция в “грызунячьей” экологической нише в палеоцене была основательной. Однако, к чести многобугорчатых, стоит отметить, что для окончательной победы приматам и грызунам понадобилось не менее 25 млн лет.
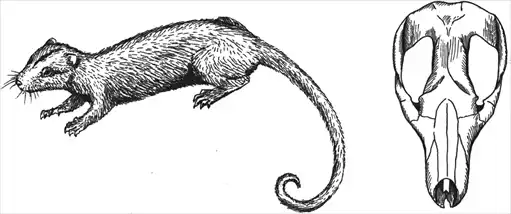
Рис. 21. Многобугорчатое Ptilodus; череп тиллодонта Trogosuss huracoides, вид сверху.
Почти те же причины привели к почти повсеместному исчезновению сумчатых Metatheria. Показательно, что среди сумчатых крысовидных опоссумов-ценолестид Caenolestidae и палеогеновых полидолопид Polydolopidae развилась зубная система, очень похожая на систему многобугорчатых; видимо, они были аналогом последних в Южной Америке. В Австралии такой же вариант известен у крысиных кенгуру Aepyprymnus и карликовых поссумов Burramys.
Самые примитивные сумчатые – опоссумы-дидельфиды Didelphidae и ранние дазиуроиды Dasyuroidea – экологически весьма похожи на предков приматов и древнейших приматов: едят все подряд, хорошо лазают по деревьям, многие имеют хватательный хвост и противопоставляющийся большой палец на задней ноге (на нем даже нет когтя). Однако приматы эволюционировали в крупных и умных животных, а опоссумы остались такими же, какими были еще в меловом и чуть ли не юрском периоде. Конечно, сумчатые тоже не стояли на месте, из опоссумоподобных предков развились аналоги неполнозубых (сумчатый муравьед Myrmecobius fasciatus), насекомоядных (включая сумчатого крота Notoryctes), грызунов (включая сумчатых летяг Petauridae и Acrobatidae) и даже крупных хищников – размером до большого медведя или леопарда (вроде южноамериканских боргиенид Borhyaenoidea и их потомков тилакосмилид Thylacosmilidae, а также австралийских тилацинид Thylacinidae и тилаколеонид Thylacoleonidae). Но показательно, что среди всего изобилия форм сумчатых нормальных аналогов приматов так и не возникло. Сумчатые не дали ни бегающих хищников, ни быстрых древолазов. В Южной Америке опоссумы Didelphidae и Microbiotheriidae, а в Австралии и Меланезии коала Phascolarctos cinereus, кускусы Phalangeridae и Tarsipedidae, а равно древесные кенгуру Dendrolagus проигрывают по всем статьям даже белкам, не говоря уж о мартышках. Среди полуобезьян тоже есть медленные лори, но даже они способны двигаться быстрее древесных сумчатых. Кускусы имеют противопоставляющиеся большие пальцы, всеядны, имеют квадратные моляры – всё знакомые черты, – но на этом сходство с приматами заканчивается. Хоботноголовые кускусы Tarsipes rostratus, питающиеся медом и цветочной пыльцой, экологически весьма напоминают некоторых мышиных лемуров, но и те и другие являются примерами крайней специализации. Любопытно, что даже древесные кенгуру, имевшие прыгающих наземных предков, по деревьям предпочитают двигаться фактически ползком; этим сумчатые принципиально отличны от приматов, один из важнейших признаков которых – адаптация к прыганию.
Очевидно, ключевая разница сумчатых и приматов – в степени развития мозга. Что сдерживало развитие мозга аллотериев-многобугорчатых и сумчатых – вопрос. Уже упомянутое несовершенство системы вынашивания детенышей не позволяло рожать их достаточно развитыми, чтобы уже после рождения они успели набраться ума-разума. У самых продвинутых в этом отношении сумчатых – бандикутов Peramelemorphia – имеется аллантоисная плацента, но безворсинчатая, а трофобласта, препятствующего отторжению плода, у них нет. Посему, как и все прочие сумчатые, бандикуты рожают детенышей фактически на стадии эмбриона. Возможно, еще сотня миллионов лет – и потомки бандикутов покорили бы Землю, но кто ж им даст эту сотню? Видимо, в большом интеллекте до поры до времени не было надобности, поскольку окружение в виде ящериц и динозавров само было не чересчур интеллектуальным, конкурировать было не с кем. А после появления плацентарных было уже поздно, чему свидетельством печальная история всех сумчатых фаун на всех континентах. К примеру, конкуренция с грызунами и приматами называется в качестве основной причины вымирания сумчатых полидолопид в олигоцене. Показательно, что конкуренцию с ранними насекомоядными сумчатые вполне выдержали: еще в нижнем палеоцене палеориктиды проникли-таки в Южную Америку (Marshall et Muizon, 1988), но потом исчезли на долгие миллионы лет (опять же – раз туда добрались палеориктиды, стало быть, могли добраться и плезиадапиформы, но их мы в Южной Америке не находим). Да и современные землеройки смогли заселить лишь самый север Южной Америки, южнее им успешно противостоят опоссумы, которые даже устроили “контрнаступление” на североамериканский континент. Даже в Австралии, про которую слишком часто говорят, что единственное плацентарное там – динго (для начала: а как же человек, эту динго туда переправивший?), имеется масса видов летучих мышей (которые заселились туда еще в эоцене) и около полусотни видов грызунов. Их обычно игнорируют или просто не знают об их существовании, но они есть! И за миллионы лет они не стали чем-то бóльшим и не смогли победить сумчатых Зеленого континента.
Некоторые сумчатые, видимо, пытались преодолеть “мозговой барьер”. Так, нижнепалеоценовый опоссум Pucadelphys andinus из Боливии был довольно социальным животным, о чем свидетельствует выраженный половой диморфизм и обнаружение десятков особей разного пола и возраста в одном месте – на площади одного “гнезда” (Ladevèze et al., 2011). Однако такие продвинутые сумчатые “опередили свое время” и не получили развития, а последующие виды вели одиночный образ жизни.
Почему тениодонты, рукокрылые, птицы и шерстокрылы не стали разумными?
В качестве прогрессивного признака какой-либо группы – часто приматов – иногда называют большую скорость эволюции, но это положение нуждается в категоричном уточнении.
На последовательном ряду палеоценовых тениодонтов Taeniodonta можно увидеть, как из подобного насекомоядным и опоссумам существа Onychodectes через собакоподобного зверя Wortmania может развиться странное чудище вроде Psittacotherium, Ectoganus или Stylinodon размером с медведя. Наверное, среди палеоценовых зверей тениодонты имели максимальную скорость эволюции. При этом никто не считает их особо прогрессивными млекопитающими. Тениодонты могут служить наглядным примером, как можно быстро специализироваться и потерять возможность стать “настоящим приматом”.
Другой пример быстрейшей специализации – летучие мыши Chiroptera. Рукокрылые, вероятно, имелись уже в верхнем мелу Южной Америки и верхнем палеоцене Франции и Германии (Gingerich, 1987; Hand et al., 1994; Hooker, 1996), а однозначные представители нижнего эоцена мало отличимы от современных, причем они обнаружены сразу в десятках видов на всех континентах, включая Австралию. Замечательно, что зубы нижнеэоценовых летучих мышей почти идентичны зубам примитивных плацентарных типа Cimolestes и древнейших землеройковых, так что родство всех этих групп не представляет сомнения, что однозначно подтверждается данными генетики. Несмотря на то, что в генетико-кладистических схемах рукокрылые попадают в лавразиатериев Laurasiatheria, а приматы – в эуархонтоглиресов Euarchontoglires, сходство двух этих групп всегда было очевидно всем систематикам, начиная с К. Линнея, и отразилось в создании группы “архонта” Archonta, объединяющей летучих мышей, приматов, тупай и шерстокрылов. Сходство пращуров представителей “архонта” усиливалось древесным образом жизни предков летучих мышей и шерстокрылов и как минимум преадаптацией к нему у предков приматов и тупай. Очевидно, потому и не удается выявить непосредственных нижнепалеоценовых или меловых предков летучих мышей, что их зубы неотличимы от зубов прочих примитивных зверей. Не исключено, что какие-то палеоценовые формы, известные лишь по зубам и считающиеся ныне приматами, плезиадаписовыми или какими-либо насекомоядными в широком смысле, при лучшей изученности окажутся примитивными летучими мышами. Пока у летучих мышей не было крыльев и эхолокации, мы считаем их “насекомоядными”, когда же эти специализации появляются (судя по Onychonycteris finneyi, полет возник раньше эхолокации: Simmons et al., 2008), мы уже видим готовых рукокрылых. Как и в случае с птицами и птерозаврами, машущий полет летучих мышей возник очень быстро, и палеонтологически уловить момент его становления крайне трудно, для этого надо обладать невероятным везением.
Рукокрылые уникальны в том отношении, что первые этапы их эволюции отличались максимальными темпами, а последующие – крайне низкими (вернее, на уровне видо– и родообразования темпы были велики, но план строения на уровне семейств практически не изменился с нижнего эоцена); можно даже утверждать, что макроэволюция летучих мышей закончилась в то время, когда у приматов она только начиналась. Очевидно, что причиной этого стала адаптация к полету. И без того небогатые заделы строения мозга первопредков были безнадежно задавлены необходимостью облегчения веса; наглядно это выражается в быстром зарастании швов черепа, что было характерно уже для раннеэоценового Icaronycterys. О хватательной способности конечностей речь тоже не идет, скорее уж о цеплятельной; нижнеэоценовый Onychonycteris еще имел когти на всех пальцах крыла, а остальные синхронные родственники – уже потеряли на двух или трех.
К чести рукокрылых, у них есть два существенных преимущества перед насекомоядными: они долго живут, а потому могут накопить богатый жизненный опыт, и очень общительны – вплоть до заботы о голодных сородичах у вампиров Desmodus rotundus. Но эти преимущества сводятся на нет малыми размерами мозга – дорогая плата за покорение небес. Экономия веса была таким важным делом, что рукокрылые избавились даже от “мусорных” участков ДНК, кстати, как и птицы.
Удивительно, но за десятки миллионов лет ни одна летучая мышь не потеряла способности к полету и не вернулась к наземному или древесному образу жизни (в фантастической фауне будущего изобретательный ум Д. Диксона нагрезил хищных наземных вампиров, ходящих на передних лапах и хватающих добычу задними, но этот инфернальный образ пока, к счастью, сугубо гипотетичен и остается на совести своего создателя).
Много шуму в свое время наделала так называемая гипотеза “летающих приматов”, согласно которой мегахироптеры Megachiroptera – крылановые – приобрели способность к полету независимо от прочих летучих мышей – микрохироптеров Microchiroptera, да к тому же возникли из древнейших приматов (Pettigrew, 1986; Pettigrew et al., 1989, 2008). В доказательство приводилось множество доводов, основными из которых был специфический тип нервного соединения сетчатки глаза с верхними холмиками четверохолмия в среднем мозге – уникальный для приматов, шерстокрылов и крылановых, а также отсутствие эхолокации у подавляющего большинства последних, в отличие от мелких эхолоцирующих рукокрылых. Приводились и другие доказательства независимого возникновения макро– и микрохироптеров. В определенный момент концепция “летающих приматов” уже почти взяла верх, но тут же потерпела сокрушительное поражение от генетиков, довольно убедительно доказавших монофилию рукокрылых (Mindell et al., 1991). Были сделаны попытки оспорить эти генетические результаты (Hutcheon et al., 1998), но большинство систематиков их не приняли. Впрочем, признание единого происхождения летучих мышей не может отвергнуть множество удивительных параллелей крылановых и приматов. Даже если эти сходства развились конвергентно, они слишком комплексны, чтобы быть совсем случайными; все же эта ситуация – отражение крайней близости предков обоих отрядов. Нет ископаемых форм, которые бы “зависали” между рукокрылыми и приматами (описан африканский раннемиоценовый крылан Propotto leakeyi, чье имя говорит само за себя, но тут дело в путанице, а не промежуточности: Simpson, 1967; Walker, 1969), – это следствие быстрой специализации первых.
Много рассуждений было посвящено выяснению вопроса, были ли предки летучих мышей насекомоядными или фруктоядными. Зубы древнейших известных форм “насекомоядные”, но палеоценовые вполне могли отличаться большей любовью к произведениям флоры. Незатихающие споры на эту тему, а также существование обоих видов питания среди современных рукокрылых – лишнее подтверждение зыбкости грани между двумя этими диетами, сколь бы различными они ни казались.
В целом последовательность специализаций рукокрылых видится примерно такой: судя по примитивнейшей летучей мыши Onychonycteris, не имевшей развитой эхолокации (хотя есть и другое мнение, что у нее могла быть “гортанная эхолокация”: Veselka et al., 2010) и питавшейся насекомыми, эхолокация возникла позже полета, а первой диетой были насекомые. Другие синхронные рукокрылые тоже насекомоядные, но эхолоцирующие. Судя по отсутствию эхолокации у большинства фруктоядных крылановых и ее наличию у некоторых представителей этой же группы (египетская летучая собака Rousettus aegyptiacus эхолоцирует, щелкая языком), а также по ее сохранению у фруктоядных и нектароядных микрохироптеров, эхолокация могла исчезать у фруктоядных форм, но необязательно; эхолокация и насекомоядность есть у генетически близких к крылановым подковогубовых Hipposideridae, подковоносовых Rhinolophidae, ложновампировых Megadermatidae, свиноносовых Craseonycteridae и мышехвостых Rhinopomatidae; кроме того, насекомоядные неоднократно и независимо переходили к фруктоядности. С другой стороны, все современные насекомоядные формы имеют развитую эхолокацию. Судя по развитию усложненной нервной связи сетчатки и четверохолмия именно у неэхолоцирующих крылановых и примитивному варианту у всех прочих рукокрылых, “приматный” вариант нервной системы возник у крылановых независимо. Все эти тонкости кажутся посторонними для проблемы происхождения приматов, но на самом деле имеют к ней прямое отношение. Ведь общие предки подразумевают, что и приматы имели шансы развить схожие адаптации.
Интересно также, что в качестве одного из лимитирующих факторов, сдерживавших раннюю эволюцию рукокрылых и загнавших их в ночной образ жизни, называется гнет со стороны дневных хищных птиц (Rydell et Speakman, 1995; Speakman, 2001; Simmons et al., 2008). Дескать, в конце мела птиц было много и млекопитающие не имели шанса освоить воздух. Конечно, еще были птерозавры (из меловых нам известны в основном морские рыбоядные, но имелись и другие, которые могли мешать жить птицам) и хищные динозавры, отчего не было мелких насекомоядных птиц. Звери, будучи интеллектуальными созданиями, вероятно, меньше мелькали и лучше прятались в лесной подстилке и ветвях деревьев, почему, собственно, успешно заняли насекомоядную нишу. Птицы серьезно пострадали во время позднемелового катаклизма, бóльшая часть их линий безвозвратно исчезла – например, энанциорнисы Enantiornithes, доминировавшие в мезозое. В раннем палеоцене птиц осталось очень мало, и у зверей появился шанс на полет. Тут-то и возникли летучие мыши и шерстокрылы. К концу палеоцена птицы оклемались, отрастили крючковатые клювы и загнали распоясавшихся зверей в ночь. Более того, в конце палеоцена уже появляются совы – Ogygoptynx wetmorei из США и Berruornis orbisantiqui из Франции; хищные птицы стали преследовать зверей и ночью. В позднепалеоценовых слоях Китая найдены копролиты, или погадки, птиц с останками млекопитающих – наглядная иллюстрация описываемых событий. Если все действительно было так, может, приматы просто не успели взлететь? Летучие мыши вовремя подсуетились, а приматы безнадежно отстали, оставив в современном человеке вечную тоску по свободному полету… Правда, вопрос этот темный, и каждый шаг изложенных рассуждений подвергается бурным обсуждениям.
Птицы в палеоцене имели потенциальный шанс на “мировое господство”. Млекопитающие были малы и слабы, а птицы были столь же теплокровны и умны. Однако летающие птицы не могут иметь большой мозг – летать мешает, а наземные формы возникают обычно в условиях отсутствия хищников, что расслабляет и приводит к еще большему упрощению мозга. Все современные нелетающие птицы, мягко говоря, не блещут интеллектом: страусы, киви, дронты и прочие подобные создания являются чуть ли не образцом неразумности.
Кстати, большой вопрос – что мешает цефализации страусов Struthioniformes, Rheiformes и Casuariiformes? Африканские страусы вообще жили и живут в тех же самых саваннах, что стали колыбелью, родиной и стартовой площадкой австралопитеков. Наземность в открытой местности, всеядная диета, зачатки социальности – некий задел у страусов имеется, но, может, рост слишком большой? Кроме того, крылья с самого начала были негодны для манипуляторной деятельности, а у наземных птиц так вообще редуцировались.
Возможно, главными кандидатами на чуть больший уровень цефализации могли бы быть пингвины Sphenisciformes: сложное плавание в воде, сопоставимое с полетом, требует развития мозга, но потенциально позволяет нарастить его массу. Однако антарктическая среда, бедная на раздражители, не способствует усложнению поведения пингвинов, специализация крыльев-ласт не оставляет никаких надежд на развитие трудовой деятельности, а антарктическая стужа и ограниченность ресурсов требуют строгой экономии энергии – какой уж тут затратный мозг. Тут уж не до мозгу – быть бы живу!
Ископаемые наземные птицы Азии, Европы, обеих Америк и даже Антарктиды – фороракосовые Phorusrhacidae и гасторнисовые Gastornithidae (они же диатримовые Diatrymidae) – становились успешными хищниками в отсутствие крупных бегающих хищников-млекопитающих. Гасторнисовые возникли в палеоцене и вымерли в эоцене, два этих долгих периода они терроризировали зверей Северной Америки, Европы и Китая. Фактически это двухметровые нелетающие хищные гуси – чудища, пожиравшие карликовых лошадей: фантасмагорическое сочетание! В Южной Америке и Антарктиде фороракосовые появились в среднем палеоцене и оставались главными плотоядными вплоть до появления тут плацентарных – кошачьих и псовых, заселившихся с севера в позднем плиоцене; тогда же фороракосы даже освоили Северную Америку, хотя и ненадолго; вымерли же они лишь в начале плейстоцена. Эти ужасные создания в эоцене жили и на территории современного Алжира, а в раннем олигоцене – современной Франции. В Австралии вплоть до плейстоцена аналогичную экологическую нишу занимали дроморнисовые Dromornithidae (гусеобразные, как и гасторнисовые) – сумчатые так и не смогли составить им адекватную конкуренцию, и это притом, что появились дроморнисовые только в олигоцене. Потенциально фороракосовые и гасторнисовые могли стать интеллектуальнее прочих птиц: хищный образ жизни предполагает некоторое напряжение мозгов, а наземность обеспечивает возможности их роста. Но, видимо, полуметровый клюв перевешивал. Принцип “сила есть – ума не надо” воплотился в ужасных птицах так же явно, как и в их родственниках – хищных динозаврах. К тому же в последнее время появились основательные сомнения в их хищности: гасторнисы могли быть сугубо растительноядными, тогда неразвитие их интеллекта и вовсе неудивительно (Angst et al., 2014; Mustoe et al., 2012).
Раз уж речь зашла о полете, невозможно пройти мимо шерстокрылов Dermoptera – ближайших родственников приматов по всем возможным показателям. Близость этих групп настолько велика, что многие систематики склонны определять шерстокрылов как подотряд приматов, называя их “летающими лемурами”; генетически шерстокрылы ближе к приматам, чем тупайи. Однако морфологически шерстокрылы близки и к насекомоядным – настолько, что некоторые авторы включали их в этот отряд (например: Van Valen, 1967). Собственно, древнейшие шерстокрыловые, древнейшие приматы и древнейшие насекомоядные различимы столь плохо, что статус целого ряда семейств и подсемейств остается под вопросом: это Mixodectidae, Placentidentidae, Ekgmowechashalinae, Thylacaelurinae и Paromomyidae. Тонкости строения основания черепа, включая слуховую капсулу и особенности расположения сосудов и нервов, размеры, пропорции, выпрямленность и строение суставных поверхностей фаланг кистей и стоп, гребешки для прикрепления мышц на них, форма когтей у Ignacius и Phenacolemur интерпретировались по-разному (Bloch et Silcox, 2001; Hamrick et al., 1999; Krause, 1991; Silcox, 2003). Строго говоря, доказательств отнесения этих зверюшек к плезиадаписовым или шерстокрыловым примерно одинаковое количество. Все же большинство современных палеонтологов считают паромомиид плезиадапиформами, а прочие упомянутые семейства – шерстокрылами.
Современные шерстокрылы крайне специализированы по множеству признаков. В первую очередь, конечно, стоит упомянуть летательную перепонку, тянущуюся от щек и ушей до кончика хвоста и занимающую промежутки между длинными пальцами на руках и ногах, благодаря которой шерстокрылы могут планировать на большое расстояние. Во-вторых, шерстокрылы имеют крайне специфическую зубную систему с редукцией на верхней челюсти первых резцов и клыкоподобностью вторых, а также очень оригинальным строением нижних резцов – в виде фестончатых гребешков, ориентированных горизонтально. Получается очень близкий функциональный аналог “зубной щетки” современных лемуров, у которых направленные вперед нижние резцы и резцеподобные клыки используются для чистки шерсти (кстати, такая “щетка” – одно из главных отличий современных лемуроподобных от их предков адапиформов Adapiformes и одновременно лучший довод в пользу монофилетичности лемуроподобных, исключая, возможно, руконожку; скелет же и прочие черты у лемуров и адаписовых почти идентичны, разве что мозг у лемуров побольше; вообще подобные “щетки” возникали у зверей неоднократно: уже упоминался кондиляртр Chriacus с таким же приспособлением).
Сейчас шерстокрылы представлены всего двумя видами, но с палеоцена по миоцен они были более разнообразны, причем почти все ископаемые формы известны из Европы и Северной Америки. Самые бесспорные шерстокрылы из них – плагиомениды Plagiomenidae. Ellesmene eureka была найдена на крайнем севере Канады, по соседству с Гренландией, в эоцене эта местность находилась на 76° северной широты – далеко за полярным кругом. Хотя тогда там и было не в пример теплее, чем сейчас, и росли субтропические леса, полярной ночи никто не отменял. Конечно, Ellesmene жила там не в одиночестве: в ее фауне встречены и другие виды, похожие на шерстокрылов, паромомисы, грызуны, многобугорчатые, лептиктиды, пантодонты, тениодонты, креодонты, миациды, различные копытные, птицы, крокодилы, саламандры и прочие животные (West et Dawson, 1978). Все они освоили столь необычные условия и, судя по изобилию их останков, были весьма многочисленны.
Скелет плагиоменид до сих пор не найден, они известны почти исключительно по челюстям и зубам, так что неясно, были ли они такими же ловкими планерами, как и современные шерстокрылы. Зубы Plagiomene очень похожи на шерстокрыловые: нижние резцы шпателевидные, с гребенчатым краем, щечные зубы широкие, а их эмаль складчатая, с режущими поверхностями для перетирания растений. Однако череп Plagiomene в некоторых деталях заметно отличается от шерстокрылового, так что их родство не слишком тесное. Удивительным образом Plagiomene по сложности слуховой капсулы и морфологии двураздельных нижних резцов схожи с прыгунчиками, по пневматизации основания черепа – с выхухолями Desmana moschata, по многобугорчатости моляров – с шерстокрылами, а по строению медиальной стенки слуховой капсулы – с приматами, в целом же строение оказывается неповторимым среди млекопитающих (MacPhee et al., 1989). Специализации зубов могли возникнуть конвергентно в разных линиях, а вот строение основания черепа у Plagiomene совсем уникально и особенно непохоже на вариант шерстокрылов. Так что плагиомениды вполне могут быть очередной оригинальной “околоприматной” линией.
Идея планирующего полета возникала много раз параллельно. Древнейший пример среди млекопитающих – юрский или раннемеловой Volaticotherium antiquum из Китая, выделенный в самостоятельный отряд Volaticotheria (Meng et al., 2006). Столь древние звери, конечно, не имеют прямого отношения к приматам и шерстокрылам, они были малы и обладали примитивным мозгом. Полет во всех своих вариантах ставил крест на возможности “приматизации”.
Почему тупайи, анагалиды, прыгунчики и тенреки не стали разумными?
Приматоморфы – одна из самых древних или даже самая древняя группа млекопитающих из доживших до современности. Единственный моляр Purgatorius ceratops из верхнемелового слоя Монтаны мог быть внесен сюда из более позднего нижнепалеоценового (Lofgren, 1995), но в любом случае в раннем палеоцене приматоморфы уже существовали и бурно эволюционировали. Уже тогда среди плезиадапиформов мы видим массу специализированных форм, об этом мы еще поговорим ниже. Быстрая специализация сопровождала появление каждой мало-мальски крупной группы приматов, настолько, что даже берет удивление: от кого же возникали последующие группы, кто и где доносил до новых времен генеральный план строения (кстати, эта фраза – идеальный кандидат для цитирования креационистами, которые забудут процитировать следующее предложение)? Однако ж существование доныне подобных “живых ископаемых” ставит все на свои места: коли этот пресловутый “генеральный план” и сейчас скачет по веткам в лесу, для эволюции приматов не все еще потеряно. Речь, конечно, о тупайях.
Тупайи Scandentia в своем облике удивительно точно сохранили признаки фактически позднемеловых примитивных плацентарных. Неспроста они регулярно оказывались в составе насекомоядных (например: Van Valen, 1967). Эти животные всеядны с упором на насекомоядность; преимущественно древесны, но некоторые наземны, хотя и они прекрасно лазают по деревьям; почти все активны днем. На пальцах у них когти, лапки не хватательные и большой палец не противопоставлен прочим, глаза находятся по бокам головы, обоняние отличное, мозг примитивный. Однако ведущие органы чувств у тупай – зрение и слух; на пальцах имеются дактилоскопические узоры, хоть и примитивные, зубы похожи на зубы лемуров, имеется такой специфический для лемуров орган, как подъязык – вырост под языком с зазубренным краем, используемый для чистки передних нижних зубов. Тупайи наглядно демонстрируют нам примитивность приматов – эти два отряда весьма схожи. Древнейшие настоящие тупайи – Eodendrogale parvum – известны из среднего эоцена Китая; возможно, немного древнее неопределенные и вообще сомнительные тупайи из Турции (которые, строго говоря, могут быть кем угодно от сумчатых до копытных). Палеоценовые формы нам неизвестны, но примитивный план строения современных представителей не оставляет сомнения, что эти зверьки возникли намного раньше эоцена и должны восходить к меловым насекомоядноподобным млекопитающим.
В качестве древнейших тупай назывались анагалиды (конкретно – отряд Anagalida, а не когорта с таким же названием, но с гораздо бóльшим содержанием; чтобы избежать путаницы, отряд иногда называют Anagaliformes или Anagaloidea), но масса их специализаций в строении нижней челюсти, зубов и конечностей – включая раздвоенные когти на передних и копытца на задних ногах – позволяют говорить, что эта группа весьма отдаленно родственна “архонтам”. Скорее всего, анагалиды возникли не от животных, похожих на Cimolestes, как “архонты”, а от зверей типа Zalambdalestes (которые по этой причине иногда включаются в состав отряда анагалид). Даже экологически анагалиды отличались от предков приматов и прочих подобных групп; об этом свидетельствуют странная форма зубов и специализация конечностей. Впрочем, все эти особенности не мешают многим ученым считать анагалид предками грызунов и зайцеообразных; они же могли быть предками огромных южноамериканских ксенунгулят Xenungulata и слоноподобных пиротериев Pyrotheria, что показывает великие возможности эволюции. (Отдельный вопрос – как азиатские анагалиды оказались в Южной Америке? Поэтому некоторые палеонтологи считают предками ксенунгулят и пиротериев кондиляртр.) Учитывая, что грызуны с зайцеобразными возникли чуть позже, чем “архонты” разделились на тупай, шерстокрылов и приматов, но из того же филогенетического ствола, анагалид можно рассматривать как потомков тех же древних “архонт”. Не зря некоторые систематики включают в когорту или надотряд Anagalida прыгунчиков, грызунов и зайцеобразных и объединяют их с Euarchonta (в отличие от Archonta, сюда не входят рукокрылые, но входят тупайи, шерстокрылы и приматы) в более крупный таксон Unguiculata. В некоторых системах прыгунчики оказываются в стороне, тогда Anagalida называется Glires, Euarchonta – Primatomorpha, а Unguiculata – Euarchontoglires. Однако ж всё это – спор о словах, сути филогении это не меняет. Палеоценовые анагалиды жили в Азии и там могли в некоторой степени заменять приматов, хотя уже говорилось, что их экологические отличия достаточно очевидны. Вероятно, некоторые анагалиды выкапывали еду из земли, хотя в пределах отряда имеется достаточное разнообразие.
Прыгунчики Macroscelidea – особая тема. Эти небольшие зверушки традиционно относились к насекомоядным, на основании наличия слепой кишки они сводились с тупайями в группу Menotyphla, по строению предплюсны объединялись с зайцеобразными, по строению черепа, зубов и по эмбриологическим данным включались в анагалид, палеонтологические данные роднят прыгунчиков с палеоценово-эоценовыми североамериканскими кондиляртрами семейств Apheliscidae или, менее вероятно, Hyopsodontidae (и даже конкретнее – подсемейства Louisininae). Генетические данные – теоретически самые точные – выносят их в афротериев – группу африканского происхождения. Одно из наглядных отличий строения прыгунчиков от насекомоядных – большие размеры глаз, а поведения – дневной образ жизни; сходство с тупайями вообще довольно отдаленное. Показательно, что наиболее родственные прыгунчикам кондиляртры семейства Apheliscidae – Apheliscus и Haplomylus – одновременно весьма напоминают ежиных рода Macrocranion (Penkrot et al., 2008), а строение древнейших эоценовых прыгунчиков позволило предположить их близкое родство с Hyopsodontidae (Simons et al., 1991; Tabuce et al., 2001), тогда как его представители Hyopsodus и Sarcolemur первоначально были описаны как примитивные приматы. Посему совсем не странно, что, несмотря на генетическое расхождение, масса особенностей прыгунчиков сближает их с приматами.
Важным представляется сравнительно сильное развитие головного мозга и относительно сложное поведение. Однако существенно, что прыгунчики рано специализировались к прыганию по земле, отчего берцовые кости срослись, а большие пальцы и на кистях, и на стопах редуцировались; кости предплечья прижаты друг к другу, отчего способности к вращению кисти назад-вперед (пронации-супинации) резко ограничены. Понятно, что хватательная функция кистей в итоге почти отсутствует. Прыгунчики с самого своего возникновения и доныне питались преимущественно насекомыми, хотя некоторая доля растительной пищи в рационе тоже имеется; наличие слепой кишки, в отличие от ежей и землероек, показывает, что значение растительной пищи в прошлом могло быть большим, чем сейчас. Миоценовый род Myohyrax имел зубы, подобные зубам грызунов и приспособленные к перетиранию растительной пищи, так что прыгунчики принципиально не были заперты в эволюционном тупике специализации. Такая смешанная диета вполне вероятна для древнейших приматов, но наши предки забрались на деревья, а прыгунчики освоили землю.
Впрочем, природа богата на выдумки. Древесные родственники у прыгунчиков тоже имеются – среди тенреков Tenrecidae. По ряду черт тенреки крайне архаичны; например, у них имеется клоака, но нет мошонки, а обмен веществ очень низкий, так что они почти холоднокровны. Хватает и специализаций: у тенреков нет скуловой кости, ежовые и полосатые тенреки Echinops telfairi, Setifer setosus и Hemicentetes semispinosus обзавелись иглами наподобие ежей, в засушливый сезон многие виды впадают в спячку. Тенрековые вообще весьма разнообразны: среди них есть аналоги опоссумов и ежей, землероек и кротов, выхухолей и выдр. Питание у всех преимущественно насекомоядное, хотя при случае едят плоды; образ жизни ночной. Древесные виды принципом своей организации напоминают предков приматов.
Любопытно, что тенреки миллионы лет сосуществуют на Мадагаскаре и в Африке с лемуровыми. Однако ж тенреки и лемуры не конкурируют напрямую и не вытесняют друг друга. Тенреки в среднем мельче и более насекомоядны, а главное – у них куда более многочисленное потомство. Хотя есть виды, у которых бывает 1–4 детеныша, у большинства их – около десятка, а рекорд принадлежит обыкновенному тенреку, рожающему до 32 малюток. Неслучайно и количество сосков у этого вида – 29 – рекордно для млекопитающих. Понятно, что при максимальных длине и весе взрослых тенреков около 40 см и 2,5 кг (обычно же – в полтора раза меньше) размер детенышей крайне невелик, есть проблемы и с качеством воспитания. При продолжительности жизни максимум несколько лет (в неволе – до полутора десятков лет) возможности нарастить сколь-либо значимый мозг и обзавестись богатым жизненным опытом стремятся к нулю. Все эти показатели крайне контрастируют с лемурами, у большинства из которых обычно рождается один детеныш с максимумом у карликовых и мышиных лемуров, которые могут иметь до четырех (хотя чаще у них рождается двойня). При этом лемуры в среднем заметно крупнее тенреков, а продолжительность их жизни – больше 20 или даже 30 лет – гораздо внушительнее, отчего размеры мозга велики уже при рождении и заметно увеличиваются после. Ни один самый седобородый тенрек-аксакал не дотянет до среднего возраста лемура. Как итог – социальное поведение тенреков и лемуров несопоставимо. Некоторые виды тенреков социальны, но выражается это лишь в том, что для сна несколько зверьков сцепляются в один шар, а кормятся они все же поодиночке. Не все лемуры общительны, но некоторые виды демонстрируют такой уровень социальности, какой тенрекам и не снился.
Группа афротериев Afrotheria вообще представляет уникальный пример возникновения крайне разнородных групп из одного корня. Корень этот разветвился в Африке примерно тогда же, когда в Евро-Америке возникли эуархонты-приматоморфы или даже конкретно приматы, однако последние остались гораздо однообразнее. Афротерии же дали наземных насекомоядных прыгунчиков Macroscelidea, подземных златокротов Chrysochloridae, роющих, наземных, древесных и полуводных тенреков Tenrecidae, трубкозубов Tubulidentata, даманов Hyracoidea, хоботных Proboscidea и сугубо водных сирен Sirenia. Уже по такому соотношению видно, что афротерии развивались в первоначальной изоляции от других групп млекопитающих. Видимо, в меловом периоде в Африке сложилась ситуация, аналогичная более поздней “великолепной изоляции” южноамериканской фауны. Приматоморфы же жили в окружении прочих бореоэвтериев, которые не давали им занять новые экологические ниши (если не считать адаписорикулид предками приматов). Приматы очень рано – уже в среднем палеоцене, 57–60 млн лет назад, – появились в Африке; характерно, что древнейшая находка сделана в Марокко – Altiatlasius koulchii. Видимо, к этому времени афротерии были уже достаточно разнообразны и развиты, чтобы не проиграть в конкурентной борьбе бореоэвтериям, но аналогов приматов среди афротериев еще не было. История повторилась 26–27 млн лет назад в Южной Америке – предыдущих миллионов лет не хватило, чтобы из опоссумов или грызунов возникло что-то подобное приматам.
Впрочем, в палеоцене разница афротериев и бореоэвтериев была слишком незначительной. И древнейшие прыгунчики (Chambius kasserinensis из нижнего-среднего эоцена Туниса, Nementchatherium senarhense из среднего-позднего эоцена Алжира, Herodotius pattersoni из позднего эоцена Египта), и древнейшие слоны (Eritherium azzouzorum из начала позднего палеоцена – 60 млн лет назад, Phosphatherium escuillei с границы палеоцена и эоцена – 56 млн лет назад, оба из Марокко, а также многочисленные роды и виды из эоцена Алжира, Египта и Ливии) обнаруживают явное родство с североамериканскими кондиляртрами (Gheerbrant, 2009; Gheerbrant et al., 1996; Hartenberger, 1986; Penkrot et al., 2008; Simons et al., 1991; Tabuce et al., 2001 и др.), причем хотя все они известны и из Африки, но из самой северной ее части.
Древнейший неназванный даман известен с границы палеоцена и эоцена Марокко, Seggeurius amourensis жил в нижнем эоцене Алжира (Court et Mahboubi, 1993; Barrow et al., 2010), более поздние эоценовые роды тоже североафриканские – из Марокко, Алжира, Туниса, Египта; их строение не свидетельствует очевидным образом о родстве с кондиляртрами, хотя таковое часто постулируется. Древнейшие тенрекоподобные животные (Todralestes variablis из позднего палеоцена Марокко, Dilambdogale gheerbranti из позднего эоцена Египта, а также более поздние Widanelfarasia и Qatranilestes оттуда же) тоже известны из Северной Африки, хотя ближе к адаписорикулидам Индии, Северной Африки и Европы, нежели кондиляртрам (Seiffert, 2010). Трубкозубы – самые специализированные из афротериев – не обнаруживают с прочими представителями этой группы какого-либо морфологического сходства, а происхождение их крайне туманно, поскольку все ископаемые формы очень поздние и очень похожи на современного трубкозуба. При всем этом происхождение трубкозубых от кондиляртр не вызывает у палеонтологов сомнений, а совпадения в строении с панголинами могут быть отнесены на счет конвергенции.
Учитывая, что кондиляртры были широко распространены в Азии, Европе, Северной и даже Южной Америке, все это может свидетельствовать о евро-американском либо азиатском происхождении афротериев или вообще полифилии этой группы. Близкие к предкам слонов кондиляртры жили в Азии: например, фенаколофиды Phenacolophidae, из которых древнейшая – Minchenella grandis – известна из позднего палеоцена Китая, а чуть более поздний монгольский Phenacolophus родственен также эмбритоподам Embrithopoda, примитивнейшие представители которых найдены в Румынии и Турции, а в развитом виде – в Египте; антракобуниды Anthracobunidae, которые обычно относятся непосредственно к хоботным, появляются в раннем эоцене Пакистана (Wells et Gingerich, 1983). Фенаколофиды и антракобуниды, правда, могут быть предками не хоботных, а десмостилий Desmostylia (известных только с северных побережий Тихого океана), но в любом случае родственны. Схожая с кондиляртрами примитивнейшая среднеэоценовая сирена Prorastomus с Ямайки и другие эоценовые сирены имели пятый премоляр, тогда как у всех кайнозойских млекопитающих он исчез, так что отхождение линии сирен от прочих афротериев надо бы относить к меловому периоду.
Значит ли вся совокупность этих данных, что часть кондиляртр в генетическом отношении была афротериями? Надо ли относить корень афротериев в меловой период или эоцен? И возникли ли они в Африке, ведь родственные группы обнаруживаются и в Индии, и в Азии, и в Европе, и в Северной Америке? Или кондиляртры в принципе сборная группа, объединяемая палеонтологами скорее в силу недостатка сведений? Как понимать генетическое родство афротериев, если их палеонтологические корни столь разлаписты? В любом случае очевидно близкое сходство и, вероятно, родство мелких всеядных наземных и лазящих млекопитающих даже в эоцене, не говоря уж о меловом периоде и палеоцене.
Почему южноамериканские звери не стали разумными?
Происхождение афротериев от единого предка, отстаиваемое генетиками, еще требует серьезного палеонтологического подтверждения и обоснования. По другую сторону Атлантического океана “великолепная изоляция” сработала гораздо однозначнее. Конечно, речь о зверях Южной Америки.
Древние южноамериканские фауны характеризуются изобилием экзотических отрядов копытных Meridiungulata: нотоунгуляты Notoungulata, астрапотерии Astrapotheria, пиротерии Pyrotheria, ксенунгуляты Xenungulata и литоптерны Litopterna заполоняли пампасы и леса; иногда выделяются и другие группы. Удивительно, но среди великого разнообразия всех этих полуфантастических зверей так и не возникли аналоги приматов. Были псевдолошади, псевдоверблюды, псевдоносороги, псевдослоны, псевдодаманы, псевдохаликотерии и масса прочих существ, конвергентных со “старосветскими”, но “псевдоприматы” нам неизвестны. С одной стороны, этот факт облегчил жизнь первым широконосым приматам, с другой – остается вопрос: почему?
Южноамериканские кондиляртры быстро разделились на массу копытных отрядов, большей частью крупноразмерных, грызуны хорошо освоили нишу мелких и средних растительноядных, но при великих возможностях, предоставляемых пышной тропической флорой, почти не дали древесных форм (только древесных дикобразов Erethizontidae), тем более не развились во фруктоядных и с быстрой локомоцией. Может, южноамериканские грызуны не могли преодолеть конкуренцию опоссумов? Сомнительно. О конкуренции со стороны ленивцев речь вообще не идет. Вероятно, грызуны уже были заметно специализированы к моменту попадания в Южную Америку и не смогли эффективно перестроиться.
Может быть, ранние этапы заселения плацентарными Южной Америки пришлись на время, когда там преобладали степные ландшафты, а к моменту значительного расширения лесов фауна уже сильно специализировалась к наземной жизни? Такое предположение подтверждается великим разнообразием крупных южноамериканских копытных, адаптированных к жизни в открытой местности. Не исключено также, что мы просто не знаем этих древних древесных грызунов Южной Америки, как это часто бывает с лесными лазящими формами по чисто тафономическим причинам; однако приматы нам известны из нескольких местонахождений, и неочевидно, почему там не могли сохраниться останки других древесных животных. В любом случае уровень интеллектуального развития южноамериканских млекопитающих был явно ниже, чем у прибывших сюда в эоцене обезьян.
Неполнозубые-ксенартры Xenarthra всегда имели крайне примитивный мозг. Однако потенциально у них не раз возникали неплохие шансы для “приматизации”. Древесный образ жизни в сочетании с питанием высококалорийной пищей – как раз подходящий вариант. Муравьеды Vermilingua – тамандуа и карликовый, равно как и некоторые панголины Pholidota (африканские и азиатские животные) приспособились к этому неопределенно давно, начало их специализации может восходить чуть ли не к меловому периоду. Учитывая великую роль питания термитами в становлении всеядности и трудовой деятельности австралопитеков и “ранних Homo” (Длусский, 1980; Backwell et d'Errico, 2001), можно было бы ожидать от муравьедов и панголинов некоего интеллектуального уровня, но увы! И те и другие числят ближайших родственников среди наземных роющих животных и имеют самое архаичное строение среди плацентарных: примитивную плаценту, очень простой мозг. Масса специализаций не позволяет надеяться на сколь-либо “разумное” будущее этих зверей. Тем более мало шансов у броненосцев Dasypodidae и ленивцев Bradypodidae – крайне специализированных зверей. Возможно, чуть больше шансов было у гигантских наземных ленивцев Megalonychidae, Megatheriidae и Mylodontidae, тем более что некоторые их группы демонстрировали удивительную экологическую пластичность, дав, в частности, плавающие морские формы Nothrotheriinae (Muizon et McDonald, 1995). Впрочем, гигантские размеры в сочетании с растительноядностью всегда заводили животных в эволюционный тупик.
Афротерии, неполнозубые-ксенартры и южноамериканские копытные в генетическом плане отдаленная родня, иногда объединяемая в рамках группы атлантогенат Atlantogenata. Как было показано выше, во всех этих группах “приматизация” упорно не шла. Среди всего разнообразия атлантогенат лишь слоны могут похвастаться недюжинным интеллектом, но, скорее всего, это просто побочный эффект очень больших размеров, примерно как и в случае с китообразными. Огромные размеры слонов и их бесчисленные специализации – тумбообразные ноги, хобот, бивни, тяжелые челюсти – не оставляют надежд на появление у них настоящего разума.
Глава 21. Немножко географии.
Палеоценовый мир был разделен на несколько больших географических областей. Южная Америка, Антарктида и Австралия представляли собой уже независимые части былой Гондваны, которым позже не суждено было вновь соединиться. Северная Америка, хотя и была отделена мелководным морем от Европы, все же населялась родственными фаунами (обмены фаун Европы и Северной Америки констатируются еще в конце мелового периода: Martin et al., 2005). Между Азией и Европой плескались воды широкого пролива, так что Азия существовала сама по себе, хотя в последующем соединилась с Северной Америкой. Индия плавала посреди океана, а в эоцене воткнулась-таки в Азию. Африка, почти перерезанная вдоль глубоким заливом на месте Сахары, лежала недалеко от Европы, но напрямую с ней не сообщалась, а между Африкой и Азией тянулась цепь островов наподобие современной Индонезии. В каждой из этих областей возникли свои фауны, в каждой из которых возникли во многом похожие формы.
Приматоморфы зародились в Северной Америке; судя по тому, что в среднем палеоцене приматоморфы добрались уже и до Африки, в Европе в это время они тоже должны были быть, а в позднем палеоцене они известны в Европе сразу во множестве форм. В Азии приматы, возможно, появились тоже в среднем палеоцене, но китайский Decoredon anhuiensis может быть как омомидом, так и анагалидом, и, с очень большой вероятностью, кондиляртром (возможно даже – уже поминавшегося семейства Hyopsodontidae). Достоверные приматы в Китае отмечены в позднем палеоцене, хотя вначале они там крайне немногочисленны и почти идентичны североамериканским. На Индостанском острове приматоморфы появились как минимум в раннем эоцене, если не принимать в расчет спорных адаписорикулид. Фаунистические связи работали в разных направлениях, и трудно разобрать, насколько реконструированная зоогеографическая схема соответствует действительности.
В палеоцене в разных регионах имелись свои потенциальные “приматы”: в Азии – анагалиды, в Африке – тенреки, в Южной Америке – опоссумы, в Австралии – кускусы. И лишь в Европе и Америке зародилась группа приматоморфов. Только на границе палеоцена и эоцена – с глобальным потеплением и распространением тропических лесов – возникают настоящие приматы адапиформы Adapiformes и омомиформы Omomyiformes, которые чрезвычайно быстро расселились по Азии и Африке и дали в последующем все более поздние группы. Приматы стали приматами в результате целого ряда конкретных обстоятельств. Огромную роль сыграли первичные морфологические и этологические специализации и конкурентные взаимоотношения с другими млекопитающими и птицами. Не будь великого множества прочих животных, приматы так никогда бы и не ступили на путь “приматизации” и никогда не увенчались бы разумным “венцом”.
Глава 22. Кем приматы стали и кем не смогли.
Почему же именно приматы вылавировали между крайностями насекомоядных, грызунов, травоядных и хищников и пошли по пути развития интеллекта? Ведь задел у всех был один!
Среди приматов можно найти примеры конвергенции с самыми разными животными. Руконожка ай-ай Daubentonia madagascariensis имеет постоянно растущие резцы, как у грызунов. Мадагаскарские палеопропитеки Palaeopropithecus и бабакотии Babakotia, вымершие уже в историческое время, пропорциями конечностей и способом локомоции мало отличались от ленивцев. Мартышки-гусары Erythrocebus patas и мезопитеки Mesopithecus скорее напоминают в этих отношениях газелей, а галаго Galago – тушканчиков. Зубы гигантопитеков Gigantopithecus на удивление похожи на зубы крупных травоядных, причем не только копытных, но и ископаемых гигантских панд. Мандрилы Mandrillus имеют впечатляющие клыки, по сути это саблезубые обезьяны. Конвергенция касается не только строения, но и поведения. Так, жирохвостые лемуры Cheirogaleus впадают в спячку на сухой сезон, как делают и многие другие животные в неблагоприятные времена. Образ жизни и способ добывания пищи современных горилл Gorilla и, возможно, гигантопитеков Gigantopithecus напоминают таковые халикотериев Chalicotheriidae, гигантских наземных ленивцев Megatherioidea и, в меньшей степени, нотоунгулятных хомалодотериев Homalodotheriidae Южной Америки. Так что у приматов было много адаптационных возможностей, которые они успешно использовали!
Однако весьма поучительно знать не только экоформы, приобретенные приматами, но и те, которыми приматы так никогда и не стали. Рассмотрение таковых показывает ограниченность экологической пластичности приматов и одновременно подчеркивает специфику этого отряда.
При всем разнообразии среди приматов ни разу не возникли специализированные водные формы. Носачи Nasalis larvatus, переходящие затопленные мангровые заросли по пояс в воде, макаки-крабоеды Macaca fascicularis, добывающие пищу в воде, и целебесские макаки Macaca nigra, плещущиеся в морском прибое, даже не повод для сравнения с выхухолями, бобрами и капибарами. Приматы с самой своей зари были столь далеки от воды, что за десятки миллионов лет не смогли полюбить ее всей душой. Человек в этом смысле большое исключение, хотя и он стал человеком тогда, когда вышел осваивать горизонты саванн, а не морские просторы. Многочисленные модные домыслы о невероятной связи человеческих предков с водой, вплоть до постулирования необычайного родства с дельфинами, не имеют под собой особых оснований.
Не освоили приматы и роющий образ жизни, столь любимый ближайшими родственниками – насекомоядными и грызунами. Древнейшие специализированно-роющие звери известны уже из верхней юры – это Fruitafossor windscheffeli из Колорадо (Luo et Wible, 2005) и Docofossor brachydactylus из Китая (Luo et al., 2015). Современные шахтеры и спелеологи – первый шаг в столь новой для приматов области, как недра Земли, но внутренние сомнения не дают поверить в скорое эволюционное обособление морлоков.
Приматы не стали хищными. Конечно, приматы возникли из насекомоядных существ и почти все не против съесть кого-нибудь не слишком опасного, но избыточной свирепостью обезьяны никогда не отличались, ведь и самые хищно настроенные долгопяты, лори и галаго постоянно едят фрукты. Человек – максимальное приближение к идеалу плотоядного, но даже светлый образ неандертальца-суперхищника в последнее время оказался замутнен фактом варки каш из ячменя и поедания фиников, бобов, кувшинок и сорго (Henry et al., 2011).
Приматы никогда не дали крупных наземных травоядных. Гориллы и особенно гигантопитеки, сколь бы велики и растительноядны они ни были, не могут сравниться с антилопами, носорогами и слонами; да и гориллы при всей своей тяжести не выходят из густых лесов и отлично лазают по деревьям, если те достаточно прочные. Приматы с самого начала своей эволюции не умели жить на земле. Показательно, что даже на Мадагаскаре с его бедной на хищников фауной лемуры не дали полноценных наземных видов. Лишь несколько приматов спустилось с деревьев, и лишь один – человек – окончательно и бесповоротно (впрочем, из окна биофака каждую осень я наблюдаю студентов на яблонях, опровергающих сей тезис). Даже галаго, столь похожие на тушканчиков и живущие в буше, скачут в основном по ветвям, а не под ними. Этим приматы основательно отличаются от всех близких групп млекопитающих – грызунов, насекомоядных, афросорицид, ископаемых кондиляртр, лептиктид и многих прочих, включая даже тупай. Лишь шерстокрылы и летучие мыши сопоставимы с приматами по степени “отрыва от почвы” и даже превзошли их в этом, но шерстокрылов всего два вида, а летучие мыши оторвались не только от почвы, но и от деревьев.
Учитывая все вышесказанное, нельзя согласиться с часто приводимым рассуждением, что приматы – удивительно неспециализированные и генерализованные, что они “сделали ставку на специализацию к неспециализации”, что они адаптируются силой мысли, а не морфологически. Среди мира млекопитающих приматы заняли вполне определенную экологическую нишу, которую ревниво оберегали весь кайнозой, крайне редко покушаясь на чужие вотчины. Приматы за свою историю дали массу удивительно специализированных форм; с другой стороны, многие древние и современные животные гораздо менее специализированы.
Секрет успеха приматов кроется в сочетании специализации к древолазанию и всеядности (с уклоном в растительноядность) с сохранением заметной доли экологической пластичности. Жизнь в трехмерном мире на ветках деревьях привела к развитию зрительного и тактильного анализаторов с подавлением обонятельного, заставила напрягать мозги и пользоваться руками; одновременно не дала конечностям закостенеть и специализироваться по пути срастаний и редукций элементов. Разнообразное и достаточно калорийное питание способствовало загрузке мозга нестандартными задачами и обеспечению энергетики для их решения. Не слишком малые размеры тела, малое число детенышей и большая продолжительность жизни обеспечили возможности развития крупного мозга и наполнения его богатой информацией – жизненным опытом. В комплексе с высоким уровнем социальности это дало приматам возможность развития интеллекта вплоть до человеческих высот и, хочется верить, бóльших.
Вершина эволюции. Часть шестая, опять недлинная, оставляющая в терпеливом Читателе смешанные чувства, ибо в ней говорится о том, почему Читатель – не Пуп Земли.
Человеку свойственно считать себя венцом творения, вершиной эволюции, старшим братом братьев наших меньших – в общем, пупом Земли. Об этом рассказывает множество преданий, мифов и легенд, в которых подчеркивается момент получения специфики, отличающей человека от прочих живых существ. Научный взгляд на мир, надо признаться, в этом отношении недалеко ушел от религиозного. Обычно черты, отличающие человека от животных, априори признаются прогрессивными, а сближающие – примитивными. Признаюсь, такой терминологией часто пользуюсь и я сам. Удивительно, но признаки, отличающие какой-либо другой вид от прочих, обычно называют специализированными, но этот термин крайне редко применяется в отношении человека. В чем же здесь хитрость?
Наверное, стоит четко определить значения слов.
Примитивным обычно называется признак, присутствовавший у предков ныне живущих организмов, но изменившийся или исчезнувший у многих из них.
Прогрессивными стоит называть вновь возникающие признаки, дающие возможность выхода вида на новые просторы эволюции.
Специализированным является признак, который не может богато изменяться в будущем, а потому заводит вид в эволюционный тупик.
Посмотрим, как же распределяются видоспецифические признаки человека, благо таковых не столь уж много.
Большие размеры мозга – как абсолютные, так и относительные – без сомнения, могут считаться величайшим человеческим достижением. Впрочем, тут важно именно сочетание обоих показателей. Абсолютный размер мозга вдвое больше человеческого у дельфинов, китов и слонов, а относительный – показатель церебрализации – значительно “прогрессивнее” у колибри, землероек, мышей, а среди приматов – например, у паукообразных обезьян и тамаринов. Ясно, что гигантский мозг гигантских китов занят в основном обслуживанием чувствительности и моторики, а “относительно гигантский” мозг землероек очень уж мал абсолютно. Таким образом, надо говорить о прогрессивности человека не по размерам мозга в целом, а по более существенным показателям – проценту новой коры или проценту ассоциативных нейронов. К сожалению, достоверно оценить их развитие в сравнительном аспекте очень трудно. Даже процент коры лобной доли, который, казалось бы, можно просто измерить в линейных размерах, площади или объеме, оценить можно по-разному. Так, по некоторым расчетам, человек не отличается по относительным размерам лобной доли от мартышкообразных; впрочем, другие исследователи эти выводы отвергают. Согласно самым точным оценкам, полученным путем томографического исследования мозга, человек по объему неокортекса, особенно в лобной доле, резко превосходит всех прочих приматов. У человека идеальное сочетание больших абсолютных размеров и больших относительных размеров мозга, хотя по каждому из этих показателей человек – не рекордсмен. Однако можно ли расценивать современного человека как прогрессивного в этом отношении?
Выше уже говорилось, что средний размер мозга мужчин неандертальцев и кроманьонцев превосходил величину современных мужчин. Объяснения приводились разные, но факт остается фактом: за последние пару десятков тысяч лет размер мозга довольно заметно уменьшился, так что его современную величину никак нельзя рассматривать как однозначно прогрессивную.
Крупный мозг трудно расценивать как прогрессивный орган и по причине его крайней энергоемкости: сложно представить, какие могут быть широкие эволюционные перспективы у такой особенности. Разум – это не приз в гонке, гораздо закономернее расценивать его как причудливую специализацию, вроде хобота слона или длинных ног тушканчика.
С большими размерами и энергозатратностью мозга человека связано увеличение синусной системы и количества питательных отверстий в костях черепа. Из-за изменения конфигурации затылка у современного человека сильнее изогнут сигмовидный синус, даже в сравнении с неандертальцами. Но все эти отличия второстепенны и не могут рассматриваться как прогрессивные на тех же основаниях, что и их первопричина – увеличение мозга.
Косвенно к изменениям нервной системы относится полное исчезновение вибрисс, имеющихся у шимпанзе. Вероятно, это связано с редукцией шерсти и, соответственно, увеличением чувствительности непосредственно кожи. Либо же выход в открытые местообитания вкупе с прямохождением вознесли лицо так высоко от всего, к чему вибриссы могли прикоснуться, что они просто стали бесполезны. Как бы то ни было, исчезновение органа и вида чувствительности вряд ли можно считать прогрессивной новацией.
Следующая богатая группа признаков связана с прямохождением. Сюда относятся, в частности, смещение большого затылочного отверстия на середину основания черепа, шейный и поясничный лордозы позвоночника – его изгибы вперед, короткий и широкий крестец, широкая и уплощенная спереди назад грудная клетка со сросшимся телом грудины, широкая низкая форма таза и его специфическая ориентация, продольный и поперечный своды стопы, консолидация стопы с нехватательным большим пальцем и редукцией других пальцев, латерализация стопы – усиление первой и пятой плюсневых костей, редукция волосяного покрова и усиление потоотделения. Насколько прогрессивны эти признаки? С медицинской точки зрения весь этот комплекс – сплошной регресс, поскольку сопровождается многочисленными нарушениями в функциях. Вертикальный позвоночник с лордозами чреват межпозвоночными грыжами и защемлениями нервов; поднявшееся сердце – варикозом вен ног; нестандартно повернутый таз – или ноги, нестандартно повернутые относительно таза, – вкупе с большой головой младенца приводят к большим проблемам при родах, выпадениям матки и прямой кишки; своды стопы норовят выпрямиться и достичь стабильности в плоскостопии; редукция шерсти с тоской вспоминается долгими зимними вечерами, а о повышенном потоотделении даже говорить страшно. Кроме всего этого, человек резко проигрывает в скорости передвижения всем животным аналогичного или большего размера и большинству – меньшего размера, включая, например, кошек. Выигрывает, впрочем, в выносливости, хотя верблюды могли бы поспорить.
С эволюционной точки зрения тоже не все однозначно. Поясничный лордоз есть у некоторых крупных горилл, у них же может срастаться тело грудины. Таз у афарского австралопитека “Люси” и всех известных архантропов был относительно ниже и шире, чем у современного человека, так что современное состояние можно расценивать как некоторый шаг обратно – к проконсулам. По степени консолидации стопы и редукции пальцев лошади, коровы и страусы на суше, а по степени латерализации – моржи с тюленями на море оставили нас далеко позади. Можно, конечно, говорить, что копыто лошади и ласта тюленя – тупиковая специализация, а у человека стопа благородно-прогрессивна, но в действительности человеку просто, видимо, не хватило десятка-другого миллионов лет до превращения стопы в идеальную точку опоры непарно– или парнокопытного образца. У всех наземных бегающих существ число пальцев со временем уменьшается, неясно, почему человек должен быть исключением. Впрочем, человек имеет культуру и предвосхитил слишком медленную эволюцию, создав себе искусственное копыто – ботинок. Однако даже в обуви человеку далеко до совершенства ноги копытных. Одновременно вихляющее устройство голеностопного сустава гарантирует вывихи даже на ровном месте. По большому же счету всем ясно, что гораздо надежнее вообще никуда не бежать, а прикрепиться к почве прочным стебельком и стать божьим одуванчиком – морские лилии обставили нас еще в ордовике.
Редукция шерсти типична для всех крупных наземных зверей саванны; в таком крайнем выражении, как у человека – с полным исчезновением пуховых волос, – она может расцениваться только как специализация, ограничивающая эволюционные возможности в будущем. Кроме того, число волос на квадратный сантиметр у человека такое же, как у шимпанзе, так что речь идет либо о редукции пуховых волос еще до появления человека, либо об именно видоспецифическом уменьшении размеров волос, но не их числа.
Двуногость в целом, конечно, послужила, казалось бы, необходимым условием для освобождения рук и трудовой деятельности, и этим плюсом все его минусы должны быть списаны. Однако, с одной стороны, многообразные двуногие динозавры, птицы, тушканчики и кенгуру являют пример того, что бипедия – недостаточное условие развития трудовой деятельности. С другой же стороны, вполне четвероногие обезьяны и даже еноты делают руками очень многое, а попугаи выполняют то же самое клювом. Шимпанзе могут пользоваться орудиями, используя четыре конечности – это куда как удобнее, чем двумя. Тонкость в том, что двуногость позволяет специализировать руку под орудийную деятельность, а обезьяньи кисти должны быть в первую очередь функциональными ходилками-цеплялками.
Тут мы переходим к следующей особенности человека – трудовой кисти. В ее комплексе особенно обращают на себя внимание противопоставление большого пальца с седловидным суставом первой пястной и кости-трапеции, широкая ладонь, а также сохранение всех пяти пальцев – прямых, длинных, подвижных, способных к точечному захвату, с расширенными и укороченными конечными фалангами. Прогрессивность такой кисти может быть поставлена под сомнение. С одной стороны, давно отмечено, что пятипалость – генерализованное (читай, примитивное) состояние. С другой стороны, у многих приматов кисть видоизменилась по сравнению с крысоподобным изначальным состоянием гораздо больше, чем у человека. Примеров множество – от потто и руконожек через паукообразных обезьян и колобусов до гиббонов, орангутанов, горилл и шимпанзе. Хватательная кисть – особенность всех приматов; можно в этой связи опять помянуть енотов и попугаев. Большой палец у потто противопоставляется гораздо противопоставленнее, чем у человека, что обусловлено, правда, редукцией указательного пальца. У некоторых неандертальцев большой палец противопоставлялся при плоском или шаровидном первом пястно-запястном суставе – обычно это расценивают как минус, вызывавший необходимость больших мышечных усилий и уменьшение точности движений, но наличие тонкой ретуши на некоторых мустьерских орудиях говорит само за себя, а с другой стороны – чем плоха сильная кисть? Крепкое мужское рукопожатие всегда предпочиталось вялому и безвольному, а уж кто-кто, а неандертальцы могли крепко пожать руку! У руконожки пальцы длиннее и подвижнее, чем у человека. У долгопята конечные фаланги пальцев не в пример шире и уплощеннее человеческих. Редукция большого пальца у древесных видов обезьян, конечно, всеми справедливо расценивается как специализация, но кисть гоминоидов, приспособленная к опоре на фаланги согнутых пальцев, однозначно ушла от варианта проконсула дальше, чем человеческая. Эксперименты показывают, что к точечному захвату способны даже макаки, хотя осуществляют его редко. Таким образом, кисть человека представляет мозаику многих примитивных и нескольких специализированных признаков, но прогрессивных – открывающих новые горизонты эволюции – в ней, возможно, вовсе нет.
Грацилизация черепа – прогрессивный признак, красной нитью проходящий по всему антропогенезу. Очевидно, ей – в совокупности со смещением сроков зарастания швов с детства на взрослый период жизни – мы обязаны большим мозгом. Однако малая толщина свода черепа типична для всех полуобезьян, широконосых, мартышкообразных и гиббонов. Древнейшие известные крупные человекообразные тоже часто имели малую или умеренную толщину свода; для проконсулов это типичное состояние; не слишком толсты кости свода у ранних австралопитеков и хабилисов. Правда, в эволюции приматов и человека были этапы значительного утолщения свода – понгиды, грацильные и массивные австралопитеки, эректусы, гейдельбергенсисы и палеоантропы отличаются большой толщиной костей. Таким образом, тонкие стенки костей свода в действительности не прогрессивный, а архаичный признак, несколько раз склонявшийся к специализации в виде утолщения, а потом снова возвращавшийся в исходное состояние. Ровно то же самое можно повторить о надбровном, теменном, височном и затылочном рельефе черепа. Ясно, что приматы с тонким черепом и слабым рельефом имеют обычно небольшие размеры, а человек попадает совсем в иную весовую категорию. Поэтому правильнее говорить не о грацилизации, а о возврате к архаичному варианту при увеличении размеров, что для приматов, конечно, необычно.
Действительно прогрессивным можно считать позднее зарастание швов черепа – эта особенность резко отличает человека от прочих приматов и даже всех млекопитающих. Одновременно она потенциально может привести к появлению новых вариантов строения – например, новых костей свода, что является необходимым элементом определения прогрессивности. Впрочем, кости основания черепа – височная, клиновидная, затылочная – у человека срастаются капитальнее, чем у многих млекопитающих, обеспечивая прочный фундамент для больших мозгов.
Один из самых заметных – по причине нахождения на лице – сапиентных признаков – подбородочный выступ. Много было написано о вероятных причинах его появления и значении; в популярной литературе стойко бытует утверждение о связи подбородка со способностью к речи. В некоторых книгах это утверждение приобретает чуть ли не мистический смысл. Связь на самом деле есть, но она косвенная. С ходом прогресса жить становилось все лучше, большие зубы были уже не нужны, они уменьшались. Но укоротить всю челюсть было нельзя, ведь к задней стороне подбородка крепятся мышцы подъязычного аппарата. Если бы они стали короткими, то подвижность гортани тоже уменьшилась бы и люди не смогли бы говорить. А говорить хотелось. Поэтому отбор продолжал укорачивать челюсть по верхнему краю, но оставил ее длинной по нижнему, отчего передняя часть нижнего края оказалась выступающей вперед в виде подбородочного выступа. Альтернативой было бы удлинение шеи (и оно действительно осуществилось), но при выросшем шибко умном мозге беспредельно вытягивать шею просто опасно – как бы голова не отвалилась. То есть подбородочный выступ – признак весьма второстепенный, не имеющий собственного эволюционного значения, кроме разве что участия в половом отборе уже после своего появления. Он появляется автоматически как побочный эффект необходимости говорить вкупе с редукцией зубов. Но такое же, если не большее, удаление подбородка и гортани достигается и без подбородочного выступа на длинной челюсти неандертальцев с крупными зубами. С другой стороны, можно вспомнить некоторых ископаемых рептилий, например Ulemica invisa, у которых тоже имелся немалый подбородочный выступ, не сделавший их при этом особо болтливыми (хотя кто знает, может, оттого они и вымерли? много болтали?..). Имеется подбородочный выступ и у мандрила. Кстати, редкие случаи отсутствия сего украшения у современных людей не приводят к потере способности к речи. Несущественность в видовом масштабе, впрочем, не снижает принципиальной важности волевого подбородка для генералов и голливудских суперменов.
Уменьшение размеров и даже числа зубов часто рассматривается как прогрессивная человеческая черта. Интересно, морда муравьеда фантастически прогрессивна или все же специализирована? Небольшие размеры клыков, не выступающих за уровень других зубов, и, соответственно, исчезновение межзубных промежутков-диастем – типичные черты гоминид. Однако процесс редукции клыков зашел гораздо дальше – вплоть до полного отсутствия – у многих копытных, а из приматов – у руконожки. Ясно, что гигантские – на уровне саблезубости – клыки некоторых ископаемых и современных павианов – это специализация. Отсутствие клыков у руконожки – тоже специализация. Но вопрос: где “золотая середина” – у мартышек или человека? Не слишком большие клыки мартышек могут уменьшаться, а могут и увеличиваться в дальнейшей эволюции. Клыки людей явно только уменьшаются последние 4 млн лет, а у некоторых людей уже встречается их врожденное отсутствие. Так где бóльшие эволюционные возможности? Можно, конечно, утверждать, что уменьшение клыков привело к усилению способностей к жестикуляции, мимике и речи, в компенсацию резко ослабившейся демонстративной устрашающей функции, а также к увеличению боковой подвижности челюстей с последствиями для типа питания и опять же речи, но это примерно то же, что утверждать, что исчезновение зубов у муравьеда прогрессивно, ибо привело к появлению новых способностей в высасывании термитов из термитников, а также к специфической форме защиты в виде размахивания когтистыми лапами. Функции-то появились, но куда они ведут в эволюционном плане?
Масса видоспецифических признаков сконцентрирована на височной кости: это размеры и форма чешуи, вертикальная и поперечная ориентация барабанной пластинки, ориентация и степень изгиба пирамид, большие размеры сосцевидного отростка, окостенение и удлинение шиловидного отростка, углубление нижнечелюстной ямки, увеличение предсуставного бугорка и позадисуставного отростка, а также другие тонкости. Хотя все эти особенности действительно позволяют более-менее надежно диагностировать виды, трудно сказать, насколько они прогрессивны в эволюционном смысле. С большой вероятностью большинство из них – например, ориентация барабанных пластинок и пирамид – меняются автоматически в связи с укорочением лица, изменением формы черепа и особенно его основания, но не имеют какого-либо глубинного адаптивного смысла. Косвенно об этом свидетельствует огромная изменчивость – межвидовая, хронологическая, популяционная, половая, возрастная и индивидуальная. Ярчайший пример – сосцевидный отросток. Он мал у обезьян, австралопитеков, неандертальцев, женщин и детей, но велик у гейдельбергенсисов, сапиенсов, мужчин и взрослых. Как можно рассуждать о нем в рамках примитивности – прогрессивности? Изменения области нижнечелюстной ямки, очевидно, связаны с ослаблением жевательной мускулатуры и необходимостью укрепить сустав механически, но это не свидетельствует об особой прогрессивности нашего варианта по сравнению с обезьяньим. У некоторых ископаемых гоминид встречались специфические особенности, которые обычно рассматриваются как специализации, например отсутствие позадисуставных отростков у людей из Нгандонга или крупная щель между барабанной пластинкой и сосцевидным отростком у них же и эректусов Сангирана. Почему же тогда прогрессивно вертикальное положение барабанной пластинки у сапиенса?
Кстати, о прогрессивном вывихе… Уменьшение человеческой нижней челюсти и жевательной мускулатуры вызвало необходимость укрепления височно-нижнечелюстного сустава. Скажем, у гориллы жевательные мышцы мощнейшие, они надежно притягивают нижнюю челюсть к черепу, она гарантированно не отвалится. Поэтому на височной кости суставная поверхность почти плоская, без особенных ограничителей по сторонам. У человека же слабенькие мускулы не могут обеспечить качественного прикрепления, посему нижнечелюстная ямка височной кости глубокая, сустав спереди огражден высоким предсуставным бугорком, а сзади – позадисуставным. При слишком большом открывании рта мыщелок нижней челюсти упирается в эти бугорки и движение прекращается. Беда же начинается, если ямка мелкая, бугорки невысокие, а мышца очень слабая. Особенно эта напасть типична для особо грацильных девушек, так как у них рельеф и мышцы по определению ослаблены: стоит такой чрезмерно эволюционно прогрессивной особе весело засмеяться или, не дай бог, зевнуть, как челюсть выскакивает из сустава и отваливается, закрыть рот уже невозможно. Это называется привычный вывих сустава. Но поскольку он привычный, то девушка скучающим движением с отчетливо слышимым щелчком рукой вставляет челюсть на место и продолжает смеяться или зевать. Такие вот издержки прогресса! У мужчин подобное бывает редко, ибо андрогены обеспечивают хорошее развитие мышц.Одна из особенностей височной кости – шиловидный отросток – очевидно, связана с речевым аппаратом. У негоминидных приматов, австралопитеков, хабилисов и эректусов на месте этого отростка обычно расположена ямка, у человека отросток может быть длинный и даже состоять из нескольких отдельных костяных палочек. На отросток крепится шилоподъязычная мышца гортани, а потому логично, что отросток связан со способностями к речи.
Кстати, о болтунах… Шилоподъязычная мышца тянет подъязычную кость и, соответственно, всю гортань вверх и вниз, участвуя в артикуляции речи. Вроде бы логично предположить, что шиловидный отросток височной кости будет развит сильнее у болтливых людей и останется махоньким пупырышком у молчунов. Однако размеры отростка прямо зависят от массивности мышц и косвенно – от размеров нижней челюсти, а потому у маленьких людей отросток может тоже быть небольшим, независимо от способности к речи. Даже напротив, легкие мышцы и челюсть способствуют большей скорости речи, что наглядно при сравнении мужчин и женщин – последние говорят в минуту больше слов, – а также разных групп современного человечества: кое-кто подсчитал, что французы тараторят по 350 слов в минуту, а полинезийцы едва выдавливают полсотни, тогда как разница между их челюстями более чем очевидна. Более того, если шиловидный отросток будет слишком большим или даже шилоподъязычная связка окостенеет почти полностью, то движения будут ограничены, а человек не сможет говорить. Все то же можно повторить о костных остях на задней стороне симфиза нижней челюсти. Таким образом, отростки и ости свидетельствуют о способности к речи в межвидовом масштабе, но не срабатывают в индивидуальных случаях.Другие особенности, так или иначе связанные с речевым аппаратом, – низкое положение гортани, сильный изгиб основания черепа и большой диаметр канала подъязычного нерва. Они резко выражены – видоспецифичны – именно у современного человека, но вопрос – увеличивают ли они эволюционную пластичность? Прогрессивен или специализирован увеличенный горловой мешок обезьян-ревунов или гиббонов-сиамангов? Сложные способности певчих птиц в области пения способствуют этологической изоляции и видообразованию, но у людей они скорее способствуют общению, взаимопониманию и взаимодействию со слиянием коллективов – вещам благородным в социальном плане, но уменьшающим изменчивость и потому специализированным в плане эволюционном.
Крайне показательно, что форма подъязычной кости, на коей покоится вся гортань и от которой, по логике, должны зависеть способности к речи, тем не менее слабо отличается у самых разных млекопитающих, включая человека, но при этом крайне изменчива индивидуально.
Последняя видоспецифическая человеческая черта, которую хотелось бы упомянуть, – короткие раздвоенные и сильно наклонные остистые отростки шейных позвонков. У обезьян и неандертальцев они мощные, длинные, с монолитными верхушками и направлены почти строго назад. При большой массе головы – с тяжелыми челюстями и жевательными мышцами, крупными зубами, толстыми костями черепа – мощная шейная мускулатура обезьян и неандертальцев, крепящаяся к остистым отросткам, разрывала бы эти отростки пополам, будь они такими же, как у современного человека. У человека же голова легкая, даром что мозгов много, а потому отростки могут сохранять в некоторой степени свою первичную эмбриональную раздвоенность. Прогрессивность данной черты сомнительна: куда она ведет, кроме так называемого “перелома землекопа”?
Кстати, о землекопах… Часть шейной и спинной мускулатуры крепится к остистым отросткам шейных позвонков. Например, там кончается полуостистая мышца шеи, распрямляющая верхнюю часть спины. Когда человек много и усиленно разгибается, скажем копая яму для фундамента или ставя мировой рекорд в угольном забое, мышцы перенапрягаются и – хрусть, пополам! – могут даже оторвать дугу или остистый отросток позвонка (Knüsel et al., 1996). Хорошо еще, если спинной мозг при этом не страдает. Конечно, после такого приходится отлеживаться, но диггерская профессия зовет, чары кирки и лопаты непреодолимы: после пары недель лечения человек отправляется обратно в шахту – до следующего стахановского успеха и нового перелома. Такова цена грацилизации. Читатель, отправляясь на дачу копать картошку, вспомни о судьбах предшественников и давай отдых спинным мышцам!Как упоминалось в начале этой главы, прогрессивными стоит считать признаки, открывающие новые перспективы эволюции. У человека же видоспецифические признаки либо являются генерализованными, а стало быть примитивными, либо специализированными. Истинно прогрессивным можно считать лишь позднее зарастание швов черепа. Совершенно закономерно это выражается в том факте, что видовое разнообразие гоминид никогда не было слишком значительным, а со времен австралопитеков всегда только уменьшалось. Сниженное видовое разнообразие – первый признак ограниченности перспектив эволюции. У человека же оно снижено до предела – даже у шимпанзе больше видов, хотя они частенько поминаются как реликтовые и тупиковые!
Настоящая глава, конечно, не призвана развить у читателей чувство неполноценности, но имеет целью вызвать некоторую задумчивость и, возможно, побудить несколько объективнее относиться к морфологическим и эволюционным фактам.
Мир глазами руконожки. Часть седьмая, немножко хулиганская, продолжающая линию части шестой, рассказывающая об изобилии вершин, о том, почему руконожка прогрессивней долгопята, долгопят – гориллы, а горилла – руконожки.
Часто эволюция живого мира излагается в виде пресловутой “лестницы существ” или же дерева с человеком на вершине. То есть, скажем, был Великий Предок пургаториус, потом линия-ствол все более и более продвинутых обезьян, по ходу которой ответвлялись боковые второ– и третьестепенные ветки всяких тупай, шерстокрылов, лемуров, широконосых, мартышковых, гиббонов, орангутанов, горилл и шимпанзе. Генеральная же линия включала, скажем, афарского австралопитека, а прямым итогом – аки звездой на новогодней елке – был-таки человек. На самом деле с точки зрения любого вида картина была иной. Ведь у любого примата (и даже вообще любого живого существа) была своя неповторимая родословная, сложились свои уникальные особенности; каждый является вершиной эволюции. В реальности картина эволюции представляет собой не дерево с ветвями, а бесчисленный лес параллельных стволов, тем не менее выходящих друг из друга. Нарисовать такой лес сложновато, но можно, по крайней мере, попробовать встать на точку зрения других живых существ. Как тогда будет выглядеть эволюция?
Глава 23. Мир глазами руконожки.
Несомненно, венцом эволюции живого мира является мадагаскарская руконожка ай-ай Daubentonia madagascariensis. Эволюция приматов (руконожкогенез) представляется так: около 65 млн лет назад жил Великий Предок пургаториус, далее от генеральной линии ответвлялись всякие малозначимые боковые ветви наподобие лемуров, широконосых и узконосых обезьян (внутри коих на общем фоне и не различишь человека), а через промежуточные звенья вроде Plesiopithecus teras эволюция достигла своего апогея – руконожки.
Да и как можно думать иначе? Это же очевидно! Взгляните на руконожку: ни у кого среди приматов нет столь уникального черепа, никто не обладает такими пальцами и хвостом. Передние резцы огромные и растут непрерывно. Клыки вовсе исчезли (тут руконожка давно и навсегда обогнала гоминид, столь гордящихся редуцированными клыками; “не выступающие за линию других зубов” – вот уж смешная формулировка, то ли дело, когда клыков вообще нет!), а на их месте зияет огромная диастема. Столь замечательная зубная система является лишь одним из элементов хитрой пищевой адаптации. Ночью руконожка идет по джунглям и простукивает трухлявые стволы чрезвычайно длинным и тонким средним пальцем кисти. При этом она внимательно прислушивается своими огромными ушами к эху, отдающемуся в ходах, прогрызенных личинками насекомых; подобной эхолокации нет ни у одного примата. Запеленговав личинку, ай-ай прогрызает дырочку своими замечательными резцами, а все тем же длинным пальцем выковыривает добычу из коряги. Кстати, сложность добывания пищи, видимо, сказалась и на развитии нервной системы: относительный размер мозга у руконожки – один из самых больших среди полуобезьян. Хотя особой гениальности за ней пока не замечено, но много ли мы вообще знаем об этом уникальном существе?..

Рис. 22. Руконожка, ее кисть и череп.
Специализации руконожки столь значительны, что первоначально ее вообще описали как грызуна. Потом долгое время она числилась в лемурах, но скорее по географической логике: всем известно, что на Мадагаскаре живут одни лемуры, стало быть, ай-ай тоже лемур. Но более объективно выделение руконожки в качестве самостоятельного инфраотряда. Прочие приматы однообразны и безыдейны на ее фоне.
Руконожки могут гордиться еще одним достижением: они до сих пор живы. Где апатемииды и Chiromyoides, имевшие такие же адаптации? Вымерли! Эти конкуренты обойдены в честной борьбе. Однако ж есть еще скрытая угроза в виде новогвинейских полосатых поссумов Dactylopsila: вдруг переплывут Индийский океан и захватят Мадагаскар? Но гораздо опаснее истинные враги прогресса, не дающие самим руконожкам захватить мир, – коварные дятлы. Не дай бог их черно-белые эскадрильи вторгнутся на чудный остров веерных пальм, тогда руконожкам может прийти конец…
Глава 24. Мир глазами шерстокрыла.
Руконожка замечательна, но можно взглянуть на ту же картину и иначе. С точки зрения шерстокрылов – филиппинского Cynocephalus volans и малайского Galeopterus variegatus, именно они венец эволюции. Дело было так: Великий Предок пургаториус дал генеральную линию, от которой, конечно, ответвлялись какие-то тупайи, лемуры и обезьяны, но все они в своем убожестве сливаются в неразличимую серую массу. На самом деле эволюция (шерстокрылогенез) через ряд промежуточных звеньев типа Ignacius graybullianus пришла к совершенству в лице шерстокрылов.
Никто из приматоморфов не достиг таких высот, как шерстокрыл! Какие руки, какие ноги, какая летательная перепонка между ними! Всем хочется летать, а шерстокрыл – может. Хотя он только парит, но, во-первых, может планировать до 140 метров, а во-вторых, способен нести полезный груз в виде, например, детеныша, прицепившегося на животе. Конечности и пальцы невероятно вытянуты, можно сказать изящны, позавидует любой пианист. На подошвах кистей и стоп есть особые присасывательные диски для прилипания к коре дерева при посадке-пристволении. На грудине даже развит небольшой киль, хоть и не столь мощный, как у летучих мышей и птиц, но зачем же вдаваться в крайности специализации. А зубы! – таких фестончатых наружных резцов нет больше ни у кого.
Конечно, жизнь шерстокрылов есть кому омрачить. Того и гляди, схватит филиппинская гарпия Pithecophaga jefferyi. Кстати, другое ее название – “обезьяноед”; умная птица, похоже, хорошо разбирается в систематике и склонна относить шерстокрылов к приматам. Кроме того, по тем же лесам планируют вечные соперники – гигантские белки-тагуаны Petaurista. Живут они на тех же деревьях, имеют схожие размеры и внешний вид, ведут тоже ночной образ жизни, питаются частично той же пищей, так что вообще не очень понятно, как до сих пор они уживаются с шерстокрылами. Очевидно, все же диета совпадает не абсолютно.
На самом деле, у шерстокрылов есть гораздо более успешные противники – зловещие крыланы, например Megaerops. У них-то диета совпадает с шерстокрыльей почти абсолютно; они тоже ночные и входят в близкую весовую категорию. Но они умеют летать по-настоящему, а значит – быстрее находят плоды. Вероятно, именно появление летучих мышей стало в свое время причиной вымирания бывших некогда разнообразными и широкораспространенными шерстокрылов. Два вида еще держат последние рубежи, но долго ли им будет это удаваться?..
Глава 25. Мир глазами долгопята.
Акаков мир глазами долгопята Tarsius? Вне всяких сомнений, именно этот пучеглазый эльф венчает животное царство! Эволюция приматов (тарзиогенез) выглядела так: Великий Предок пургаториус основал генеральную линию развития (стоит ли упоминать несущественные – либо несусветно примитивные, либо невозможно аберрантные – боковые ветви, среди коих лемуры, широконосые и узконосые обезьяны оказываются безликой толпой), составленную знатной плеядой достойных предков типа Necrolemur antiquus с закономерным итогом в виде долгопята.
И разве это не очевидно? У долгопята что ни признак – то эксклюзив. Глаза занимают больше половины лица, а по объему больше головного мозга – таких выразительных нет больше ни у кого среди приматов! Правда, при таких размерах глазá уже невозможно вращать в глазницах – слабеньким мышцам не хватает сил и размаха, зато долгопят может вертеть головой на 180°. Такой способностью не обладает ни одно млекопитающее! Челюсти и зубешки махонькие – куда там человеку с его гордыми мыслями о редукции жевательного аппарата. Поскольку зверюшка размером с ладонь, то крошечные пальчики уже не могут обхватить большинство веток, но не беда – в компенсацию на кончиках пальцев, ладошках и стопах развились присоски, а ногти стали остренькими когтевидными цеплялками.
Долгопят мал, да удал – он свирепый хищник. Люди часто склонны утверждать, что они – самые хищные приматы. Ан нет! Ни один самый мясоедский эскимос и огнеземелец в подметки не годится долгопяту по части плотоядности. Долгопяты отлично слышат, мастерски находят насекомых во тьме, стремительно и бесстрашно бросаются они на жертву размером в половину себя, хватая ее руками. Еще и по этой причине концы пальцев оказались куда как более расширенными, чем у человека с его трудовой кистью. Чтобы совершать роковые прыжки, долгопяты обладают цевкой, сделанной из крайне удлиненных пяточной и ладьевидной костей. Малая и большая берцовая кости у них срослись, причем миллионы лет назад. Человек, если не вымрет, тоже обречен на подобное срастание и редукцию малой берцовой кости, но у него это в сомнительном и туманном будущем, а предки долгопята решили эту проблему еще в эоцене. Если измерять длину прыжка в пропорции к размерам тела, то посрамленные человеческие олимпийские чемпионы должны сгореть со стыда и с горя податься в дворники, ибо у них нет ни малейших шансов превзойти долгопята, который при габаритах 10 см скачет на несколько метров, тем более безо всякого разбега.
А хвост – это ж просто чудо какой хвост! Длинный, тонкий, с изящной кисточкой на конце – идеальный балансир. Долго еще можно петь оду истинному венцу эволюции. Но, думаю, уже ясно – подобное совершенство высится над прочими приматами, как Эверест над кочкой.
Впрочем, жизнь долгопятов, сколь это ни прискорбно, тоже небезоблачна. Она омрачена существованием разнообразных супостатов на земле и над землей. Некоторые из них даже красивы – скажем, райские мухоловки Terpsiphone paradisi и варакушки Luscinia svecica: эти отнимают у долгопятов пищу на ветвях. Некоторые безлики – например, белозубки Suncus и Crocidura: они не пускают долгопятов на землю. Третьи же страшны – примером может служить суматранский филин Bubo sumatranus: такие могут и сами запросто съесть бедного маленького долгопятика.
Глава 26. Мир глазами мандрила.
Иным предстает мир, на который гордо взирают мандрилы Mandrillus leucophaeus и Mandrillus sphinx. Им ясно, что эволюция приматов (мандрилогенез) началась с Великого Предка пургаториуса, давшего ряд замечательных предков типа Victoriapithecus macinnesi. Боковые ветви типа лемуров, широконосых и человекообразных (где там человек, где гиббон – кто ж их, человекообразных, разберет, все они на одно лицо) блекнут на фоне действительно значимой эволюционной вершины – мандрила.
Ясно, что мир изначально вертелся для того, чтобы его населили мандрилы. Для начала, мандрил красив. Это самый красивый примат (а отбросив ложную скромность – вообще самый красивый зверь). Какая расцветка морды, да не простая, а усиленная рельефными кожными валиками, какая палитра зада! Какая грива – обзавидуется и лев! Она не только со вкусом раскрашена, но и изысканно причесана от природы, а не сваляна космами, как у некоторых. Это вам не бессмысленные патлы двуногих. В сложении мандрила удивительно сочетаются мощь и грация, сила и стройность. Мандрил не так безобиден – ведь это саблезубая обезьяна. Клыки самцов могут выступать за край нижней челюсти. И что за дело, что люди считают эволюционно прогрессивными маленькие клыки, ведь по модулю изменение размеров клыков, начиная от общего предка, у мандрилов гораздо сильнее, чем у гоминид. А бóльшие изменения – это больший прогресс. Огромные клыки – гарантия защиты от хищников. Конечно, леопард без особых проблем справится с одним мандрилом, но мандрилы не живут поодиночке. А против толпы орущих оскаленных обезьян, у каждой из которых клыки больше, чем у самого леопарда, уже лезть как-то не очень хочется. Поэтому мандрилы и их родственники павианы успешно живут в окружении злых и смертельно опасных хищников. Конечно, приходится существовать на постоянном осадном положении; законы военного времени работают тут всегда. Поэтому мандрилы и павианы имеют самую иерархичную систему из всех существующих среди приматов. Это отражается даже в построении отряда на марше. Со стороны невнимательному наблюдателю такое стадо может показаться беспорядочной толпой, но если разобраться, кто есть кто, то павианы идут фактически немецкой “свиньей”: авангард и арьегард составляют молодые самцы, а старые самцы с вожаком во главе окружают самок с детенышами, идущих в центре.
Власть альфа-самца практически безгранична. В группе мандрилов и павианов не место вредным мыслям о революциях, конституциях и таких сомнительных явлениях, как феминизм. Идеалы – в лучших традициях “Домостроя”, военно-диктаторских режимов и романа “1984”. Насколько такая система упрощает жизнь! Каждый знает свое место, начальник решает за всех, в обществе царит порядок и стабильность. Все попытки нарушить гармонию однозначно пресекаются устрашающим оскалом вожака. Кстати, несмотря на иногда бурные проявления чувств, контактная агрессия в группах и между группами мандрилов в природе случается редко, обычно все ограничивается демонстрациями силы. Впрочем, субординацию в таком строгом обществе соблюдать необходимо, нарушители “табели о рангах” сурово караются, неспроста едва ли не основной причиной смерти самцов павианов являются убийства отнюдь не леопардами, а другими павианами.
Мандрилы и павианы достигли своего идеала еще в плиоцене. Их план строения практически не поменялся за последние несколько миллионов лет, да и зачем? Они достигли совершенства – освоили леса и саванну, расселились по всей Африке и даже за ее пределы. Разве могут суетные гоминиды со своими морфологическими метаниями и экологическим экстремизмом сравниться со взвешенной стабильностью мандрилов?
Глава 27. Мир глазами гориллы.
Спокойна за свой статус вершины эволюции горилла Gorilla gorilla. Великий Предок пургаториус… Ну, вы уже все поняли, терпеливый Читатель. Chororapithecus abyssinicus был одним из немногих ископаемых приматов, достойных упоминания в курсе гориллогенеза.
Горилла – несомненный чемпион. Она огромна (были, правда, некогда гигантопитеки, но где они теперь?), у нее громадные ручищи и железные мышцы. Как написал М. Ф. Нестурх: “Горилла обладает нечеловеческой силой!” Даже не самая крупная самка гориллы со смехом одной левой поборет олимпийца-человека. Показателен случай, произошедший в одном зоопарке. Там в клетке много лет жил самец гориллы. Однажды уборщик оставил рядом с клеткой метлу. Гориллу очень хотелось поиграть ей, но он никак не мог дотянуться через решетку. Тогда он раздвинул прутья, вышел, взял вожделенную игрушку, вернулся назад и не забыл загнуть прутья на место. И только тут работники зоопарка поняли, что все эти годы горилл сидел в клетке вполне добровольно…
Невероятная мощь короля джунглей сказывается в каждой детали его строения: здоровенные кости с гребнями для прикрепления мышц, сросшаяся грудина, поясничный лордоз (где вы, сказки двуногих о комплексе прямохождения?), широченная кисть с толстенными фалангами. Череп самцов увенчан сагиттальным гребнем для жевательных мышц, огромные челюсти украшены мощными клыками.
Горилле не страшен ни один враг в родном лесу. Леопарды могут изредка нападать на детенышей горилл, но когда рядом пасется хмурое двухметровое чудище с седой спиной, вкусы как-то сами собой склоняются к антилопам и лесным свиньям. Пребывая в родной стихии, горилла является идеальным воплощением тезиса “сила есть – ума не надо”, но разве это проблема? С другой стороны, в неволе гориллы оказываются едва ли не самыми интеллектуальными животными, в этом им помогает уравновешенность, недоступная вздорным шимпанзе. Размер мозга гориллы вплотную приближается к наименьшим величинам у современного человека и превосходит австралопитековые значения. Коэффициент интеллекта знаменитой гориллы Коко – 75–95, тогда как у людей умственная отсталость отсчитывается со значений ниже 70.
Все бы ничего, жить бы да жить гориллам спокойно миллионы лет, умиротворенно жуя банановые листья, но и на их горизонте ходят тучи. Речь, конечно, не о таких смехотворных конкурентах, как леопарды и бодибилдеры. Перенаселение в Африке и вообще в мире фатально сокращает площади, на которых могли бы жить лесные гиганты. Даже в центрах заповедников масштабно вырубаются деревья, вереницы женщин тащат дрова в деревни, холмы, на которых в зарослях должны пастись гориллы, оголяются и покрываются сельскохозяйственными посадками. Наконец, браконьеры, несмотря на формальные запреты, десятками уничтожают таких больших и таких беззащитных перед ружьями и проволочными петлями горилл. Будет ли будущее у властителей джунглей?..
Глава 28. Мир глазами…
Много еще есть точек зрения, без числа вершин эволюции. Можно часами рассказывать о них.
Перохвостую тупайю Ptilocercus lowii не перепьет ни один калдырь. Галаго Galago – бешеная чебурашка – скачет на двух ногах по ветвям, подобно хищному древесному тушканчику. Потто Perodicticus не может так быстро умчаться от врага, поэтому при опасности сворачивается в пушистый шар и выставляет шипы на загривке – увеличенные остистые отростки последних шейных и первых грудных позвонков, выступающие из-под кожи. Вроде и не так ужасно, и мягкий бочок беззащитен, но на удивление действенно, судя по тому, что всех потто пока не съели. Этот же зверь обладает уникальной формой кисти и стопы, с редуцированным указательным пальцем и сросшимися в цепкую клешню остальными.
Медленный лори Nycticebus оказался одним из семи известных ядовитых млекопитающих. Его яд (производное запахового сигнального вещества) выделяется на внутренней стороне плеч повыше локтя и становится особо действенным в сочетании со слюной. Зверек втирает отраву себе в шерсть и держит в слюне во рту, причем яд, будучи сильнейшим аллергеном, может убить даже человека. При опасности лори начинает раскачиваться и шипеть, обхватив голову руками, изображая очковую кобру, чему способствуют круги вокруг глаз и темная полоса вдоль спины (Nekaris et al., 2013). Кстати, несмотря на неизбывно-печальный и умоляюще-жалостный вид, лори – невероятно злобные и кровожадные монстры. Если посадить в клетку двух самцов, наутро в ней окажется только один, от второго же останутся в лучшем случае клочки шкурки.
Жирохвостые лемуры Cheirogaleus – единственные приматы, впадающие в спячку. Они делают это в сухой сезон, когда в мадагаскарском лесу нечего есть. Чтобы не пропасть с голоду, они запасают жир в своем хвосте; в тропиках накапливать подкожный жир по всему телу было бы непредусмотрительно, а в хвосте ничего не перегреется. Мышиные лемуры Microcebus, во-первых, одни из самых маленьких приматов, а во-вторых, питаются в значительной степени нектаром цветов.
Игрунки Callithrix и тамарины Saguinus имеют столько замечательных свойств, что впору писать о них отдельную книгу. Например, их социальная система подобна муравьиной, пчелиной или термитовой: в группе размножается только одна самка, а остальные – “рабочие особи”. Конечно, они не строят муравейники, но жизнь в группе повышает выживаемость детенышей. Среди млекопитающих подобная система есть еще только у голых землекопов – африканских подземных грызунов. Также у игрунок практически всегда рождается двойня. Сразу после родов близнецов забирает самец, сажает их себе на спину и носится с ними как с писаной торбой. Маме он их отдает только для кормления, а сразу после ревниво отбирает назад. Это почти единственный пример столь ответственной отцовской заботы среди млекопитающих. Подобного уровня достигают вообще немногие животные: морские коньки и колюшки, пингвины и страусы. Морфологические особенности игрунок на этом фоне уже не выглядят такими уж специфическими: третьих моляров нет (тут игрунки обогнали гоминид на миллионы лет, ведь у человека третьи моляры – “зубы мудрости” – сейчас находятся как раз в активной фазе исчезновения); размеры тела самые мелкие среди приматов – даже меньше мышиных лемуров; ручки крошечные и практически не могут обхватить ветки, отчего большой палец перестал противопоставляться, а ногти стали когтеподобными. Относительный объем мозга игрунок намного больше человеческого и не беда, что мал абсолютно, ведь общительность этих лесных эльфов столь развита, что они умудряются кооперироваться даже с представителями других видов, включая носух и попугаев. Еноты лучше нюхают, попугаи – слышат, обезьяны – соображают, а вместе защищены от хищников: кто-нибудь да засечет подкрадывающуюся онциллу или оцелота.
Другие широконосые обезьяны обладают собственными достоинствами: мирикини Aotus единственные из обезьян ведут ночной образ жизни – куда до них нашим полуночникам; паукообразные и шерстистые обезьяны Ateles, Brachyteles и Lagothrix обладают пятой конечностью – невероятно цепким и ловким хвостом, на кистях же большой палец укорачивается, а остальные образуют цепкий крюк; ревуны Alouatta способны реветь так, что их слышно за несколько километров (как минимум за три, но многие утверждают, что и за пять-шесть или даже шестнадцать), для чего подъязычная кость преобразовалась в костный ковш, поддерживающий огромный горловой мешок.
Масса замечательных вершин эволюции среди мартышкообразных: носачи Nasalis уникальны своим клоунским носом; немейские тонкотелы Pygathrix nemaeus чрезвычайно красивы разноцветьем, а колобусы Colobus – черно-белым нарядом с мантией и богатой кистью на хвосте, а также знамениты крайним укорочением большого пальца и слиянием прочих; тонкотелые в целом замечательны крайней специализацией к листоядности, причем часто они едят ядовитые листья, для переваривания которых имеют многокамерный желудок, в особой трубчатой камере которого живут симбиотические бактерии, разлагающие клетчатку и нейтрализующие яд, а в нижней выделяется собственно желудочный сок с соляной кислотой; мартышки-гусары Erythrocebus patas живут в саванне и быстро бегают подобно газелям; тибетские Macaca thibetana и японские макаки Macaca fuscata способны зимовать при хорошо отрицательных температурах с глубоким снегом.
Гораздо ближе к человеку гиббоны. Сиаманги Hylobates (Symphalangus) syndactylus имеют горловые мешки подобно ревунам (только у ревунов горло покрыто бородой, а у сиамангов надувается голый пузырь), но могут не просто орать, а по-настоящему петь. Их песни разносятся за три-четыре километра. Как и другие гиббоны, для этого они всей семьей по утрам забираются на вершину самого выдающегося дерева в округе и оттуда поют. Кроме того, гиббоны – самые выдающиеся брахиаторы: они могут нестись по ветвям, цепляясь за них только руками, причем их скорость равна скорости не слишком быстро летящей птицы.
Перечисление достоинств бесчисленных вершин эволюции можно продолжать сколько угодно. Причем необязательно ограничиваться приматами – чем хуже раффлезии, рыбы-прилипалы или муравьеды? Но думается, Читатель уже проникся главной мыслью: да, человек уникален, таких двуногих и умных на всем белом свете больше не сыскать, но не сыскать и второго африканского страуса, второго комодского варана, вторую комаровку. Если уж некое существо появилось и, более того, дожило до современности, то оно совершенно и достойно называться истинной вершиной эволюции.
Альтернативные пути развития разума. Часть восьмая, совсем хулиганская, где Автор вырывается на вольные просторы фантазии и с развевающейся бородой и взором горящим грезит о несбывшихся парачеловечествах – гигантопитечествах, ореопитечествах и неандерталечествах.
Все же, что бы ни говорилось в предыдущей главе, многие и многие возразят: “Подумаешь – зубы, хвосты… Главное – мозг!” Разум безмерно возвышает нас над руконожками и мандрилами, даже хваленые умные-разумные гориллы и шимпанзе по-прежнему остаются обезьянами, скачут по лесам, жуют бананы и не задаются высокими материями. Ведь и сия книга написана отнюдь не муравьедом, а читают ее не илистые прыгуны. Это – неоспоримый факт.
Однако был ли разум столь уникален в прошлом? Могло ли развиться параллельное человечество на другой основе?
Канадские палеонтологи рассчитали, что мелкие позднемеловые тероподы Troodon inequalis (Stenonychosaurus по старой классификации) имели коэффициент энцефализации в шесть раз больший, чем у других динозавров. Если бы их не скосило всеобщее вымирание, то даже при прежних темпах эволюции – без всяких ускорений – сейчас они имели бы размер мозга 1100 см³ и оказались бы вполне разумными (Russell et Séguin, 1982). Теплокровность, двуногость, сложный способ добывания пищи и хватательная кисть, хотя бы и трехпалая, – хорошие зачины для поумнения.
Но динозавры – слишком давняя и слишком фантастичная история. Гораздо больше примеров альтернативного разума предоставляют разнообразные приматы.
Среди изобилия ископаемых приматов есть несколько кандидатов, которые при более удачном для них стечении обстоятельств вполне могли стать истинно разумными.
Глава 29. Орангутаны и их предки.
Вмиоцене Пакистан и Северную Индию населяли сивапитеки Sivapithecus. Судя по всему, они были предками орангутанов или очень близкой к ним линией развития. Родственные обезьяны жили также в Китае – Lufengpithecus – и Таиланде – Khoratpithecus. Размер их мозга, общее строение и образ жизни принципиально не отличались от того, что известно для африканских гоминоидов того же времени. Потенциально орангоподобные обезьяны вполне могли бы эволюционировать в собственное парачеловечество. Современные орангутаны не глупее шимпанзе, а благодаря уравновешенности и большей миролюбивости могут обучаться даже лучше наших ближайших родственников. Однако азиатских обезьян подвела география: Южная и Юго-Восточная Азия представляют собой длинные выступы, со всех сторон омываемые морями. Высокие горы своими вершинами ловят несущиеся из океанских далей тучи, обильные дожди исправно орошают склоны и долины, богатейшие тропические леса покрывают весь ландшафт от хребтов до побережий. Даже в эпохи похолоданий и осушений здесь почти ничего не менялось, азиатские джунгли сохранялись тогда, когда обе Америки, Европа и Африка покрывались степями, саваннами, а то и пустынями. Неспроста именно в Азии ныне сохранились реликтовые осколки прошлого приматов – тупайи, шерстокрылы, лори и долгопяты.
У сивапитеков и их родственников, похоже, не было никакой особой необходимости менять миллионами лет отработанный образ жизни. Когда же ряд плейстоценовых оледенений все же создал посреди Сунды (слитых Малакки и Индонезии) широкий коридор саванн (Bird et al., 2005), то у орангутанов уже не было особых шансов его освоить. Из Африки по степной полосе уже бежали архантропы. Они уже имели достаточно развитые орудия труда, умели использовать огонь, превосходно охотились. Если азиатские обезьяны и делали робкие попытки выхода в открытую местность, то питекантропы быстро загнали их обратно в леса. Вероятно, в немалой степени питекантропы и их последователи ответственны за вымирание большинства поздних азиатских человекообразных, в том числе нескольких видов и подвидов орангутанов, гигантопитеков, позднейших люфенгпитеков и таких малоизвестных существ, как лангсония.
Печальная участь современных орангутанов показывает, что, несмотря на впечатляющую внешность, эти животные весьма уязвимы. Нынешние орангутаны в природе ведут практически одиночный образ жизни и крайне мало общаются между собой. Однако, когда их сселяют в заповедники и обезьяньи реабилитационные центры, они начинают демонстрировать необычно богатые способы общения. Очевидно, социальная структура орангутанов нарушена совсем недавно (на равнинном Калимантане, больше освоенном людьми, в большей степени; на гористой Суматре, где не на каждой горе можно устроить поля, – в меньшей). Все задатки разумности у рыжих “лесных людей” имеются.
Глава 30. Гигантопитеки.
Близок к сивапитекам самый большой в истории примат Gigantopithecus из Южной и Юго-Восточной Азии – Южного Китая, Вьетнама, Таиланда, Индонезии, Пакистана и Индии. Гигантопитеки ответвились от рамапитековых приматов около 9 млн, а вымерли лишь около 300 или даже 100 тыс. лет назад, не менее 900 тыс. лет просуществовав бок о бок с питекантропами и их потомками. Гигантопитеки известны почти исключительно по зубам, которых, впрочем, обнаружена уже пара тысяч. Кроме зубов, найдены пять обломков нижних челюстей – три из Китая, один из Индии и один с Явы (в литературе иногда упоминается еще конец плечевой кости из китайского уезда Цзяньпин, но отнесение его именно к гигантопитекам весьма спорно).
Не только коренные и предкоренные зубы гигантопитеков, но и их клыки служили для перетирания растений. Их зубы очень часто поражены кариесом, как, кстати, и у панд. Очевидно, гигантопитеки были огромными и исключительно растительноядными приматами, в своем роде азиатским аналогом гориллы, но ушедшим гораздо дальше по пути специализации.
Примечательно, что останки гигантопитеков иногда встречаются в одних слоях с останками древних людей. Впрочем, не менее часто они обнаруживаются в слоях, не содержащих признаков присутствия человека. В этом случае внимание привлекает тот факт, что пещеры с этими слоями иногда расположены на весьма труднодоступных склонах крайне крутых гор, но тем не менее в пещерных отложениях найдены многочисленные кости копытных животных, которые явно не забрались туда сами. Логичным выглядит предположение о том, что гигантопитеки могли охотиться на разных зверей. Это противоречит строению зубов, но ведь и шимпанзе, судя по зубам, охотиться вроде как не должны. Даже орангутаны замечены за ловлей медленных лори (почему-то только самки; самцы же – истинные вегетарианцы: Hardus et al., 2012) и рыб.
Более того, китайские археологи в свое время демонстрировали огромные каменные рубила, обнаруженные в слоях с зубами гигантопитеков. В руке их держать неудобно, а размеры руки у питекантропов и прочих древних людей были не больше, а то и меньше наших. Не орудия ли это гигантопитеков? Впрочем, научных публикаций по этим огромным орудиям так и не было, так что само их существование сомнительно.
Челюсти и зубы гигантопитеков были в полтора-два раза больше, чем у современных горилл, так что размеры черепа и тела должны были быть просто огромными. Конечно, не факт, что пропорции челюстей и тела у гигантопитеков были горилльские, но рост в два-три, а то и четыре метра – вполне достоверная для них величина. Хотя остатки черепной коробки гигантопитеков доселе не попали в руки антропологов, по размерам челюстей можно предположить, что объем мозга у этих обезьян должен был быть заметно больше, чем у гориллы. А ведь максимальный размер мозга гориллы превосходит минимальный нормальный размер мозга человека! Стало быть, у гигантопитеков средний размер мозга должен быть примерно в пределах значений питекантропов. Это, конечно, не гарантирует большого интеллекта (особенно с учетом грандиозных размеров тела), но все же размер имеет значение! Не исключено, что гигантопитеки – очередной нереализовавшийся путь гоминизации.
Минутка фантазии. Представим на минутку, какую бы цивилизацию могли бы создать гигантопитеки, продлись их изоляция еще подольше. Скажем, если бы люди по некой причине не добрались до Азии – скажем, Гималаи доходили бы до Индийского океана с одной стороны и до сибирской тундры – с другой. Наземный образ жизни и питание бамбуком располагает к прямохождению и использованию рук как рук, а не ног. Даже панды активно перебирают передними лапами ветви бамбука, а гигантопитекам сам отбор велел! Выход в саванны был бы облегчен уже имеющейся наземностью и защищенностью от хищников, переход к питанию мясом неудивителен для крупного примата (вон панды – перешли же от мяса к бамбуку, почему бы гигантопитекам не сделать наоборот?), а отсюда и до орудийной деятельности недалеко. И вот из гигантопитеков возникают гигантропы – трех-четырехметровые разумные полувегетарианцы, не гнушающиеся мясом (особенно женщины, ведь, как уже говорилось выше, у их ближайших родственников суматранских орангутанов охотятся только самки), но предпочитающие в качестве гарнира бамбук любому укропу и кресс-салату. Родство с орангутанами, огромные размеры и азиатские флюиды способствуют гармоничности и доброте гигантропов. Они мало спорят, все проблемы улаживают посиделками, а в крайнем случае просто вколачивают противника кулаком в землю – и все дела, без всяких зверств. Гигантропы склонны к философии и изящным наукам, они быстро постигают дао, изобретают письменность, мудрые книги из бамбуковых дощечек заполняют библиотеки. Дивны сооружения гигантропов: сказочная силища позволяет им ворочать мегалиты на зависть египтянам и ацтекам. Куда там пирамидам и стоунхенджам! Ангкор-Ват – хутор средних размеров для властелинов Азии. Гигантропы изобретают земледелие; долины и горы Индокитая и Китая покрываются плантациями сортового бамбука, особо сочного и быстрорастущего. Огромный размер гигантропов способствует успешному освоению северных широт, отважные первопроходцы преодолевают Берингию и заселяют обе Америки. Гигантские ленивцы и броненосцы приручаются ими в качестве домашнего скота и верховых животных. Эх, какой сюжет для фэнтези! Где вы, писатели и графоманы?! Полмира – за гигантропами, полмира – за сапиенсами, своим ходом параллельно возникшими в Африке и уже освоившими Европу. И вот не то гигантропы преодолевают Гималаи, не то сапиенсы доплывают по морю до владений исполинов, но две цивилизации находят друг друга! Встреча неандертальцев и кроманьонцев блекнет на фоне эпичного контакта людей и гигантропов. Гигантропы в недоумении: как такая раса карликов с крошечным мозгом (у самих-то ведро мозгов!) смогла достичь столь многого? Сапиенсы тоже в оторопи: они-то думали, что мир принадлежит им, стоит его только открыть, а тут некие огромадные чудища с неясными намерениями и бамбуком между зубами. Гигантропы склонны к самоизоляции, им не надо чужого, они задумывают отгородиться кроме Гималаев еще и циклопической стеной вдоль побережья, благо навыки строительства у них выдающиеся. Сапиенсы разворачивают очерняющую пропагандистскую войну (на настоящую поначалу они не отваживаются), в которой центральное место занимает образ Кали, в котором сосредотачиваются все мрачные стороны без единого положительного свойства. Упор делается на изображении женщин гигантропов как особо злобных, хищных существ, враждебных всему живому… Каков итог этой истории? Возможно, мы узнаем его от кого-нибудь из читателей…Препятствием для “параочеловечивания” гигантопитеков явилась, видимо, специализация к растительноядности и гигантские размеры тела. У столь огромных зверей не может быть природных врагов. А безопасность расслабляет, не дает стимулов для развития интеллекта. Неспроста гориллы при большем мозге никогда не используют орудий труда, тогда как гораздо более мелкие шимпанзе делают это довольно часто. Та же расслабленность и врожденное чувство безопасности, наверняка присущие гигантопитекам как одним из самых могучих зверей своего времени, привели их к вымиранию. Древние люди, пришедшие в Азию с копьями и факелами, не могли не оценить гигантопитеков как гору мяса, хотя, конечно, охотиться на таких громадных зверей наверняка было не так уж просто. Но люди к тому времени уже были отличными охотниками, так что гигантопитеки, вероятно, пали жертвой гастрономических вкусов питекантропов и их потомков.
Конечно, не исключено, что и климатические причины сыграли заметную роль, но климат в Южной Азии за последние сотни тысяч лет менялся, кажется, не столь принципиально, чтобы это привело к вымиранию гигантопитеков. Впрочем, совпадение по времени сокращения в численности гигантопитеков в Азии и вымирания массивных австралопитеков в Африке – около 0,9–1 млн лет назад – не может не насторожить. Вероятно, осушение климата, смена преобладающей растительности и усилившаяся конкуренция с копытными и грызунами фатально сказались на благополучии крупных человекообразных.
Выдвигалась даже версия, согласно которой гигантопитеки питались преимущественно бамбуком и, таким образом, их численность могла периодически резко падать во время цветения этой травы. Ведь бамбук цветет хоть и редко, но сразу весь, а потом обязательно гибнет – все бескрайние леса разом высыхают. Кроме того, предполагалась даже конкуренция не на жизнь, а на смерть с пандами, хотя лично мне крайне трудно представить, как она могла реализоваться на практике.
Гигантопитеки по-своему боролись с судьбой: у самых распоследних из них обнаружены некоторые специализации в строении зубов (Zhang et al., 2014); однако фатум был неумолим – огромные обезьяны исчезли.
Бамбук или не бамбук – вот в чем меню… Гигантопитеки – исполинские обезьяны, миллионы лет бродившие по лесам Юго-Восточной Азии, но исчезнувшие 380 тыс. лет назад или несколько позже. С момента их открытия в 1935 г. образ огромного гоминоида будоражит умы как профессиональных палеонтологов, так и нормальных людей. Таинственности добавляет странная тафономическая карма: найдены уже сотни зубов гигантопитеков, но только пять обломанных нижних челюстей – и ни одного черепа. Судьба азиатских кинг-конгов всегда была предметом бурных фантазий. Может, они эволюционировали в современных людей? Может, их потомки до сих пор бегают по Гималаям, Таймыру и Аляске в виде йети и сасквачей? Может, их истребили питекантропы? А может, в их вымирании виноваты гигантские панды – мощнейшие конкуренты в сложном деле промышленного пожирания бамбука? Как узнать правду, имея в распоряжении лишь мешок зубов? Но на то и мощь науки XXI века, чтобы невозможное делать возможным! Группа немецких специалистов при мощной поддержке французского палеоприматолога произвела исследование диеты древних исполинов (Bocherens et al., 2016). Были задействованы многочисленные зубы гигантопитеков из Таиланда и Китая, гигантских панд (в древности и панды были гигантскими!), а также множества прочих ископаемых и современных животных, включая орангутанов, тапиров, носорогов и слонов-стегодонов. Выяснилось, что гигантопитеки ели примерно то же самое, что современные орангутаны. Несколько неожиданным оказалось, что диета гигантопитеков включала весьма широкий спектр пищи. Ранее многие антропологи предполагали, что они были специализированными животными. На основании необычайного сходства зубов гигантопитеков и гигантских панд неоднократно звучало, что огромные обезьяны были бамбукоедами, этакими монстрическими жевалками-утилизаторами. Ан нет! Теперь ясно, что именно непривередливость позволила гигантопитекам миллионы лет жить от Индии до Явы. С другой стороны, приверженность именно лесной пище могла свести огромных обезьян в могилу. Если в Южном Китае лесов все-таки хватало, то в Таиланде им приходилось ютиться в перелесках, росших между обширными саваннами. Но даже когда плейстоценовые гиганты жили в окружении равнин, они старались питаться дарами джунглей. Поэтому, когда участившиеся похолодания еще больше сократили площадь лесов, возможности отстали от гаргантюанских потребностей, дебет разошелся с кредитом и гигантопитеки вымерли. Вот такая вырисовывается картина. Есть, конечно, маленькое ехидное но! Если диета гигантопитеков была почти неотличимой от орангутаньей, значит ли это, что гигантопитеки умели лазать по деревьям? Ведь обычно их вес реконструируется как значительно превосходящий двести килограммов, а то и достигающий полутонны! Или в допотопные времена и деревья были соответствующие? Гигантопитеки, неспешно лазающие по гигантодурианам и бросающие сверху колючие шкурки на гигантских панд, жующих гигантский бамбук? Вероятно, меню древних обезьян все же было не совсем идентично выбору современных рыжих древолазов. Что ж, методики совершенствуются, поиски продолжаются… Минутка фантазии. Самые оптимистичные криптозоологи считают, что гигантопитеки вовсе не вымерли, а существуют поныне в труднодоступных районах планеты в виде “снежных людей”. Дескать, они приспособились к жизни на холодных ледниках, в таежных лесах и северных тундрах, пообросли шерстью, перешли к питанию мясом – и вот готовы йети, сасквачи, алмасты и чучуны. Изначально большой мозг еще подрос (ведь теперь им приходится скрываться от назойливых сапиенсов), развилось и усовершенствовалось прямохождение, возможно, даже появилась трудовая деятельность. В принципе, ничего невозможного в этом нет. Есть лишь одна проблема, емко высказанная известным писарем Федей: “По всем палатам мы за ними гонялись! Хвать – ан демонов-то и нету!” Десятилетия поисков так и не дали внятных результатов. На самом деле, каждый антрополог глубоко (или даже не очень глубоко) в душе мечтает, чтобы “дикие люди” оказались реальностью. Каждый хочет первым добежать до вожделенного экземпляра, буде его найдут или поймают. Любой грезит о сенсации и своем авторстве в описании уникального вида. Скучно же годами изучать то, что ни от кого не скрыто. Все самое интересное по верхам уже изучено, остались лишь самые сложные и занудные темы, дешевую славу снискать трудно. Где ты – реликтовый гоминоид?..Глава 31. Ореопитек в руках ученых, или Ученые в лапах ореопитека.
Людям, далеким от науки, может казаться, что далекие от реальной жизни чудаки-ученые в тиши своих кабинетов годами тихонько поскрипывают перьями по пергаменту, выцарапывая на нем тайны мироздания, а после с тихой гордостью являют свои манускрипты на суд дружного и сплоченного научного сообщества. Почтенные, убеленные сединами академики на торжественном заседании степенно возлагают лавры на главу достойного, после чего он углубляется в дебри науки на следующие годы.
В реальности картина несколько иная. Тишина научных кабинетов нарушается отнюдь не скрипом перьев – его заменил нервный перестук клавиатуры; скрипят в основном натруженные мозолистые мозги и процессоры компьютеров. Отчетливо слышен и зубовный скрежет. Он адресован научным оппонентам. Накал страстей может быть весьма велик, под давлением мысли на страницы журналов изливается кипящая магма статей, которую дополняют летящие вслед раскаленные бомбы комментариев.
Примерно в таком виде на просторах журнала Journal of Human Evolution развернулась битва сторонников и противников особой продвинутости ореопитека Oreopithecus bambolii – знатного кандидата на почетное звание парачеловека.
…Впрочем, стоит начать с истории. Ореопитек с самого своего появления в 1872 году задал жару ученым. Словно черный чертик выскочил из угольных копей Тосканы и в лучших гоголевских традициях стал морочить голову палеонтологам. Его таксономическое положение менялось от парапитековых через мартышкообразных до гоминид, а в 1951 году У. Грегори даже прописал его среди свиней (видимо, в противовес пресловутому гесперопитеку, но это уже совсем другая история…). Д. Хюрзелер, самый известный исследователь ореопитека, считал его вполне возможным предком человека. Одни авторы подчеркивали примитивные черты итальянской обезьяны, другие – продвинутые, третьи – специфические.
Ореопитек замечателен массой особенностей. Обычно пишется, что он жил 9–7 млн лет назад, но новейшие исследования фауны расширяют этот интервал до 9,5–6 млн, а абсолютное 40Ar/39Ar-датирование и магнитостратиграфия сужают до 8,3–6,7 млн (Rook et al., 2000, 2011).
Ареал ореопитека был крайне невелик – кусочек западного побережья Италии (севернее Рима, но южнее Флоренции) и Сардиния. В позднем миоцене эти области были островом Гаргано в Тирренском море. В свое время упоминалась возможная находка ореопитека из Молдавии, но, видимо, это было ошибкой. Остров был оригинален: его покрывали болотистые леса – они-то и стали тем углем, в котором теперь находят останки ореопитеков, – и там совсем не было крупных хищников, опасных для обезьян. Был, правда, местный вид крокодила, средних размеров медведь, одна мелкая и одна крупная выдра, более чем полуметровый хищный еж Deinogalerix koenigswaldi, такого же размера гигантские совы Tyto robusta и еще более крупные Tyto gigantea, еще кто-то такого же разлива, но это все не львы с леопардами. Древние средиземноморские острова знамениты своей эндемичной фауной: карликовые слоны и олени, гигантские кролики и крысы, ореопитеки… Впрочем, карликовые олени, гигантские крысы, хомяки и пищухи жили вместе с ореопитеками, а вот слоны обитали по соседству – на Сицилии, Мальте и Кипре; на Сардинии карликовые мамонты тоже появились, но гораздо позже – не раньше конца среднего плейстоцена.

Рис. 23. Реконструкция ореопитека, его череп и кисть.
Небольшая обезьяна – около 32 кг весом – имела брахиаторные пропорции: короткое туловище с расширенной грудной клеткой, очень длинные руки и маленькие ноги. В строении черепа обращают на себя внимание мощные, но укороченные челюсти и сравнительно небольшие клыки; не было и межзубных диастем. Рельеф черепа выражен отлично: надбровные валики, сагиттальный и выйный гребни развиты едва ли не как у гориллы. В свое время Д. Хюрзелер даже ошибочно реконструировал слишком большой объем мозга, приняв сплющенные гребни за стенки мозговой коробки.
На нижней челюсти обращает на себя внимание чрезмерное развитие восходящей ветви и особенно – резкое выступание угла назад; такое строение типично для специализированных на листоядности тонкотелых обезьян. Зубы в целом сравнительно маленькие, имеют массу примитивных черт, присущих скорее мартышкообразным, нежели человекообразным приматам, а также несколько особенностей, встреченных только у ореопитеков. Самым замечательным является центроконид на нижних молярах – бугорок, которого нет ни у каких иных приматов.
Судя по пропорциям конечностей и повышенной подвижности суставов, ореопитек должен был быть брахиатором, однако кости его рук очень тяжелые, так что порхать по веткам подобно гиббонам он явно был неспособен. Выраженные углы ребер свидетельствуют о сильном развитии прямых мышц спины, то есть о ее выпрямлении, а другие черты – об укороченности и расширенности туловища.
Такая вот оригинальная обезьяна с оригинального острова.
Вернемся же в современность.
Началось все с трех статей в Proceedings of the National Academy of Sciences – 1997 и 1999 годов. В них команда антропологов: Сальвадор Мойя-Сола, Мейке Кёлер и Лоренсо Рук – показала, что, во-первых, ореопитеки были своеобразно прямоходящими, во-вторых, имели развитые способности к точечному захвату кисти. Аргументация авторов была богата и весьма убедительна.
В первой статье С. Мойя-Сола и М. Кёлер рассмотрели признаки, связанные с прямохождением (Köhler et Moyà-Solà, 1997). Например, пять поясничных позвонков ореопитека имеют размеры тел спереди большие, чем сзади, а сверху – меньшие, чем снизу. Это говорит о наличии поясничного лордоза и о повышенной нагрузке на крестец. Такой вариант типичен для человека и нетипичен для обезьян. Таз ореопитека низкий и широкий, на нем развиты передняя нижняя подвздошная ость и седалищная ость (обе отсутствуют у обезьян и имеются у человека), расстояние от ушковидной поверхности до вертлужной впадины уменьшено, а седалищная кость укорочена. Лобковый симфиз тоже оказался коротким, а за счет тонкой и прямой формы нижней лобковой ветви в наибольшей степени соответствует варианту австралопитека, а не каких-либо понгид. На бедренных костях мыщелки образуют большой угол с диафизом, что опять же характерно для человека. Хотя у орангутанов и гиббонов угол тоже есть, но у них внутренний мыщелок очень большой, а у людей и ореопитеков мыщелки одинакового размера.
Самой оригинальной частью оказалась стопа. Она у ореопитека ориентирована пальцами наискось в стороны, а не вперед, как у всех приличных приматов. Внутренняя часть стопы, судя по деталям строения суставов, была предназначена держать большую нагрузку, а вот наружная не усилена должным образом. У современных обезьян усилена именно боковая сторона – для лазания по деревьям и ходьбе по земле вразвалочку. Пяточный бугор ореопитека ориентирован вертикально – как у человека, а не наискось, как у обезьян. Отличают ореопитека также укороченные пропорции плюсневых костей и в целом относительно небольшие размеры стопы – такие соотношения среди приматов есть у прямоходящего человека и у гориллы с ее огромной массой; но ореопитек-то был маленький. Однако своеобразнее всего оказалась ориентация большого пальца стопы: он был развернут от прочих пальцев градусов этак на 100. То есть стопа ореопитека представляла странный треножник, одной опорой которого была пятка, второй – II–V пальцы, а третьей – далеко отставленный большой палец. Такое строение напоминает ногу птицы.
Позже – в новой статье – те же антропологи в соавторстве с Лоренсо Руком, Лукой Бондиоли и Роберто Макиарелли привели новые доказательства прямохождения ореопитека (Rook et al., 1999). На этот раз они исследовали особенности трабекулярной структуры тазовой кости. В зависимости от нагрузок мелкие перегородочки внутри костей – стенки ячеек губчатой ткани – выстраиваются во вполне определенной последовательности и с неслучайной плотностью. Эти трабекулы располагаются вдоль преобладающих нагрузок и плотнее в тех местах, где нагрузка больше. В тазовой кости ореопитека трабекулярная структура оказалась более похожей на человеческую, чем на понгидную. Так, сильно укрепленными оказались область ушковидной поверхности по направлению к лобковой кости, подвздошная кость спереди по направлению к седалищной кости, в том числе область передней нижней подвздошной ости, также – задневерхний край подвздошного гребня; усиленная полоса кости проходит у ореопитека между передней и задней частями подвздошной кости от большой седалищной вырезки до передней нижней подвздошной ости. Все эти особенности у австралопитеков и человека выражены ярче, но у гиббонов и крупных человекообразных обезьян по большей части отсутствуют вовсе. Частичное исключение составляет лишь горилла с ее огромным весом, из-за которого область подвздошно-крестцового сустава в скелете этой обезьяны оказывается усиленной.
Третья из упомянутых статей была посвящена хватательным способностям кисти ореопитека (Moyà-Solà et al., 1999). Были разобраны всевозможные параметры, могущие свидетельствовать о том, что ореопитек был не только способен, но и приспособлен к точечному захвату. Точечный захват – это захват, осуществляемый кончиками пальцев, когда каждый палец может прикоснуться к любому другому и все они могут быть сведены в одну точку. Пальцы прижимают предмет к другим пальцам. Этим точечный захват отличается от силового, при котором предмет сгребается всей кистью, а большой палец участвует вместе с прочими, прижимая предмет к ладони. Команда С. Мойя-Солы привела массу аргументов в пользу наличия точечного захвата у ореопитека: маленький относительно величины тела размер кисти при значительной длине большого пальца; отсутствие сужения головчатой кисти – у понгид и австралопитеков такое сужение возникает из-за значительного развития одной из связок, связанных с древолазанием; строение пястно-фаланговых суставов, схожее с человеческим – без суставной поверхности на верхней стороне головок пястных (каковая есть у Proconsul, Dryopithecus и мартышкообразных с их хождением на ладонях) и без поперечного валика в том же месте (каковой есть у горилл и шимпанзе для ограничения разгибания суставов при костяшкохождении – с опорой на согнутые пальцы), с уплощенными основаниями проксимальных фаланг (чего нет у других приматов, кроме людей); ориентированное почти вперед соединение между головчатой костью и II пястной для противостояния боковым нагрузкам при точечном захвате – в противоположность боковой ориентации у Proconsul, Dryopithecus и шимпанзе (правда, у четвероногих мартышкообразных ориентация фасетки тоже заметно смещена фронтально, но у них это связано с усилением боковых нагрузок при ходьбе); человекоподобное строение концевой фаланги большого пальца – с расширенным и уплощенным основанием, развитой бугристостью для прикрепления сгибателя и глубокой бороздкой внизу для связки длинного сгибателя большого пальца. Все вышеупомянутые особенности у ореопитека, конечно, не идентичны человеческим и не достигают даже уровня австралопитековых, но все же явно уклоняются в эту сторону, закономерно отличаясь от вариантов прочих приматов.
Дополнением к этим трем важным статьям стали еще две, опубликованные через несколько лет в Journal of Human Evolution. В первой было показано, что, хотя половой диморфизм по размерам клыков у ореопитеков был выражен вполне отчетливо, все же сравнительно с мартышками, дриопитеками, шимпанзе и прочими обезьянами сопоставимого размера самцы ореопитеков имели не такие уж крупные клыки (Alba et al., 2001). Это говорит о пониженной внутривидовой и особенно межсамцовой агрессии, примерно на уровне бонобо – самых миролюбивых и дружелюбных среди современных понгид. А ведь известно, что доброта и взаимопонимание – залог успешного развития.
Несколько позже вышла статья о строении внутреннего уха ореопитека (Rook et al., 2004). Его полукружные каналы оказались в целом понгидного строения, непохожими на вариант медленных древолазов. Передний и боковой каналы имеют размеры примерно как у понгид, а задний несколько увеличен. Это говорит о сильных угловых движениях головы в сагиттальной плоскости (то есть кивках вперед-назад), поскольку размер канала увеличивается у быстрых и подвижных видов для большей стабильности, а уменьшается у медленных. Например, у человека передний и задний каналы имеют увеличенные размеры для стабилизации при ходьбе, а вот боковой – маленький, так как боковые движения головы слабые.
Итак, нарисовался замечательный и благородный образ ореопитека: прямоходящая обезьянка с чуткими и ловкими ручками, добрая в душе и только что не разумная. Все эти прогрессивные особенности, как предполагалось, смогли возникнуть в условиях эндемичной островной экосистемы при ограниченном количестве ресурсов, но и при почти полном отсутствии хищников. Никто не мешал ореопитекам ходить по болотистой земле своего острова, может быть и не совсем прямо, но хоть бы и придерживаясь длинными руками за низкие ветви деревьев и кустарников. Еды, впрочем, не хватало. Потому ореопитеки развили способность тщательно собирать все съедобное, усовершенствовав пальцевый захват до точечного. Не совсем, правда, ясно, для чего листоядной обезьяне точечный захват, но листоядность ореопитеков реконструируется по строению челюстей и зубов, а в условиях островов чего не бывает. Например, мыши из ореопитековой фауны имели зубы, вроде бы приспособленные для жевания степной травы, однако ж жили в болотистых лесах; это противоречие тоже объясняется, вероятно, отсутствием гнета хищников и конкуренцией за ограниченные ресурсы (Casanovas-Vilar et al., 2011). Микростертость эмали указывает на питание ореопитека скорее фруктами и твердыми плодами и семенами, нежели листьями (Williams, 2013).
Oreopithecus, конечно, не был предком человека, но замечательным образцом параллельной эволюции.
Такой продвинутый образ ореопитека продержался несколько лет. Удар нанес Рэндэлл Сасман в 2004 году (Susman, 2004). Он оспорил почти все признаки, якобы свидетельствующие о способности ореопитека к точечному захвату. Самым крупнокалиберным выстрелом Р. Сасмана в адрес сторонников ловкорукого ореопитека стало утверждение, что команда С. Мойя-Солы перепутала целый ряд фаланг. Так, фаланги, считавшиеся проксимальными большого пальца, в действительности являются медиальными фалангами III пальца, исходя как из их тонкой морфологии, так и из относительных размеров. Якобы на спорных фалангах имеется явная раздвоенность основания – для соединения с головкой проксимальной фаланги. Кроме того, проксимальная фаланга большого пальца ни у каких приматов не бывает такой же длины, как проксимальные фаланги других пальцев, а согласно статье 1999 года получается именно так. Наконец, якобы на проксимальных фалангах I пальца человека и шимпанзе имеются следы асимметричного прикрепления косой связки. Вообще, согласно Р. Сасману, ни один исследователь еще не находил проксимальных фаланг I пальца кисти ореопитеков. Кроме этой путаницы, проксимальная фаланга V пальца была принята командой С. Мойя-Солы за фалангу II-го. Еще мимоходом Р. Сасман помянул, что на рисунке в статье 1999 года третья плюсневая изображена задом наперед.
Дистальная – концевая – фаланга I пальца кисти ореопитека, по мнению Р. Сасмана, вовсе не имеет черт, присущих гоминидам. Ее длинная узкая форма аналогична понгидной, а нижняя поверхность сильно разрушена, так что место прикрепления мышцы-сгибателя просто не видно, а рельеф для этого прикрепления не выражен.
Также Р. Сасман показал, что длина кисти ореопитека была вовсе даже не маленькой, а относительно длины руки даже более длинной, чем у орангутана – самого длиннорукого современного гоминоида. Стоит, конечно, учесть, что С. Мойя-Сола с командой считали длину кисти относительно размеров тела, а Р. Сасман – относительно длины руки, но вроде разница подходов дает еще более впечатляющие результаты, чем кажется, ибо руки у ореопитека длинные, а тело – короткое. Впрочем, Р. Сасман заметил, что даже абсолютные цифры, приведенные в статье 1999 года, ошибочны, ненавязчиво и корректно показав, что уважаемые коллеги не умеют считать.
Кроме того, Р. Сасман указал, что ореопитек имел очень длинные руки и длинные изогнутые пальцы – черты, типичные для древолазящих приматов. Впрочем, стоит сразу отметить, что изгиб фаланг ореопитека хотя и превышает индивидуальный максимум человека, все же несколько меньше средней гориллы – самой “прямопалой” обезьяны, находится в самых нижних пределах изменчивости обыкновенного шимпанзе, на нижней границе вариативности бонобо и далеко не достигает минимума орангутана.
Сильным аргументом Р. Сасмана послужило то, что ладьевидная кость запястья ореопитека похожа на орангутанью, поскольку центральная кость к ней не прирастает, что говорит о небольших размерах и малой подвижности большого пальца. У горилл, шимпанзе и человека ладьевидная кость кисти массивная, поскольку срастается с центральной костью, хотя у обезьян это слияние происходит позже, чем у людей. Таким образом, хватательная способность большого пальца ореопитека была очень слабой.
Короче говоря, корректно и очень вежливо Р. Сасман утверждал, что статья С. Мойя-Солы со товарищи полностью бессмысленна.
В восемнадцатом веке горячие испанские и итальянские сеньоры стали бы точить кинжалы, в девятнадцатом – перья, в двадцатом – карандаши, но научный прогресс неумолим. Точить компьютерную клавиатуру было бы странно, а потому в двадцать первом веке пришлось точить аргументы.
В новой статье 2005 года С. Мойя-Сола, М. Кёлер и Л. Рук исчерпывающе ответили на доводы Р. Сасмана (Moyà-Solà et al., 2005). Они привели качественные и подробные фотографии спорных фаланг, на которых отчетливо видно, что основания их вовсе не раздвоенные, а потому они не могут быть медиальными. Кроме того, С. Мойя-Сола с коллегами намекнули, что сам ореопитек показывает уважаемому Р. Сасману кукиш, ибо кисть ореопитека Ba#140 залегала в угольном пласте именно в этом положении. Первая пястная напрямую соединяется с проксимальной фалангой кисти, а та – со второй, так что вопрос об их идентификации практически не стоит. Нет путаницы и с длиной костей – разница измерений команды С. Мойя-Солы и Р. Сасмана практически незаметна на графиках.
II и V фаланги команда С. Мойя-Солы тоже не перепутала, поскольку они имеют закономерно разную длину. По новой реконструкции номера фаланг скелета IGF 11778 оказались следующими: III средняя по Susman, 2004 – I проксимальная; IV проксимальная – II проксимальная; IV средняя – III средняя; III проксимальная – слипшиеся III и IV проксимальные.
Наконец, ямка на нижней стороне дистальной фаланги I пальца имеет ненарушенную поверхность и, по утверждению команды С. Мойя-Солы, имеет совершенно явственные следы прикрепления связки длинного сгибателя большого пальца, говорящие о незаурядных способностях к точечному захвату.
От себя добавим, что ералаш с определением костей кисти ореопитека был всегда. Например, в 1973 году в том же Journal of Human Evolution была опубликована статья о находке скелета ореопитека IGF 11778, в которой имеется хорошая фотография скелета и препарированной кисти (Berzi, 1973). На фотографии кисти имеется I пястная кость, и притом совершенно целая. Правда, на той же фотографии в качестве V пястной показана, видимо, проксимальная фаланга, а фрагмент V-й посчитан за II-ю, так что путаницы тут хватает. Показательно, что не только нумерация, но даже число сохранившихся костей различается в разных источниках. В публикации 1973 года на фото скелета пястных и фаланг 14, на фото кисти – 13 (судя по всему, одна дистальная фаланга попала за край кадра); на реконструкции команды С. Мойя-Солы 1999 года – 17 костей, а на реконструкции Р. Сасмана 2004 года их 16, но кусок 17-й, вероятно, прилеплен сбоку к одной из проксимальных фаланг.
Р. Сасман не задержался с ответом (Susman, 2005). Его богатая и чрезвычайно обильная анатомическая аргументация должна была не оставить сомнений, что автор сей аргументации является крупнейшим специалистом в данной области, а спорные фаланги все же медиальные. Помянуто и раскритиковано было предполагавшееся сходство кисти ореопитека с кистью африканского Nacholapithecus. Опять упор шел на расположение и следы прикрепления косой связки, которых нет на фалангах. Подробно был рассмотрен вопрос об ориентации соединения II пястной и головчатой костей. Р. Сасман указал, что скошенное проксимо-латеральное соединение встречено у Oreopithecus, мартышкообразных, Australopithecus и человека, а потому не может отражать способность к точечному захвату. Более того, такая ориентация сустава имеется и в кисти колобусов, у которых большой палец вообще редуцирован. У австралопитеков вариант промежуточен между шимпанзе и человеком.
Относительно ямки на нижней стороне дистальной фаланги Р. Сасман указал, что она, судя по всему, тесным образом связана со способностями изготовления каменных орудий, поскольку встречается только у гоминид, эти орудия делавших. Дотошно было разобрано единственное возможное исключение – фаланга Stw 294 из Стеркфонтейна. Эта фаланга ранее поминалась как кость Australopithecus africanus, имеющая пресловутую ямку, но Р. Сасман показал, что кость вполне может происходить из более позднего слоя, в котором встречены кости Homo habilis.
Еще раз речь шла о длине фаланг и их изгибе, о форме таза, который у ореопитека по комплексу параметров более всего похож на орангутаний… Впрочем, что касается таза, его форма у ореопитека своеобразна настолько, что можно утверждать разные вещи. С одной стороны, подвздошная кость действительно широкая и низкая, несколько похожая на гоминидную. С другой стороны, пропорции всей тазовой кости крайне вытянутые, сопоставимые с орангутаньим состоянием.
Наконец, много раз поминавшиеся обеими сторонами в качестве авторитетов М. Марзке и М. Шрусбери издали статью (Marzke et Shrewsbury, 2006), в которой пояснили, что ямка на основании дистальной фаланги I пальца никак не связана с расположением и размером связки длинного сгибателя большого пальца, поскольку в любом случае связка крепится дальше – на всякого рода бугорках и гребешках (что, кстати, сказано и в любом анатомическом атласе), а ямка, когда имеется, заполнена окружающими тканями или жировой подушечкой. Ямка бывает выражена у самых разных приматов и ничего не говорит о способностях кисти. Таким образом, бурный спор, кипевший годами, частично не имел смысла. Попутно авторы вспомнили и другие примеры, когда уважаемые всем мировым сообществом ученые связывали большие размеры ямки с сильным развитием длинного сгибателя – статьи Р. Сасмана о парантропах, Д. Риклана об африканских австралопитеках, Э. Тринкауса о шанидарских неандертальцах и даже собственную – статью М. Марзке об эволюции точечного захвата.
Во второй части статьи М. Марзке и М. Шрусбери убедительно показали, что асимметричность прикрепления косой связки большого пальца никак не может быть показателем принадлежности проксимальной фаланги этого пальца, поскольку связка крепится на кость не в тех местах, что были показаны в статье Р. Сасмана, дистальной частью соединяется с суставной сумкой, вообще не оставляет на кости никаких следов и имеется далеко не у всех приматов.
Авторы отметили, что из информации и рисунков, приведенных в статьях и С. Мойя-Солы, и Р. Сасмана, невозможно сделать вывод о принадлежности спорных фаланг к проксимальным большого пальца или медиальным других пальцев.
В заключение М. Марзке и М. Шрусбери посетовали, что существует крайне мало исследований, в которых бы реально рассматривались взаимоотношения скелетных и мышечных структур, хотя далеко идущие эволюционные выводы готовы делать все. Учите анатомию, господа!
Но наука не знает покоя. Собравшись с новыми силами, команда С. Мойя-Солы детальнейшим образом исследовала вопрос о строении концевых фаланг большого пальца руки ореопитека и других приматов (Almecija et al., 2014). Сардинская обезьяна в целом оказалась весьма примитивной, похожей на проконсула. Однако некоторые черты ореопитека все же удивительно похожи именно на человеческие: это расширенность головки и усиленные места прикрепления длинного сгибателя пальца, связанные с соответствующими ямками на основании и теле кости. Из всех приматов рельеф фаланг ореопитека больше всего похож на таковой оррорина и современного человека. Очевидно, что речь идет не о родстве, но о функциональной конвергенции. Ореопитеки, похоже, все же брали предметы, зажимая их подушечками пальцев, как люди, а не кончиками, как прочие обезьяны.
Какова же мораль всей этой истории? Людям, далеким от науки, может показаться, что ученые заврались, запутались и вообще лепят что попало, дурят честных людей и зря едят свой хлеб. Однако стоит напомнить, что все специалисты, упоминавшиеся нами, – ведущие антропологи и палеоприматологи планеты. Они собственноручно искали и чистили окаменевшие останки, препарировали мышцы современных обезьян и людей, годами искали тонкие закономерности во взаиморасположении и развитии всяческого рода шероховатостей и малейших неровностей костей. Откуда же взялась столь впечатляющая разница в выводах, большой спор из-за малых бугорков? Причина проста: реальность сложна! Древние кости сохраняются плохо, лежат в угле как попало, взаимосвязи мышц и костей слабы, изменчивы и плохо изучены. Мы многого не знаем! Но в спорах рождается истина! Именно благодаря подобного рода историям в науке выкристаллизовывается знание. Противоречия будят мысль и вызывают оппонентов на новые изыскания, все более тщательные и глубокие. Ошибки выявляются, и замечательно, что выявляют их всё те же самые ученые, а отнюдь не те, кто готов, ничего не делая, говорить о бестолковости ученых.
Знание – сила!
Не так много людей занималось анатомией приматов и ореопитеков. Слишком мало останков ореопитеков дошло до нас, очень уж сплющены и деформированы эти кости в угольных толщах. Ситуация с нашими современными знаниями об ореопитеках несколько напоминает ситуацию со знаниями о неандертальцах в конце XIX века или об австралопитеках до 1940-х годов.
Пока неандертальцы были известны по паре неполных черепов и одному-двум скелетам, да еще частично патологичным, чего только не говорилось о них! Ведущие медики и антропологи утверждали самые невероятные с нынешней точки зрения вещи. Чего стоит одна только байка о русском казаке-микроцефале, умершем в пещере в погоне за Наполеоном! А ныне? Известен даже цвет волос некоторых неандертальцев!
А как встретил научный мир сообщение Р. Дарта об открытии древнейшего прямоходящего существа в 1925 году? Вплоть до открытий в Восточной Африке в 1970-х годах большинством ученых австралопитеки признавались лишь боковой ветвью эволюции (в целом обоснованно, ведь речь шла о южноафриканских формах). Когда же данных стало достаточно, были пересмотрены коллекции скелетов людей и обезьян, проведены корректные сравнения и дополнительные исследования по биомеханике, геологии, палеофаунистике и множеству прочих дисциплин и австралопитеки заняли свое прочное место в ветвях эволюционного древа жизни.
Ученым свойственно сомневаться. Противоречия и споры – неотъемлемая часть процесса научного познания. Без них наука догматизируется и превращается в религию. Ученые обязаны сомневаться и спорить, подвергать проверке все новое и все старое. Любое новое знание ставится под знак вопроса и многие знаки вопроса – до полной победы истины, иначе не избежать ошибок.
…А как же ореопитек? Ходил ли он на двух ногах? Брал ли пищу кончиками пальцев или сгребал всей ладонью? Будущее покажет, каким было прошлое. История спора не закончена, и в научных лабораториях по-прежнему раздается напряженный скрип…
Крестец ореопитека – крест на прямохождении ореопитека. Да, много проблем создал ореопитек для ученых. Не то он был прямоходящий, не то – специализированный древолаз. Не то изящно срывал малину кончиками утонченных пальцев, не то грубо сгребал листья всей мохнатой пятерней. Много аксонов было сломано в былинных турнирах сторонников и противников необычайной продвинутости ореопитека. Много нейронов погибло в попытках открыть тайны островной обезьяны. Но, видимо, недостаточно… А потому двое антропологов из Техаса – Габриэль Руссо и Лиза Шапиро – решили продолжить эпическую битву за ореопитека (Russo et Shapiro, 2013). На сей раз они обратили внимание на часть, доныне не привлекавшую взоры. Оказалось, что доселе никто не исследовал крестец ореопитека. Честно говоря, оно и понятно, ибо окаменелость больше напоминает нечто из фильма “Чужие” (если не что похуже), нежели филейную часть обезьяны. Ничем не лучше выглядят и нижние поясничные позвонки. Вообще-то, исследователям приходится изучать деформированный кусок угля, а не исчезнувшие в вечность кости, так что проблема и впрямь немалая. Однако крестец называется крестцом неспроста, ибо находится в самом важном месте – в Центре Тяжести! А посему на нем в первую очередь отражается положение тела при ходьбе. У человека и австралопитеков крестец очень широкий и короткий, с мощным верхом, резко сужающийся вниз. У человекообразных обезьян крестец узкий, длинный, вытянутый, сужающийся постепенно. Поясничные позвонки прямоходящих мощные, увеличивающиеся от первого к последнему, образующие изгиб вперед – поясничный лордоз. У косолапых антиподов все не как у людей. Что же ореопитек? По большинству рассмотренных параметров он оказался человекообразной обезьяной. Абсолютная ширина крестца, размеры верхних и нижних суставных поверхностей поясничных позвонков и крестца, ширина позвоночных дуг, описательные признаки – все как у горилл и шимпанзе. Самой человеческой чертой выглядит только увеличение ширины между суставными отростками от первого до последнего поясничных позвонков, но оно не такое уж существенное и в той же мере встречается у обезьян. Из всего вышеназванного Г. Руссо и Л. Шапиро делают вывод, что нагрузки на поясницу и крестец у ореопитека были как у обезьян, никакого поясничного лордоза не было, а на гипотезе прямохождения можно поставить крест. Казалось бы, удивительная сказка заканчивается… Но! Никуда не делись другие признаки прямохождения ореопитека! А как же наклон мыщелков бедренной кости относительно ее диафиза? А как же масса специфических черт тазовых костей, в числе коих – трабекулярная структура? А как же “птичья ножка” – полуфантастическая форма стопы-треножника с опорой на пятку, оттопыренный на 100 градусов большой палец и на прочие 2–5-й пальцы? Даже с поясничными позвонками не все так окончательно и безнадежно, ибо сумма их передних высот, согласно предыдущим исследованиям, выше задних, что свидетельствует-таки о поясничном лордозе. А зачем последний, если ты ходишь на четвереньках и при этом не гигантская горилла? Так что любителям ореопитеков не стоит расстраиваться, расслабляться и успокаиваться; надо ждать новых изысканий и потрясений. В лабораториях и ученых кабинетах по-прежнему раздается стук и треск, скрип и скрежет. Наука не стоит на месте!..Замечательно, что ореопитеки начали переход к прямохождению (если начали) в то же самое время, что и наши предки. Замечательно и то, что одна и та же причина уничтожила ореопитеков и дала “зеленый свет” нашим предкам. Дело в том, что похолодание и осушение климата привело к соединению острова Гаргано с материком и исчезновению тропических влажных лесов. Для ореопитеков это окончилось фатально: вязкие почвы их родины подсохли, с материка туда ринулись голодные хищники, и на том история потенциально прогрессивных, вкусных, но совершенно беззащитных обезьян завершилась. Не исключено, что, подобно многим островным животным, долгое время существовавшим в отсутствие хищников, ореопитеки потеряли страх перед зубастыми и когтистыми и даже не пытались спасаться.
Удивительно, но те же климатические изменения “подстегнули” эволюцию преавстралопитеков. Африка – не Европа. Хищников тут всегда хватало, и преавстралопитеки знали, чего от них ждать. Так что выход в саванну не застиг их врасплох. Леопард в лесу и леопард в саванне – все одно леопард. Очевидно, наши предки были гораздо более общительными и сплоченными существами, что и спасало их от опасностей африканских ночей. Вероятно, в этот момент произошел существенный скачок социализации, что отразилось в уменьшении размеров клыков и ослаблении полового диморфизма. Впрочем, это уже другая история…
Глава 32. Австралопитеки – предки разумных.
Среди ранних австралопитеков нам известны несколько видов, из коих некоторые, видимо, не были предками человека. Даже сахелянтроп Sahelanthropus tchadensis, который обычно упоминается как наш древнейший прямоходящий предок, имел слишком уж гориллоподобный рельеф затылочной кости при павианьих размерах черепа. Далеко не факт, что он числился в наших прямых пращурах. То есть прямохождение могло возникать не один раз, а параллельно в близких линиях.
Не исключено, что некоторые популяции ранних австралопитеков могли специализироваться в необычную сторону. Так, лучевая кость KNM-ER 20419 анамского австралопитека Australopithecus anamensis из Аллия Бей в Кении имеет характерную скошенность нижнего конца: лучезапястная суставная поверхность загнута в ладонную сторону. Аналогичная ориентация типична для человекообразных обезьян, ходящих на согнутых фалангах пальцев (Corruccini et McHenry, 2001). А ведь у более древнего ардипитека Ardipithecus ramidus и более поздних людей специализаций к такому костяшкохождению нет, а анамские австралопитеки, вообще-то, по всем данным вроде бы были предками афарских Australopithecus afarensis. Видимо, отдельные популяции вполне могли уклоняться от генеральной линии. С другой стороны, летом 2013 года автор этих строк в личных руках держал лучевую кость черняховца III–V века нашей эры из-под Харькова с точно такой же скошенностью суставной поверхности. Поскольку крайне сомнительно, что готы в позднеримское время скакали по степям на четвереньках, приходится признать, что дело просто в индивидуальной изменчивости. Поскольку от анамского австралопитека известна лишь одна лучевая кость, делать глобальные выводы на основе одного признака одной кости надо с огромной осторожностью.
Около 2,7 млн лет назад от грацильных австралопитеков отпочковались парантропы, или массивные австралопитеки. Эта эволюционная линия крайне интересна. С одной стороны, они представляют собой явный эволюционный тупик: мощнейшие челюсти и жевательные зубы, огромные костные гребни на черепе для прикрепления жевательных мышц. С другой – парантропы были не столь уж примитивными.
В южноафриканской пещере Стеркфонтейн “олдованская” брекчия пятого уровня содержит много оббитых галек из кварца и кварцита и кости Paranthropus robustus. Там же, а также в первых трех уровнях Сварткранса (где тоже найдены кости парантропов, но и “ранних Homo”) обнаружены интересные костяные обломки со следами стертости (Backwell et d'Errico, 2001). Когда исследователи провели эксперименты по использованию костей для самых разных целей, точно такие же царапины, как на древних осколках, получились на тех, которыми ученые разрывали термитники. Стоит вспомнить, кстати, что еще в 1980 году советский энтомолог Г. М. Длусский выдвинул предположение о значительной роли питания термитами и личинками из древесины в происхождении навыков труда и необходимости использования для этого каменных орудий труда нашими древнейшими предками (Длусский, 1980).
Другой вопрос, как могли парантропы использовать изготовленные ими каменные орудия? Ведь, судя по строению челюстей и зубов, а также микроэлементным и изотопным анализам костей, восточно– и южноафриканские парантропы питались хоть и очень различно, но те и другие были практически исключительными вегетарианцами. По всей видимости, Paranthropus robustus выкапывали какие-то корневища и другие подземные части растений, а Paranthropus boisei жевали осоку на берегах рек и озер (Cerling et al., 2011a, 2013; Sponheimer et al., 2013).
Кроме того, всегда остается некоторое сомнение: не принадлежат ли эти костяные и каменные орудия более развитым “ранним Homo” – например, Homo habilis, нашим непосредственным предкам, жившим в тех же местах и в то же время, которые к тому же вполне могли охотиться на парантропов? Однако кисть массивных австралопитеков была приспособлена для изготовления и применения орудий намного лучше, чем у Homo habilis: у парантропов имелся седловидный сустав между костью-трапецией и ладьевидной костью, а концевые фаланги пальцев были расширены даже в большей степени, чем у современного человека, то есть имели гипергоминидные пропорции. По строению мозга парантропы тоже были не так уж отсталы. Конечно, их мозг не особо отличается от обезьяньего, но, по крайней мере, он не меньше, чем примерно у половины “ранних Homo”. Впрочем, и масса тела у парантропов была в полтора раза больше, чем у хабилисов, так что относительные размеры мозга оказываются заметно меньшими.
Парантропы так и не стали по-настоящему разумными. Они сделали ставку на размеры и растительноядность, что привело их к экологической специализации и вымиранию. Видимо, на пути поумнения массивных австралопитеков имелось несколько технических проблем. Для начала, растительная пища низкокалорийна, ее надо поглощать в больших количествах и желательно без остановки. Для этого надо иметь мощнейший жевательный аппарат и длинный пищеварительный тракт. Мощные челюсти движутся мощными мышцами, которые оказывают давление на кости; уже в подростковом возрасте швы между костями свода срастаются, а мозг теряет возможность увеличиваться. Кроме того, добывать осоку и корешки не так уж сложно, для этого не требуется особо напрягать извилины и не очень-то нужны орудия. В крайнем случае можно обойтись самой примитивной ковырялкой на уровне, доступном и шимпанзе.
Почему исчезли парантропы? Есть разные мнения. Возможно, усилилась конкуренция с нашими предками, более беспокойными и агрессивными. А может быть, массивные австралопитеки проиграли эволюционную гонку с грызунами, тоже любящими вкусные корневища, но куда как быстрее плодящимися и успешнее приспосабливающимися к новым условиям. Показательно, что вымирание парантропов совпадает с очередными климатическими пертурбациями в Африке. Примерно в это время наблюдается усиление засушливости климата и очередное наступление саванн на леса (Cerling et al., 2011b). Не сказать, чтобы оно было каким-то чересчур грандиозным, но в сочетании с другими факторами оказалось фатальным для парантропов.
Массивные австралопитеки вымерли, но остались окаменевшим примером альтернативности эволюции, более того – альтернативности разумности на основе растительноядности. Кто знает, не появись “ранние Homo”, может, Землю заселили бы разумные вегетарианцы?..
Среди грацильных австралопитеков тоже далеко не все были нашими предками. Особенно любопытен в смысле параллельной гоминизации австралопитек гари Australopithecus garhi. Он обитал 2,5 млн лет назад на территории нынешней Эфиопии (Asfaw et al., 1999). Судя по особенностям строения зубов, австралопитек гари не был нашим предком. Однако в тех же слоях, в коих обнаружены его останки, исследователи нашли обломки костей антилоп с надрезками, а также каменные орудия, которыми повреждения были нанесены. Как обычно бывает в таких случаях, возникли две основные версии развития событий, ведь орудия откопаны не зажатыми в костлявых руках, а кости антилоп – не застрявшими между зубов, а лишь в тех же слоях на обширной территории.
Во-первых, по соседству могли жить какие-то более продвинутые гоминиды типа первых Homo. Они накололи камней, съели антилоп и, возможно, австралопитеков и удалились в зыбкое марево саванн. Правда, с этой версией есть пара неувязок: никаких останков Homo в этих отложениях нет (конечно, никто не сказал, что они были обязаны сохраниться, но останков австралопитеков довольно много, да к тому же не в одном месте, а целом ряде локальных местонахождений), а на костях австралопитеков нет следов орудий.
Так что возникает вторая гипотеза: именно гари умели делать чопперы и охотились на антилоп. А это значит – напоминаем, что они не были нашими предками, – что до уровня изготовления орудий и перехода ко всеядности дошли как минимум две эволюционные линии: гари и наша. Что помешало австралопитекам гари стать полностью разумными? Нам это неизвестно. Не так много мы знаем об этом виде.
С большой вероятностью гоминизация – превращение в человека или “парачеловека” – затронула целый ряд видов.
Так, южноафриканские Australopithecus africanus вряд ли были нашими предками; это видно, в частности, по их стопе с оттопыренным большим пальцем, слишком обезьяньим пропорциям конечностей и специализациям черепа – по всем этим чертам они примитивнее более древних восточноафриканских Australopithecus afarensis. Вместе с тем Australopithecus africanus с наибольшей вероятностью являются предками Australopithecus sediba, живших в той же Южной Африке 2 млн лет назад. А седибы, в свою очередь, удивительно похожи на Homo habilis – настолько, что часть исследователей склонна называть их Homo sediba. Так может, в Южной Африке развивалось свое, параллельное восточноафриканскому, человечество? Среди еще более поздних южноафриканских находок смесь своеобразных черт позволила выделить вид Homo gautengensis (Curnoe, 2010). Они вроде бы и похожи на хабилисов Восточной Африки, а вроде бы и не вполне.
Да и в самой Восточной Африке таксономические взаимоотношения первых людей далеко не очевидны. Не исключено, что тут более-менее одновременно существовали два, три, а то и четыре вида “ранних Homo” (не считая парантропов): Homo rudolfensis, Homo habilis, Homo ergaster или Homo erectus, а возможно – еще и Homo microcranous. Подробно об этой чехарде будет сказано ниже, тут отметим лишь, что между 2,5 и 1,5 млн лет назад у эволюции был довольно широкий выбор – из кого сделать человека. Трудно сказать, чем взяли именно наши предки, но можно утверждать, что, сложись условия лишь немного иначе, мы имели бы иное прошлое, облик и привычки.
Альтернативы возникали и за пределами Африки. Древнейшие внеафриканские гоминиды весьма примитивного облика (хотя это уже явно не австралопитеки, а люди) найдены в Грузии, в местонахождении Дманиси; их датировка – около 1,8 млн лет назад. Часто они поминаются как древнейшие европейцы, однако в таком утверждении есть два лукавства: во-первых, Грузия географически относится к Азии, а во-вторых, дманисцы с наибольшей вероятностью вымерли, не оставив потомков. Однако они изготавливали галечные орудия, а стало быть, были настоящими людьми. Побольше глобальных засух в Африке, поменьше саблезубых тигров в Азии – и планету населили бы правнуки грузинских “ранних Homo”.
Глава 33. “Заповедник гоблинов”.
По мере расселения по миру отдельные группы людей могли попадать в такие места, откуда трудно было выбраться обратно и куда мало кто добирался в последующем. Два образцовых примера дает Индонезия.
Люди попали на Яву около 1,1 (Hyodo et al., 2002), в самом оптимистичном случае – около 1,25–1,51 млн лет назад (Larick et al., 2001). Это были уже Homo erectus – достаточно продвинутый вид; яванские эректусы шире известны как питекантропы. Туда они пришли посуху, ведь регулярно уровень океана понижался, а острова соединялись с Малаккой в единый субконтинент Сунду. Потом воды морские наступали и отрезали питекантропов от остального человечества. Мало кто проникал сюда вновь, поэтому Ява – конец пути, тупик, край земли – оказалась своеобразным заповедником, где на протяжении как минимум полумиллиона, а то и целого миллиона лет шла совсем своя экзотичная эволюция. Последовательные этапы этой эпопеи мы видим в показательном ряду черепов: Сангиран, Моджокерто и Триниль – Самбунгмачан и Нгави – Нгандонг. Правда, для всех них датировки весьма расплывчатые и спорные, но, по крайней мере, мы можем сравнить их морфологию. Древнейшие питекантропы Явы не слишком отличались от африканских и европейских эректусов, но постепенно специализировались все больше и больше. Люди из Самбунгмачана уже гораздо более обособлены и выглядят уже отлично от среднеплейстоценовых гоминид Африки, Европы и даже материковой Азии.
Самые поздние яванские архантропы из Нгандонга на реке Соло специфичны уже настолько, что были описаны как особый вид Pithecanthropus soloensis, или Pithecanthropus ngandongensis (начало названия может по вкусу заменяться на Homo, Homo erectus, Homo neanderthalensis или даже Homo sapiens, а soloensis оказывается, соответственно, видовым или подвидовым эпитетом). Тут были найдены 14 мозговых коробок и черепных крышек, фрагмент тазовой кости и две большие берцовые кости – беспрецедентная коллекция.
Кстати, до сих пор нет внятного объяснения такому набору костей. Предполагалось, что тут имело место кровавое каннибальское пиршество с отрезанием голов, разбиванием оснований черепов, поеданием мозга и выставлением трофеев на видном месте на берегу реки. Этакий пикник на пляже с инсталляцией голов на кольях в исполнении продвинутых питекантропов. Впрочем, такая красочная картина имеет не очень-то твердые основания: с одной стороны, на большинстве черепов действительно есть повреждения и как минимум четверо могли от них погибнуть, с другой – на костях, которые неведомо сколько перемывались рекой, повреждения будут гарантированно без всяких людоедов (Chrisomalis, 1997). Проблема в том, что находки сделаны в переотложенных и сильно перемешанных слоях, кстати в сопровождении весьма богатой фауны. Концентрация черепов явно не случайна, но ее происхождение – таинственно.
Нам же важнее особенности строения людей из Нгандонга. Секрет тут в сочетании очень примитивных и прогрессивных черт.
Уголок занудства. С одной стороны, форма черепа нгандонгцев очень похожа на таковую питекантропов и синантропов, с другой – размеры в среднем больше. Мозговая коробка с мощнейшим лобным и затылочным рельефом, выраженным заглазничным сужением, но боковые стенки черепа почти вертикальны, а свод сравнительно округлый. Надбровный валик очень характерной формы – в виде прямой горизонтальной полки, с утолщениями по бокам и усилением начала височной линии. Специализирован затылочный валик: здоровенный, в виде острого поперечного гребня, загнутого вниз, с углублениями снизу и подпоркой в виде наружного затылочного сагиттального гребня выйной площадки. Специфическая черта – сильные бугристости позади мыщелков затылочной кости, из-за чего задний край затылочного отверстия оказывается углублен. Из-за этих же бугристостей затылочное отверстие расширено спереди и сужено сзади, что довольно необычно. Затылочные мыщелки очень малы относительно размеров большого затылочного отверстия и ориентированы параллельно друг другу. Височная кость также специализирована: ее чешуя практически прямоугольная, с прямым верхним краем, без теменной вырезки. Примитивны резкая изогнутость каменистой части височной кости и отсутствие шиловидных отростков. С другой стороны, есть почти сапиентные черты, весьма нетипичные для ископаемых гоминид: сосцевидные отростки крупные, хорошо очерченные, выступающие далеко вниз, нижнечелюстные ямки височной кости глубокие и узкие, а суставной бугорок высокий. Уникальная черта гоминид из Нгандонга – отсутствие позадисуставного отростка височной кости. Вместо него имеется тоненький гребешок, который может быть “потомком” постгленоидного отростка, но расположенный на передне-боковой стороне ямки, почти прямо напротив изначального положения. Чешуйчато-барабанный шов проходит через наружную вершину нижнечелюстной ямки (Durband, 2008). Между барабанной пластинкой и сосцевидным отростком имеется широкая щель, этот признак отмечается как специфичный для азиатских архантропов (Delson et al., 2001), а у нгандонгцев выражен в наибольшей степени. Барабанная пластинка толстая, очень широкая и сильно изогнутая, она ориентирована горизонтальнее, чем у современного человека. У нгандонгцев весьма специфично строение овального отверстия большого крыла клиновидной кости: на дне глубокой ямки и всегда с дополнительным маленьким отверстием, которое не имеет аналогий ни на одном современном черепе (Durband, 2007). Показательно, что у классических питекантропов Явы из Триниля и Сангирана – древнейших сравнительно с нгандонгцами – строение основания черепа и нижнечелюстной ямки более стандартное: мыщелки крупные, имеется большой, расположенный сзади позадисуставной отросток, а чешуйчато-барабанный шов локализован на задней стороне ямки. Объем мозга по всем нгандонгским черепам варьирует от 1013 до 1251 см³, в среднем 1100 см³. Строение мозга в целом примитивно, но прогрессивнее, чем у классических питекантропов и вообще архантропов. Две известные большие берцовые кости чрезвычайно массивны, с очень толстыми стенками, узким внутренним каналом и округленным передним краем кости. Рост индивида Нгандонг B был около 1,65–1,68 м – самая средняя величина в мировом масштабе.Таким образом, можно утверждать, что на Яве в условиях островной изоляции шел долгий – в сотни тысяч лет – природный эксперимент по выведению особого сорта людей. У австралийских аборигенов, тасманийцев и каких-либо современных людей нгандонгский вариант не встречается. Таким образом, можно уверенно утверждать, что препалеоантропы Явы не участвовали в формировании современных рас, а вымерли без следа. Изоляция и специализация до добра еще никого не доводили. Когда исчезли яванские “гоблины”, что стало причиной их вымирания? Мы этого не знаем. Вряд ли “нгандонгцы от испуга скушали друг друга”, скорее, они тихо вымерли еще задолго до прихода сюда сапиенсов или же проиграли соревнование с более продвинутыми людьми, возникшими в Большом Мире в ходе напряженной конкуренции и вновь открывшими Яву.
Однако люди с реки Соло – еще не самый выдающийся пример “параллельного человечества”. Дальше лежали еще более экзотические острова, и их населяли еще более экзотические существа…
Глава 34. Где водятся хоббиты?
На краю земли, на западе острова Флорес, чьи горы отражаются на севере в лазури моря Флорес, а на юге – в аквамарине моря Саву, есть долина Вак-Ракан. На ее жарком южном склоне зияет исполинский вход в прохладную пещеру Лианг-Буа. А в пещере лежат сокровища. Археологи раскопали много слоев и нашли в них великое изобилие костей. В плейстоцене остров населяли удивительные звери: трехметровые комодские вараны и полутораметровые слоны-стегодоны, полуметровые крысы и двухметровые аисты-марабу. Поэтому ничего особо странного, что тут же жили и карликовые метровые люди. Самый целый скелет был описан в 2004 году как Homo floresiensis (Brown et al., 2004), а поскольку три года до этого экраны сотрясала кинотрилогия “Властелин колец”, новообретенного члена человеческого братства, конечно, сразу прозвали “хоббитом”. И было за что: рост “хоббитов” был всего один метр – на треть меньше, чем средняя высота самых низких африканских пигмеев! Впрочем, для пигмеев рост даже ниже метра – не такая уж редкость в индивидуальных случаях, тем более что скелет из Лианг-Буа был женским. Гораздо более удивительным было строение черепа: объем мозга оказался таким же, как у шимпанзе! Сначала его измерили вообще в 380 см³, потом уточнили до 426 см³, но это тоже крайне мало – в пределах австралопитековых значений, меньше, чем у подавляющего большинства хабилисов, и вдвое меньше самых захудалых питекантропов! Размерами дело не ограничилось: строение мозга оказалось крайне примитивным, по большинству характеристик напоминающим вариант Australopithecus afarensis. Другие признаки черепа были своеобразными: очень маленькое, довольно сильно выступающее вперед лицо, круглые глазницы, широкий нос, ограниченный по бокам костными валиками, челюсть без подбородочного выступа. Надбровье, к сожалению, оказалось разрушенным, но, судя по всему, выступало довольно мощно для черепа таких размеров. В целом череп совсем не похож на череп современного человека, а скорее уж – хабилиса или крайне уменьшенного питекантропа.
Остальной скелет “хоббита” тоже необычен. Пропорции рук и ног хотя и не откровенно обезьяньи, но почти австралопитековые. Кости запястья имеют массу специфических черт, ставящих “хоббита” особняком среди всех гоминид.
А жила самая известная “хоббитиха” – Лианг-Буа 1, или LB1, – около 60 тыс. лет назад (по первым датировкам – 18 тыс. лет назад), когда на планете царили неандертальцы, денисовцы и прочие дремучие орки, а сапиенсы уже собирались в путь из Африки.
Естественно, возник вопрос: что бы это все значило?!
Для ответа на этот вопрос надо обратиться в глубокое прошлое. Более миллиона лет назад питекантропы пришли в Сунду и обосновались в том числе на ее юго-восточных берегах. Дальше нынешнего острова Бали лежал пролив, который уже настолько глубок, что не осушался даже в периоды самого низкого уровня океана; путь был прегражден. Но через водную гладь 25 км шириной в ясные дни были видны горы острова Ломбок, который соединялся сушей с Сумбавой, а через следующий пролив в 19 км можно было узреть вершины Флореса.
Что творилось в головах питекантропов, стоявших на берегу и взиравших на недосягаемые земли По-ту-сторону? Какой допотопный Колумб решился переплыть море? Что изобрел этот первобытный гений – бревно, плот или даже лодку? И он же был не один, ведь вряд ли он почковался на вновь обретенной родине.

Рис. 24. Хоббит, стегодон, гигантский марабу, комодский варан и гигантская крыса Hooijeromys nusatenggara.
Наверное, мы очень недооцениваем способности и возможности питекантропов, а также и других древних существ. Снобизм “человека разумного”, узурпировавшего право на интеллект, вкупе с бедностью фантазии, беспощадно высвечивающей незаконность этого самовольства, даже вызвал к жизни гипотезу, что предков “хоббитов” занесло на Флорес волной цунами! Интересно, а черепах, варанов и слонов забросило тем же катаклизмом или цунами были вполне рядовым средством передвижения? Судя по как минимум двухкратному появлению стегодонов на Флоресе, а также их наличию и на многих других индонезийских островах, серфинг был среди плейстоценовых хоботных модным развлечением…
Как бы то ни было, на Флоресе питекантропы оказались 1 млн лет назад. Мы знаем об этом благодаря каменным орудиям из Воло-Сеге (Brumm et al., 2010), а также более поздних местонахождений Мата-Менге и Боа-Леза в долине Соа. В это время в Азии – да и на планете вообще – не было других людей, кроме Homo erectus (разве что на юге Африки могли доживать свой век последние парантропы, но к Индонезии они точно отношения не имеют). На Флоресе питекантропы обрели свой истинный Bag End, то есть “Тупик”, – пасторальное родовое имение, в котором положено жить Бэггинсам. Отсюда не было обратного пути, и сюда никто больше не мог добраться вплоть до появления сапиенсов в самом конце плейстоцена.
Предки “хоббитов”: люди из Мата-Менге. Образ удивительных карликовых человечков из Лианг-Буа никогда не перестанет будоражить фантазию исследователей. Без сомнения, самая интригующая загадка – их происхождение. Откуда и когда появились “хоббиты”? Какие превратности судьбы уменьшили рост и объем мозга их предков вдвое? Про это уже были написаны сотни страниц размышлений, но всегда приятнее кость в руке, чем идея в книге. И вот они – кости! Долина реки Соа, расположенная в центре Флореса, уже прославилась древнейшими на острове орудиями. В нескольких местонахождениях археологи обнаружили артефакты разных времен: 1,01–1,026 млн лет назад в Воло-Сеге, 906 тыс. лет назад – в Танги-Тало, 880 тыс. лет назад – в Боа-Леза и Мата-Менге. Местность Мата-Менге и оказалась источником палеоантропологического счастья: раскопки октября 2014 года принесли кусочек черепа, обломок нижней челюсти и шесть зубов (Bergh et al., 2016a). Они были откопаны из второго слоя, датированного рядом методов временем 650–800 тыс. лет назад (Brumm et al., 2016). Тут же нашлись кости комодских варанов, гигантских крыс и карликовых слонов-стегодонов, а также орудия – примитивные отщепы. Как ни мало найдено в Мата-Менге, даже по этим немногочисленным фрагментам можно видеть некоторые моменты эволюции “хоббитов”. Челюсть из Мата-Менге, судя по тому, что в ней прорезался третий моляр – “зуб мудрости”, принадлежит взрослому человеку, но какая же она маленькая! Она на четверть меньше, чем даже челюсти “хоббитов” из Лианг-Буа, не говоря уж обо всех прочих известных людях – древних или современных. Не так много признаков можно определить на обломке, но они явно отличают человека из Мата-Менге от австралопитеков и хабилисов, зато сближают с эректусами и “хоббитами”. То же можно сказать о зубах. Хотя верхнюю челюсть и переднюю часть нижней не нашли, по асимметрии стертости резцов и премоляра мы можем уверенно утверждать, что череп был прогнатный, то есть лицо выдавалось вперед. Для понимания островной эволюции важно строение моляра: у человека из Мата-Менге он пятибугорковый и умеренной длины, как и у яванских питекантропов, тогда как у “хоббитов” – четырехбугорковый и укороченный. При этом размеры и моляра, и других зубов, включая два молочных клыка, чрезвычайно маленькие – меньше, чем даже у самых мелкозубых современных людей, не говоря уж об эректусах, зато близки к параметрам зубов “хоббитов” из Лианг-Буа. Лишь премоляр из Мата-Менге вполне вписывается в изменчивость сапиенсов, хотя и он несопоставим с огромными премолярами Homo erectus. Получается, что сначала у предков “хоббитов” катастрофически уменьшились размеры челюстей и зубов (и, трудно сомневаться, всего черепа), а уж потом стали меняться детали строения. Выводы из всего сказанного вполне очевидны: люди из Мата-Менге – потомки яванских питекантропов и предки флоресских “хоббитов”, уже чрезвычайно мелкие, но не во всем еще подобные своим потомкам. Вместе со всем прочим необходимо отметить, что у “хоббитов” Лианг-Буа нет специализаций гоминид из Нгави, Самбунгмачана и Нгандонга. Стало быть, их пращуры отделились от питекантропов Явы до того, как те стали превращаться в странных людей Нгандонга. Благодаря новым находкам в Мата-Менге мы можем достовернее оценить скорость уменьшения размеров тела “хоббитов”: 1 млн лет назад на Яве жили полноразмерные питекантропы, а около 700 тыс. лет назад – уже карлики. Думается, что в реальности изменения заняли не все эти 300 тыс. лет, а намного меньший срок. Известно, что на острове Джерси в проливе Ла-Манш благородным оленям для того, чтобы из 200-килограммовых стать 36-килограммовыми, понадобилось всего 5,8 тыс. лет! Ясно, что люди – не олени, но дело ведь не в рогатости и копытастости, а надлежащем отборе. Показательны изменения культуры на Флоресе: если 1 млн лет назад в Воло-Сеге первые жители острова делали крупные ашельские рубила, то уже около 900 тыс. лет назад их потомки перешли на изготовление маленьких отщепов. Это можно объяснять по-разному, но самым очевидным и логичным выглядит то, что у творцов просто-напросто уменьшились руки. Они уже не могли ухватить большой булыжник и колоть его мощными ударами, силенок хватало лишь на скалывание мелких кусочков камня. Похвально, впрочем, что предки “хоббитов” в принципе не забросили трудовую деятельность, а упорно продолжали работать, даже несмотря на катастрофическое усыхание мозгов. Нельзя также не вспомнить недавно описанные орудия с Сулавеси, ставящие очередной вопрос, требующий разрешения: попали ли люди на Флорес напрямую с Явы через Ломбок и Сумбаву или же шли кружным северным путем через Сулавеси? Что ж, неплохо бы поискать орудия на Ломбоке и Сумбаве и найти кости на Сулавеси… Климат в Мата-Менге реконструируется как сухой, ландшафты – саванные, хотя и с болотами. Интересно, что фауна Флореса почти не менялась за все время существования людей на острове: те же комодские вараны гонялись как за “протохоббитами” Мата-Менге, так и за “хоббитами” Лианг-Буа, те же гигантские крысы и почти те же стегодоны радовали тех и других своим вкусным мясом. Видимо, именно эта стабильность позволила существовать карликовым человечкам сотни тысяч лет почти без изменений. В очередной раз можно порадоваться, что предположения, высказанные исследователями еще в первоописании “хоббитов”, полностью подтверждаются с появлением новых находок. Логика и сопоставление данных позволяют предсказывать открытия. Упорный труд позволяет делать их. Мы узнали новые интересные детали, картина мира стала целостнее, а в еще одном “белом пятне” проявились призрачные черты удивительного прошлого. И нет сомнений, что новые изыскания позволят наполнить его яркими красками.Чем занимались питекантропы на Флоресе следующие 800 тыс. лет – неведомо. То есть мы имеем их каменные орудия, но они мало о чем могут рассказать нам. Видимо, троглодиты коротали время, поедая слонов и черепах. Дело в том, что около 900 тыс. лет назад на Флоресе водились особые карликовые слоны-стегодоны Stegodon sondaari полутораметрового роста и гигантские черепахи Geochelone. Трудно сказать, кто был вкуснее. Судя по всему, питекантропам нравилось разнообразить меню, потому что уже 880 тыс. лет назад и пигмеи, и исполины исчезли. Хотя многие палеонтологи склонны связывать это с катастрофическими извержениями вулканов, но, думается, без активного участия людей вымирание не обошлось. Косвенно за это свидетельствует то, что комодские вараны, которые и сами могли кого угодно съесть, от вулканов особо не пострадали. Но тучи от извержений рассеялись, лава остыла, а волны нанесли на берег новых слонов – теперь уже полноразмерных Stegodon florensis. С ними питекантропам справиться было уже сложнее, поэтому их хватило на следующие несколько сотен тысяч лет. Конечно, волшебство зачарованного острова продолжало действовать – и их не миновало стремление уменьшиться: огромные Stegodon florensis florensis были таковыми по крайней мере до 680 тыс. лет назад, но Stegodon florensis insularis, жившие 95–50 тыс. лет назад, оказываются уже на 30 % мельче (Bergh et al., 2009). Разнообразили стол “хоббитов” огромные крысы Hooijeromys nusatenggara.
Собственно, пещеру Лианг-Буа – любой “хоббит” обзавидовался бы такой норке со входом шириной 30 и высотой 25 м! – люди заселили еще 190 тыс. лет назад, но в древнейших слоях останки людей пока не найдены. А вот в отложениях с датировками от 100 до 60 тыс. лет назад (первоначально предполагались даты даже от 95 до 11 тыс. лет назад, после – от 74 до 17 тыс. лет назад, но они были пересмотрены и уточнены) кости принадлежат “хоббитам” (Morwood et Jungers, 2009; Sutikna et al., 2016). Судя по орудиям, “хоббиты” могли дожить и до 50 тыс. лет назад. Все сходится: ведь хоббитам положено жить веками и поколениями в одном и том же уютном домике.
Видимо, 900 тыс. лет не прошли даром. Маленький тропический остров (425×70 км), значительная часть которого к тому же покрыта горами, выглядит райским садом, но прокормиться на нем охотой и собирательством не так уж легко. В таких условиях всегда начинается отбор на уменьшение размеров. Неспроста во всех тропических лесах мира живут пигмеи: в Центральной Африке и Малакке, на Андаманских островах и Филиппинах, Новой Гвинее и многих прочих островах Меланезии, в Северном Квинсленде и Венесуэле. Карликовый рост известен и из прошлых времен.
Уголок занудства. Древнейшим известным случаем пигмейского роста является находка ключицы в Нармаде в Индии (Sankhyan, 1997) с предположительной датировкой 400–500 тыс. лет назад. Ее длина всего 10 см – меньше, чем в среднем у андаманских женщин; ширина плеч была совсем небольшая – около 24 см, а рост – 1,38–1,47 м. Очень маленькие размеры имел древнейший – 66,7 тыс. лет назад – филиппинец из Каллао, чья крохотная плюсневая кость меньше, чем даже у женщин современных филиппинских же негрито. Следующий пигмеоид – индивид из пещеры Ниа на Калимантане с древностью 37–42 тыс. лет назад, живший в окружении саванн и травянистых степей с отдельными участками тропических дождевых лесов. Он был уже несомненным сапиенсом (Barker et al., 2001) и имел рост всего 1,37 м. Рост людей из Минатогавы, живших в Японии 16,6–18,3 тыс. лет назад, был очень низким: 1,55–1,58 м у мужчины Минатогава I, 1,45 м – Минатогава II, 1,49 м – Минатогава III, 1,46 м – Минатогава IV (The Minatogawa…, 1982). Пигмейский рост был типичен для древнейшего населения, погребенного в пещерах Уэлиунгс и Омедокел на острове Оррак Республики Палау с датировками 1410–2890 лет назад, притом что 940–1080 лет назад тут уже жили высокорослые люди (Berger et al., 2008). Больше пигмеев – хороших и разных! Слово “пигмей” у разных людей вызывает разные ассоциации. Кто-то припомнит Геродота и журавлей, кому-то слово покажется обидным, а антрополог имеет на сей счет собственное мнение. В самых дремучих и жарких лесах нашей планеты там и сям живут люди очень низкого роста. Они есть в Австралии и Венесуэле, на Новой Гвинее и Филиппинах, Малакке и Андаманских островах и, конечно же, в Африке. Африканские пигмеи – своего рода эталон пигмейскости: средний рост мужчин мбути в Заире – 1,44 м. Именно за сверхмалый рост их и назвали пигмеями (кстати, это редкий случай, когда отечественная политкорректность превзошла западные аналоги: именно из-за отрицательной составляющей слова “пигмей” наши антропологи с середины XX века предпочитают термин “центральноафриканская раса”). Группы пигмеев расселены довольно широко – по всей лесной экваториальной зоне Африки, хотя численность их мала. Одна из загадок пигмеев – их происхождение. Про него писали немало, в том числе немало необоснованных выдумок (например, что пигмеи – необычайно древняя раса, от которой происходят все прочие). Главная проблема – труднодоступность мест, где живут эти невысокие люди, и как следствие – их плохая изученность. Экваториальный климат не оставил надежд на многочисленные палеоантропологические материалы, их действительно фактически нет. Остается надежда на генетику. А данные генетики, как часто бывает, интерпретируются весьма неоднозначно. Одни исследователи полагают, что пигмеи обособились десятки тысяч лет назад (вплоть до 90 тыс. лет назад – времен, когда и нынешних сапиенсов-то еще не было), другие – что их появление восходит лишь к неолитической эпохе, едва ли уже не после начала нашей эры (обзор мнений: Дробышевский, 2014б). Тонкость интриги состоит в разнообразии африканских пигмеев. Многочисленные мелкие племена в целом группируются в две общности – восточную (мбути и батва) и западную (бакола, бабинга, бака и ака). Взаимоотношения восточных и западных пигмеев доселе оставались тайной, хотя гипотез на эту тему хватало. Очередную попытку осветить загадку происхождения и родства западных и восточных пигмеев сделал международный коллектив исследователей, опубликовавший результаты в Proceedings of the National Academy of Sciences (Perry et al., 2014). Генетики выделили группу нуклеотидных замен, которые коррелируют с низким ростом у батва Уганды. Низкий рост обеспечивается совокупным действием многих генов, конкретный механизм работы коих пока неясен, но группу генов вычислить это не мешает. Для проверки параллельно были изучены представители бакига – земледельческого народа, живущего рядом с батва. Кроме прочего, обнаружилось, что степень метисированности батва и бакига прямо отражается на их росте – явление в общем-то предсказуемое, но всегда ведь приятно, когда здравый смысл сходится с теорией, а теория – с практикой. Но самое интересное обнаружилось, когда те же гены были проверены у пигмеев бака Камеруна и Габона, а также их земледельческих соседей нзеби и нзиме. У земледельцев “пигмейских” вариантов генов никто и не ожидал увидеть, но удивительно, что их не нашлось и у бака. Это говорит о том, что низкий рост восточных (батва) и западных (бака) пигмеев наследуется разными способами, а стало быть – возник независимо и параллельно. Таким образом, Африка дала как минимум два очага пигмейскости. Это лишний раз показывает, что происхождение азиатских и океанийских малорослых племен, скорее всего, было также многократным и конвергентным. Исследователи осторожно не стали называть время возникновения низкого роста исследованных групп, помянув несколько существующих гипотез, в том числе ту, согласно которой пигмеи появились очень поздно, уже после изобретения производящего хозяйства. Авторы отмечают, что среди животных известны случаи очень быстрого изменения размеров тела при соответствующем отборе, так что версия постнеолитического происхождения пигмеев не так уж фантастична. Велика Африка, и пигмеев в ней не счесть. Пока независимость происхождения протестирована только для двух групп, а сколько еще раз это могло случиться!Популяция питекантропов на Флоресе оказалась победительницей в этом конкурсе измельчания.
Самый полный скелет “хоббита” Лианг-Буа 1 с ростом 1,06 м еще не самый низкий: найдены останки как более высокорослых – 1,51–1,62 м (Barham, 2004), так и более низкорослых – от 1,01 даже до 0,97 м – индивидов (Jacob et al., 2006; наш пересчет по данным Morwood et al., 2005). Существенно, что самый высокий индивид одновременно и один из самых древних (Brown et al., 2004) и, таким образом, может либо не иметь прямого отношения к более поздним пигмеоидам, либо быть их далеким предком. Кроме того, его рост реконструирован по лучевой кости с учетом современных пропорций, а если он имел те же пропорции, что Лианг-Буа 1, то тоже был пигмеем. Вообще, сравнение останков приводит к мысли, что Лианг-Буа 1, вероятно, был довольно рослым по “хоббичьим” меркам…
Чрезвычайно показательно, что по соседству с пещерой Лианг-Буа в деревне Рампасаса в настоящее время живут люди крайне низкого роста (Jacob et al., 2006). Учитывая датировки из Лианг-Буа, люди рампасаса, очевидно, не являются прямыми потомками Homo floresiensis (впрочем, узнав об открытиях в пещере, они моментально сочинили легенду именно об этом), но важно, что природные факторы, приведшие к появлению современных пигмеев, действовали и в далеком прошлом.
Но “хоббиты” принципиально отличаются от рампасаса и прочих пигмеев мира – древних и современных. Сколь бы ни были мелки нынешние пигмеоиды, они имеют мозг в среднем не меньше килограмма. Мировой минимальный рекорд среди современных людей принадлежит женщинам-андаманкам, средняя величина мозга которых 1130 см³, но даже у них наименьший индивидуальный размер – 950 см³, то есть такой же, как и у европейцев. У “хоббита” же объем более чем вдвое скромнее! То есть уменьшение размера тела сопровождалось ускоренным уменьшением мозга. Неравномерное изменение разных размеров называется аллометрией. Исследования карликовых островных видов млекопитающих – мадагаскарских бегемотов, оленей Джерси, слонов Мальты и Сицилии – сравнительно с их полноразмерными собратьями показывают, что линейное уменьшение размеров тела сопровождается гораздо более быстрым уменьшением размеров мозга (например: Weston et Lister, 2009). И “хоббиты” здорово вписываются в эту общую тенденцию. Таким образом, измельчание Homo erectus'ов должно было дать не просто маленьких Homo erectus'ов с маленьким мозгом, а маленьких Homo erectus'ов с очень маленьким мозгом. Что мы и имеем!
Удивительно, но двукратное уменьшение мозга, похоже, не слишком катастрофично сказалось на способностях “хоббитов”. Они по-прежнему изготавливали каменные орудия примерно тех же незамысловатых форм, что и у предков; как и раньше, охотились на стегодонов. Конечно, одолеть толстоногое хоботастое и клыкастое чудище малышам “хоббитам” было нелегко, поэтому треть костей слонов в Лианг-Буа принадлежат новорожденным, а все остальные – молодым и лишь несколько обломков – взрослым особям. Некоторые кости стегодонов надрезаны и найдены рядом с орудиями. Впрочем, чопперы использовались в основном для обработки древесины и волокнистых растений, вероятно для выделки древков копий из дерева или бамбука. В общем, культура принципиально не отличалась от таковой питекантропов. Этим “хоббиты” рушат столь стройную доселе концепцию “мозгового рубикона”. Как уже писалось выше, сохранение важнейших функций было возможно, видимо, за счет уменьшения “не самых актуальных” частей исходно более-менее крупного мозга. А вот каких способностей не было, те и не появились. Например, нет никаких свидетельств похоронной практики питекантропов – и в Лианг-Буа все кости “хоббитов” найдены без малейших следов погребения, в отличие, кстати, от скелетов сапиенсов в поздних слоях.
Минутка фантазии. В пещере Лианг-Тоге на Западном Флоресе найден удивительный скелет. Его датировка – всего 3550 лет назад (Jacob, 1967). Крайне низкий рост – 1,48 м – и очень грацильное сложение сочетаются с маленьким объемом черепа – 1204 см³. Может быть, это метис сапиенсов с “хоббитами”? Неужели такое было возможно?! Однако все видоспецифические признаки Лианг-Тоге совершенно сапиентны. Учитывая, что скелет женский, и рост, и размер мозга не кажутся слишком мелкими. В пещере Лианг-Момер-E на Флоресе обнаружен скелет мужчины, в целом похожий на Лианг-Тоге, но вполне обычных размеров. Так легко забыть, что люди разнообразны…Как уже говорилось выше, у “хоббитов” изменились и другие параметры: пропорции конечностей оказываются чуть ли не австралопитековыми, кости запястья вообще специфичны, на плечевой и бедренной костях почти нет следов прикрепления мышц. Такие особенности вызвали к жизни новые гипотезы происхождения “хоббитов”.
Некоторые ученые доказывают большую близость Homo floresiensis к Homo habilis, нежели к Homo erectus, и обосновывают происхождение этого эндемического вида либо прямо от “человека умелого”, либо от близкого, но еще неизвестного вида Homo (например: Morwood et Van Oosterzee, 2007). В доказательство приводятся измерения черепа, своеобразие пропорций тела LB1 и особенности морфологии бедренной кости. Наконец, логическим завершением удревнения корней вида Homo floresiensis является возведение его к австралопитекам, возможно даже карликовым; эта точка зрения находит наиболее весомое подтверждение в исследовании костей запястья (Tocheri et al., 2007; Orr et al., 2013), а также нижней челюсти с зубами (Brown et Maeda, 2009). Главная и труднопреодолимая проблема этой версии – тот факт, что вне Африки австралопитеки до сих пор не найдены, а расстояние между ней и Флоресом немалое.
Наконец, некоторые исследователи интерпретируют эту загадочную находку принципиально иначе. Они считают, что скелет Лианг-Буа 1 принадлежал микроцефалу, причем ему уже поставлены самые разные диагнозы: синдром Ларона (Hershkovitz et al., 2007), эндемический кретинизм (Obendorf et al., 2008), микрогирия (Holloway et al., 2006), синдром Дауна (Henneberg et al., 2014) и другие. Вообще же к микроцефалии может приводить около двухсот причин. Как главные признаки патологического состояния Лианг-Буа 1 обычно называются резкая асимметрия черепа, лица и скелета, отсутствие лобных и клиновидной пазух, увеличенная гипофизарная ямка, крайне малый угол торзиона – скрученности – плечевой кости, почти полное отсутствие следов мышечного рельефа на ней и бедренной, а также плоскостопие. Что же, никаких хоббитов на планете не было и толкинисты могут использовать слово в прежнем незамутненном смысле?
Но по всем пунктам можно привести мощные возражения. Так, лобные пазухи, видимо, все же имелись, гипофизарная ямка была обычных размеров, отсутствие свода стопы тоже крайне спорно. Вместе с тем патологические гипотезы не объясняют форму мозга и исключительные пропорции конечностей. Усиленная асимметрия черепа, на которую так налегают авторы “патологических” версий, отмечалась почти в каждой статье, посвященной “хоббиту”. Однако череп пролежал в земле десятки тысяч лет, и было бы довольно странно, если бы он не был перекошен. Кроме того, любой череп обладает асимметрией, иногда довольно существенной и без всяких экзотических патологий. Нельзя также забывать, что у хоббита прижизненно выпал второй правый нижний премоляр, был перелом правой скуловой дуги и как минимум три травмы свода черепа. Такие повреждения запросто могут привести к значительной асимметрии лица и свода за счет того, что человек наверняка жевал скорее левой стороной челюстей.
Самое же главное – находки не ограничиваются одним скелетом. Есть кости других индивидов, и они имеют те же особенности: нижняя челюсть LB6/1 со скошенным передом без всяких следов подбородочного выступа; лучевые кости LB3 и LB6/2 и большая берцовая LB8 еще короче, чем LB1; головчатая кость LB20 оказывается промежуточной между вариантом шимпанзе и современного человека, да при этом еще меньше, чем LB1; очень мелкие крючковидные кости LB21 и LB22 с необычайно длинным крючком, круглым в сечении (в отличие от уплощенного у австралопитеков, неандертальцев и сапиенсов) и закругляющимся на конце без, собственно, крючковидного изгиба.
Крайне сомнительно, что десятки тысяч лет пещеру населяла популяция микроцефалов с множественными отклонениями в самых разных частях скелета. И при этом они изготавливали орудия, охотились на слонов и прочих животных, избегали комодских варанов и полностью обеспечивали себя всем необходимым… Этот вариант выглядит несравненно сказочнее, чем версия с островной карликовостью.
Уголок занудства. При ближайшем рассмотрении у “хоббита” обнаруживается много черт, типичных именно для яванских питекантропов: расширенная в нижней части черепная коробка, заглазничное сужение и схождение височных линий, надбровный, сагиттальный лобный и затылочный валики, надваликовая борозда лобной кости, сильная преломленность затылка, отсутствие шиловидного отростка, глубокая борозда между сосцевидным отростком и каменистым гребнем барабанной пластинки, перпендикулярная относительно продольной оси черепа ориентация барабанной пластинки и нижнечелюстной ямки, общая форма нижней челюсти, ее массивность и очень большие относительно черепа размеры, скошенность подбородка, удвоенность подбородочных отверстий, расширенность, вертикальность и сужение кверху восходящей ветви, венечный отросток нижней челюсти выше суставного, моляризованность нижних премоляров с широкими и сжатыми раздвоенными корнями. Ключицы очень короткие даже для человека метрового роста, из-за чего суставные впадины лопаток были направлены почти вперед, а не вбок, что, в свою очередь, приводило и к малому торзиону плечевой кости. Кстати, аналогичная конфигурация сустава известна у восточноафриканского Homo ergaster KNM-WT 15000. Кости конечностей, несмотря на малые размеры, очень массивны. Ладьевидная, трапециевидная, головчатая и крючковидная кости похожи скорее на таковые человекообразных обезьян и Australopithecus afarensis, но заметно отличаются от подавляющего большинства древних и современных представителей рода Homo. Крылья подвздошных костей относительно короткие, широкие и сильно развернуты вбок. Подобно австралопитекам, очень сильно выступает вперед передняя верхняя подвздошная ость. Как у архантропов, передняя сторона больших берцовых костей плавно закруглена. Стопы маленькие абсолютно, но огромные относительно длины ноги и тела. Торзион головки таранной аналогичен таковому у человекообразных обезьян; похожа на кость африканских человекообразных обезьян и австралопитеков ладьевидная кость стопы. Большой палец стопы массивный и очень короткий относительно других пальцев, при этом полностью приведен, а не отставлен, тогда как проксимальные фаланги других пальцев стопы относительно длинны, массивны и несколько изогнуты.Последний яркий штрих к образу “хоббитов” и их жизни – флоресские аисты-марабу Leptoptilos robustus. Их головы с огромными клювами возвышались на 1,8 м над землей, то есть вдвое выше “хоббитов”, – такая птица не показалась бы маленькой и современному человеку, что уж говорить о пигмеях! Толстые кости указывают на ограниченные способности флоресских марабу к полету. Как часто бывает, островная фауна задает животным новые роли. Современные марабу в Африке – преимущественно падальщики. Но на Флоресе была открыта вакансия крупных хищников на треть ставки: тут имелись комодские вараны и те же “хоббиты” (да-да, маленькие, да удаленькие – единственные хищники острова, способные победить даже слона, хотя бы и уменьшенного), но почему бы благородным аистам не составить компанию варанам и человечкам? А то и закусить этими человечками, благо размер позволяет, ведь одними крысами, хоть бы и гигантскими, сыт не будешь… Древние греки любили миф о гераномахии – битве пигмеев с журавлями, но эти сказки блекнут на фоне пеларгосомахии – реальных эпических сражений “хоббитов” с чудовищными аистами.
Сказка закончилась 50 тыс. лет назад. В более поздних отложениях нет ни слонов, ни марабу, ни “хоббитов”; остальные животные – крысы и вараны – сократились в численности почти до нуля, а затем снова стали многочисленными (Westaway, 2006; Sutikna et al., 2016). Такому печальному финалу есть две причины: во-первых, поверх сказки лежит толстенный слой вулканического пепла, недвусмысленно свидетельствующий о грандиозном извержении, которое, вероятно, подкосило экосистему острова и довело “хоббитов” и слонов до вымирания. Почти метр последующих отложений – до 11 тыс. лет назад – стерилен. А выше начинается совсем другая история: с погребениями современных людей и интродуцированными животными типа макак, оленей, кабанов и дикобразов. И не исключено, что это и есть вторая причина конца Хоббитшира.
Возможно, не таким уж мифом является предание, записанное у современных жителей Флореса. Племя 'уа (группа народа наге) при заселении на место своего нынешнего обитания якобы обнаружило тут маленьких людей эбу гого (известны и другие местные названия), покрытых шерстью и говорящих на “птичьем” языке (Forth, 2012, pp. 206–213). Первые встречи были нейтральными, но в дальнейшем эбу гого обнаглели, стали воровать еду и детей, 'уа расстроились, начались столкновения. Последних эбу гого загнали в пещеру и сожгли большим костром. Обращает на себя внимание, что эбу гого в мифах не имеют никаких сверхъестественных особенностей и описываются как реальные существа, к тому же всегда одинаково уточняется время их исчезновения – за семь поколений до середины XX века, незадолго до появления европейцев на острове, то есть примерно в XVI или даже XVIII веке.
По мнению некоторых этнографов и антропологов, миф об эбу гого вполне может отражать реальность соприкосновения современных людей с реликтовой популяцией Homo floresiensis, а самые позитивно настроенные считают, что “хоббиты” дожили в джунглях и до XX века.
Казалось бы, вот легенда, вот кости – все сходится! Проблема, однако, в том, что совершенно аналогичный миф был записан на востоке Шри-Ланки у веддов, которые уничтожили мохнатых человечков ниттаево, также загнав в пещеру и разведя огромный костер (Jayatunga, 2010). Похожие легенды известны на Тайване и Сулавеси, хотя там не упоминается огонь (Forth, 2012, p. 208). Почти буквальное сходство легенд на столь удаленных островах запросто может быть следствием распространения единой фольклорной традиции. Вряд ли миф возник на Флоресе, а потом попал к веддам, учитывая усиленную изоляцию тех и других и их жизнь в центральных областях островов; на побережье еще можно было бы ожидать взаимовлияний шриланкийцев и индонезийцев, но в горах… Кстати, у полинезийцев и микронезийцев тоже весьма распространены легенды о предшествовавшем нынешнему чернокожем низкорослом населении – маруиви, моуриури, – уничтоженном предками современных островитян. На Палау даже есть некие странные кости, предположительно принадлежавшие этим карликам (Berger et al., 2008), но это – отдельная история…
Некоторые оптимисты склонны полагать, что аналогичные флоресскому мифы на Шри-Ланке, Тайване и Сулавеси свидетельствуют о существовании и там аналогичных видов карликовых гоминид. Хотя это не слишком невероятно, но, к сожалению, пока нет никаких фактических доказательств их реальности.
Другое дело, уже существовавший у предков 'уа миф, не имевший первоначально фактической основы, мог встретиться с реальностью при заселении на Флорес. Люди могли принять существующую сказку как руководство к действию: “Ага, вот они – мохнатые карлики, о которых говорили мудрые предки! Так нам уже известно, что надо с ними делать: загнать в пещеру и спалить”.
Впрочем, миф об эбу гого мог возникнуть и менее экзотическим образом. На островах Индонезии (в том числе на самом Флоресе) и Меланезии, а также Филиппинах, Андаманах, в Австралии и Малакке живут племена низкорослых охотников-собирателей, иногда объединяемых названием “негрито”. Контакты первых земледельцев с ними могли послужить основой для мифов о лесных карликах, а в последующем уже в мифологическом варианте перейти и к самим охотникам-собирателям.
Как бы то ни было, еще одно человечество прекратило свое существование. Сначала местный Ородруин привел к апокалипсису островного масштаба, потом орды гигантских и шибко умных пришельцев с запада оказались чересчур сильными конкурентами. “Хоббитам” некуда было бежать, для них не нашлось Валинора, мир стал еще немного скучнее, и лишь преданья старины глубокой ведают нам о них…
“Хоббиты” Сулавеси? Не так уж и давно мир узнал о флоресских “хоббитах”, о том, что 1 млн лет назад какие-то питекантропы умудрились преодолеть морские проливы и “линию Уоллеса”, обрели свой Хоббитон и превратились в удивительных маленьких человечков. И сразу после описания Homo floresiensis воодушевленные первооткрыватели писали о том, что стоит поискать подобных эндемичных гоминид на соседних островах, а в качестве первой цели упоминали Сулавеси. И вот оно – замечательнейшее подтверждение истины “кто ищет – тот всегда найдет!”. На Сулавеси таки откопаны орудия труда с датировкой 118–194 тыс. лет назад! Неведомые гоминиды кололи свои неказистые отщепы в то же время, когда остров населяли такие удивительные животные, как гигантские черепахи, карликовые слоны-стегодоны и огромные свиньи-целебохерусы с исполинскими бивнями (Bergh et al., 2016b). Кем были эти неведомые первопроходцы Восточной Индонезии? В столь отдаленные времена крайне сомнительно, чтобы это могли быть сапиенсы, ведь тогда сапиенсов в современном виде вообще нигде не было. Хотя китайские антропологи и пытаются всеми силами доказать, что “люди разумные” уже бродили по Поднебесной больше сотни тысяч лет назад, доказательств этому маловато. Даже в Африке – признанной колыбели нашего вида – нет достоверных останков сапиенсов с достоверной датировкой более 100 тыс. лет назад. В Европе в это время начинали подмерзать неандертальцы. В Азии же творилось что-то непонятное: где-то шастали крупнозубые денисовцы, где-то, возможно, и другие гоминиды. По соседству с Сулавеси могли обретаться и реликтовые эректусы, если считать таковыми людей из яванского Нгандонга. Причем на самом деле никто не знает – может, нгандонгцы и были “денисовцами”? Проводить между ними однозначное разделение – рискованное допущение. А неподалеку жили те самые флоресские “хоббиты”. Коли уж их предки разок добрались до Флореса, отчего бы им не очутиться и на Сулавеси? Дело за малым – найти кости сулавесских людей. И кто знает, кем они окажутся: “хоббитами”, “эльфами”, “гномами” или “орками”?Глава 35. Китайские “хоббиты” или чудеса реконструкции?
Вуже далеком 1979 году в Гуанси-Чжуанском автономном округе далекого Южного Китая геолог Ли Чанкин нашел в пещере Лунлин человеческие останки – череп с нижней челюстью, зубы, атлант, ребра и кусок локтевой кости. Через пару лет фрагменты были кратко описаны китайскими антропологами как принадлежащие современному Homo sapiens, похожему на человека из Дуньдяньяня (Zhang et Li, 1982). Прошло еще десятилетие, и в 1989 году на юго-востоке Юньнани в пещере Малудун были раскопаны другие останки – мозговая коробка, три черепных фрагмента, две нижние челюсти, два зуба, проксимальный обломок бедренной и дистальный фрагмент большой берцовой кости. Через год они были упомянуты в литературе как принадлежавшие современному Homo sapiens, похожему на человека из Цзыяна (Zhang et al., 1990). Время в Поднебесной текло не спеша… Миновало еще одно десятилетие, и в 2008 году новое поколение исследователей выкопало в Малудуне новые останки, а череп из Лунлина наконец-то был вынут из породы, почищен и склеен. Это все, понятное дело, присказка…
И вдруг случилась сенсация!
В 2012 году в электронном журнале PLoS ONE международная группа исследователей опубликовала статью, подробно описывающую упомянутые находки и обстоятельства их залегания (Curnoe et al., 2012). Хитрыми абсолютными методами кости были датированы временем 11,5–14,3 тыс. лет назад, причем находки в обеих пещерах условно синхронны. Время, как понимает просвещенный Читатель, довольно позднее, уж недалече были голоцен, домашние овечки, пшеничные караваи и прочие элементы цивилизации. Однако ж удивительный многомерный метод главных компонент показал, что люди из Малудуна и Лунлина выходят за рамки изменчивости нормальных людей и по ряду параметров вылетают за границы вариаций верхнепалеолитических сапиенсов. Пафосным выводом прозвучало утверждение о сохранении в конце плейстоцена в Южном Китае редкостных архаичных популяций, близких к примитивным североафриканским людям из Дар-эс-Солтана и Темары. Тут уж недалеко до идей о метисах с вечно-загадочными денисовцами – ими теперь можно и модно что угодно объяснять!
Но у меня лично возникают некоторые недобрые вопросы…
Во-первых, почему лицевой скелет Лунлин склеен так откровенно криво? На фотографии видно, что левая скуловая кость присоединена с некоторым зазором от остальных и, очевидно, ориентирована не совсем так, как должно быть в оригинале. Понятно, что древние черепа частенько бывают сильно перекошены, но почему же тогда реконструкция правой скуловой кости намного усиливает “специфику”, делая лицо заметно асимметричным, а скуловую и среднелицевую ширину – очень большими? В то же время верхняя челюсть справа (там, где соседние части не сохранились), очевидно, поднята вверх по сравнению с левой стороной. Это видно по расположению зубов и соотнесению подносовой ости с носовыми костями. Как итог – все высотные размеры лица оказались приуменьшены.
Во-вторых, метод главных компонент изначально не предназначен для сравнения резко различных групп, а уж тем более разных видов. Такова странная традиция зарубежных антропологов, но доколе?!
В-третьих, где в многомерных анализах современные люди? Сравнения отдельных признаков проведены, однако ж по ним люди из Малудуна и Лунлина не такие уж и особенные. А на многомерных графиках современных людей нет. Не потому ли, что при их наличии китайские “хоббиты” оказались бы не столь уж экзотичны?
И как организованы сравнительные материалы? Я, конечно, понимаю, что политкорректные западные ученые склонны игнорировать факты расоведения, но не настолько же! В группу “восточных азиатов” попали айны, андаманцы, атайялы (аборигены Тайваня), буряты, жители острова Гуам (в Микронезии), хайнаньцы (почти китайцы или даже китайцы), японцы (отдельно помянуты северные и южные, хотя на фоне прочих они просто близнецы) и филиппинцы (зная сводку Хауэллса, это – аэта меланезийской расы, а не монголоидные народы Филиппин, то есть отличаются от монголоидов примерно так же, как от жителей Европы). Комментарии излишни! А в таблицах эта группа “восточных азиатов” сопоставляется с эскимосами. То есть имеется в виду, что буряты гораздо ближе к андаманцам и аэта, чем к эскимосам…
Прочие претензии на фоне предыдущих мелки и незначительны. К примеру, откуда на реконструкции нижней челюсти из Лунлина взялась столь невероятная восходящая ветвь с удивительно мощным углом? Как проводилось сравнение с Омо I, если этот череп склеен из мелких кусков, и судя по фантастической высоте – ошибочно? Почему в одной группе сапиенсов оказались Херто и Омо с датировками 160–200 тыс. лет назад, Схул и Кафзех, жившие 100 тыс. лет назад (впрочем, сюда же до кучи примешаны и некоторые верхнепалеолитические кафзехцы), ранневерхнепалеолитические европейские кроманьонцы – 40–20 тыс. лет назад, а также смесь верхнепалеолитических, мезолитических и даже неолитических людей из Восточной Азии? Датировки совсем не имеют значения?
Столь ли примитивны и архаичны новоявленные “хоббиты”? Большая часть размерных характеристик обоих черепов попадает в область средних значений по современному человеку, например наибольшая ширина черепа и объем мозга из Малудуна. Лобная кость из Лунлина весьма выпукла, что видно и невооруженным взглядом, и столь же очевидно следует из размеров. Наименьшая ширина лба на обоих черепах просто средняя, хотя наибольшая ширина лба у Малудуна велика, – но это особенность всех древних черепов. Теменные кости Малудуна заметно выпуклы. Надбровные дуги на обоих черепах вполне умеренные даже по современным меркам, не говоря уж о древних людях. Кости свода малость толстоваты, но вовсе не чересчур, толщина близка к средним значениям по современным людям. Размеры лица Лунлина вполне средние, кроме скуловой и среднелицевой ширины, которые, как уже сказано, резко преувеличены в ходе реконструкции, а также за исключением высоты лица – очень маленькой (хотя это не рекорд), но, как уже говорилось, высота-то была приуменьшена. Конечно, сочетание получилось довольно экзотическим, хотя высотно-широтный индекс опять же вышел не рекордно низкий. Глазницы имеют среднюю высоту и большую ширину – опять же из-за реконструкции положения левой скуловой кости, но даже при этом орбитный указатель просто низкий, но никак не очень низкий. Для верхнепалеолитического (да и современного) человека такие параметры вполне нормальны. Ширина носа почти запредельная, но она-то как раз реконструирована целиком, поскольку края грушевидного отверстия вообще не сохранились. Высота носа очень маленькая, и как следствие – носовой указатель оказался-таки мегарекордным, но стоит поставить на место верхнюю челюсть – и то ли будет?
В качестве специфики приводятся крупные размеры нижнечелюстной ямки височной кости Лунлина, но эту область крайне сложно измерить адекватно, что, кстати, видно из сравнительных данных, приводимых в таблице. Кроме того, эта ямка вообще весьма изменчива и подвержена мощным прижизненным изменениям под влиянием питания и болезней.
Анализ эндокрана Малудуна показал, что он отлично укладывается в рамки изменчивости людей верхнего палеолита, а его основные параметры близки к таковым людей из Верхней пещеры Чжоукоудяня.
Нижние челюсти заметно порушены, а после с чувством реконструированы. Однако ж они тоже укладываются в современный размах вариабельности.
В общем, ученый мир посмотрел на китайских “хоббитов” столь же косо, какими были их черепа, так что требовалось подтверждение. Таковым явился обломок бедренной кости из пещеры Малудун. Фрагмент невеликий, но ведь верхняя часть бедренной кости очень богата на важные признаки.
А что будет, если долго глядеть на кости бабуинов, австралопитеков и хабилисов, а потом взять и посмотреть на некрупную, хорошо обломанную и опять же неведомо как склеенную человеческую кость? Ясно – увидишь признаки австралопитеков и хабилисов! А если поиграться цифирками, то тут недалеко до наибольшего сближения кости из китайского Малудуна с датировкой 14 тыс. лет с костями KNM-ER 1472 и 1481A из кенийского Кооби-Фора с датировкой 2 млн лет (Curnoe et al., 2015). Однозначный график прилагается! А вывод какой? Конечно: на территории Китая почти до голоцена дожили невероятно архаичные гоминиды. Китай – уникален!
Но! Внутренний голос подсказывает, что что-то тут не так. Для начала: почему в расчетах не использовались данные по современным людям? Возможный ответ мы еще предположим. Далее – почему авторы гипотезы фактически проигнорировали, что все параметры кости вполне укладываются в размах изменчивости верхнепалеолитических сапиенсов, хотя бы и в нижние его пределы? Что теперь, любого мелкого мужичонку или стройную девушку приравнивать к хабилисам?
А ведь можно еще взглянуть на нагрузки по конкретным признакам, ответственным за попадание кости в “архаичную” половину графика. И что же мы там видим? Фактически с “ранними Homo” древнего китайца роднит лишь сравнительно небольшой процент компактного слоя в общей площади сечения середины диафиза да малый передне-задний диаметр на этом же уровне кости. А это вещи связанные, ибо процент получается малым лишь за счет небольшого развития “пилястра” – выступающего костного гребня на задней стороне кости, образующегося из-за резкого увеличения шероховатой линии, то есть места прикрепления медиальной группы мышц бедра, нужных для сведения ног вместе. А пилястр слабый конкретно на этой кости может быть по двум причинам: во-первых, это вообще не середина диафиза (кость-то сохранилась не целиком), а во-вторых, размеры кости невелики, так что и вес у человека был маленьким (сами авторы высчитали 50 кг – а это, товарищи, меньше, чем даже у меня!), так что и мышцам большим тут было быть необязательно. Может, потому-то и не стали авторы брать для сравнения современных людей? А ископаемые кроманьонцы – все сплошь здоровенные дядьки и столь же брутальные тетки. А может, стоило сравнить Малудун с теми же китайцами или даже негрито? Изменчивость-то никто не отменял!
Даже многомерный анализ надо применять с толком, он не дает строго однозначной картины, тем более для диагностики отдельных находок, тем более по одному-единственному графику. Смысл-то тоже не отменяется. Всегда надо много сравнений, хорошо бы и по разным признакам, и разными способами.
А еще мы – помним, помним… В Малудуне найдены еще и огрызок локтевой, и конец большой берцовой, и даже фрагменты второго черепа. Видимо, стоит ждать новой сенсации?..
Так жили ли “хоббиты” в Южном Китае? Конечно, с некоторых пор охота на хоббитов стала модным занятием, но стоит ли разводить их искусственно? Может, оставить их в покое?
Глава 36. Человечество на западе: неандертальцы.
Конечно, самым известным альтернативным человечеством являются неандертальцы. Подробнее о них будет сказано ниже, тут же отметим, что неандертальцы, с одной стороны, эволюционировали чуть ли не миллион лет отдельно от африканских родственников, с другой же – независимо развили множество сугубо человеческих особенностей и способностей.
Некоторые морфологические черты поздних неандертальцев даже обозначаются как гиперсапиентные. Это значит, что они дальше ушли по неким показателям от общих предков, чем мы. Самый яркий признак такого рода, конечно, размер головного мозга, о чем уже писалось выше. Многие другие черты лучше описывать как специализированные, так как они типичны только для неандертальцев. Это, например, весьма специфическое строение носовой полости и костного лабиринта внутреннего уха.
Судя по трабекулярной микроструктуре подъязычной кости неандертальца из Кебары, жившего в Израиле 60 тыс. лет назад, он использовал свою гортань так же, как мы, а стало быть – говорил (D'Anastasio et al., 2013). Крайне сомнительно, чтобы это могли так же свободно делать общие для неандертальцев и сапиенсов предки, вышедшие из Африки около 1 млн лет назад или даже раньше. Показательно, что Homo heidelbergensis из Сима-де-лос-Уэсос с датировкой 430 тыс. лет назад – предки неандертальцев, – судя по строению среднего уха и улитки внутреннего уха, слышали почти в том же диапазоне, что и современные люди, хотя и с явственным уклонением в сторону шимпанзе, которые сами по себе заметно отличаются от людей (Martínez et al., 2004). Что такое могли слушать гейдельбергенсисы, чтобы у них были такие уши? Думается, именно слова. Но их явно неполноценная человечность в этом отношении наглядно показывает: как минимум дальнейшая эволюция шла у неандертальцев и сапиенсов независимо. Когда кроманьонцы встретились с неандертальцами, воспринимали ли они речь последних как речь? Как она звучала, как была построена, можно ли ее вообще назвать речью с нашими мерками? Этого мы пока не знаем…
Сотни тысяч лет независимой эволюции предков неандертальцев и сапиенсов дали, как ни странно, очень похожие формы поведения. Неандертальцы хоронили умерших. Правда, в их погребениях всегда лежит только один скелет, его поза неизменно скорченная, а погребального инвентаря ни разу не нашли. Однако это не отменяет того факта, что погребения могут быть взаимно ориентированы (как в Ла-Ферраси, где могилы мужчины и женщины расположены вдоль одной линии, а погребения двух детей – параллельно рядом), то есть, когда хоронили следующего умершего, неандертальцы знали, где был ранее похоронен предыдущий. Также многие археологи не сомневаются в существовании неких погребальных ритуалов, что устанавливается по сооружениям поверх захоронений. Так, в гроте Тешик-Таш в Узбекистане могила ребенка была окружена кольцом рогов горных козлов; в Ла-Ферраси пятое погребение сопровождалось восемью симметрично расположенными холмиками, а шестое было накрыто треугольной каменной плитой; погребальная яма в Ле-Мустье также была увенчана тремя каменными плитками, размещенными симметрично; в Комб-Греналь аналогичную роль выполняли наложенные друг на друга наподобие черепицы каменные обломки.

Рис. 25. Украшения из Крапины (а) и Арси-сюр-Кюр (б, в).
Самыми трогательными свидетельствами человечности неандертальцев являются находки в Шанидаре (Solecki, 1971; Trinkaus, 1983). Эта пещера расположена на севере Ирака, на границе с Ираном, в Курдистане. Неандертальские слои датированы 45–55 тыс. лет назад. Вообще-то тут найдены останки десяти индивидов, но первый оказался наиболее выдающимся. Скелет принадлежал человеку в возрасте 30–45 лет – не сказать чтобы слишком старому по нынешним цивилизованным временам, но истинному Мафусаилу по неандертальским меркам. Этот долгожитель за свое долгое бытие умудрился огрести столько болезней и проблем, что приходится диву даваться, как он вообще жил.
Уголок занудства. Патологии Шанидара 1: на его костях обнаружены следы гиперостоза, шрам на правой стороне лба от небольшого поверхностного повреждения, сильное повреждение – вдавленный перелом – внешней стороны левой глазницы, возможно приведшее к слепоте на левый глаз, в наружном слуховом проходе разрастание костной ткани, первые нижние резцы выпали, а остальные зубы полностью стерты и несут следы воспаления на верхушках корней, разрастания на поясничных позвонках, остеомиелит – редукция – правой ключицы и ости правой лопатки, псевдоартроз суставной впадины правой лопатки, два перелома правой плечевой кости, которая к тому же была атрофирована из-за ампутации, врожденной недоразвитости или паралича правой стороны тела (соответственно, руки ниже локтя не было), сильный артрит левого локтя, правых колена и лодыжки, искривление диафиза левой большой берцовой, заживший перелом правой пятой плюсневой кости, дегенеративные изменения сустава первой и второй плюсневых, а также сустава правых первой пястной и медиальной клиновидной костей. Резко выраженная оссификация связок и дегенеративные изменения могут быть последствиями синдрома диффузно-идиопатического гиперостоза – заболевания из ряда оссифицирующих гиперостозов. Суммарно, у Шанидара 1 не было левого глаза, правой руки и не функционировала правая нога. Все эти проблемы могли быть последствием обвала в пещере с мощной травмой правой стороны с последующим инфекционным заражением, паралича правой стороны тела из-за повреждения левой стороны мозга или нервов в подростковом возрасте или же полученными независимо.Понятно, что такой человек не мог полноценно обслуживать себя, животное с подобными травмами в дикой природе однозначно умерло бы. Однако Шанидар 1 пережил почти всех сородичей (только Шанидар 5 превзошел его, он сумел дожить аж до 50–60 лет!). Характерно, что Шанидар 1 умер не своей смертью: видимо, он погиб при землетрясении и обвале в пещере, когда со свода ему на голову упал здоровенный булыжник, – в черепе зияет огромная дыра. Если бы не несчастный случай, этот патриарх прожил бы еще дольше. По этой же причине он не был похоронен по-настоящему, а оказался под завалом, хотя поверх этой естественной могилы скорбящие соплеменники вроде бы навалили еще камней и даже, возможно, намеренно положили кости животных. (Конечно, можно интерпретировать это и иначе: страшный, глухой, одноглазый, однорукий и хромоногий старикан-паралитик так всех достал, что внуки добавили к обвалу еще толику, чтобы, не дай бог, не вылез снова, но не будем такими ехидно-злословными; будем считать, что это был любимый всеми дедушка с добрым прищуром единственного глаза, обнимавший ненаглядных внучков единственной рукой и провожавший их на охоту, ковыляя к выходу из пещеры на единственной ноге: “Когда вернетесь-то? Ась? Не слышу я, стар стал…”).
Вторым примером из Шанидара является Шанидар 4. Этот мужчина, тоже весьма пожилой – 30–45 лет, был уже по-настоящему похоронен в неглубокой могиле, украшенной кругом из больших камней. Открытие ждало исследователей, когда они взяли пробу грунта на споро-пыльцевой анализ, чтобы установить, какие растения росли в окрестностях в те дремучие времена. Неожиданно обнаружилось, что концентрация пыльцы в могильном заполнении невероятно большая, какой не положено быть в глубине пещеры, ведь там цветы не растут, а ветер столько нанести не мог. К тому же пыльца в погребении лежала концентрированными кучками, соответствующими отдельным цветкам, тогда как в других отложениях была, как полагается, рассеяна случайным образом. Получается, что могила была прямо-таки завалена цветами! Перед глазами уже встает похоронная процессия, венки и проникновенные речи понуривших большие плоские головы родственников. Однако стоит разобраться, что имели в виду неандертальцы, бросая на тело цветы. Эстетика ли играла тут главную роль – большой вопрос.
Пыльца, сконцентрированная кучками, принадлежала семи видам цветов, цветущих в конце мая – начале июля (Шанидар 4 не успел порадоваться наступившему лету). Среди них шесть видов определены достаточно точно – солнечный василек, тысячелистник, крестовник, гадючий лук, алтей и эфедра. Самое же интересное, что все эти растения обладают выраженными целебными свойствами (Solecki, 1975; Leroi-Gurhan, 1975; Lietava, 1992). Показательно, что эти же цветочки растут тут и ныне и используются в качестве лекарственных курдами, живущими в окрестностях Шанидара в наши дни. Это, конечно, не говорит о происхождении курдов от неандертальцев, но биохимия-то у приматов одна и та же, а народная медицина неизбежно исходит из наличных средств. Выходит, бабушкины методы особо не поменялись за последние полсотни тысяч лет. Понятно, что лекарственные растения оказались в погребении неслучайно: судя по скелету, у Шанидара 4 болела спина, руки и ноги, а погибнуть он мог из-за перелома ребра, возможно пробитого копьем. Видимо, сострадательные сородичи пытались чем могли помогать ему как при жизни, так и после смерти.
Злые языки, правда, утверждают, что цветы затащили в норы персидские песчанки (Sommer, 1999), а может, пыльцу принесли пчелы, чье гнездо висело в пещере (Fiacconi et Hunt, 2015). Или же шанидарец, как любое раненое животное, инстинктивно наелся каких-то травок (дескать, пыльца сконцентрирована в области живота), заполз в уголок да там и помер, некоторые особо циничные даже упоминают копролиты в могильном заполнении, портящие всю эстетику рассказа о погребальных венках, но мы не будем равняться на них… Тем более что в реальности пробы брались вовсе не из района живота и даже вне скелета.
Конечно, доброта неандертальцев была относительной, иначе откуда бы взяться проникающему ранению на девятом ребре Шанидара 3, наверняка с повреждением легкого и с большой вероятностью приведшему к гибели через несколько дней или недель? Кто бы мог треснуть Шанидара 4 по левой стороне лба так, что это отпечаталось на черепе (кстати, травма на лбу слева – признак того, что ударявший был правшой), и сломать ему ребро незадолго до смерти (малую берцовую он мог сломать и сам случайно, причем эта травма зажила)? Чья рука приложила по левой же стороне лба и Шанидара 5, хоть удар и вышел скользящим? Учитывая время и место, все это не свалишь на злобных и безжалостных кроманьонцев, которым, если верить некоторым мизантропам, только и дай, что побить беззащитных неандертальцев. Вероятно также, неандертальцы тыркали друг друга копьями и мочалили дубинами по доброте душевной, с участливой добротой во взгляде, лучезарной улыбкой на лице и от чистого сердца, а на поминках заливались искренними слезами и с теплотой поминали усопшего… Впрочем, нет, это невероятно…
Почти то же самое, что о Шанидаре 1, можно сказать о более древнем человеке Бо-дель-Обезье 11, утерявшем при жизни большинство зубов и неспособном разжевать себе пищу, а также о неандертальце из Ла-Шапель-о-Сен. В этой французской пещере в слое с датой 47–56 тыс. лет назад был найден скелет “старика” 40–50 лет с массой патологий.
Уголок занудства. Патологии Ла-Шапель-о-Сен: разрастание костной ткани в наружном слуховом проходе; артроз височно-нижнечелюстного сустава; зубы нижней челюсти, кроме резцов, выпали при жизни, а их альвеолы заросли; позвоночник поражен сильным деформирующим артритом или болезнью Баструпа (возникает во взрослом состоянии при больших нагрузках на позвоночник); возможно, спондилез инфекционной природы грудных и поясничных позвонков; заживший перелом ребра; артрит плечевой и, возможно, бедренной костей; билатеральный артроз тазобедренных суставов – следствие возрастных изменений, а в левом тазобедренном суставе дегенеративные изменения, вероятно, связаны еще и с травмой; артроз левого крестцово-подвздошного сустава травматической природы; один из пальцев на ноге сломан-размозжен; наконец, еще в детстве этот человек перенес рахит.Как и Шанидар 1, Ла-Шапель-о-Сен явно был неспособен прокормить себя сам, последние годы он мыкал свою долю с грехом пополам – на пределе возможностей. Более того, после смерти его заботливо похоронили в аккуратной квадратной могилке в центре маленькой уютной пещерки.
Крепкий старик: Ла-Шапель-о-Сен и его судьба. И никто не узнает, где могилка моя… Неандертальцы известны давно, еще с XIX века. Тогда были золотые годы палеоантропологии: пещеры и гроты были не тронуты лопатами исследователей, своего часа ждали целые черепа, скелеты и прочие чудеса. Славно поработали тогда археологи! Неандерталь и Спи, Ла-Ферраси и Ле-Мустье! Музыкой звучат они для слуха антрополога! Все крупные и почти все мелкие пещеры были раскопаны уже к концу первого десятилетия XX века. Современным охотникам за ископаемыми остается либо углубляться в изучение деталей найденного ранее, либо надеяться на случай – обнаружение скрытой доселе пещеры, либо копать уже раскопанное. Последним способом воспользовались французские и примкнувшие к ним американские и испанские исследователи, подробнейше изучившие пещеру Ла-Шапель-о-Сен (Rendu et al., 2014). Дело в том, что искатели древностей – братья Амеди и Жан Буиссони, в 1908 году раскопавшие слои маленькой пещеры Буффиа-де-Бонневаль рядом с деревней Ла-Шапель-о-Сен (антропологами эти названия используются как синонимы), не были профессиональными археологами. Они даже не зарисовывали расположение находимых костей и артефактов. Судя по многочисленным разломам на драгоценных костях, не слишком они церемонились и с доставаемыми из земли находками. Обилие костей животных в отвале и перекопанных слоях показывает, что допотопные звери братьев тоже не особо интересовали. А наличие нетронутых участков слоя свидетельствует, что, найдя скелет, они не слишком занудствовали в попытках исследовать все отложения грота. И все же открытие в Ла-Шапель-о-Сен по праву считается одним из величайших во всей палеоантропологии. Именно этот скелет оказался лучшим образцом неандертальца, послужил идеалом для всех последующих исследований и сравнений. Конечно, не обошлось и без казусов. Множественные старческие патологии старика-неандертальца стали основой стереотипа о сгорбленных сутулых пещерных троглодитах с кривыми ногами и повисшими чуть ли не до земли руками. Несколько костей стопы быка, случайно попавших в заполнение погребальной ямы, в пересказах позднейших археологов выросли в целую ногу, торжественно положенную неандертальцами в качестве загробной пищи. Вообще, немало было сказано о погребальных обрядах неандертальцев. И вот тут-то у многих заронились сомнения. А действительно ли старик Ла-Шапель-о-Сен был погребен? А может, он, аки дикий зверь, заполз в маленькую пещерку, забился в ямку и тихо окончил там свою сумрачную неандертальскую жизнь? И никто не проронил по этому поводу ни слезинки, не произнес проникновенной речи над телом усопшего, “отряд не заметил потери бойца”? Хотя бы частично на эти вопросы современная наука может ответить. Конечно, речь не идет об анализе палеослез или надгробных речей (добавим: “пока”, ибо мы верим в торжество науки!), но сам факт преднамеренности погребения потенциально вполне установим. Основное препятствие тут – помянутая беззаботность, с которой был раскопан скелет. Итак, современные археологи решили исправить положение. С этой целью в 2011–2012 годах они провели новые изыскания как в самом гроте Буффиа-де-Бонневаль, так и в соседних, каковых в округе нашлось немало. Что характерно, в каждой пещерке нашлись мустьерские орудия и кости животных; очевидно, неандертальцы жили здесь долго и успели посидеть-поужинать под любым навесом. В Буффиа-де-Бонневале тоже обнаружилось немало нового. Самыми интересными находками, без сомнения, являются новые останки неандертальцев. Конечно, братья Буиссони не пропустили в своих изысканиях крупных костей, но несколько фаланг и зубов ускользнули из-под их заступов. Более того, среди вновь обретенных фрагментов нашлись останки еще трех индивидов – одного взрослого и двух детей (3 и 10–12 лет). Старик был не одинок! От самого патриарха тоже нашлось кое-что новенькое, в том числе недостающая часть правой лучевой кости и кусок лопатки. Переосмыслению подверглись и старые находки. Во-первых, подробно были проанализированы кости животных. Выяснилось, что в Буффиа-де-Бонневале покоятся слои как минимум двух фаз. В более древние времена неандертальцы предпочитали охотиться на северных оленей, а позже почему-то переключились на быков и бизонов. Олени кончились? Пришло другое племя со своими кулинарными вкусами? Шеф-повар уволился? Изменился климат? Это пока не очевидно. Во-вторых, дополнительное исследование квадратной ямы, в коей покоился скелет, показало, что это таки искусственная яма. А ведь многие археологи сомневались в ее рукотворном происхождении, утверждая, что неандертальцы не стали бы утруждаться выдалбливанием могилы в твердом полу грота. В-третьих, важнейшим стало сравнение сохранности звериных и человеческих костей. Первые практически всегда выветрены, на многих имеются отпечатки зубов хищников и падальщиков, очень немногие из них залегают в анатомическом сочленении, а о мало-мальски целых скелетах речь вообще не идет. Скелет же неандертальца обнаружен целым, в анатомическом положении, с минимальными поверхностными повреждениями (преобладают свежие разломы, появившиеся в процессе раскопок – неравной борьбы дряхлого неандертальца с полными сил братьями Буиссони) и без малейших следов погрызов. Логичным выводом является то, что скелет был быстро и тщательно закопан, благодаря чему и сохранился почти идеально. Так все же Ла-Шапель-о-Сен был не просто бессмысленным больным животным, умершим в полном одиночестве, забившись в нору. Крепкий старик, хоть и скрюченный артритом, но уважаемый своими сородичами, после смерти удостоился погребения в намеренно выдолбленной могиле, был тщательно скрыт от надругательства гиен и волков и лишь благодаря этому может ныне служить лучшим образцом своего славного вида. А работа французских археологов является образцом стремления к познанию тайн прошлого. Она лишний раз показывает, что даже по следам трудов классиков можно сделать еще немало новых открытий. Наука не стоит на месте, неандертальцы же, хоть и давно вымершие, с ее развитием становятся все человечнее и человечнее.Да, ничто человеческое не было чуждо неандертальцам. Могли похоронить и положить цветочки, а могли и съесть. Об этом недвусмысленно свидетельствуют находки, например, в Муля-Герси на юго-востоке Франции. 100–120 тыс. лет назад неандертальцы устроили тут пир горой (Defleur et al., 1993, 1999). От шести человек остались в буквальном смысле объедки: черепа и длинные кости были очищены от мяса и разбиты на куски каменными орудиями. По надрезкам видно, что срезалось именно мясо: язык с детской челюсти, руки от тела, бицепс с костей предплечья, мышцы бедра с бедренной кости, ахиллово сухожилие с голени. Особое внимание было уделено большому пальцу ноги – он, вероятно, пошел на десерт. Человеческие кости разбросаны в беспорядке по полу пещеры и перемешаны с костями оленей, которые точно так же надрезаны и разбиты.
Практически то же действо повторилось в пещере Куэва-де-Сидрон на севере Испании 47,3–50,6 тыс. лет назад. Надрезанные и разбитые для добывания мозга кости как минимум тринадцати человек рисуют ужасную картину каннибальского разгула. Особенно досталось детскому черепу, с которого, вероятно, сняли скальп. Царапины на нижнем крае одной из нижних челюстей свидетельствуют об отрезании головы. Короткие и глубокие надрезы на концах длинных костей рук и ног указывают на расчлененку покруче пресловутой “резни бензопилой в Техасе”. И снова кости людей раскиданы в слое вперемешку с костями животных…
Но хватит чернухи! Пора поговорить о прекрасном.
Предки – гейдельбергенсисы – имели зачатки искусства, а позднейшие неандертальцы развили его до некоторого уровня совершенства. Если в немецком Бильцингслебене (412 тыс. лет назад) при галечной культуре искусство ограничивается серией насечек на ребре слона (Marshack, 1981), то в голландском Маастрихт-Бельведере (200–250 тыс. лет назад) многочисленные кусочки охры со следами использования говорят о некой более основательной творческой деятельности (Roebroeks et al., 2012). Из немецкого местонахождения Олдислебен I (80–135 тыс. лет назад) с микокской культурой известен кусок кости с процарапанным человечком в стиле “палка-палка” и другой с параллельными насечками. В германском Бокштейншмейде (110 тыс. лет назад) слой с микокской культурой содержал кость стопы и хвостовой позвонок волка с просверленными отверстиями на концах (Marshack, 1989). В Ортю (около 60 тыс. лет назад) в слое типичного мустье обнаружены целая кисть-лапа и хвост леопарда, не имеющие вроде бы практического применения, зато красивые. На венгерской стоянке Тата (50 тыс. лет назад) в слое позднего мустье найдены гравировка на овальной пластинке от зуба мамонта, отполированной до зеркального блеска и покрытой охрой, с закругленными от длительного использования краями, а также слегка отшлифованный круглый нуммулит с вырезанным на нем крестообразным знаком (Marshack, 1976).
Конечно, не все открытия такого рода подтверждаются. Все надо перепроверять. Наглядным примером тому служит “неандертальская флейта” из Дивье-Бабе 1 в Словении. В ориньякском слое с датировкой 43–45,1 тыс. лет назад была обнаружена бедренная кость пещерного медведя с двумя круглыми дырками и следом третьей на сломе. Радости археологов не было предела! Кость была широко разрекламирована как самая настоящая неандертальская флейта (благодаря датировке, но вопреки ориньякскому сопровождению). Неандертальцы не были грубыми и бездушными, они не были чужды влиянию муз! В полухудожественном, полунаучно-популярном фильме “Последний неандерталец” самый распоследний неандерталец ходит от Гибралтара аж до Западной Сибири и обратно в поисках родичей, грустно дудя на этой самой словенской флейте, найденной, впрочем, на скелете вроде бы кроманьонца. Надо же ему было скрашивать одиночество (впрочем, в фильме появляется и еще один старик-неандерталец, тоже последний, но он явно не в своем уме, так что компанию ему не составишь)… Однако подробное исследование следов повреждений на краях отверстий порушило столь возвышенный образ. Оказалось, что некая гиена просто пару раз удачно клацнула зубами и оставила дырки на кости. Гиена не знала, что изготовила музыкальный инструмент, неандертальцы тоже были не в курсе, и лишь археологи XX века оценили сие творение по достоинству (Nowell et Chase, 1998; d'Errico et Villa, 1997). Можно добавить, что таких “флейт”, изготовленных трудолюбивыми гиенами, известно не так уж мало (Diedrich, 2015).
Особый ажиотаж вызвали открытия в гроте Рипаро-ди-Фумане на севере Италии (Peresani et al., 2011). В слое финального мустье с датировкой 42,2–44,8 тыс. лет назад исследователи откопали 660 костей 22 видов птиц, включая тетеревов, куропаток, диких голубей, альпийских галок, черных грифов и красноногих соколов. Чуть меньше половины костей – от крыльев, а двенадцать из них имеют следы соскабливания. Наиболее восторженно настроенные исследователи расценили это как доказательство того, что неандертальцы украшали себя перьями, ведь, дескать, с грифа или галки мяса немного, а перья у них красивые и блестящие. Против этого можно возразить, что, во-первых, с голодухи можно съесть и грифа, во-вторых, перья можно использовать и вполне функционально – как, например, метелки или подстилки, в-третьих, 12 костей из 660 – это меньше 2 % и, наконец, скрести крылья можно не для использования перьев, а чтобы избавиться от них, дабы не застревали в зубах.
Но птица – это не только ценные перья! Это еще два, три, а то и восемь красивых когтей. Во французской пещере Комб-Греналь в слое с датировкой 90 тыс. лет назад найдены семь костей птиц со следами обработки, в том числе один коготь беркута с двумя надрезами у самого основания (Morin et Laroulandie, 2012). Видимо, неандертальцы отрезали коготь от пальца. Во французской пещере Ле-Фьё в слое, образовавшемся 40–60 тыс. лет назад, обнаружены два когтя орлана-белохвоста с надрезами у самого основания когтей. Аналогичные когти найдены в Пеш-дель-Азе IV (хищная птица среднего размера, 100 тыс. лет назад), Пеш-дель-Азе I (беркут, 67 тыс. лет назад) и Фумане (орлан-белохвост, 44 тыс. лет назад). Наконец, в хорватской пещере Крапина обнаружены не просто когти орланов-белохвостов и даже не только с надрезками, но восемь штук от трех птиц, с отчетливыми следами затертостей на основаниях (Radovčić et al., 2015). Более того, они были найдены рядом, а повреждения по краям могли возникнуть, если когти стучались друг о друга. Получается, когти были привязаны на какую-то веревочку? Ожерелье из орлиных когтей на груди неандертальца? А ведь Крапина датирована временем 130 тыс. лет назад: это же получается самое первое украшение в мире! Даже древнейшие бусы сапиенсов из раковин моложе, поскольку имеют возраст около 100 тыс. лет.
Вообще, среди останков птиц на неандертальских стоянках Италии и Франции к хищникам относится 71,4 % находок; в Крапине кости орлов и сов составляют 41,4 % от всех птичьих костей. Выходит, неандертальцы предпочитали хищных птиц всем прочим, даже вкусным гусям-лебедям.
Зачем неандертальцам были нужны орлиные когти? Точно ли они носили их в виде ожерелья? Или вставляли в уши и носы? Ковырялись ими в зубах? И где остальные кости? А может, они глотали орлов целиком, а когти просто не переваривались? А как же клювы? Много возникает вопросов! Если бы я поймал орла, чтобы его съесть, я бы тоже когти отрезал, прежде чем глотать. Десяток орлов на сотни стоянок и десятки тысяч лет – насколько это показательно? Почему бы им и не быть просто едой? Интересно, сколько орлиных когтей найдено на стоянках индейцев? И каков контекст? Или нет никакого контекста? Заметим, от птиц в ископаемом виде вообще мало что остается по причине их воздушности. А когти и концевые фаланги – прочные. И логично, что орлиные сохранятся лучше, чем куропаточьи.
Кстати, а как там с когтями медведей? Пещерных медведей неандертальцы тоже любили, и когти медведей встречаются на их стоянках часто (я лично такой нашел в Денисовой пещере). Можно ли их считать украшениями? Или раз их много, то и сказать ничего нельзя? А орлов мало и потому это что-то особенное? Ясно одно – нужны новые изыскания.
Но сторонники развитого творческого начала у неандертальцев не сдаются; недавно у них появился еще один козырь. В пещере Горэма на Гибралтарской скале на юге Испании на стене обнаружилась царапулька в виде значка “#”, перекрытая ненарушенным мустьерским слоем с датировкой более 39 тыс. лет назад (Rodríguez-Vidal et al., 2014). К сожалению, антропологических находок в этом слое нет, а древнейшие сапиенсы появились в Европе несколько раньше, но все же версия о неандертальском происхождении гравировки выглядит наиболее правдоподобной.
Наконец, в пещере Арси-сюр-Кюр во Франции слой с культурой шательперрон и датировкой 33,8 тыс. лет назад порадовал археологов изобилием и разнообразием бус и подвесок разных типов из зубов и костяшек с отверстиями и бороздками (Marshack, 1989). В этом же слое найдена височная кость ребенка, имеющая выраженные неандертальские черты и явственно отличающаяся от современного варианта (Hublin et al., 1996).
Перечень произведений неандертальского искусства можно было бы еще продолжать, ведь есть черные линии на лопатке мамонта в Молодова I, крест на плитке известняка в Цонской пещере, подвески с отверстиями в Проломе и Заскальной VI…
Но стоит ли? Даже из приведенного списка видно, что неандертальцы были в некоторой степени одарены. Однако из него же со всей очевидностью следует, что неандертальцы очень, очень уступали кроманьонцам по всем пунктам. Ведь в то же самое время у сапиенсов были уже наскальные росписи, гравировки, статуэтки, настоящие флейты, богатые украшения, сложные погребения, посыпанные охрой и снабженные богатым инвентарем. Многие исследователи даже считают, что немногие и преимущественно поздние достижения неандертальцев на культурном поприще – сплошь заимствования у продвинутых кроманьонцев. Дескать, 10–15 тыс. лет сосуществования и конкуренции стимулировали европейских кроманьонцев к созданию шедевров верхнего палеолита, а вот неандертальцы оказались плохими учениками: все, на что их хватило, – это подвески из зубов. Впрочем, учитывая большие датировки для некоторых находок, скорее всего, неандертальцы и сами могли изобретать что-то подобное, но все же и близко не достигали уровня первых сапиенсов.
Минутка фантазии. Контакты кроманьонцев с неандертальцами не могли пройти даром. Последние неандертальцы исчезли примерно 28 тыс. лет назад, а первые сапиенсы появились в Европе не позже 35, а вероятно – 42 тыс. лет назад. На окраинах ареала: на Балканах, в Пиренеях, Южной Испании, возможно, в Крыму и на Кавказе – неандертальцы держались дольше. Детали взаимоотношений видов обсуждаются и большей частью остаются невыясненными, но контакты как минимум существовали. Воспоминания об общении с последними неандертальцами могли отразиться в европейском фольклоре. Как это ни покажется удивительным, легенды и мифы вполне могут жить тысячелетиями. Древнейшие фольклорные мотивы восходят, похоже, к моменту выхода сапиенсов из Африки, то есть возникли не менее 45 тыс. лет назад, а то и сильно раньше (Березкин, 2013)! Посему не должно казаться слишком удивительным, что неандертальцы, исчезнувшие еще на десяток-другой тысячелетий позже, могли оставить какие-то, хотя бы смутные, следы в сказках и легендах. Морфологические и этологические черты неандертальцев подозрительно напоминают некоторые характерные особенности североевропейских троллей. Трудно сказать, кто первый высказал эту мысль. К. Саган еще в 1977 году писал: “Иногда я думаю: не являются ли наши мифы о гномах, троллях, великанах и карликах генетической или культурной памятью о тех временах?” (Sagan, 1977), правда, он имел в виду довольно абстрактные древние времена “плиоцена и плейстоцена”. Более конкретно о неандертальцах как прообразе троллей заговорили недавно исследователи непосредственно неандертальцев (например: Arsuaga, 1999). Сходств действительно немало. Впрочем, как часто бывает со сказками и легендами, визуальное описание троллей крайне скудно (примеры: Киттельсен, 2009). Об их внешности известно фактически только то, что они то ли очень большие, то ли очень маленькие, а также что они уродливы и у них очень большой нос. Но и такой небогатый портрет мы можем примерить к неандертальцам. Неандертальцы сравнительно с кроманьонцами имели очень большую ширину плеч, грудной клетки, таза и чрезвычайное развитие мускулатуры. Отсюда их описание как великанов. Однако европейские неандертальцы были на голову ниже кроманьонцев – вот и упоминание карликов. Столь противоречивое восприятие размера напоминает ситуацию с орангутанами: при росте обычно ниже полутора метров эти обезьяны обладают невероятной шириной, поэтому люди склонны воспринимать их как присевших на корточки и скрючившихся. Кажется, орангутан вот-вот выпрямится во весь свой исполинский рост и окажется гигантом. Ан нет, он действительно мал. Вопрос в том, на что больше обращает внимание человек – высоту или ширину. Размеры носового отверстия неандертальцев превосходят значения любой современной расы, даже минимальные значения ширины попадают в рубрику “очень больших” значений по современному масштабу. Очевидно, внимательные и не слишком носатые кроманьонцы не могли пропустить столь яркую черту внешности. Поскольку же нос – центр лица, он затмил собой все остальные особенности, в преданиях осталось воспоминание только о нем. И конечно, кроманьонцам не могли показаться привлекательными лица коренных европейцев, уродливость троллей в сказках – дань первобытной ксенофобии. Несмотря на огромные размеры и массивность, тролли иногда способны очень быстро бегать. Неандертальцы, судя по строению тазовых костей и ног, были выдающимися спринтерами (Власенко, Дробышевский, 2010). Тогда как современные люди специализированы для выносливого бега в медленном и среднем темпе, а также длительного стояния, неандертальцам лучше удавались рывки и сидение на корточках, а неподвижное стояние было для них обременительным. Можно предположить, что такие качества неандертальцев появились как адаптация к охоте на быстрых животных при недостатке и несовершенстве метательных орудий. А ведь им явно неплохо удавалось охотиться даже на таких чутких животных, как горные козлы. Еще одна физиологическая особенность троллей – хорошее зрение: будучи ночными существами, они видят в темноте, а днем не показываются, тем более что от солнечного света они вообще каменеют. Неандертальцы обладали очень большими – рекордными для всех приматов! – затылочными долями мозга; у современных людей в них находятся высшие зрительные зоны. На этой основе даже была построена концепция неандертальцев – ночных хищников, имевших якобы вдобавок большие глаза – ведь глазницы у них действительно очень крупные – и отлично видевших в сумерках (Pearce et al., 2013). Хотя у этой идеи слишком много слабых мест (в частности, размер глазниц у людей практически никак не связан с размером глаз или даже связан обратной связью, а среди приматов большие глазницы тоже не так однозначно свидетельствуют о ночном образе жизни, иначе и северных монголоидов надо записать в полуночники), но коли уж у нас минутка фантазии, то всякое лыко в строку. Тролли появились на земле раньше людей. Как правило, люди вторгаются в земли троллей, а тем это не нравится. Аналогия с неандертальцами и кроманьонцами более чем очевидная. Сказочные тролли – жители густого леса. Именно такие местности населяли неандертальцы (например: Vernet, 1981), тогда как в периоды расширения степных и полупустынных ландшафтов их численность сокращалась (d'Errico et Goni, 2003). Кроме и более того, тролли живут обычно в горах, а чаще всего – в лесистых горах. Высокогорные поселения неандертальцев известны на Алтае, в Узбекистане, Ираке и Европе – в Самарине в Греции (Efstratiou et al., 2011). Связь троллей с пещерами, глухими, удаленными местами запросто могла быть спроецирована с неандертальцев. С появлением кроманьонцев неандертальцы уходили в самые труднодоступные и негостеприимные чащобы и ущелья. Тролли очень привязаны к своему месту, очень не любят покидать своих владений и, как правило, не любят гостей. Сравнение вариантов мустье и микока показывает, что способности неандертальцев к культурному обмену были не на высоте. Они могли чуть ли не тысячи лет обитать в одной пещере и практически никак не общаться с жителями соседней, расположенной в каких-нибудь тридцати километрах. В поведении троллей есть несколько ярких черт: они жадны, грубы, вспыльчивы, часто скандалят, ругаются и дерутся – как с людьми, так и между собой, громко и дико ревут. Уплощенная лобная доля неандертальцев и значительное число травм, в том числе на лице и ребрах, позволяют предположить довольно слабый сознательный контроль над эмоциями. Особо часто упоминается, что тролли по любому поводу бросают огромные камни. Мощная мускулатура неандертальцев вполне подходит для этого занятия. Кстати, иногда в сказках упоминаются каменные топоры троллей. Впрочем, в сказках тролли не всегда противопоставляются людям, иногда они помогают друг другу, тролль может приглашать путников в гости от чистого сердца. Археология дает нам пару примеров возможного культурного взаимовлияния неандертальцев и людей. Например, от первых последним могли достаться специфической формы наконечники стрелецкого типа – треугольные, с вогнутым основанием: в Проломе 1, Заскальной 5 и Тринка 3 их делали, скорее всего, неандертальцы, а в Костенках, Сунгире, Гординешты и ряде других мест – сапиенсы (Вишняцкий, 2010). Правда, на неандертальских стоянках найдено всего несколько экземпляров таких наконечников, а стоянки, их содержащие, одни из самых поздних для неандертальцев, тогда как на кроманьонских стоянках их много и они одни из древнейших для верхнего палеолита, так что не исключено, что речь идет как раз о заимствовании неандертальцами от сапиенсов. Впрочем, для нашей темы направление обмена имеет второстепенное значение. Уровень культуры троллей обычно изображается крайне низким, они олицетворяют дикость. На фоне кроманьонцев даже самые выдающиеся достижения неандертальцев действительно выглядят блекло. Практически всегда тролли в легендах глупы и даже тупы, их легко обмануть – это вообще один из главных мотивов. Трудно сказать, насколько остроумны были неандертальцы, но все, что мы о них знаем, заставляет предположить, что у них было меньше фантазии, чем у сапиенсов. В перерывах между скандалами и бросаниями камней тролли воруют красивых девушек; иногда они пытаются честно свататься, но в сказках всегда получают отказ, так что все равно дело кончается похищением. Палеогенетики утверждают, что между сапиенсами и неандертальцами происходила метисация на уровне около двух процентов. Причем специфических неандертальских митохондриальных последовательностей у современных людей никто не находил (мтДНК выделяли из костей самих неандертальцев, так что они в принципе известны; митохондрии делятся сами по себе, независимо от ядра, и передаются в следующее поколение только через цитоплазму яйцеклетки, то есть только от матери, митохондриальные гаплогруппы – варианты – это фактически фамилия по материнской линии). Возможно, они просто не сохранились, вероятность-то невелика, но не исключено, что неандертальские красавицы были неинтересны кроманьонцам, а вот кроманьонские неандертальцам – очень даже. Для подтверждения осталось обнаружить сапиентные гаплогруппы мтДНК у неандертальцев, чего, правда, покамест не бывало. Даже такой аспект тролльской сущности, как особые медицинские знания, может иметь фактическое основание. Как уже говорилось, в погребении Шанидар 4 пыльца цветов в повышенной концентрации принадлежала как минимум шести лекарственным видам (Solecki, 1975). В зубном камне неандертальской женщины из пещеры Сидрон обнаружены остатки ромашки и тысячелистника (Hardy et al., 2012). Вряд ли она жевала их в качестве гарнира к мамонтятине – эти растения горькие, зато целебные. Поскольку неандертальцы были аборигенным населением, они должны были лучше ориентироваться в свойствах местной флоры и фауны, чем пришлые из тропиков и субтропиков сапиенсы. В глазах кроманьонцев неандертальцы являлись хоть и дикими, но великими знатоками природы. Существенной проблемой “неандертальско-тролльской” гипотезы является северное распространение мифов о троллях, тогда как основной ареал неандертальцев лежал как раз в средиземноморской зоне; они избегали мест, где зимой было холоднее –8… – 10 °C (Vendramini, 2009). В Норвегии неандертальцев в принципе быть не могло – в их времена тут все было покрыто толстым безжизненным ледником. Однако, во-первых, стоянки неандертальцев известны в Дании и Финляндии (Дробышевский, 2014а), а одна лобная кость выловлена рыбаками в Северном море вместе с костями животных мамонтовой фауны (Hublin et al., 2009), все они жили на побережье, после ушедшем под поднявшуюся воду. Во-вторых, на юге неандертальцы могли исчезнуть раньше, а потомки европейских кроманьонцев в эпоху неолита массово сменялись тут новым населением, пришлым с Ближнего Востока, у которого была своя мифология. На севере сельское хозяйство затруднено, ближневосточные земледельцы почти не доходили в эти бесплодные земли. Зато именно сюда – на освободившиеся от растаявшего ледника просторы – из центральных областей Европы заселились потомки кроманьонцев, охотники и собиратели, уходившие от многочисленных и беспокойных земледельцев. С собой они принесли на Крайний Север свою родную мифологию, включая, вероятно, рассказы о неандертальцах, с которыми их предки встречались едва ли не на берегах Средиземного моря. Впрочем, не исключено, что местами и на юге – в самых что ни на есть гнездилищах неандертальцев – сохранились воспоминания о них. В преданиях басков упоминаются джентилаки – гиганты, которые любят кидать камни. А ведь баски живут в Пиренеях, на юге Франции и севере Испании, там, где неандертальцев было больше, чем где бы то ни было, и где доживали свой век последние из них. А изолированный язык басков всегда считался свидетельством их обособленности и особой древности в Европе, по крайней мере доиндоевропейской. Впрочем, надо признать, в нынешней Стране басков баски оказались лишь в конце мезолита или неолите, а вероятно, даже в эпоху переселения народов уже в железном веке. Однако, во-первых, они переселились сюда не то из юго-западных районов той же Франции, не то из Италии, может быть из Центральной Франции или Бельгии, а то и из южной части Испании, но в любом случае из района, где неандертальцев тоже хватало. Во-вторых, переселенцы могли воспринять мифы некого более коренного пиренейского населения. Правда, есть еще одна проблема: в сказках джентилаки очень уж умные – открыли выплавку металлов, изобрели хозяйственные инструменты, научились выращивать злаки. Такие свойства уж совсем не вяжутся с неандертальцами… С другой стороны Средиземноморья и даже чуть дальше – на Кавказе – в нартском эпосе присутствуют уаиги или ваюги. Общий смысл этих существ с нашей колокольни тот же самый – тупые и неуклюжие гиганты, обитающие в пещерах, жившие на данной территории раньше людей, как правило, воюющие с людьми и любящие красивых девушек (и пусть я буду поруган фольклористами!). Уаиги, кстати, “черноголовые”, а как минимум один из них имел золотистые волосы (у неандертальцев из Сидрона и Рипаро-Меццена – вот совпадение! – волосы тоже были темные, а иногда рыжие: Lalueza-Fox et al., 2007, 2011). Конечно, уаиги одноглазые и семи-, а то и стоголовые (кстати, это типично и для норвежских троллей), но за тридцать тысяч лет перевираний глаз могло и поубавиться, а голов – прирасти для пущей красоты и выразительности. Кроме того, уаиги чаще выглядят и ведут себя просто как очередное племя кочевников, но ясно, что новейшие события не могли не затмить исходника. Зато на Кавказе неандертальцы держались тоже до последнего, и сапиенсы тут засели прочно, так что преемственность от кроманьонцев до наших времен в горных аулах большая, чем на равнинах севернее и южнее (и пусть я буду поруган знатоками этногенеза народов Кавказа!). Гулять так гулять! В ирландском эпосе рассказывается о фомори с человеческим телом и козлиной головой. Впрочем, они были привязаны к воде или даже жили в воде и питались рыбой – слишком неподходящая характеристика для неандертальцев (хотя если внутри нашей минутки фантазии включить еще секундочку фантазии, то можно предположить, что на маленьком изолированном острове могли появиться прибрежные рыбоядные неандертальцы). Учитывая их связь со “стеклянными башнями в западном океане” – айсбергами, скорее речь идет об эскимосах, если, конечно, вообще есть смысл искать какие-то реальные их прототипы. Племя фомори было сменено фирболгами – гигантами, некоторые из которых были порабощены греками, которые заставляли их таскать землю с низин на террасные поля на холмах в огромных кожаных мешках. В фирболгах некоторые исследователи видят кельтов, возможно, белгов. А в Норвегии записана сказка, в которой тролля пугают: “Будешь плохо себя вести, придется тебе таскать землю в мешках”. Хотя и тут связь с неандертальцами более чем косвенная, все же показательно, что в средневековом ирландском эпосе упоминается фактически античное рабовладение в Греции и хозяйственные приемы, свойственные земледельцам другого конца Европы, в приложении к мифическому народу, а в Норвегии тот же мотив применен к троллям. Надо думать, викинги, побывав в Ирландии, услышали мотив мешков и у себя на родине приспособили его к своим родным сказочным созданиям. Это как минимум свидетельствует о наличии неких реальных корней у фольклорных существ и событий. Но довольно! На этом месте и без того уже изрядно щербатая бритва Оккама окончательно тупится о деревянистую ботву домыслов. Очевидно, все указанные соответствия троллей и неандертальцев имеют сугубо предположительный характер, нетрудно придумать совершенно отличные интерпретации тех же фактов и привести тьму совершенно антинеандертальских характеристик троллей. Дабы не прослыть мракобесом и фантазером, надо бы уравновесить разгул мысли чем-то более трезвым. На самом деле, вовсе не исключено обратное влияние – от науки к фольклору. Первые сборники норвежского фольклора опубликовали в 1841, 1845–1847, 1852 и 1871 гг. П. К. Асбьёрнсен и Й. Э. Му, ныне являющиеся классиками в своей области. В 1836 г. датский ученый К. Ю. Томсен создал периодизацию истории в виде трех веков, первым из которых был каменный, хотя эпоха палеолита фактически была известна как минимум с 1823 г. С 1830 по 1871 г. множество трудов о каменном веке создал Э. Ларте, который в числе прочего открыл верхний палеолит. Значительны также работы о палеолите, написанные в 1847–1864 гг. Буше де Пертом. Август 1856 г. ознаменовался открытием неандертальца в Дюссельдорфе, который был кратко опубликован в следующем году, а в 1864 г. описан как Homo neanderthalensis. В 1860-х гг. поиски древних людей были достаточно популярным занятием, в числе прочего в марте 1868 г. во Франции были откопаны скелеты в гроте Кро-Маньон, давшие название кроманьонцам. Собиратели скандинавского фольклора XIX и XX веков были образованными людьми, по определению интересовавшимися древнейшей историей и неизбежно знавшими о палеоантропологических открытиях, тем более что находки неандертальцев и прочих “троглодитов” широко освещались даже в популярной прессе, дебаты о них были достоянием всех грамотных людей. Образ “дикого пещерного допотопного человека” – непременно обмотанного шкурой и с дубиной в руке – стоял у них перед глазами, когда они записывали легенды о троллях. Неопределенность визуального образа в устных преданиях, возможно, восполнялась уже самими фольклористами, которые могли невольно подгонять записи преданий под стереотипы о пещерных жителях, сложившиеся в собственной голове. Методика сбора фольклорного материала тогда была не столь строгой, как ныне, известно, что исследователи публиковали не исходники записей, а уже литературно обработанные тексты. Ясно, что влияние это могло быть совершенно неосознанным. Й. Бауэр – самый известный шведский иллюстратор сказок, своими замечательными картинами в немалой степени создавший каноническое представление о внешности троллей, в основном работал с 1907 по 1915 г. – время громких открытий во всех самых классических местонахождениях неандертальцев и их предшественников: Спи (1886 г.), Крапина (1899–1905 гг.), Мауэр (1907–1908 гг.), Ла-Шапель-о-Сен (1908–1913 гг.), Ле-Мустье (1908 и 1914 гг.), Ла-Ферраси (1909–1921 гг.), Ла-Кина (1910–1927 гг.), Эрингсдорф (1914–1916 гг.). Как он, так и его предшественники уже с середины XIX века могли черпать немалую долю вдохновения в более или менее научных реконструкциях неандертальцев. Проверить эту гипотезу можно было бы, сравнив описания и изображения троллей, созданные до середины XIX века, с последующими, но оставим этот интересный труд будущим исследователям. Подводя итог: с большой вероятностью распространение научных, но искаженных научно-популярным пересказом и художественным переосмыслением данных о “пещерных людях” сказалось на записях европейского фольклора уже в XIX и XX веках.Глава 37. Человечество на востоке: денисовцы.
Неандертальцы жили в Европе и Западной Азии. А кто же населял земли восточнее? Китай весьма богат палеоантропологическими находками, но как-то так сложилось, что они всегда рассматривались как приложение к европейским. Например, черепа из Дали, Цзиньнюшаня и Мапы при всем их своеобразии так и не получили особого обобщающего названия. Конечно, антропологи не поскупились и сочинили термины Homo sapiens daliensis и Homo erectus jinniushanensis, но обычно они расценивались либо как “неандерталоиды”, либо “архаические Homo sapiens, промежуточные между Homo erectus и Homo sapiens”. Появление новых находок типа черепной крышки из местонахождения Салхит в Монголии (Coppens et al., 2008) не привело к пересмотру устоявшейся традиции. А меж тем можно задуматься: если уж современные люди в Евразии столь четко разделились на европеоидов и монголоидов, то насколько сильнее должна была действовать изоляция в допотопные времена?
Возможный ответ на этот вопрос дают открытия, сделанные палеогенетиками. В Денисовой пещере на Алтае многочисленные слои хранят летопись как минимум последних 60 тыс. лет. В них были найдены немногочисленные и очень фрагментарные останки людей. Самые древние находки – первый верхний постоянный резец из слоя 12 и левый второй нижний молочный моляр из слоя 22 (1) – по строению больше всего напоминают зубы современных людей и отличаются от неандертальских. В 2000 году в слое 11.1 был обнаружен третий верхний постоянный моляр огромных размеров, в 2008 году к нему добавилось основание концевой фаланги мизинца правой кисти, а в 2010-м – еще один здоровенный третий моляр. В 2011 году раскопки принесли концевую фалангу левой кисти и среднюю фалангу IV или V пальца левой стопы. По такому набору можно рассказать не так уж много (впрочем, настоящий антрополог всегда найдет массу информации даже в самом мельчайшем обмылке: Mednikova, 2011, 2013; Mednikova et al., 2013). Зубы вообще очень изменчивы, а фаланги весьма подвержены прижизненным модификациям.
Сенсация случилась, когда в дело включились палеогенетики. Сначала была расшифрована мтДНК из фаланги мизинца кисти (Krause et al., 2010). Оказалось, что она отличается от сапиенсов вдвое сильнее, чем отличаются неандертальцы от сапиенсов, но самое интересное, что и разница новой мтДНК с неандертальцами примерно столь же велика! Таким образом, нарисовалось “третье человечество” – денисовцы.
Почти сразу были опубликованы данные и по ядерному геному, выделенному из зуба денисовца (Reich et al., 2010). Они немножко сбавили градус специфичности, так как алтайские люди оказались все же заметно ближе к неандертальцам, чем к сапиенсам. Однако денисовцы – это не разновидность неандертальцев. Остроты добавило обнаружение денисовских генетических вариантов у некоторых современных людей, прежде всего у австралийских аборигенов, новогвинейских папуасов и прочих меланезийцев (Reich et al., 2011), причем примесь эта оценивается примерно в 5 % – вдвое больше, чем неандертальская доля у неафриканцев!
Денисовская генетика была выявлена еще в двух молярах – постоянном и молочном, а вот в средней фаланге стопы ДНК оказалась вполне неандертальской. Таким образом, Денисова пещера, по меткому выражению М. Б. Медниковой, является “пещерой всех людей” – тут успели пожить и денисовцы, и неандертальцы, и сапиенсы.
Кто же такие эти денисовцы? Судя по специфике мтДНК, линия денисовцев могла отделиться от неандертальской от 779 тыс. до 1,3 млн лет назад. А ведь это фактически время выхода первых архантропов за пределы Африки. Получается, покинув Черный континент, гоминиды разбрелись в разные стороны: те, что пошли на закат – в Европу, стали неандертальцами, а любители восхода преодолели степи, горы и леса, оказались в Восточной Азии и стали денисовцами. Судя по огромным размерам двух моляров, денисовцы могли сохранять очень архаичные черты. При этом ясно, что большая часть денисовцев жила вовсе не на Алтае, а намного южнее и восточнее, ведь смешение с сапиенсами – предками австралийцев и меланезийцев – скорее всего, происходило где-то на берегах Индийского океана. Крайне сомнительно, чтобы путь в Австралию пролегал через горы Центральной Азии.
Что ж, картина вырисовалась красивая – складная и логичная. Однако, чтобы антропологам не жилось слишком вольготно, палеогенетики выдали новую сенсацию, запутавшую начавшую было проясняться ситуацию. Они выделили мтДНК из останков, найденных в Сима-де-лос-Уэсос. В этой испанской пещере обнаружены тысячи фрагментов костей, которые принадлежали образцово-показательным гейдельбергенсисам – предкам неандертальцев, жившим тут 430 тыс. лет назад. Но! Митохондриальная ДНК этих пращуров оказалась намного более похожей на денисовскую (Meyer et al., 2013)! Хотя мтДНК из Сима-де-лос-Уэсос и не полностью идентична таковой алтайских гоминид, стоит принять во внимание колоссальную разницу во времени: как раз за несколько сотен тысяч лет мтДНК должна была дойти до денисовской кондиции. Что это значит? Антропологи пока чешут затылки. Крайне маловероятно, что денисовцы по пути из Эфиопии на Алтай сделали крюк через Испанию – чересчур извилистая дорога даже для заблудших троглодитов. Скорее всего, и “протоденисовские”, и “протонеандертальские” варианты мтДНК имелись у общих предков, вышедших из Африки, они еще сохранялись у гейдельбергенсисов Европы, но потом денисовские потерялись при переходе к неандертальцам, а на востоке наоборот – неандертальские пропали, а денисовские сохранились. Эта версия подтвердилась новейшей расшифровкой ядерного генома трех индивидов из Сима-де-лос-Уэсос: он оказался больше похожим на неандертальский (Meyer et al., 2016). Все вздохнули с облегчением. Правда, тут же появилась новая версия: а может, “неандертальские” мтДНК-линии достались неандертальцам в позднейшие времена от неких очередных мигрантов, пришедших из Африки? Есть же в Европе Чепрано и Мала-Баланика, не очень-то похожие на неандертальцев… Ход мысли генетиков иногда похож на форму двойной спирали ДНК, к тому же в состоянии суперспирализации.
Как же выглядело восточное человечество? Наверное, Ж. Л. Кювье и взялся бы реконструировать облик денисовцев по зубам и фалангам, но времена ныне не те. А генетики пока не умеют восстанавливать лица, исходя из генов; известно только, что кожа у денисовской девочки была темной, волосы черными, а глаза темно-карими (Meyer et al., 2012). Таким образом, возникает проблема: мы имеем хороший вид, известный только по ДНК, и набор черепов, генетика которых неизвестна. По географической и хронологической логике денисовцами были и Дали, и Цзиньнюшань, и Мапа, и Салхит, но как это доказать? Выделить бы из них тоже ДНК…
Чем хороша наука – никогда не знаешь, какой сюрприз преподнесет природа. Сколько еще необычных фортелей эволюции выявится при изучении прошлого?..
Глава 38. Человечество на юге: африканские… кто?
Впрочем, прошлое можно успешно изучать, подробно рассматривая настоящее. Этим путем пошли генетики – исследователи африканских народов.
Расшифровка ДНК современных мандинка, пигмеев биака и бушменов-сан выявила, что три участка на хромосомах 4, 13 и 18 оказались слишком специфичными, непохожими на такие же у других людей планеты. Расчеты показали, что примерно 2 % специфически человеческой части генома этих африканских групп было получено около 35 тыс. лет назад от неких неведомых архаичных гоминид, обособившихся от сапиенсов аж 700 тыс. лет назад (Hammer et al., 2011). Аналогичный результат получился в результате полного секвенирования геномов камерунских пигмеев, а также танзанийских хадза и сандаве (Lachance et al., 2012).
Если с метисацией в Европе и Азии все очевидно – на то там и неандертальцы с денисовцами, – то с Африкой ситуация загадочна. Крайне любопытно, как могла в Центральной Африке сотни тысяч лет сохраняться некая популяция “архаичных людей” без вливания в предков сапиенсов, а потом вдруг дать это вливание? Что их там изолировало? Тропические леса? Или сапиенсы доползли-таки до Западной Африки из Восточной? Печально, что в нашем распоряжении почти нет палеоантропологии Западной и Центральной Африки. Может, там тоже были свои “хоббиты”? А как сапиенсы перелезли через лес, так стали смешиваться? Экологически, коли могли смешиваться, загадочные “архаичные люди” должны были или исчезнуть раньше, или раньше смешаться. Не живут два родственных вида с одной экологией на одной территории. Культурную изоляцию в данном случае нельзя представить как фактор, так как она никому никогда смешиваться не мешала. Стало быть, должна быть изоляция географическая или экологическая. А Африка плоская, рек там немного, гор вообще фактически нет (есть в Северной Африке и в Эфиопии, но они очень уж далеко). Вот леса разве что или пустыни. Лесные “хоббиты” Конго? “Родезийцы”, сохранившиеся за Калахари или в Намибе?..
Возможно, следы неуловимых “архаичных людей” все же имеются. В одном случае это буквально следы: в Центрально-Африканской Республике, в Бамбари, в округе Бакала, найдены два отпечатка стоп с неопределенной датировкой (Marquer, 1960). Следы очень маленьких размеров – меньше индивидуального минимума женщин пигмеев, отличаются крайне широкими пропорциями – больше индивидуального максимума любых человеческих групп – и отсутствием сводов. Примерно так должны бы выглядеть следы “хоббитов”, но где Флорес, а где Центрально-Африканская Республика! Впрочем, следы могли принадлежать и детям, что объясняет малые размеры, расширенность пропорций и отсутствие сводов.
В заирском местонахождении Ишанго найден довольно большой набор костей с датировкой 21 тыс. лет назад или меньшей. Часть находок определенно относится к людям современного вида, но некоторые имеют весьма своеобразное строение. В частности, пирамида правой височной кости Ишанго 37 заключает в себе костный лабиринт архаичной конфигурации: по большинству параметров он больше похож на лабиринт неандертальцев, нежели кроманьонцев, и сильнее всего отличается от современного. Еще интереснее фрагменты челюстей Ишанго 23 (“a”) и в особенности Ишанго 25 (“A”). Некоторые исследователи считают их архаичными настолько, что допускают отнесение к Homo erectus или даже австралопитекам (Orban et al., 2001). Это 20 тыс. лет назад! Впрочем, по параметрам восходящей ветви – крайне низкой и широкой – Ишанго 23 не отличается от верхнепалеолитических и мезолитических африканцев, хотя и находится на самом краю распределения современных людей; размеры премоляров Ишанго 23 велики, но не чересчур. Архаика следует исключительно из чрезмерных размеров моляров, которые у Ишанго 23 и 25 действительно зашкаливают выше пределов архантропов и практически равны средним по Australopithecus afarensis и Homo habilis. Нетипичны для современного человека и пропорции альвеолярной дуги Ишанго 23: относительно некрупные клыки, резцы и премоляры при огромных молярах; линия резцов почти прямая, а линии заклыковых далеко расходятся. Такие пропорции напоминают строение челюстей некоторых восточноафриканских массивных австралопитеков – KNM-ER 729, 1477a и 3230. Но ведь парантропы вымерли миллион лет назад! Еще грандиознее изолированный левый верхний первый моляр из Ишанго, превышающий средние значения Australopithecus afarensis, Homo habilis и даже более крупнозубых Australopithecus africanus. Поздние датировки делают ситуацию крайне интригующей. Возможны несколько объяснений: либо очень древние кости попали в поздние отложения случайно (тем более что найдены они не в захоронении, а в слое мусора), либо люди из Ишанго представляют собой крайний вариант изменчивости современного человека, либо в Центральной Африке вплоть до середины эпохи верхнего палеолита сохранялись популяции крайне архаичных гоминид. Впрочем, обломок челюсти Ишанго 25 и изолированный моляр могли принадлежать не человеку, а шимпанзе. Прецедент известен: в Шум-Лака женщина SE III была погребена поверх обожженных костей людей, среди которых находилась и нижняя челюсть молодого шимпанзе. Впрочем, это не отменяет морфологии челюсти Ишанго 23, которая точно не принадлежала обезьяне.
Новейшие исследования показывают, что, вероятно, дело в смешении древних и молодых слоев (Crevecoeur et al., 2014). Экзотический моляр мог действительно принадлежать австралопитеку или “раннему Homo”, жившему 2–3 млн лет назад или даже раньше. В этом случае находки в Ишанго не менее уникальны: выходит, это единственные останки австралопитеков в Центральной Африке!
В области распространения современного тропического леса – на юго-западе Нигерии – находится пещера Иво-Элеру. Ее отложения датировались радиоуглеродным методом примерно 13 тыс. лет назад, а методом урановых серий – 11,7–16,3 тыс. лет назад. В пещере был погребен мужчина в скорченном положении. В строении его черепа масса примитивных черт: череп длинный, низкий, с покатым лбом, высоко расположенными височными линиями и резко выступающим затылком в форме “шиньона”, подобного неандертальскому. На нижней челюсти обращают на себя внимание огромная ширина восходящей ветви с низким венечным отростком, а также отсутствие подбородочного выступа – передняя сторона челюсти практически вертикальна и плавно закруглена снизу. При этом надбровье развито умеренно, а нижняя челюсть относительно укорочена и с тонким телом. Метрическое исследование показало, что человек из Иво-Элеру вообще не попадает в границы изменчивости современных людей, но близок к гораздо более архаичным гоминидам типа Нгалоба LH 18 и Кафзех VI (Allsworth-Jones et al., 2010; Harvati et al., 2011; Stojanowski, 2014). Самым интригующим в этом является поздний возраст находки – едва ли не граница голоцена!
Восточная Африка тоже может похвалиться загадкой. В местонахождении Кабуя в Кении, на западном берегу озера Туркана, найдены черепная коробка и обломки челюстей. Первоначально череп был реконструирован как крайне архаичный, с чрезвычайно покатым лбом, низким сводом, невероятно высокими глазницами и тяжелыми челюстями (Whitworth, 1966). Впрочем, такой его облик является в большей степени результатом очевидно неверной ориентации черепной коробки при воссоединении с обломками челюстей. Однако часть архаики не исчезает при любой реконструкции: черепная коробка чрезвычайно длинная, с очень толстыми костями и мощным надбровьем, покатым лбом и сильно выступающим назад затылком, хотя и округлым. Наибольшая ширина черепа приходится на надсосцевидные гребни – весьма примитивная черта. На нижней челюсти есть подбородочный выступ, но обращает на себя внимание очень большая высота всей передней части. Датировки, строго говоря, не имеется, но предполагается позднеплейстоценовый возраст, хотя М. Лики отмечала наличие в отложениях вместе с каменными даже железных орудий (Leakey, 1966). Кто этот человек – искомый метис с африканскими “хоббитами”?
Южная Африка не могла остаться в стороне на этом конкурсе девиантов. Особняком стоит ископаемая находка, сделанная в Намибии, в местонахождении Оранжеманд (Senut et al., 2000). Черепная крышка без определенной датировки обладает довольно специфическим набором черт. Она отличается как от архаичных людей Африки – очень малой шириной, развитием лобных и теменных бугров, отсутствием заглазничного сужения, так и от сапиенсов – надбровным валиком, хотя бы и не слишком мощным, очень толстыми костями свода, приплюснутостью в целом и сильной покатостью узкого лба в частности, а также слабым продольным изгибом. Крышевидность свода и сагиттальный валик встречается и у древних, и у современных людей, но в данном случае придает черепу скорее архаизма. Географическое положение и пентагоноидная форма свода неизбежно наводят на мысль о родстве с бушменами, но отсутствие лицевого скелета не позволяет оценить его более определенно. Конечно, индивидуальная изменчивость современных людей велика, но Оранжеманд уж очень не вписывается в стандартные рамки.
Могут ли Ишанго, Иво-Элеру, Кабуя и Оранжеманд представлять позднейший вариант реликтовых популяций африканских “недолюдей”? Или они являются уже результатом метисации архаичных форм с протонегроидами? Выделить бы и из них ДНК, но, к сожалению, тропические условия делают такие надежды слишком призрачными.
Коли уж в этой главе сплошное “В гостях у сказки” – то “хоббиты”, то гоблины, – можно задуматься, какое бы название подошло больше всего африканским “архаичным людям”? В мифах африканских народов поминаются маленькие не то люди, не то духи – например, нгояма, мумбонелеквапи и кацумбакази. Но почти всегда в облике и повадках подобных карликов слишком явно сквозят черты пигмеев (если дело происходит в Центральной Африке) или бушменов (в случае Южной Африки). Люди всегда отличались богатой фантазией, им необязательно было увидеть орка, чтобы придумать его. Может, поэтому наш род и остался единственным на планете? Альтернативные человечества сгинули. Но сейчас мы можем воскресить их – хотя бы в виде знаний на страницах книг и в собственных головах.
Конечно, серьезной альтернативы человеческому разуму на планете нет (как бы ни любил я подчеркивать примитивность и специализированность человека, вынужден признать, что человек таки уникален). Почему? Очевидно, никто не хотел и не должен был стать разумным. Биологическая эволюция не направляется чьим-то разумом, это стохастический процесс, сплошная статистика. Скорее можно наметить причины, почему человек стал разумным, и отметить, какие факторы не работали в случаях медведей, шимпанзе и прочих дельфинов – у них в принципе другая жизнь. Однако ж ни из чего не следует, что человеческий путь поумнения единственно верный и возможный. Фантасты много сказали о разуме на основе хищников, растений и других странных существ. И кто скажет, что этого не может быть в принципе? Возникают же хищники на основе растений, моллюсков, насекомых, рыб, амфибий, рептилий, птиц и млекопитающих независимо и в разных вариациях. Почему бы и разуму не возникать? Может, мы просто первые. Кстати, если судить по тому, что видно за окном, первый блин, как всегда, первый блин… Может, через пару миллионов лет у каких-нибудь ежей получится лучше, и они будут удивляться нашему несовершенству, как мы удивляемся недоделанности птерозавров сравнительно с птицами?
До сих пор мы, строго говоря, ходили вокруг да около антропогенеза. Нетерпеливый Читатель вправе потребовать, наконец, внятного изложения всего процесса, а не его обрывков. Что ж, переходим к сути…
Глава 39. Немного о систематике и времени.
Человеческое мышление дискретно. Люди склонны все воспринимать как набор отделенных друг от друга элементов, четко отличных по небольшому набору простых признаков. Такое восприятие характерно даже для маленьких детей: вот это мама, а это папа, это хороший дядя, а это плохой, это собачка, а это кошечка. Даже когда ребенок рисует что-то, он рисует это из отдельных кусочков: круг – голова, два кружочка внутри – глаза, треугольником нос, полукружием рот, два треугольника наверху – уши, квадратик – шея, два овала – лапки. Вот и готов портрет котенка анфас. Даже если потом перегородки между сегментами будут стерты, сначала они обязательно будут нарисованы. Это практично. Так гораздо быстрее и проще познавать мир. Торжеством такого подхода является, например, анатомическая номенклатура: это мышцы шеи, а это – спины, это – мышцы груди, а это – брюшного пресса. И неважно, что в реальности четкой границы между ними нет. Любой анатом приведет несколько веских доводов, почему, скажем, задние зубчатые мышцы относятся к мышцам спины, а передние – груди. Между тем расположены они рядом, те и другие крепятся к ребрам. Так же и во всех других областях.
Так же и в биологической систематике, в том числе антропологической. Очень удобно всех приматов разложить по своим полочкам: вот это лемур, это макака, это шимпанзе, австралопитек, хабилис, эректус, сапиенс. Есть сагиттальный гребень – австралопитек, нет – хабилис. Есть передние лицевые валики – африканский, нет – афарский. Пока находок было немного, такой подход прекрасно работал. Но различаются между собой не только виды, но и индивиды, поэтому поначалу исследователи были склонны почти каждую находку описывать как новый вид и даже род. Так появились бесчисленные “-питеки” и “-антропы”. Но чем плотнее заполнялась окаменелостями временная шкала, чем лучше ученые узнавали разные аспекты изменчивости, тем яснее становилось, что вполне можно ограничиться “джентльменским набором” названий: пара австралопитеков, один архантроп, один сапиенс – и ладушки. Но поступали свежие находки, порой из ряда вон выходящие, и вновь описывались новые роды и виды. Но снова находились сходства… Так и качается маятник “дробителей” и “объединителей” уже сто пятьдесят лет.
На самом же деле, как это ни покажется странным некоторым читателям, название ископаемого гоминида – не такая уж важная штука. Систематика – затягивающее занятие. Очень увлекательно тасовать латинские названия, спорить на тему, как правильно говорить: Homo neanderthalensis или Homo sapiens neanderthalensis, а можно еще развести демагогию на тему, что вернее писать Homo neandertalensis (заметили разницу?). Не счесть комбинаций слов Pithecanthropus, Homo, erectus, sapiens и десятка-другого иных.
Столь же поглощает многих определение хронологических видовых границ. Например, граница между гейдельбергенсисами и неандертальцами проходит 300, 200, 150 или 130 тыс. лет назад? Сапиенсы появились 200, 160, 100, 80 или 45 тыс. лет назад? Это же важно! Один из самых частых вопросов антропологам: “Когда же появился современный человек?” И люди расстраиваются и остаются неудовлетворены, услышав честный ответ: “Нет точной даты”. Не потому, что мы ее пока не знаем, а потому, что ее никогда и не было. Не было не потому, что человек не возникал эволюционным путем (как кто-то может это понять; надеюсь, Читатель не запутался в “не”), а как раз потому, что эволюционное происхождение не дискретно. Признаки, которые мы склонны определять как видоспецифичные для сапиенса, появлялись не сразу все, одним комплексом, и имелись не у всех индивидов в каждый конкретный момент времени. Не было такого, чтобы в семье “чистых” гейдельбергенсисов родился “чистый” сапиенс. Тут уместна аналогия со спектром света: любой человек, если он не дальтоник, отлично различает цвета радуги – вот красный, вот желтый, вот зеленый и синий. Но ведь в реальности спектр непрерывен! Между цветами нет барьеров, длина волны меняется вполне постепенно. Всегда найдется сине-зеленый аквамарин, про который одни будут говорить, что он голубой, а другие – салатовый. Другой пример – погружение в облако или туман: когда мы далеко от них, мы видим довольно четкие клубы пусть с не вполне резкими, но все же определенными границами. Когда мы внутри, это тоже ясно. Но при влете в облако или вхождении в туман есть довольно долгий период неопределенности: с какого момента мы уже внутри – когда не видим на сто метров, неспособны разглядеть пальцы на вытянутой руке или кончик носа?
Да и признаки мы используем хоть и не совсем произвольные, но, к сожалению, неидеальные. Потому что идеальных в природе просто нет. Подбородочный выступ появился в одно время, вертикальная ориентация барабанной пластинки – в другое, надглазничный треугольник – в третье. Причем в одной популяции мы и сейчас можем найти людей с разным состоянием этих признаков. Но у подавляющего большинства современных людей они все же будут выражены, тогда как среди неандертальцев мы с трудом найдем индивидов с сапиентным вариантом отдельных особенностей, а с полным комплексом не найдем вовсе. В промежутке от 200 до 50 тыс. лет среди африканских предков сапиенсов эти черты становились все более частыми и постоянными. Но где провести границу видов? Эректуса от сапиенса мы отличим без труда, среди гейдельбергенсисов уже можно найти особей с отдельными современными чертами, но с какого процента и каких признаков можно отсчитывать новый вид? Тут у разных антропологов есть свои мнения, тут мы переходим из мира объективного в мир субъективного, а потому и систематик существует великое множество.
Трудно описывать полутона, такие попытки оканчиваются великим занудством. Иногда бывает проще изобразить спектр или хотя бы палитру. Тут уже наука плавно превращается в искусство. А для простоты и наглядности можно выхватывать отдельные яркие пятна из картины и называть их “чистыми цветами”. Так обычно и бывает в учебниках. От этого у неискушенного читателя может сложиться ошибочное представление о контрастности всего полотна. В реальности же пастель в эволюции преобладает над резкими переходами.
Ученые, много работающие с реальными материалами, прекрасно понимают условность названий, данных нами, а потому часто предпочитают пользоваться туманными обозначениями – “архантропы”, “анатомически современные люди” – или оперировать каталожными обозначениями конкретных находок, избегая слишком однозначной латыни. Другим антропологам обычно ясно и понятно, что при этом имеется в виду. Но никто не станет спорить, что порядок нужен во всем. Безраздельный разнобой в дефинициях мешает пониманию, поэтому классическую систематику никто не отменяет. Надо только помнить о мере ее условности.
Уголок занудства. В биологии безраздельно господствует так называемая линнеевская система названий. Все живые существа подразделяются на группы, имеющие строгую иерархию. В идеале эта иерархия должна отражать родство, что, правда, не всегда удается строго соблюдать по разным причинам, главным образом из-за недостатка и противоречивости данных. “Табель о рангах” таксонов от крупных к мелким выглядит следующим образом: империи – царства – типы – классы – отряды – семейства – роды – виды. Например, современный человек относится к империи клеточных, царству животных, типу хордовых, классу млекопитающих, отряду приматов, семейству гоминид, роду человек и виду человек разумный. По необходимости выделяются также над– и подтаксоны, например, подотряд старше надсемейства, подсемейство – рода, а подрод – вида. Реже используются более экзотические группировки типа грандотрядов (выше отряда), гипотрядов (ниже подотряда), инфраотрядов (еще ниже), триб (ниже подсемейства, но выше рода, фактически это надрод) и подтриб. Подвиды внутри иногда еще подразделяются на вариации, но обычно в таких случаях речь идет уже о конкретных популяциях, то есть более-менее родственных группах, населяющих некую территорию, внутри которой уже нет существенных барьеров для скрещивания, тогда как две популяции чем-нибудь да разделены (чаще – географической преградой типа реки, горы или пустыни). Конкретный вид обозначается по биномиальной схеме: с большой буквы пишется название рода, затем с маленькой – вида (Homo sapiens). Видовое – обязательно с маленькой! Сразу видно небиолога, когда написано “Homo Sapiens”, особенно почему-то грешат этим журналисты. Латынь родов и видов выделяют курсивом, опять же легко распознать неспециалиста по написанию “Homo sapiens”; надродовые названия курсивом обычно не выделяются. Иногда добавляется третье слово – название подвида (Homo sapiens idaltu). Подрод пишется после рода в скобках (Presbytis (Presbytis) chrysomelas). По полной программе в конце обозначается автор и год описания (Strigorhysis rugosus Bown, 1979), но если первоначально вид был описан в составе другого рода или название как-то менялось, то автор и год ставятся в скобки (Presbytis (Presbytis) comata comata (Desmarest, 1822)). По умолчанию действует правило приоритета, то есть первое название считается самым главным, его меняют только в крайних случаях (например, если такое название еще раньше дали совсем другому существу). Для постижения эволюции приматов достаточно оперировать уровнями отряда и ниже. Краткая систематика приматов дана в приложении к книге.Время, конечно, лучше всего исчислять в миллионах лет, но такая возможность, к сожалению, есть не всегда. Иногда сделать абсолютную датировку затруднительно, зато богатые палеонтологические сборы дают возможность довольно точно определить эпоху и ярус. Границы периодов, эпох и ярусов определяются климатическими изменениями и, соответственно, существенными трансформациями экосистем. Поэтому нет ничего странного, что основные филогенетические события приходятся, как правило, именно на границы эпох; практически эти границы изначально и были установлены именно по смене групп растений и животных.
Трудности иногда возникают в определении синхронности отложений, расположенных на большом удалении, особенно на разных континентах. Но пара столетий напряженной работы геологов вылилась в создание сводных таблиц и весьма подробных шкал как для мира в целом, так и для отдельных географических областей. Развитие абсолютных методов позволило уточнить и исправить некоторые темные места, так что сейчас палеонтологи весьма уверенно ориентируются в бездне прошлого.
Кстати, о границах… Границы эпох не всегда принимаются одинаково в разных странах. Особенно спорны границы эоцена и олигоцена, а также плиоцена и плейстоцена. Так, приабонский ярус в старых схемах часто определялся как первый олигоценовый, но в современной международной шкале закреплен как последний эоценовый. Гелазский ярус обычно рассматривался как позднеплиоценовый, но в новейших редакциях международной шкалы обозначен как раннеплейстоценовый. Еще больше путаницы привносят попытки совмещения региональных и глобальных шкал. Границы, скажем, южноамериканских ярусов могут на пару миллионов лет не совпадать с североамериканскими, а те – с европейскими. Строго унифицировать их крайне сложно, ведь на практике геологи и палеонтологи имеют дело с реальными слоями и фаунистическими комплексами с конкретными хронологическими границами, а не абстрактными рубриками таблицы. Несовпадение времени смены климата и экосистем в разных регионах – объективная реальность, которую никак не впихнуть в прокрустово ложе формальной шкалы. Общая геохронологическая шкала в сопоставлении с региональными дана в приложении к книге.Глава 40. Дальняя родня: тупайи и шерстокрылы.
Тупайи (отряд Scandentia или подотряд Tupaiiformes отряда Primates) известны с середины эоцена Китая (Eodendrogale parvum), а сейчас обитают в Юго-Восточной Азии – от Северной Индии через Индокитай до Индонезии и Филиппин. Внешне эти зверьки очень похожи на белок, отчего раньше их относили к отряду насекомоядных. Сейчас существует пять родов и множество видов, среди которых есть полудревесные и полуназемные, дневные и сумеречные, растительно– и насекомоядные. По сравнению с приматами, тупайи имеют очень примитивную морфологию и, видимо, по облику и образу жизни близки к древнейшим предкам приматов – плезиадаписовым.
В отличие от приматов, у тупай на пальцах красуются когти, большой палец не противопоставлен остальным, мордочка сильно вытянута вперед, глаза расположены по бокам головы, на нижней челюсти шесть резцов.
Древнейшие тупайи из эоцена Китая мало отличались от современных, так что тупай можно рассматривать как настоящих “живых ископаемых”.
Шерстокрылы, или кагуаны, или летающие лемуры (отряд Dermoptera или подотряд Dermoptera отряда Primates), известны с нижнего и среднего палеогена Северной Америки, Европы и Азии, где были представлены множеством видов, но сейчас сохранилось только два вида. Филиппинский шерстокрыл Cynocephalus volans живет на Филиппинах, а малайский Galeopterus variegatus – на юге Индокитая, полуострове Малакка и Зондских островах. Шерстокрылы имеют довольно своеобразный вид. Это бурые плюшевые зверюшки с большими выразительными глазами, 35–40 см длиной и весом 1–2 кг. Между их передними и задними ногами вдоль тела до кончика длинного хвоста натянута кожная перепонка (она есть даже между пальцами), позволяющая им планировать с деревьев наподобие летяг. Лапы длинные и тонкие, а локтевая кость редуцирована и сращена с лучевой. Шесть нижних резцов имеют особое щетковидное строение. Своеобразной чертой шерстокрылов является наличие сосков под мышками; детеныши цепляются за шерсть на животе матери и летят на ней. На дереве мать помогает держаться детенышу, подворачивая хвост в виде пушистой люльки. Шерстокрылы ведут сумеречный образ жизни, питаются в основном листьями, а также плодами и цветами. С деревьев они практически не спускаются, по земле же могут только неуклюже ползать.
Хотя генетически шерстокрылы ближе к приматам, чем тупайи, их специализация к планирующему полету показывает, что морфологически они ушли дальше от общего предка всех трех групп.
Ископаемые шерстокрылы были гораздо разнообразнее и многочисленнее современных. Плагиоменоиды Plagiomenoidea, включающие циноцефалид Cynocephalidae, миксодектид Mixodectidae, плацентидентид Placentidentidae и плагиоменид Plagiomenidae, известны с палеоцена до миоцена из Северной Америки и Европы, а также с эоцена до современности в Азии. Древнейшие шерстокрыловые очень плохо отличимы от плезиадапиформов, главным образом из-за фрагментарности находок, но оттого также, что в палеоцене эти группы не так уж далеко разошлись от общего предка. А плацентидентиды и тилацелурины Thylacaelurinae (предположительно подгруппа плагиоменид) вообще могут быть ежиными – когда в распоряжении лишь зубы, бывает трудно отличить даже вроде бы вовсе не схожих животных.
Мы уже упоминали, что Ellesmene eureka умудрялась жить за полярным кругом, по полгода в темноте, планируя по парадоксальным арктическо-субтропическим лесам. Родственная ей Plagiomene очень схожа с шерстокрылами по строению зубов, но отлична от них черепом. Будем надеяться, что новые находки прольют более яркий свет на столь необычную группу животных.
Глава 41. Примитивнейшие приматы.
Корни человечества обычно ищут среди человекообразных обезьян, человеческую линию отсчитывают от возникновения прямохождения. Но, собственно, почему? Ведь приматы тоже имеют своих предков. Они прошли большой и сложный эволюционный путь, а непосредственными предками человека могли быть разные обезьяны. Поэтому необходимо вкратце рассмотреть разнообразие и историю возникновения отряда – его систематику и филогению.
Приматы (отряд Primates) в большинстве современных таксономических схем делятся на полуобезьян и настоящих обезьян. Некоторые группы – долгопяты и многие ископаемые формы – занимают промежуточное положение между этими большими подразделениями.
Заря: поступь Древнейшего и Великого Предка приматов.
Первое известное приматоподобное млекопитающее – пургаториус Purgatorius. Это был небольшой, размером с мышь, зверек, живший на деревьях и питавшийся насекомыми. Пургаториус является наиболее вероятным прямым пращуром всех приматов, хотя его систематическое положение пока неопределенно – не так много от него осталось.
Эти крошечные зверюшки жили на самой границе мелового и палеогенового периода 65 млн лет назад на территории нынешних Канады и США. Один зуб был даже найден в меловых отложениях, содержащих кости динозавров. Зубы пургаториуса крайне примитивны, но некоторые “приматные” черты в них угадываются. Однако до недавнего времени было неясно, какой образ жизни вели эти первопредки. Более поздние плезиадапиформы были довольно разнообразны: часть из них была древесной, но некоторые вроде бы жили на земле, в лесной подстилке. А ведь древесность – одна из важнейших отличительных черт приматов как отряда! Когда же появилась эта особенность?
Новейшие находки, сделанные в США, проливают свет на первые шаги прародителей приматов. В Монтане были найдены кости ноги – таранные и пяточные – в отложениях древностью 65 млн лет (Chester et al., 2012, 2015; Clemens et Wilson, 2012). Они оказались приспособлены к активным поворотным движениям, типичным для древесных существ; детали строения указывают на принадлежность владельца к плезиадапиформам и родство с приматами. А ведь в это переходное от мела к палеогену время нам известен лишь один род приматоподобных существ – пургаториус. Именно поэтому исследователи предположили, что новонайденные плюсневые кости и обнаруженные ранее зубы принадлежали одному виду существ.
Пургаториуса трудно назвать приматом – слишком уж он примитивен даже для полуобезьян. Тем более интересно, что древесный образ жизни, определивший облик и эволюционную судьбу всех приматов, появился задолго до них самих.
Попытки стать приматом – плезиадапиформы.
Плезиадапиформы (отряд Plesiadapiformes или подотряд Plesiadapiformes отряда Primates) известны из палеоцена и эоцена Европы, Северной Америки и Азии (65–42 млн лет назад). Обликом и образом жизни они были во многом похожи на грызунов. Размеры с мышь или крысу, вытянутая мордочка, маленький и просто устроенный мозг, глаза, расположенные по бокам головы, короткие массивные лапы, длинный хвост – все это общие признаки всех некрупных млекопитающих. Плезиадапиформы, с одной стороны, в общем плане строения имеют много от приматов, с другой – отличаются рядом параметров. Например, плезиадапиформы имели когти на всех пальцах, по крайней мере у части видов отсутствовало окостенение слуховой капсулы, многие обладали специализациями в зубной системе. Благодаря отпечаткам из французского местонахождения Мена известно, что плезиадаписы владели пушистым хвостом – не слишком характерным для приматов.
При этом из палеоцена и эоцена неизвестны другие млекопитающие, которые могли бы быть предками приматов. Посему включение плезиадапиформов в приматов или исключение из этого отряда – вопрос совести, а не таксономии. В настоящее время их все же чаще выделяют в самостоятельный отряд Plesiadapiformes, но близость к приматам подчеркивается объединением тех и других в рамках надотрядной группировки Primatomorpha.
Несмотря на древность, известно весьма много разных плезиадаписовых, в основном по зубам, но есть находки и целых скелетов. Замечательно, что даже на ранних этапах эволюции они были чрезвычайно многообразны. Это тем более так, поскольку мы знаем лишь о малой доле из общего числа столь древних животных. Густой букет родов и видов, возникший чуть ли не мгновенно из единого предка, называется первой радиацией приматоморфов.

Рис. 26. Схема эволюции приматов.
Относительно типа передвижения и образа жизни плезиадапиформов велись споры. Одни считали их наземными (Gingerich, 1976, 1984), другие – древесными (Szalay et Delson, 1979), однако ж отсутствие срастаний костей, гибкость конечностей и пропорции кисти однозначно свидетельствуют в пользу второго варианта. Впрочем, древесность древесности рознь: плезиадапиформы не умели бегать и скакать по веткам так же резво, как делают это сейчас обезьяны. Может, потому они и приобретали специализации зубов, подобные грызуньим, – при пониженной мобильности надо извлекать из доступных ресурсов максимум выгоды? Неспроста зубная система, аналогичная системе многобугорчатых – с резко выступающими резцами, крупным режущим премоляром и перетирающими или давящими молярами, – возникала неоднократно среди примитивных приматоподобных существ: у саксонеллид Saxonellidae, карполестоидов Carpolestoidea и фенаколемуриновых Phenacolemurinae. Наблюдая, сколь неряшливо едят обезьяны – без конца роняя что-то, выедая лишь самые вкусные кусочки и оставляя массу объедков, – можно задуматься. Обезьяны всегда могут быстро переместиться и найти новые вкусняшки, а медленные плезиадапиформы, грызуны и многобугорчатые вынуждены довольствоваться тем, что есть на месте, и грызть до победы.
Уголок занудства. Тип питания определяется по форме бугорков на молярах: высокие и острые типичны для насекомоядных животных, низкие и тупые – для растительноядных. Можно посчитать длину режущих гребешков эмали относительно длины самого зуба: у насекомоядных и листоядных гребешки будут относительно длинные (ведь надо пережевывать хитин или целлюлозу), у фруктоядных намного меньше, а у любителей нектара и древесных смол – совсем короткие. У насекомоядных эмаль обычно более гладкая, а у растительноядных – морщинистая. Еще точнее можно определять диету по микростертости эмали: тут учитывается регулярность или беспорядочность царапин, их частота, направление, глубина и форма краев, микросколы, видные под электронным микроскопом (например: Calandra et al., 2012; Scott et al., 2012). Для анализа этих особенностей используются фракталы – вот зачем будущим биологам могут понадобиться уроки геометрии в школе! У листоядов обычно очень крупные челюсти, так как листья малопитательны, их надо есть очень много; на углу нижней челюсти листоядов обычно развит большой дополнительный отросток.Несмотря на внешнее сходство, зубная система специализированных плезиадапиформов не была идентична таковой грызунов. У представителей семейства плезиадапид Plesiadapidae верхние резцы имели бугорки и не были самозатачивающимися. У многих полностью исчезли нижние клыки и вторые нижние резцы, а у некоторых и верхние клыки, так что между резцами и премолярами имелся большой зазор – диастема. От ранних форм к поздним доля мягкой пищи – фруктов и особенно листьев – в рационе, вероятно, увеличивалась (Boyer et al., 2010a). Плезиадапиды были одними из самых успешных животных своего времени, в некоторых местонахождениях они встречаются чаще всех остальных млекопитающих. Это отразилось и в распространении: в Европе, Северной Америке, Пакистане и Китае с нижнего палеоцена по нижний эоцен. Размеры их сильно варьировали – самые мелкие были как белка, а некоторые были довольно крупными – размером с крупную кошку.
Не слишком родственны, но экологически схожи с плезиадапидами микросиопиды Microsyopidae, жившие с верхнего палеоцена по средний эоцен в Северной Америке; среди них встречались животные размером с бобра. Относительно микросиопидов, впрочем, есть сомнения: некоторые специалисты считают их грызунами, насекомоядными или группой в отряде шерстокрылов.
Паромомиоиды Paromomyoidea, включающие паромомиид Paromomyidae, одними исследователями считаются шерстокрылами, а другими – плезиадапиформами. В частности, род Ignacius на основании строения зубов относится к фенаколемуринам Phenacolemurinae – подгруппе паромомиид, типовой род которых Phenacolemur имел пальцы, почти неотличимые от пальцев современного шерстокрыла (Beard, 1990, 1993). Да и у самого Ignacius форма костей кисти тоже весьма шерстокрылья (Hamrick et al., 1999; Krause, 1991). Посему, пока были известны только изолированные кости конечностей, предполагалось, что эти существа имели летательную перепонку и были способны к планирующему полету. Однако обнаружение целых скелетов показало, что эти звери были больше похожи на белок, а не на летяг. Пропорции кисти к туловищу, строение основания черепа и внутреннего уха у Ignacius скорее как у современных обезьян (Bloch et Silcox, 2001; Bloch et al., 2007; Silcox, 2003). Такая мозаика признаков, запутывающая общую картину, типична для древнейших приматов и близких им групп. Паромомиоиды имели квадратные уплощенные моляры, приспособленные для перетирания фруктов, впрочем, в диете немалую роль могли играть древесный сок и насекомые. В последовательном ряду палеоценовых родов наблюдается быстрое удлинение и истончение нижних резцов с появлением промежутка – диастемы – между резцами и премолярами.
Карполестоиды Carpolestoidea почти полностью перешли на питание волокнистыми плодами, орехами и стеблями, благодаря чему приобрели плоские и высокие премоляры с пильчатым краем. У них имелись и продвинутые приматные черты: например, большой палец ноги был снабжен ногтем, а не когтем, что подразумевает и бóльшую чувствительность; впрочем, и карполестоиды были медлительными животными и не могли быстро прыгать по ветвям. Они существовали не так уж долго – в пределах среднего и верхнего палеоцена Северной Америки, а последние представители доживали свой век в нижнеэоценовых лесах Китая и среднеоэценовых – Пакистана. Карполестоиды никогда не были многочисленны, и исчезновение их может быть связано с климатическими колебаниями или конкуренцией с более крупными животными, поскольку карполестоиды были одними из самых небольших плезиадапиформов – размером с мышь или крысу.
Пикродонтиды Picrodontidae, с их морщинистыми многобугорковыми, очень широкими – особенно первыми – и совсем не стертыми молярами, стали очень специализированными фруктоядами, а может, даже питались преимущественно нектаром, пыльцой и древесным соком. Череп Zanycteris резко сужался спереди, этим пикродонтиды были похожи на современных мышиных лемуров Cheirogaleinae и хоботноголовых кускусов Tarsipedidae, питающихся нектаром. Пикродонтиды, видимо, дальше всех из плезиадапиформов ушли от исходной насекомоядности. Забавно, что зубы пикродонтид столь необычайно похожи на зубы летучих мышей, что в 1935 году Дж. Симпсон даже предполагал, что пикродонтиды относятся к рукокрылым (Simpson, 1935).
Все эти специализированные плезиадапиформы, конечно, не были предками приматов, но известны и более генерализованные их варианты, например средне-верхнепалеоценовые североамериканские палехтониды Palaechthonidae. У них сохранялась исходная для приматов зубная формула, не было диастемы между резцами и премолярами, отсутствовали гипертрофии каких-либо зубов. Строение черепа Palaechton nacimienti было самым примитивным среди всех плезиадапиформов: глазницы маленькие, ориентированы вбок и широко расставлены, заглазничное сужение не выражено, обонятельные луковицы большие; судя по увеличенному подглазничному отверстию, имелись длинные вибриссы. Ориентировались палехтониды в основном с помощью осязания, слуха и обоняния, а не зрения. Судя по всему, вели они в основном наземный образ жизни. В немалой степени все эти черты были связаны с малыми размерами тела и насекомоядностью палехтонид (Kay et Cartmill, 1977). Показательно, что группа палехтонид – вовсе не древнейшая среди плезиадапиформов; с одной стороны, она сохраняла исходную насекомоядность и экологически схожа с тупайями, с другой – по времени близка к настоящим приматам границы палеоцена и эоцена. Вряд ли настоящих приматов дали палехтониды с их особенностями, но истинными предками должны были быть очень похожие на них существа, только более древесные и всеядные.
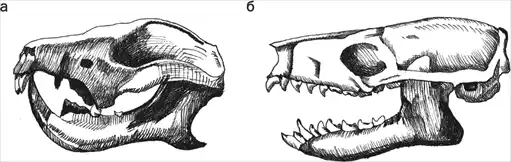
Рис. 27. Черепа Plesiadapis (а) и Palaechton nacimienti (б).
Насекомоядность вполне сочеталась с древесностью у микромомиид Micromomyidae, которые были одними из самых мелких плезиадапиформов – весом 20–30 г (самыми лилипутскими были представители подсемейства тинимомиин Tinimomyinae), вдвое меньше современных мышиных лемуров. При их размере другая диета, нежели насекомые, млекопитающим резко противопоказана. Эти крошечные зверюшки жили в конце палеоцена и начале эоцена в Северной Америке.
Впрочем, и размеры микромомиид не предельны: поздние пикромомииды Picromomyidae побили все рекорды – Picromomys petersonorum весил ничтожные 10 г. Эти животные известны из среднего эоцена Северной Америки.
Позднейшей группой насекомоядных плезиадапиформов были толиапиниды Toliapinidae (Hooker et al., 1999). Они появились лишь в конце палеоцена и дожили до среднего эоцена. Большинство видов, включая примитивнейшего Sarnacius gingerichi, найдено в Европе, но Altiatlasius koulchii мигрировал в Марокко, а самый поздний – Seia shahi – обнаружен в Пакистане. Altiatlasius koulchii первоначально был описан как древнейший настоящий примат семейства Omomyidae, потом считался даже антропоидом-эосимидом (это было сенсацией, так как получалось, что человекоподобные приматы появились уже в конце палеоцена, 57–60 млн лет назад!), но позже пересмотрен как плезиадапиформ. Толиапиниды были весьма схожи с микромомиидами по образу жизни и являются их полным “старосветским” аналогом; к сожалению, от тех и других найдено очень немного останков.
Среди плезиадапиформов особняком стоит семейство Adapisoriculidae. Особенности его представителей позволяли разным исследователям включать его в сумчатых, насекомоядных, лептиктид или миксодектид, а также считать предковым для тупай. Адаписорикулиды назывались и как возможные предки афросорицид Afrosoricida, включающих современных златокротов Chrysochloridae и тенреков Tenrecidae (Seiffert, 2010). Несмотря на существенные различия с плезиадаписовыми в зубной системе, строение посткраниального скелета (то есть всего скелета, кроме черепа) у плезиадапиформов, шерстокрыловых и адаписорикулид весьма схоже (Smith et al., 2010); судя по всему, это были древесные насекомоядные животные. Более того, плечевая кость адаписорикулид имеет промежуточное строение между вариантами меловых “кондиляртр” и кайнозойских эуархонт, причем в ряду самих адаписорикулид обнаруживается постепенный переход от более примитивного варианта мелового Deccanolestes к более эуархонтовому у палеогеновых форм (Boyer et al., 2010b). Если считать адаписорикулид приматами или приматоморфами, а Deccanolestes hislopi – адаписорикулидом, то эта группа становится самой древней среди приматоморфов, поскольку указанный вид обнаружен в позднемеловых отложениях Индии. Учитывая, что Индия в то время была островом, удаленным от всех других земель, а Purgatorius в то же время жил в Северной Америке, пути миграций становятся совсем непонятными.
Замечательно, что адаписорикулиды найдены в нижнем и верхнем палеоцене и нижнем эоцене Европы, а также верхнем палеоцене и нижнем эоцене Северной Африки, но ни малейших их следов нет в хорошо изученных фаунах Северной Америки и главной части Азии. Таким образом, либо адаписорикулиды были до крайности приматоподобными сумчатыми или насекомоядными, либо приматы зародились не в Северной Америке. Сами адаписорикулиды могли возникнуть в разных местах: древнейшие представители найдены в верхнем мелу Индии (несколько видов одного или двух родов, отсюда они могли попасть в Европу через Восточную Африку или острова моря Тетис), но самое большое разнообразие обнаруживается в нижнем палеоцене Европы (они явно появились тут раньше, но меловые европейские млекопитающие известны плохо, так что в Индию и Африку могли попасть отсюда), а примитивнейший вид Afrodon chleuhi известен из верхнего палеоцена Марокко (хотя более ранних в Африке пока не нашли, потенциально они могли распространиться отсюда и в Индию, и в Европу; Smith et al., 2010; De Bast et al., 2012). Не исключено, что предки адаписорикулид жили в Европе и оттуда попали в Северную Америку, только там стали пургаториусами, а позже – плезиадапиформами. С другой стороны, адаписорикулиды могут быть предками современных шерстокрылов; из Индии они могли попасть в Юго-Восточную Азию, когда эти две части суши соединились (Smith et al., 2010). С третьей стороны, даже отнесение рода Deccanolestes к плацентарным вызывает сомнения; согласно некоторым кладистическим расчетам, он вместе с прочими адаписорикулидами может представлять очень архаичную линию (намного примитивнее, чем Cimolestes, Zalambdalestes и Purgatorius), восходящую к корням всех эутериев, поздние представители которой сохранили примитивные черты до весьма поздних времен (Goswami et al., 2011). Впрочем, адекватность результатов кластерного анализа, применявшегося в подобных исследованиях по выявлению филогении, мягко говоря, спорна, что можно видеть, например, при сравнении выводов двух групп палеонтологов: в одной работе адаписорикулиды оказались предками тенреков (Seiffert, 2010), во второй – ответвлением древнейших и примитивнейших эутериев, даже близко не родственных ни тенрекам, ни эуархонтам (Goswami et al., 2011). Как бы то ни было, существование адаписорикулид свидетельствует, во-первых, о возможности межконтинентальных обменов фаун в позднем мелу и раннем палеогене, а во-вторых, о существовании примитивных групп, близких к предкам приматов, на осколках Гондваны – в Африке и Индии.
Специфические признаки и особенности являются главным препятствием для признания плезиадапиформов в качестве настоящих приматов. Ведь они обладали маленьким мозгом (гораздо меньшим, чем у приматов таких же размеров, хотя и большим, чем у других зверей) с хорошо развитыми обонятельными центрами; зрение, судя по направленным в стороны глазам, не было стереоскопичным; имелись когти на пальцах, их большой палец не противопоставлялся, а кисть была больше “цеплятельной”, нежели “хватательной”. Поэтому, несмотря на тот факт, что плезиадапиформы уже ушли от сугубой насекомоядности, а некоторые стали специализированными листо– и фруктоядами, многие систематики склонны считать первыми приматами только эоценовых адапиформов Adapiformes и омомиформов Omomyiformes.
Имевшиеся же прогрессивные особенности плезиадапиформов не уберегли их от вымирания. Традиционно и по умолчанию считалось, что в их исчезновении повинны более продвинутые настоящие приматы. Однако изучение частот встречаемости останков рисует другую картину (Fleagle, 1999). Резкий спад численности плезиадапиформов начинается совершенно синхронно со столь же резким подъемом численности первых грызунов, тогда как лишь через некоторое время появляются и начинают распространяться полуобезьяны. Стало быть, плезиадапиформы проиграли эволюционную гонку грызунам, зато своим исчезновением освободили дорогу полуобезьянам; спасибо мышам – без них нас бы не было! Таким образом, отличия плезиадапиформов от приматов оказываются крайне существенными: то, чего не было у первых, не позволило им успешно конкурировать с грызунами; то же, что приобрели вторые, вывело их на новый уровень, недоступный грызунам.
Дальнейшее развитие группы привело к первой радиации приматов – возникновению множества новых видов, давших начало разным линиям приматов.
Полуобезьяны.
Полуобезьяны (подотряд Strepsirrhini или Prosimii) включают четыре группы. Древнейшая и предковая для современных – адапиформы Adapiformes. Современные лемурообразные Lemuriformes, лориобразные Lorisiformes и руконожковые Chiromyiformes раньше объединялись вместе, но думается, что различия между ними сильно недооценивались. Срабатывал закон проекции: чем дальше приматы от человека, тем хуже мы их различаем, тем более склонны смешивать в одну большую кучу; а вот ближайших родственников мы классифицируем тщательно, подробно и с чувством. Но ныне приматологи стали объективнее.
Полуобезьяны отличаются от обезьян массой примитивных особенностей. Например, у них не полностью бинокулярное зрение: глаза ориентированы несколько наискосок. Вообще зрение играет меньшую роль в жизни полуобезьян, чем обезьян; обоняние же развито гораздо сильнее. Поэтому и мордочка у них вытянутая, а нос слит с верхней губой, что, в свою очередь, снижает способности к мимике. Да оно и понятно, ведь полуобезьяны ведут преимущественно ночной или сумеречный образ жизни.
У современных полуобезьян есть и черты специализации. На указательном пальце стопы есть коготь, нужный для расчесывания шерсти; для той же цели служит щетка из вытянутых нижних резцов и клыков, сильно выступающих вперед. Прилагается и особое устройство для очистки этой гребенки от шерстинок: под языком имеется “подъязык” – треугольный вырост с пильчатым краем. Очевидно, полуобезьяны очень пекутся о своей внешности. Зубная щетка из резцов и коготь на втором пальце стопы объединяют галаго, потто, лори и мадагаскарских лемуров, так что все они наверняка имели общего предка.
Кроме более примитивной морфологии, полуобезьяны отличаются от настоящих обезьян поведением. Это почти исключительно ночные или сумеречные животные. Почти все полуобезьяны – древесные. Насекомых и прочих мелких животных они едят гораздо чаще, чем обезьяны, что и логично при малых размерах тела. Некоторые виды ведут одиночный образ жизни, некоторые живут группами.
Адаписовые (Adapiformes или Adapoidea) появились в начале эоцена около 56 млн лет назад. Они были распространены в основном в Европе и Северной Америке, но известны также из Северной Африки и Азии. Большая часть адаписовых вымерла на границе эоцена и олигоцена, видимо из-за общего похолодания и сокращения площади лесов. Однако в Южной и Восточной Азии последние адаписовые дотянули даже до конца миоцена. Тут климат менялся меньше, так что примитивные группы имели хорошие шансы на выживание, неспроста тут и сейчас живут, например, тупайи. Последних адаписовых добили, похоже, не погодные неурядицы, а потомки-конкуренты – злобные лори.
От современных полуобезьян адаписовые наглядно отличаются отсутствием зубной щетки: что поделать, дремучие времена – варварские нравы, парикмахерское искусство еще не было изобретено. Адаписовые имели размеры от мыши до большой кошки, были преимущественно древесными жителями, питались растениями, а некоторые и насекомыми, вели дневной или сумеречный образ жизни. Группа адаписовых очень разнообразна, во время ее образования – в раннем эоцене – происходила вторая радиация приматов.
Нотарктиды Notharctidae – весьма богатое семейство, появившееся в начале эоцена и исчезнувшее в начале олигоцена. Ранние представители подсемейства церкамониин Cercamoniinae (типа Donrussellia) были предками прочих групп нотарктид, а также семейств адапид Adapidae и азибиид Azibiidae. Таким образом, церкамониины – непосредственные, хотя и очень дальние предки лемуров. В 1984 году в Германии нашли целый скелет Darwinius masillae с отпечатком тела и шерсти вокруг; этот зверек жил 47 млн лет назад. В его строении можно усмотреть черты высших обезьян: мордочка короткая, половинки нижней челюсти сросшиеся, нет когтей на пальцах, на таранной кости имеется фасетка для малой берцовой кости. Впрочем, с наибольшей вероятностью эти продвинутые черты возникли конвергентно – независимо у дарвиниуса и обезьян. То же можно сказать про намного более позднего Afradapis longicristatus из Египта, жившего 37 млн лет назад, представителя особого подсемейства Caenopithecinae.
Другие ранние нотарктиды – азиадапины Asiadapinae – известны из Индии. Marcgodinotius indicus, живший 53 млн лет назад и весивший всего 130 г, настолько похож на примитивную обезьяну Anthrasimias gujaratensis из эосимид Eosimiidae, что до сих пор неясно – один это вид или два разных. Вместе с тем большинство черт Marcgodinotius indicus – наиболее примитивны среди всех адаписовых приматов. Такая комбинация, если вдуматься, логична: самые примитивные полуобезьяны должны быть похожи на самых примитивных обезьян.
Отлично сохранились останки нотарктуса Notharctus tenebrosus из подсемейства Notharctinae из Северной Америки. Этот почти полуметровый примат с длинным хвостом весьма напоминал лемуров, однако имел даже более продвинутое строение: его морда уменьшена, а глаза развернуты вперед и окружены замкнутым костным кольцом. Его родственник смилодектес Smilodectes gracilis имел еще более короткую мордочку; обонятельные луковицы смилодектеса были редуцированы, а зрительные центры мозга развиты, что свидетельствует о дневном образе жизни. Как и большинство адаписовых, он был древесным и листоядным.

Рис. 27. Череп Adapis parisiensis.
Адапиды Adapidae известны преимущественно из Франции, Германии и Швейцарии, но в 1990-х гг. их представители были найдены в Китае (Adapoides troglodytes) и Северной Африке (Djebelemur martinezi и близкие ему формы, выделяемые в особое подсемейство Djebelemurinae). Лучше всего изучены парижский адапис Adapis parisiensis и более крупный Leptadapis magnus, от которых найдено довольно много целых черепов, в том числе более двадцати – еще в XIX веке. Обилие материалов позволило рассчитать уровень полового диморфизма, то есть степень различий самцов и самок. Выяснилось, что самцы весили примерно в полтора раза больше самок, а половой диморфизм по клыкам не больше или совсем немного больше, чем по размерам тела (Gingerich, 1981). Стало быть, межсамцовая конкуренция была незначительной, а в группах, скорее всего, присутствовало сразу множество и самок, и самцов.
Leptadapis magnus весил в среднем 8,4–9 кг, а отборные самцы аж 11,5 кг, тогда как чуть более поздний Adapis parisiensis – всего 2 кг (Gingerich et Martin, 1981). Мозг последнего имел размер лишь 8,8 см³ (втрое меньше, чем у кошки!); сравнение с современными полуобезьянами показывает, что адапис сильно уступал им в интеллекте. Маленькие глазницы свидетельствуют о дневном образе жизни, очень маленькие подглазничные отверстия – о редукции вибрисс. Слух у адаписов был отличный, но зрение все же играло роль главного органа чувств. Адаписы были древесными и преимущественно листоядными животными.
Североафриканские азибииды Azibiidae, жившие от 52 до 35 млн лет назад, были намного более мелкими животными: азибиус Azibius trerki – 115–160 г, другой вид того же рода – 630–920 г, алжирипитек Algeripithecus minutus – всего 65–85 г. Это были древесные ночные животные с очень большими глазами и длинными вибриссами. У нижне-среднеэоценового алжирипитека с большой вероятностью имелась зубная щетка из нижних резцов, так что этот примат – один из лучших кандидатов на роль общего предка лемурообразных и лориобразных.
Впрочем, на это почетное звание претендует и другой североафриканский примат – джебелемур Djebelemur martinezi, живший около 50 млн лет назад в Тунисе. Его выделяют в подсемейство Djebelemurinae, подгруппу адапид. Хотя у него нет зубной щетки, все же по комплексу признаков он оказывается отличным предком для африканских галаго, тем более что и по размерам – 100 г – он идеально соответствует карликовым галаго.
Последние адаписовые – сиваладапиды Sivaladapidae – дожили до конца миоцена (10 или даже 7 млн лет назад). Это были не очень крупные, но и не слишком мелкие – от 0,5 до 4 кг – животные, древесные, частично фрукто-, частично насекомоядные. В Таиланде найден среднемиоценовый Siamoadapis maemohensis. В Индии и Пакистане позднемиоценовые Sivaladapis nagrii и Indraloris himalayensis найдены вместе с останками сивапитеков Sivapithecus, а в Китае три вида Sinoadapis – с человекообразными юаньмоупитеками Yuanmoupithecus, люфенгпитеками Lufengpithecus и лаккопитеками Laccopithecus. Таким образом, последние представители примитивнейших полуобезьян передали эволюционную эстафету продвинутым гоминоидам. Современные орангутаны ловят лори; может быть, сивапитеки так же гонялись за их отдаленными родственниками? Вымирание последних адаписовых совпало с периодом похолодания и осушения климата; видимо, и конкуренция со стороны полуобезьян новых типов заметно возросла.
Некоторые палеоприматологи предполагают, что адаписовые могли быть предками и высших обезьян – это так называемая “адапоидная гипотеза”. В качестве переходных форм от адаписовых к обезьянам назывались Darwinius masillae, Algeripithecus minutus и Djebelemur martinezi, но сторонников этой точки зрения сейчас немного.
Современные полуобезьяны делятся на лемурообразных Lemuriformes (лемуры Мадагаскара), лориобразных Lorisiformes (галаго и потто Африки и лори Юго-Восточной Азии) и руконожковых Chiromyiformes (руконожка Мадагаскара). Размер этих животных колеблется от мыши до небольшой собаки, некоторые ископаемые лемуры были с крупную собаку или даже гориллу. Практически все они ночные или сумеречные, отчего круглые глаза – самая яркая черта всех полуобезьян.
Современные лемуры – жители только одного острова, но на нем, к сожалению, не найдены древнейшие предки лемуров. Удивительным образом ближайший родственник – Bugtilemur mathesoni – обнаружен в нижнем олигоцене Пакистана (впрочем, он может быть древнейшим мышиным лемуром, адаписовым приматом или же вообще шерстокрылом подсемейства Ekgmowechashalinae). Как лемуров занесло на Мадагаскар – непонятно. Остров был отделен от Африки уже в мезозое 160–165 млн лет назад, так что приматы могли достичь своей земли обетованной только по воде – на плотах из переплетенных растений, скорее всего, из Восточной Африки.
Предки руконожки точно неизвестны, в наибольшей степени на нее похож особый примат плезиопитек Plesiopithecus teras, чьи останки найдены в египетских отложениях с датировкой около 34 млн лет назад. Его своеобразие столь велико, что он выделяется в собственное надсемейство полуобезьян Plesiopithecoidea. С руконожкой плезиопитека роднит общее сходство формы черепа и строение зубов, в особенности выступающие вперед огромные нижние резцы (Godinot, 2006).
Лемуры Мадагаскара часто упоминаются как “живые ископаемые”, поскольку они действительно очень похожи на полуобезьян эоцена. В популярной литературе обычно пишется, что лемуры смогли дожить до современности благодаря изоляции, поскольку высшие приматы на Мадагаскар так и не попали. Это верно лишь отчасти, ведь ближайшие родственники лемуров живут и в материковой части Африки, и в Азии в одних лесах с обезьянами. Правдивость же такого утверждения заключается в том, что на Мадагаскаре сохранилось и развилось необычайное разнообразие лемуров, поскольку они заняли все экологические ниши, потенциально годные для обезьян. В Африке же и Азии потто, галаго и лори живут в достаточно специфических экологических нишах.
Среди мадагаскарских лемуров наиболее известны лемуры-катта Lemur catta (они же – кошачьи или кольцехвостые лемуры), обладатели запоминающихся длинных хвостов в черно-белую полоску. Они живут территориальными общинами, весьма ревностно охраняя границы от соседних стай. Не самым стандартным для приматов является главенство самок – настоящий матриархат. Также необычен для приматов большей частью наземный образ жизни; объясняется он жизнью в засушливых районах юга Мадагаскара, где с деревьями бывают проблемы. Хотя катты отлично лазают и прыгают по деревьям, большую часть времени они проводят на земле. Из-за этого длина рук и ног у катт примерно одинаковая. Хвост от наземной жизни не исчез, а приобрел новое – сигнальное – значение. Показательно, что то же самое случилось с павианами в саваннах Африки. К сожалению, конкуренция с людьми оставляет кошачьим лемурам мало шансов на окончательный выход в саванну и дальнейшее развитие в сторону разумности, хотя в сравнении с другими лемурами катта находятся в самом благоприятном положении, их численность пока довольно велика.
Оригинальное отличие имеется между двумя подвидами черного лемура: Eulemur macaco macaco обладает желто-оранжевыми глазами, а Eulemur macaco flavifrons – голубыми. Кстати, у этих же животных сильно выражен половой диморфизм по окраске: самцы черные, а самки коричневые.
Индри Indri indri выделяются резко укороченным хвостом – всего пять сантиметров. Думается, что редукция хвоста у индри не случайность, ведь эти животные – самые крупные современные полуобезьяны, достигающие от полуметра почти до метра длины и весящие до 9,5 кг. Видимо, увеличение веса снижает значение хвоста как балансира совершенно аналогично человекообразным обезьянам. Зато большой палец и на кисти, и особенно на стопе совершенно огромный, резко противопоставленный прочим, сросшимся к тому же до середины длины. Индри живут маленькими постоянными семьями; в отличие от большинства лемуров они ведут дневной образ жизни.
Специализация к прыжкам по деревьям у индри и их ближайших родственников сифак Propithecus зашла настолько далеко, что по земле на четвереньках они перемещаться не могут, а вынуждены скакать боком на двух ногах, подняв руки. По деревьям же они галопируют с легкостью неимоверной. Даже индри, несмотря на размер, умеют неплохо прыгать, причем делают это боком из сидячего положения на вертикальном стволе. Сифака Верро Propithecus verreauxi, живущая в засушливых лесах Юго-Западного Мадагаскара, ничтоже сумняшеся сигает по таким колючим стволам, что больно смотреть. Как она при этом умудряется не разодраться в клочья – науке неизвестно.
Особый подвид серого полумаки Hapalemur griseus alaotrensis, обитающий по топким берегам озера Алаотра, – единственный примат, населяющий болота. Эти редкие зверьки живут в зарослях камыша и питаются его листьями, в отличие от ближайших родственников других подвидов и видов, которые живут в лесах из гигантского бамбука и едят бамбуковые листья.
Мышиные лемуры Microcebus murinus – одни из самых мелких приматов в мире, соперничающие за это звание с карликовыми игрунками: наименьшая длина их тела без хвоста – около 10 см, плюс 15 см приходится на хвост. А вот гигантский мышиный лемур Mirza coquereli имеет длину тела аж 25 см и вес 300 г! Родственные жирохвостые лемуры Cheirogaleus впадают в спячку на время сухого сезона, перед чем запасают жир в хвосте. Это единственные приматы, впадающие в спячку. Многие мышиные лемуры питаются нектаром цветов или древесными смолами.
Особым своеобразием отличается руконожка ай-ай Daubentonia madagascariensis. Количество ее уникальных черт столь велико, что ныне ее выделяют в самостоятельный инфраотряд руконожковых, равный по рангу лемурообразным и лориобразным, хотя и включающий лишь один современный вид. Руконожка выделяется строением своих зубов, поскольку у нее всего по одному резцу в каждой половине челюсти, нет “зубной щетки”, нет клыков, нет премоляров на нижней челюсти и лишь по одному премоляру на верхней. Резцы растут постоянно, как у грызунов; руконожка прогрызает ими кору деревьев, добираясь до пустот-ходов личинок насекомых. Конечности ее специализированы, средний палец на руке чрезвычайно вытянут и используется для простукивания деревьев в поисках тех самых пустот-ходов, а также для вытаскивания оттуда личинок. Современные руконожки размером с небольшую кошку, примерно 2,5 кг весом, тогда как ископаемая Daubentonia robusta могла весить аж 12,5 кг. Судя по немногочисленным известным останкам, этот гигант вымер в последнюю тысячу лет, скорее всего – с непосредственной помощью человека.
Разнообразны лемуры Мадагаскара, но в недавнем прошлом его населяли еще более удивительные животные. Когда первые индонезийцы высадились на берега острова и углубились в его первозданные леса, они нашли там фантастическую фауну. Мы не будем рассказывать тут об эпиорнисах – птицах Рух, нескольких видах карликовых бегемотов и аналогах трубкозубов Plesiorycteropus, составляющих уникальный отряд Bibymalagasia. Среди лемуров тоже хватало уникальных представителей. К сожалению, все они пали жертвами аппетита предков мальгашей – современных жителей острова. Ясно, что в первую очередь уничтожены были самые крупные животные. Из-за этого даже может сложиться впечатление, что ископаемая фауна Мадагаскара представлена исключительно гигантами, а нынешняя – карликами. На самом деле малютки были и раньше, но их останки имеют гораздо меньше шансов сохраниться.
Кстати, о чертогах, сокровищ полных… В национальном парке “Циманампесотсе” на Мадагаскаре исследователи нашли три затопленные пещеры, битком набитые сокровищами: целыми черепами и скелетами рогатых крокодилов и птиц-эпиорнисов, гигантских фосс и карликовых бегемотов, летучих мышей и грызунов. Кости буквально лежат там грудами! Среди прочих богатств Циманампесотсе имеются многочисленные останки вымерших лемуров Megaladapis и Archaeoindris. Благодаря недоступности пещер кости сохранились идеально, как новенькие. Достать их можно, только ныряя с аквалангом. Только собирание и каталогизирование ценностей займет наверняка не один год, а их исследованием смогут потом заниматься многие поколения антропологов.Например, современные вари Varecia весят 3–4 кг, а их ископаемые родственники Pachylemur – 8–10 кг, ласковидные лемуры Lepilemur – меньше килограмма, а Megaladapis – 50–88 или даже 140–200 кг, индри – меньше 10 кг, а его сородичи Mesopropithecus – 10–14 кг, Archaeolemur – 15–25 кг, Hadropithecus – 17–35 кг, Babakotia – 16–20 кг, Palaeopropithecus – 35–60 кг, Archaeoindris – от 130 до 200 кг.

Рис. 29. Реконструкция Megaladapis (а), Hadropithecus (б) и Palaeopropithecus (в).
Мегаладаписы Megaladapis были медленными листоядными древолазами, подобными огромным коалам. Судя по костям со следами разделки, они были желанным угощением на столах мальгашей вплоть до прибытия европейцев примерно полтысячи лет назад. Особенно впечатляющими габаритами отличался Megaladapis edwardsi. Не очень родственным, но очень похожим – как по габаритам, там и по пропорциям – был археоиндри Archaeoindris fontoynonti. У этих огромных существ – и мегаладаписов, и археоиндри – руки были заметно длиннее ног, предполагалось также, что они были наземными и вели образ жизни вроде современных горилл.
Гадропитеки Hadropithecus stenognathus характеризовались почти круглой головой с очень короткой мордой и мощнейшими челюстями. Их передние зубы были уменьшены, а моляры увеличены и имели бугристый вид, что позволяло пережевывать жесткие стебли и семена. Судя по коротким ногам с недлинными пальцами и малоподвижными суставами, гадропитеки были наземными животными. Таким образом, эти животные экологически были чем-то средним между современными геладами и гориллами.
Палеопропитеки Palaeopropithecus отличались отсутствием нижних клыков, вытянутым носом, крайне длинными руками (относительно ног – длиннее, чем у орангутанов и гиббонов!) с подвижными суставами, вытянутыми изогнутыми пальцами и уменьшенным большим пальцем. Очевидно, это были крайне специализированные древолазы, почти не спускавшиеся на землю. Возможно, они могли висеть на ветках вниз головой типа ленивцев или даже брахиировать подобно гиббонам, хотя бы и не так лихо.
Минутка фантазии. Некоторые криптозоологи не оставляют надежд, что какие-то из гигантских лемуров все еще хоронятся в дремучих лесах Мадагаскара. Упования эти основываются на свидетельствах местных жителей. Например, на севере Мадагаскара записаны предания о каланоро – маленьких “гоминоидах”, ныне вымерших, хотя один из них якобы был пойман в 1879 г. (Forth, 2012, p. 210). Трудно представить, что каланоро – какие-нибудь архаичные гоминиды типа “хоббитов”, поскольку древнейшие следы заселения острова оставлены всего около 4 тыс. лет назад (Gommery et al., 2011). Зато крупные лемуры как никто подходят на роль “лесных человечков”. Впрочем, леса Мадагаскара не такие уж бескрайние, как хотелось бы, они слишком быстро вырубаются, так что надежды на сохранение мегаладаписов или каких-то иных гигантов призрачны. Остается надеяться на их возрождение с помощью клонирования, ведь потенциально гены можно добыть из костей. Дело за технологиями.Африканские галаго Galago – очень подвижные ночные животные, охотящиеся за насекомыми в кустарниковых зарослях. Галаго могут прыгать по ветвям на двух задних конечностях, балансируя длинным пушистым хвостом; из-за этого у них из пяточной и ладьевидной костей стопы развилась длинная цевка, хотя и не столь впечатляющая, как у долгопятов. Как и все немадагаскарские полуобезьяны, галаго – ночные животные, преимущественно насекомоядные, но уважающие и фрукты, и древесные соки.
Галаго уникальны тем, что переносят детенышей, держа их зубами, как кошки. Видимо, при столь бодром скакании цепляющийся за шерсть детеныш просто слетал бы с мамы.
Ископаемые галаго современного рода известны из миоцена и плиоцена – 3–11 млн лет назад – Северной и Восточной Африки. Там же жили похожие животные Laetolia, а несколько раньше – 15–20 млн лет назад – Mioeuoticus, Komba и Progalago, выделяемые в собственные подсемейства. Гораздо более древний сахарагалаго Saharagalago misrensis найден в отложениях конца эоцена Египта – 35–41 млн лет назад. Они уже древнее вадилемура Wadilemur elegans, жившего в том же Египте 34–35 млн лет назад, но классифицированного как представителя подсемейства Cercamoniinae (самого примитивного подсемейства среди адаписовых). Из всех адаписовых вадилемур и более древний джебелемур в наибольшей степени подходят на роль предков галаговых. Таким образом, корни галаговых, как и прочих современных полуобезьян, кроются среди изобилия эоценовых адаписовых. В те времена ареал таких животных мог расширяться и в более северные земли: среднеэоценовая хасселясия Chasselasia eldredgei, определяемая как примитивнейшее лориобразное, близкое к галаго, найдена в Швейцарии. То ли предки галаго мигрировали из Европы в Африку, то ли наоборот – новые находки должны прояснить ситуацию.
В противоположность быстрым галаго, африканские потто и азиатские лори – весьма медлительные животные с печальным выражением лица, не спеша подкрадывающиеся под покровом ночи к добыче и хватающие ее быстрым движением рук. Впрочем, все лориобразные едят и фрукты, а у африканских лори Perodicticus potto они составляют основу рациона.
Африканские золотые потто Arctocebus calabarensis – почти совершенные аналоги азиатских толстых Nycticebus и тонких Loris лори. Выше уже упоминалось, что толстые лори обладают ядовитыми железами на плечах и способны изображать очковую кобру, а потто обзавелись шипами на холке. Эти странные оборонительные стратегии, как бы чудно ни выглядели, достаточно действенны, чтобы обеспечить выживание своих обладателей.
Каранисия Karanisia из конца эоцена (35–41,2 млн лет назад) Ливии и Египта является древнейшим потто. Она была намного меньше своих потомков.
Лори современного рода Nycticebus linglom известны из миоцена Таиланда (18 млн лет назад). Родственные звери Nycticeboides simpsoni и Microloris pilbeami жили в Пакистане 9–10 млн лет назад, хотя неопределенные останки похожих животных есть там и в более древних слоях – до 15–16 млн лет назад.
Глава 42. Обезьяны.
Обезьяны, “сухоносые”, или высшие приматы (Haplorrhini), подразделяются на три большие современные группы: долгопятовых, широконосых и узконосых. Ископаемые обезьяны более разнообразны. Обезьяны в целом отличаются от полуобезьян более развитым мозгом с редуцированными обонятельными луковицами и, соответственно, плохим обонянием, зато хорошим зрением, ориентированными вперед глазницами, более-менее отделенными от височной ямки костной стенкой, свободной верхней губой и богатой мимикой.
Момент расхождения полуобезьян и обезьян определить очень трудно, потому что примитивные представители тех и других чрезвычайно похожи друг на друга. Примером может служить носмипс Nosmips aenigmaticus из Египта, живший 37 млн лет назад и известный лишь по дюжине зубов: по морфологии он годился бы на роль предка в основании адаписовых, прочих полуобезьян и обезьян. Однако датировка носмипса слишком поздняя для того, чтобы считать его универсальным пращуром. Не исключено, что носмипс представляет особую группу приматов.
Долгопятообразные Tarsiiformes.
Внижнем эоцене из какой-то группы полуобезьян выделилась линия современных обезьян, но почти сразу она разделилась на долгопятообразных и антропоидов. Поэтому долгопятообразные имеют едва ли не большинство признаков полуобезьян. По этой же причине раньше их включали именно в полуобезьян, потом стали выделять в самостоятельную промежуточную группу, а ныне рассматривают как специализированных и во многом примитивных, но все же обезьян.

Рис. 30. Archicebus achilles (а), Necrolemur (б), долгопят (в) и галаго (г).
Омомисовые (Omomyiformes) объединяют великое множество эоценовых долгопятообразных. Они были, наряду с адаписовыми, основными участниками второй радиации приматов в раннем эоцене. Не исключено, что их заря зарделась еще в среднем палеоцене Азии, так как в эту эпоху в Китае жил декоредон Decoredon anhuiensis. Однако это существо известно крайне плохо, неспроста изначально декоредон был определен вообще как кондиляртр.
Несравненно лучше сохранился архицебус Archicebus achilles – самая древняя настоящая обезьяна, лучше всех прочих подходящая на роль общего предка долгопятообразных и антропоидов.
Великий Предок – древнейший, наицелейший, примитивнейший и просто красавец. А у Икарушки бедного, Всеми братками забытого, Только бледные ножки торчат Из холодной зеленой водицы… Находки целых скелетов древних животных – большая редкость. А если эти животные к тому же жили на деревьях и не любили воду (а скелеты сохраняются преимущественно в водных отложениях), то вероятность обнаружения их останков крайне мала. Потому древнейшие приматы известны плохо и почти исключительно по зубам. Потому сенсацией стала находка почти целого скелета одного из древнейших приматов – архицебуса Archicebus achilles. В очередном номере журнала Nature китайско-американо-французская группа исследователей описала не только новый род и вид, но целое семейство древнейших приматов – архицебид Archicebidae (Ni et al., 2013). Новейшая находка уникальна по всем возможным показателям. Во-первых, датировка: скелет сохранился в отложениях, образовавшихся в самом начале эоцена, 54,8–55,8 млн лет назад. Такого древнего и одновременно целого скелета обезьян еще никогда не находили. Были, правда, скелеты полуобезьян, но эти два главных подразделения отряда приматов – совсем не одно и то же. Как всегда, огромный интерес вызывает момент расхождения главных эволюционных ветвей, зарождение новой группы. Омомисовые известны со среднего палеоцена, но в подавляющем большинстве случаев от них сохранились лишь зубы размером с песчинку. Доселе примитивнейшим представителем группы была тейярдина азиатская Teilhardina asiatica, описанная в 2004 году из отложений границы палеоцена и эоцена Китая, а древнейшими – декоредон Decoredon anhuiensis из середины палеоцена (с его статусом есть большие проблемы, далеко не все палеонтологи признают его за примата), анеморисис Anemorhysis tenuiculus и тетониус Tetonius homunculus из конца палеоцена, еще две тейярдины Teilhardina brandti и T. magnoliana, баатромомис Baataromomys ulaanus и два вида вастаномисов Vastanomys gracilis и V. major, синхронные новоописанному архицебусу. Показательно, кстати, что всплеск разнообразия приходится на границу между эпохами палеоцена и эоцена, ведь эта граница потому и определима, что отражает существенные изменения климата. Однако все эти зверюшки известны по столь скудным останкам, что ученым приходилось напрягать все усилия, чтобы разобраться в их родстве и хоть как-то представить их облик. Тут мы переходим ко второй уникальной особенности архицебуса – его сохранности. Скелет этого зверька сохранился не то чтобы целиком, но настолько, как палеонтологи могли только мечтать. Особенно радуют идеально сохранившиеся ножки и трогательный хвостик. С головой дела обстоят хуже, время не пощадило хрупкий череп, смяв его в не очень внятное пятно. Все же определимых и сравнимых признаков на скелете архицебуса на порядок больше, чем на любой другой находке древнейших обезьян (правда, сравнивать приходится опять же зубы, ибо от других приматов сохранились в основном они). Благодаря этим сохранившимся признакам возможно оценить третью уникальность архицебуса – его крайнюю архаичность. По сочетанию признаков он оказывается максимально приближенным к ожидаемому первопредковому для всех обезьян состоянию: с одной стороны, он лишен явных черт полуобезьян, с другой – отсутствуют специализации. Например, у архицебуса нет сращения большой и малой берцовых костей, нет у него и крайнего удлинения пяточной кости. Эти особенности древних омомисовых и современных долгопятов всегда огорчали исследователей, ведь омомисовые в принципе подходят на роль предков прочих обезьян, но подобные специализации ставят на идее предковости крест. Доселе оставалось предполагать, что более поздние обезьяны произошли от ранних неспециализированных форм омомисовых, но внешний облик таких предков оставался в значительной мере гипотетическим. По одним зубам о строении конечностей много не скажешь. У архицебуса же ноги – какие надо ноги, из таких могли возникнуть как скакательные лапки долгопятообразных, так и хватательные – антропоидов. Конечно, архицебус не мог не преподнести и сюрпризов. Например, в стопе предплюсна имеет умеренную длину, как у антропоидов, плюсна – большую, как у тупай и антропоидов (но в отличие от лемуров, адаписовых и долгопятов), а фаланги – тоже большую, как у долгопятов. Фаланги архицебуса сильно выпрямлены – специфическая особенность; самым длинным пальцем стопы был четвертый – это сближает архицебуса с адаписовыми и долгопятами. На примере стопы отлично видна очередная уникальная особенность архицебуса – сочетание признаков разных групп обезьян. В нем есть основа от долгопятообразных, но немного от широконосых, немного от узконосых, а что-то – и от эосимид, которые сами сочетают черты узко– и широконосых. Много примитивного и мало специализированного – идеальное сочетание для идеального Великого Предка. Ранее известные приматы обычно без особых проблем могли быть классифицированы либо как долгопятообразные, либо как антропоиды. Если бы от архицебуса были найдены только зубы, его тоже без малейших сомнений причислили бы к примитивным долгопятообразным и его имя затерялось бы среди бесчисленных “-омисов”. Но теперь у нас слишком много информации, чтобы так упрощать картину. Становится очевидным, что ранние обезьяны уже имели, хоть бы в зародыше, массу особенностей, одни из которых развились и усилились в одних группах, а другие – в других. В очередной раз приятно видеть, что понятия примитивности и продвинутости крайне относительны. Как же, наконец, выглядел архицебус и какой вел образ жизни? Это было небольшое – с крупную мышь, 20–30 г – животное, с округлой головой, не слишком большими глазами, маленькой суженной мордочкой, крохотным носом и острыми зубами. Очень длинный хвост служил противовесом при прыжках. Скакать он мог благодаря очень длинным задним ногам, а сравнительно короткими передними лапками цеплялся за ветки и хватал насекомых. Впрочем, и способ передвижения, и тип питания не были специализированы. Архицебус прыгал совсем не так специфически, как современные галаго и долгопяты, а мог и бегать на четырех ногах по ветвям. Преимущественно насекомоядная диета также не исключает того, что архицебус мог есть и другую пищу. Судя по размерам глаз, он вел дневной образ жизни. Самый целый из самых древних, наиболее примитивный и одновременно генерализованный неспециализированный, воплотивший в себе идеал Великого Общего Предка – о чем еще можно мечтать?! Приятно, когда в одной находке сочетается столько достоинств! Порадуемся же преодолению еще одной ступени познания!На самом деле, не только архицебус может быть предком высших обезьян, просто он очень уж хорошо сохранился. Из Индии известен вастаномис Vastanomys (54–55 млн лет назад), который обладал едва ли не самым примитивным среди всех омомисовых строением и, судя по зубам, был не насекомо-, а фруктоядным. Но от вастаномисов сохранились одни зубы, так что мы не знаем о строении их ног или черепа.
Таким образом, омомисовые явились предками долгопятов и высших обезьян – такая версия называется тарзиоидной гипотезой. Слава эволюции, что в самом начале группы омомисовых нашелся не слишком специализированный примат, давший начало более продвинутым обезьянам. Судя по всему, омомисовые специализировались чрезвычайно быстро, не успей зародиться линия антропоидов в начале эоцена, они могли бы и вовсе не появиться. Или же эволюция воспользовалась бы материалом из других групп – адаписовых или, возможно, даже плезиадапиформов.
Основные группы омомисовых – омомиды Omomyidae и микрохэриды Microchoeridae – жили в Северной Америке, Европе, Северной Африке, Южной и Восточной Азии. Те и другие имели очень маленькую – укороченную и суженную спереди – мордочку и округлый череп с огромными направленными вперед глазами. В строении зубов многих видов сохраняется такой примитивный признак, как четыре премоляра. Ноги омомисовых были длинными, со сросшимися малой и большой берцовой костями и резко увеличенной пяткой, образующей цевку. Очевидно, это были ночные, насекомоядные и активно прыгающие животные. Правда, во всех этих чертах омомисовые не превзошли долгопятов, но стремились к идеалу как могли; в силу не слишком далеко зашедшей специализации омомисовые могли внешне напоминать скорее галаго, чем долгопятов.
Микрохэриды были очень разнообразными в размерах животными: от 45 г у Pseudoloris parvulus до 1775 г у Microchoerus erinaceus. Объединяются они благодаря специфическому строению зубов: в частности, первые верхние и нижние резцы несколько увеличены и выдвинуты перед вторыми резцами. Не очень ясно, зачем им нужна была эта специализация.
Омомиды чрезвычайно многочисленны. Большинство их весило от 100 до 200 г, но были и рекордсмены: Teilhardina magnoliana была размером с мышь – 28 г, а Anaptomorphus westi, Gazinius amplus и Stockia powayensis с крысу – 465–475 г, Hemiacodon gracilis тянул на целый килограмм, а представители родов Rooneyia, Ourayia и Macrotarsius – от килограмма до 2520 г! Часть омомид питались преимущественно насекомыми (например, многие в подсемействе Omomyinae и представители трибы Washakiini), однако, в отличие от современных долгопятов, очень многие были фруктоядными (например, почти все представители подсемейства Anaptomorphinae), а некоторые даже листоядными (например, Hemiacodon gracilis).
Кстати, о размерах… Размеры ископаемых приматов определяются разными способами. Конечно, идеальный случай, когда в нашем распоряжении есть целый скелет. Но это бывает крайне редко. Чаще приходится довольствоваться отдельными зубами. Тогда в дело идет регрессионный анализ: из соотношений размеров зубов (например, площади первого верхнего или длины второго нижнего моляра) и веса тела у современных приматов высчитывается вес ископаемых животных. Дело Ж. Кювье живет и побеждает! Понятно, что погрешность таких вычислений весьма велика – у разных авторов и полученные разными методами цифры могут отличаться в разы, – да и индивидуальную изменчивость никто не отменял, так что публикуемые величины не должны восприниматься слишком буквально, а служат лишь примерным ориентиром. Можно обратить внимание, что почти никогда речь не идет о линейных размерах – длине тела. Дело в том, что приматы – гибкие зверюшки, они удивительно пластичны, даже у человека рост при нескольких измерениях легко может различаться на несколько сантиметров. Так что палеоприматологи предпочитают пользоваться определениями веса.Altanius orlovi – единственная полуобезьяна из Монголии; он определяет северную известную границу распространения этих животных в Азии. Меж тем фауны Северной Америки и Евразии весьма схожи. Либо обезьяны все же могли преодолевать Берингию, просто мы пока не нашли их в Сибири, либо они периодически форсировали расширявшиеся моря между Северной Америкой и Европой и между Европой и Азией, ибо Европа была островом между двух континентов. По этим же географическим причинам североамериканские омомисовые (как, кстати, и адаписовые) намного разнообразнее европейских: Северная Америка больше по размеру и богаче на условия, вот и животные были отличающимися, тогда как в Европе имелось меньше вариаций экологических ниш, отчего и приматы были схожими (Gilbert, 2005).
Омомисовые в Европе и Северной Америке дожили до границы эоцена и олигоцена (около 34 млн лет назад или чуть позже), после чего вымерли по тем же причинам, что свели в могилу адаписовых и многих прочих животных, процветавших в тропических лесах эоцена.
Долгопятовые (Tarsiiformes) современности обычно объединяются в один род Tarsius, хотя предложено разделить его на три, сохранив прежнее название лишь за сулавесскими видами, тогда как суматранско-калимантанские выделяются в род Cephalopachus, а филиппинские – Carlito (Groves et Shekelle, 2010). Впрочем, разница между ними очень невелика, даром что разошлись островные популяции как минимум еще в миоцене.
В строении долгопятов совмещаются признаки полуобезьян и настоящих обезьян. Это животные размером с крысу, с очень большими глазами и специализированными для прыгания ногами. Они активны ночью и питаются насекомыми. Во многих чертах строения проявляется резкая специализация: глаза столь велики, что не могут вращаться, отчего подвижность шеи резко увеличена, благодаря огромному позвоночному отверстию атланта (первого шейного позвонка) и хитрому строению межпозвоночных сочленений шея может поворачиваться задом наперед; мордочка крайне маленькая; кончики пальцев расширены в виде присосок, большая и малая берцовые кости срастаются, пятка резко удлинена в виде цевки для прыгания по ветвям, а второй и третий пальцы стопы снабжены когтями. Живут долгопяты семейными группами, общаясь друг с другом своеобразным щебетом, похожим на птичий.
О долгопятах подробно говорилось выше, тут помянем лишь их происхождение.
45 млн лет назад в Китае жили как минимум три вида долгопятов или чрезвычайно похожих на них существ, правда, известны они только по таранной и пяточным костям. Один из них весил всего 30 г – вдвое меньше самых маленьких долгопятов: карликовых Tarsius pumilus. Из того же времени Китая описан Xanthorhysis tabrumi, но от него найдены лишь зубы, так что совпадает ли он с одним из трех “таранно-пяточных” видов – непонятно.
Некий долгопятовый зверек жил в Таиланде около 34 млн лет назад, но известен он лишь по одному зубу. В это же время в Китае скакал Oligotarsius rarus.
Миоценовый Hesperotarsius sindhensis обитал 16–18 млн лет назад в Пакистане. Своим существованием он указывает, что древние долгопяты жили далеко за пределами своего нынешнего ареала.
К современному роду относятся три ископаемых вида, причем древнейший – Tarsius eocaenus – жил аж в эоцене, более 37 млн лет назад, в Китае. Почти современно выглядят Tarsius thailandica (18 млн лет назад) и Tarsius sirindhornae (13,1–13,3 млн лет назад) из Таиланда.
Выжить в Индонезии и на Филиппинах долгопятам помогла крайняя специализация, а позволил не слишком сильно менявшийся климат.
Возникновение высших приматов.
Время и место возникновения, а также родство первых человекоподобных обезьян-антропоидов – одна из наиболее дискуссионных тем в антропологии. Исследователей тут подстерегает множество трудноразрешимых сложностей: вечный недостаток материалов, крайняя ограниченность доступных для оценки морфологических систем, различие взглядов на таксономическую ценность тех или иных признаков. Поэтому, с одной стороны, каждая новая находка дает много нового, а с другой – интерпретации множатся и найти правду среди них сложно.
Первые человекоподобные-антропоиды известны почти исключительно по обломкам нижних челюстей, зубам и костям стоп. Никто еще не видел целого черепа и тем более скелета такой обезьяны. А ведь выглядеть она должна любопытно: это же переходное звено от полуобезьян к обезьянам. Понятно, что у такой зверюшки – как у любого приличного “достающего звена” – признаки предков и потомков перемежаются в полупереплавленном и частично мозаичном состоянии, что лишь добавляет головной боли систематикам, ибо трудно классифицировать цвета в непрерывном спектре, к тому же ветвящемся.
Начальные этапы эволюции высших приматов-антропоидов известны по четырем группам: эосимидам Eosimiidae, афротарзиидам Afrotarsiidae, амфипитецидам Amphipithecidae и парапитецидам Parapithecidae. Вместе они представляют третью радиацию приматов на границе эоцена и олигоцена. Есть два географических центра, где концентрируются находки: в Китае и Бирме с одной стороны и Египте с Ливией – с другой. Конечно, это не значит, что древнейшие антропоиды жили только там или что именно там от них возникли последующие группы. Просто именно в этих местах были подходящие условия для сохранения ископаемых останков, и именно тут их нашли палеонтологи, которым приходится действовать, как пьянице из анекдота, ищущему ключи под фонарем, потому что там светлее.
Кстати, о границе эоцена и олигоцена… Эоцен – геологическая эпоха, длинная и теплая, в которую вершились великие дела. Это было важное время. После катастроф конца мелового периода и палеоценовых заморозков Земля вновь покрылась тропическими лесами. Старое уступало место новому, полуобезьяны становились обезьянами, а среди последних появлялись особенные линии, часть из которых оказалась предками современных высших приматов. Многое известно об эоценовых приматах, но чем больше мы узнаем о них, тем мудренее получается картина. Важнейшие события происходили на самом закате эоцена, на границе олигоцена – следующей, более сухой и холодной эпохи. Почти с самого начала эоцена климат постепенно становился все более холодным, а рубеж эпох ознаменовался резким похолоданием-оледенением: в начале олигоцена оледенела Антарктида. Это погубило тропические леса Северного полушария, а вместе с ними – скакавших по ним приматов. Впрочем, во всем есть плюсы: антарктические ледники взяли на себя гигантские массы воды, уровень океана понизился аж на 55 м, так что многие проливы и даже моря исчезли, а между материками возникли мосты суши, например, Северо-Восточная Европа соединилась с Северной Азией, Южная – с Южной, а Африка стала гораздо ближе как к той, так и к другой. В это же время Индия, наконец, доплыла до Азии и воткнулась в нее. Правда, возникшие просторы оказались заняты в основном степями, так что приматы расселяться по ним до поры до времени не могли. Олигоцен – время раздолья примитивных носорогов, лошадей и верблюдов (например, всем известны индрикотерии: даже люди, никогда не интересовавшиеся палеонтологией, видели их в фильме “Звездные войны. Империя наносит ответный удар” в виде четвероногих машин, шагающих по ледяной планете Хот, – отличная, хотя и доведенная до крайности аллегория на реалии олигоцена). Неспроста и ластоногие, ставшие в своем роде символом стужи, появились именно в эту эпоху. Впрочем, не стоит и преувеличивать: даже в самые ужасно холодные этапы олигоцена климат был не морознее современного, а то и существенно теплее. Климатические и экологические перемены привели к исчезновению многих архаичных групп приматов и появлению более прогрессивных – обезьян. Одна из главных интриг – место появления обезьян. Как обычно бывает в палеоантропологии, за звание Великой Прародины борются два региона: Африка и Азия. Полуобезьяны известны из обеих, обезьяны – тоже, но где жили промежуточные звенья – вопрос не до конца решенный. С одной стороны, в Бирме и Китае были найдены многочисленные останки обезьян, относимых к семейству Eosimiidae, живших в среднем, а то и раннем эоцене, в основном около 45 млн лет назад. После их сменили Amphipithecidae, во многом схожие, но потреблявшие в пищу меньше насекомых и больше плодов. Намного позднее в Азии возникают Pliopithecidae. С другой стороны, в Северной Африке обнаружена масса видов, образующих семейства Afrotarsiidae, Parapithecidae, Propliopithecidae и Proteopithecidae. В среднем они моложе эосимид, но древнее многих амфипитецид, хотя по ряду признаков выглядят и прогрессивнее последних. Африканские ранние обезьяны вроде бы хорошо подходят на роль предков всех последующих обезьян, но вопрос – появились ли они изначально в Африке из местных полуобезьян, или их предки пришли все же из Азии. Конечно, неразберихи добавляет крайняя фрагментарность большинства находок и зачастую – неопределенность датировок. В изобилии зубов и обломков челюстей разобраться крайне сложно, а потому любые новые находки принимаются антропологами со смешанными чувствами: с пополнением данных картина вроде бы должна проясняться, но часто запутывается еще пуще.Древнейшие антропоиды были преимущественно древесными дневными растительноядными животными размером от долгопята до мартышки. Все они характеризуются смесью архаичных и прогрессивных признаков, поэтому систематика их весьма запутана.
Эосимиды (Eosimiidae): Anthrasimias, Bahinia, Eosimias, Phenacopithecus и Phileosimias – крайне примитивные антропоиды из эоцена (55–33 млн лет назад) Индии, Пакистана, Бирмы и Китая. Они сохраняли массу признаков полуобезьян, но по некоторым существенным чертам строения зубов могут быть признаны древнейшими настоящими обезьянами. Самый древний из них – Anthrasimias gujaratensis из Западной Индии, живший 54–55 млн лет назад, – был и самым мелким: он весил всего 75 г. Судя по зубам, он был фруктоядным или даже смолоядным. Более поздние представители семейства были покрупнее – 100–400 г. Самый крупный вид – Bahinia pondaungensis – весил примерно полкило, в самом крайнем варианте – меньше полутора килограммов. От эосимид сохранились в основном зубы и обломки челюстей, так что судить о внешности этих животных трудно. Известны лишь пара обломков черепов и горсть костей стопы эосимид.

Рис. 31. Eosimias (а), Amphipithecus (б) и Apidium (в).
Судя по обломку черепа бахинии Bahinia pondaungensis, ее глазницы, с одной стороны, были сравнительно небольшие, с другой – ориентированы наискосок, как у лемуров и адаписовых, а не вперед, как у обезьян (Rosenberger et Hogg, 2007). Бахиния имела крупную мордочку и высокое подглазничное пространство. Сходство ее черепа с адаписовыми по многим признакам более сильное, чем с омомисовыми. Это может быть следствием конвергенции, сохранения эосимидами примитивных черт в отличие от специализированных омомисовых, или же говорить о том, что эосимиды на самом деле полуобезьяны, а не обезьяны, с коими у них конвергентно схожи лишь зубы.
Верхняя челюсть фенакопитека Phenacopithecus krishtalkai по размерам такая же, как у долгопята, но его подглазничное пространство пропорционально такое же, как у антропоидов, самые мелкие из коих в полтора раза крупнее (Beard et Wang, 2004). Это свидетельствует о небольших размерах глазниц и, соответственно, дневном образе жизни фенакопитека.
Пяточные и таранные кости эосимид из Китая и Бирмы замечательны сочетанием признаков полуобезьян и обезьян (Gebo et al., 2000, 2001, 2002). Отличия между этими группами достаточно существенны, так как полуобезьяны предпочитают передвигаться по вертикальным веткам и очень прочно обхватывают их пальцами, а обезьяны используют гораздо более разнообразный репертуар движений, любят бегать по горизонтальным ветвям и не так сильно цепляются за них. Эосимиды уникальны, так как у них мы воочию видим переход от одного варианта к другому.
Уголок занудства. Полуобезьяны и обезьяны хорошо отличимы по форме костей стопы. На таранной кости латеральная лодыжковая поверхность (суставная фасетка для малой берцовой кости на боковой стороне кости) у полуобезьян наклонная, а у обезьян вертикальная. Также борозда на задней стороне блока, служащая для сухожилия длинного сгибателя большого пальца стопы у полуобезьян расположена латерально, а у обезьян следует плантарно вдоль задней стороны латеральной лодыжковой поверхности. Наконец, задний скат блока таранной у полуобезьян большой, а у обезьян маленький. На таранных костях Eosimias эти три особенности обезьяньи и четко отличаются от полуобезьяньих (Gebo et al., 2000). Впрочем, вопреки кажущейся логике, “обезьяний” вариант более примитивен, нежели “полуобезьяний”, так как именно обезьяны сохранили исходно приматное строение стопы, а полуобезьяны эволюционировали быстрее. Среди приматов эосимиды, что понятно, больше похожи на омомисовых, чем на высших обезьян: их таранная кость умеренно высокая и сравнительно узкая, имеет умеренный угол наклона шейки, мелкий блок и маленький задний скат блока. Обезьяньей и одновременно примитивной чертой выглядит укороченная медиальная лодыжковая поверхность (фасетка для соединения с внутренней лодыжкой большой берцовой кости). На пяточной кости полуобезьян задняя таранная суставная поверхность вытянутая и узкая, с хорошо оформленным плантарным краем, а обезьян – короткая и широкая, с размытым плантарным краем; эосимиды похожи на обезьян. Кубовидная суставная поверхность пяточной у полуобезьян и омомисовых широкая, плоская, веерообразная с центрально расположенной осью вращения, у обезьян круглая, с несуставной вырезкой в медиоплантарной части и смещенной медиально осью вращения; у Eosimias плоская, но округлая с вырезкой и медиально смещенной осью. На основании первой плюсневой кости у полуобезьян имеется большой бугор для прикрепления мощной длинной малоберцовой мышцы, а у обезьян его нет (у омомисовых есть, но не толстый, а узкий и высокий). На первой плюсневой кости из Китая, предположительно принадлежащей эосимиду, указанный бугор был (Gebo et al., 2008).Примечательно, что в среднеэоценовых экосистемах, где одновременно встречались адаписовые, омомисовые и эосимиды, первые были наиболее крупными, вторые – более-менее средними, а последние – самыми маленькими приматами. Такое распределение напрочь отличается от нынешнего, где долгопяты самые маленькие, полуобезьяны средние, а обезьяны – большие. Как часто бывает, современные стереотипы не срабатывают в приложении к древности. К тому же лишний раз подтверждается истина, что все великое вырастает из малого.
Кстати, о кузнечиках и капусте… Размеры обезьян связаны с их питанием: мелкие приматы должны поддерживать свой активный метаболизм, для этого им нужно много легкоусвояемых белков, которые легче всего получить, питаясь насекомыми. Крупные лучше сохраняют тепло за счет массы тела, так что им позволительно переходить на менее питательные, зато шире распространенные и легче добываемые ресурсы, самым дешевым из которых являются листья. И те и другие могут есть фрукты, ведь их более-менее легко добыть, но они при этом достаточно питательные. С другой стороны, только насекомыми питаться слишком большой примат тоже не может, потому что будет тратить слишком много усилий на охоту, но получать от этого несопоставимо мало выгоды. Приматологи, изучая диеты современных приматов, выявили несколько надежных закономерностей. В частности, существует так называемая “граница Кея” – вес в 500 г, – разделяющая тех, кто должен и может получать белки, постоянно питаясь только насекомыми, от тех, кто уже никак не способен на такое, зато может позволить себе жевать одни листья (Kay et Covert, 1984). Насекомоядные приматы, регулярно подкрепляющие свои силы фруктами, могут быть значительно крупнее “границы Кея” – до 1,4 кг. Те же, которые едят только листья и фрукты, не бывают легче килограмма (Kirk et Simons, 2001; Ramdarshan et al., 2010). Впрочем, ни одна из этих границ не позволяет оценить степень фруктоядности, так как в качестве десерта фрукты готовы уплетать приматы любого калибра. Практически все эосимиды оказываются легче “границы Кея”, так что с большой вероятностью белки они получали преимущественно из насекомых. Это не так странно, учитывая их вероятное происхождение от омомисовых приматов, многие из которых были именно насекомоядными. Однако строение зубов указывает, что все же основой диеты эосимид были фрукты. Такая диета при увеличении размеров тела легко могла превратиться в ту, что типична для современных антропоидов.Как уже упоминалось, филогенетические связи эоценовых и олигоценовых “недообезьян” остаются весьма туманными, тут еще неизбежны открытия и откровения. Очередным “достающим звеном” явился верхний моляр древностью 39 млн лет, найденный недавно в Центральном Тунисе. По зубу был описан новый род и вид амамрия Amamria tunisiensis (Marivaux et al., 2014). Казалось бы, всего один зуб, но он очень уж красиво связывает азиатских эосимид и североафриканских проплиопитековых приматов. Признаки амамрии отличаются от типичных эосимиевых как раз в направлении проплиопитековых, а от проплиопитековых – в направлении эосимиевых. Идеальное сочетание для “достающего звена”! Причем среди проплиопитековых сходство обнаруживается у самых древних и примитивных представителей – протеопитецид и олигопитецин, живших как раз чуть позже амамрии, – опять же красивее некуда. Отличия же амамрии от афротарзиид свидетельствуют, что последние мигрировали из Азии в Африку независимо.
Последние эосимиды дожили в Пакистане до начала олигоцена – Phileosimias kamali и Ph. brahuiorum, они известны всего по двум зубам. Но в это время мир занимали уже новые приматы…
Афротарзииды (Afrotarsiidae) – странная группа приматов с границы эоцена и олигоцена (39–29,5 млн лет назад) Египта, Ливии и Бирмы. В последнее время все настойчивее слышатся голоса палеонтологов, призывающих обратить пристальное внимание на эту группу. Первым был описан афротарзиус Afrotarsius chatrathi, живший примерно 30 млн лет назад в Египте. Как понятно из названия, сначала он был определен как африканский долгопят, благо и размеры у него были более-менее подходящие – от 188 до 357 г. Не так давно в местонахождении Дур-ат-Тала в Центральной Ливии были найдены зубы более древнего (35–39 млн лет назад) представителя того же рода, названного Afrotarsius libycus.
Кстати, о Ливии… Тут же – в Дур-ат-Тала – обнаружены зубы ископаемого потто Karanisia arenula, древнейшего олигопитекового Talahpithecus parvus и парапитекового Biretia piveteaui (Jaeger et al., 2010). Эта находка представляет огромный интерес, поскольку заполняет географический и хронологический разрыв в представлениях об эволюции сразу нескольких групп древних приматов. Картина пополнилась еще несколькими кусочками мозаики, причем в тех частях, которые доныне оставались темными. В частности, изменились представления о времени возникновения антропоидов. Ранее на основании существовавших палеонтологических данных предполагалось, что человекоподобные появились в Африке в эоцене. Однако новые находки показывают, что к середине эоцена в Африке уже существовал ряд очень разнообразных групп антропоидов. Это может означать, что либо эволюция этих приматов в Африке началась задолго до среднего эоцена (поэтому они успели разделиться на множество таксонов), либо что они возникли и дивергировали за пределами Африки (возможно, в Азии) и затем уже в течение среднего эоцена произошло заселение Африки различными их группами. Таким образом, Ливия может стать источником новых уникальных данных о ранней эволюции приматов, причем самых разных их ветвей. Ранее из Ливии была известна примитивная мартышка Prohylobates simonsi из нижнего миоцена. Осталось найти там еще австралопитеков, и Ливия вырвется в страны-лидеры по ископаемым приматам.Сходство афротарзиусов с эосимидами позволило классифицировать их как антропоидов. К египетскому виду предположительно относилась большая берцовая кость, на которой есть следы прирастания малой берцовой. Эта черта была сильным аргументом принадлежности афротарзиуса к долгопятовым, однако сопоставление изолированных зубов и костей всегда спорно. Есть даже большие сомнения – действительно ли этой костью обладал примат, а не какое-то другое животное? Строение же зубов Afrotarsius скорее антропоидное, чем долгопятовое.
Афразия вылазила до Африки из Азии. Совсем недавно международная группа ученых описала четыре новых зуба, на сей раз найденных в Бирме (Chaimanee et al., 2012). Казалось бы, четыре зуба – не столь уж велика куча, но уж больно удивительна география находок! Дело в том, что в эоцене, 37 млн лет назад, Северная Африка и Юго-Восточная Азия были разделены широким морем Тетис. На месте нынешних Ближнего и Среднего Востока плескались волны тропического моря, лишь местами разбивавшиеся о берега островов. Азия была напрочь отрезана от Африки, однако же приматы этих континентов удивительно схожи! Бирманскую обезьяну исследователи назвали афразией Afrasia djijidae. Тонкости строения зубов и сравнение их по примитивности – прогрессивности позволяют предположить, что первые подобные приматы возникли в Азии, но именно во время существования афразии переселились в Африку, дав там род Afrotarsius. Более того, авторы исследования утверждают, что многочисленные более поздние североафриканские примитивные антропоиды могли возникнуть тоже от азиатских переселенцев, но от других, нежели Afrasia, например от амфипитецид. Таким образом, море было вполне преодолимо для обезьян, хотя бы и изредка. Конечно, нельзя было в связи с этим забыть вечную проблему возникновения широконосых обезьян Южной Америки, у которых вроде как есть годные предки, но в Африке. Годами ведется спор – как они переправились с материка на материк. Преодоление Атлантического океана в некотором роде сопоставимо с преодолением Тетиса, хотя современные люди обычно удивляются первому событию, но ничего не знают о втором. Показательно, что не только обезьяны форсировали Тетис в поисках африканской благодати. Примерно в то же время аналогичный путь проделали гистрикоморфные грызуны, антракотерии и некоторые другие звери. Либо палеокарты врут, либо мы сильно недооцениваем живучесть животных и их способность к трансокеанским вояжам. В любом случае с новыми находками систематика приматов стала сложнее (обогатившись не только новым родом-видом, но и целым инфраотрядом Eosimiiformes, причем эосимиды оказались не слишком родственными амфипитецидам, хотя раньше предполагалась их тесная связь), география их распространения усложнилась, а поводов для размышлений добавилось. Таким образом, можно закончить великой банальностью: с новыми находками знаний наших прибывает, но и вопросов прибавляется стократ. И это хорошо!Амфипитециды (Amphipithecidae): Amphipithecus, Bugtipithecus, Ganlea, Krabia, Myanmarpithecus, Pondaungia и Siamopithecus – приматы, также промежуточные между полуобезьянами и высшими обезьянами. Они известны с границы эоцена и олигоцена (35–31 млн лет назад) Бирмы, Таиланда и Пакистана. Большая часть известных признаков позволяет отнести их к человекоподобным обезьянам, хотя сохранялись и примитивные черты, например три премоляра и несросшиеся половинки нижней челюсти. Размер этих животных был примерно с мартышку: от менее чем полкилограмма до 10 или даже более килограммов – заметно крупнее, чем у более древних антропоидов, да и вообще всех эоценовых приматов. Это были гиганты своего времени.
Внешность этих зверей остается загадкой. К амфипитеку в некоторый момент были отнесены два обломка лобных костей, но пересмотр показал, что они с большой вероятностью вообще принадлежали не то что не приматам, но даже не млекопитающим, они вообще непонятно чьи – даже класс этих животных остается неопределенным (Beard et al., 2005).
Кости прочего скелета тоже под вопросом. В слоях с пондаунгией и амфипитеком найден даже фрагментарный скелет без черепа, но как понять – кому он принадлежал, если виды описывались по зубам? По размерам и хроно-географической логике он мог принадлежать пондаунгии. Кости конечностей обладают смесью признаков нотарктид, адапид, лори, цебусовых широконосых, частично оригинальны, а в целом больше всего схожи с костями адаписовых (Ciochon et al., 2001). Либо скелет амфипитецид был гораздо примитивнее, чем их зубная система, либо верно подозрение, что кости принадлежали на самом деле не амфипитеку, а какому-то крупному сиваладапиду (Beard et al., 2007; Marivaux et al., 2008), тем более что зубы двух видов последних тут найдены. К тому же пяточная кость этого скелета не сходится с изолированной таранной из аналогичных слоев. Таранная тоже сочетает признаки полуобезьян и обезьян: с одной стороны, по совокупности измерений она гораздо ближе к таранным костям адаписовых и лемуров, а с другой – по части описательных показателей похожа на кости широконосых обезьян (Gunnell et Ciochon, 2008). Пока кости скелета амфипитецид не будут найдены вместе с черепом, сомнения о принадлежности этих останков продолжат грызть душу палеоприматологов.
Распределение признаков по видам запутано: таиландский сиамопитек Siamopithecus eocaenus – не самый древний, но наиболее примитивный и самый крупный представитель, тогда как пакистанский Bugtipithecus inexpectans – самый поздний, но один из самых примитивных и самый мелкий амфипитецид. Его размеры оказываются чуть ниже “границы Кея”, что предполагает насекомоядность. Более острые и гладкие бугорки зубов указывают на то же. Для большинства амфипитецид была характерна диета из орехов, семян, фруктов и листьев: она устанавливается по строению зубов, а также по значительному развитию нижних челюстей в высоту, очевидно, нагрузки на них были большими (Ramdarshan et al., 2010).
Клыкастая ганлея – гроза орехов. Центральная Бирма богата на находки амфипитецид. Она уже подарила миру собственно самого амфипитека Amphipithecus mogaungensis, самого древнего представителя семейства – мьянмарпитека Myanmarpithecus yarshensis, а также первого из описанных и самого изученного – пондаунгию Pondaungia cotteri. Но открытия продолжаются. В 2009 году был описан новый род и вид – ганлея Ganlea megacanina (Beard et al., 2009). Это была некрупная – 2,3 кг – по амфипитековым меркам обезьяна. Самая выдающаяся (в буквальном смысле) черта ганлеи – огромные нижние клыки. Но не стоит представлять себе оскаленную обезьяну с капающей с клыков кровью. Клыки ганлеи были сильно расширены и уплощены спереди назад, а верхушки их стерты. Больше всего такое строение напоминает резцы грызунов. Кстати, у очень похожего мьянмарпитека и чуть более отличающейся пондаунгии клыки сношены схожим образом. У пондаунгии эмаль моляров толстая и морщинистая, с низкими гребнями, что свидетельствует о питании слабоволокнистой едой. У амфипитека и пондаунгии к тому же верхние резцы широкие и уплощенные, с усиленными корнями, явно приспособленные к раскусыванию какой-то не самой мягкой пищи. Вероятно, эта группа животных была адаптирована к питанию орехами и твердыми семенами. Из современных приматов на них экологически больше всего похожи саки – широконосые обезьяны. Замечательно, что и по многим другим особенностям строения зубов амфипитековые оказываются ближе к южноамериканским широконосым обезьянам (а также североафриканским проплиопитековым), чем к жившим рядом эосимидам. Означает ли такое сходство истинное родство или лишь конвергенцию? Это пока неясно, тем более что география миграций получается уж очень широкой: азиатские амфипитециды должны были переселиться в Северную Африку, а их потомки – совершить оттуда заплыв до Южной Америки. Зато понятно, что ганлея со своими специализациями вряд ли могла быть предком узконосых обезьян. Krabia minuta – не краб на минуту, а обезьяна на века. Krabia minuta – так названа новая обезьяна, жившая примерно 34 млн лет назад, на границе эоцена и олигоцена, на территории нынешнего Таиланда (Chaimanee et al., 2013). Ее окаменевшие зубы были откопаны трудолюбивыми тайскими руками в отложениях формации Краби, а малые размеры зубов послужили основанием псевдохронометрического видового наименования. Но, конечно, не в названии интерес находки. Крабия – замечательный примат. Большая часть ее особенностей позволяет включить крабию в семейство амфипитецид. Однако ряд признаков зубов ставит ее особняком. Думается, не стоит утомлять ни в чем не повинного Читателя крайней бунодонтностью, сильным развитием лингвального цингулюма и отсутствием буккального, отсутствием гипоконусов и периконусов, редуцированными тригонами, слабыми парастилями и метастилями. Даже прожженные палеоприматологи не знают, что значило в жизни древней обезьяны наличие или отсутствие того или иного бугорка или бороздки. Для ряда признаков смысл более-менее очевиден (например, острые бугорки типичны для насекомоядных, а тупые – для растительноядных приматов), но у многих особенностей глубокого смысла может и не быть вообще. Однако это не мешает палеонтологам тасовать признаки, жонглировать ими в многомерных анализах, оценивать их таксономическую значимость и строить на их основании развесистые филогенетические схемы. Крабия жила в сообществе других приматов – как минимум пяти видов. Кроме нее, по деревьям тех же лесов древнего Таиланда скакали адапис Muangthanhinius siami, сиваладапид Wailekia orientale, амфипитецид Siamopithecus eocaenus, некий мелкий амфипитецид и некий долгопятоподобный зверек, остающийся пока безымянным. Среди этого зоопарка крабия существенно выделялась своими зубами. Главное – сам факт ее сильного отличия. Он свидетельствует о далеко зашедших процессах дифференциации и, стало быть, – длительности эволюции амфипитецид в Азии. Также крабия имеет некоторые черты, связующие ее с более древними азиатскими эосимидами; это важно, ибо доныне между амфипитековыми и эосимидами промежуточные формы были неизвестны. Одновременно особенности крабии сближают ее с африканскими ранними обезьянами и даже современными широконосыми, живущими вообще в Южной Америке. Понятно, что, будучи на несколько миллионов лет моложе африканских проплиопитековых и парапитековых, крабия не может быть их прямым предком, но коли у нее есть признаки древних азиатских эосимид, сама она относится к амфипитековым и одновременно похожа на африканских проплиопитековых, то в сумме это значит, что проплиопитековые возникли от амфипитековых, которые, в свою очередь, произошли от эосимид. Азия побеждает! Конечно, есть но. Во-первых, чехарда датировок. Крабия, как уже сказано, не может быть прямым предком африканских обезьян, поскольку моложе их. Она только демонстрирует связь разных групп через сохранение древних признаков, усложненных позднейшими специализациями. Отсюда вытекает “во-вторых”: некоторые из этих специализаций сами по себе исключают крабию из числа Великих Предков. По некоторым чертам лучше подходит на роль связующего Азию и Африку звена пакистанский амфипитецид бугтипитек Bugtipithecus inexpectans, но он жил вообще в нижнем олигоцене – еще позже крабии. Таким образом, амфипитековый предок африканских обезьян должен был жить в начале или, в крайнем случае, в середине эоцена. Таковой еще никем не найден. В-третьих, сходства крабии с африканскими древнейшими и современными обезьянами могут быть вообще конвергентными. В таком случае нет смысла выводить африканских обезьян из азиатских, у них могут быть собственные автохтонные предки. Такую точку зрения развивают палеоприматологи, изучающие североафриканские находки. Обилие и разнообразие африканских, европейских и североамериканских палеоценовых и раннеэоценовых полуобезьян позволяет сделать широкий выбор возможных предков. Наконец, в-четвертых, искомые Великие Предки вообще не обязаны были жить именно там, где мы находим больше зубов. То, что костеносные отложения сохранились и найдены в Бирме, Китае, Таиланде, Пакистане, Египте и Ливии, не говорит о том, что только там жили древние приматы. Великой Прародиной вполне могла быть, например, Индия, которая к этому времени как раз доплыла до Азии и воткнулась в нее. Проникшие туда приматы запросто могли в новых условиях и при незанятости экологической ниши совершить эволюционный рывок. А ведь еще есть Центральная Африка – terra incognita эоценовой палеоприматологии, есть Западная Африка, Восточная, Южная, наконец. Разнообразие древних приматов было несравнимо большим, чем нам известно. Раскопки продолжаются, новые зубы (а то – чем тафономия не шутит – и целые скелеты!) расскажут новые истории. Сколь много обезьянок древних готовит двадцать первый век….Последние амфипитециды дожили до начала олигоцена в Пакистане, хотя известны там лишь по восьми зубам, описанным как бугтипитек Bugtipithecus inexpectans. Впрочем, этот вид уж очень специфичен, по части признаков он похож на Plesiopithecus teras, который сам по себе загадочен, по части занимает промежуточное положение между эосимидами и амфипитецидами, хотя моложе тех и других (Coster et al., 2013). Не исключено, что бугтипитек представляет самостоятельную экзотическую линию антропоидизации омомисовых обезьян.
Наступал олигоцен. Эта засушливая эпоха ставила свои задачи, ответы на которые находили уже новые приматы…
Парапитековые (Parapithecoidea): Abuqatrania, Apidium, Biretia, Lokonepithecus, Parapithecus, Qatrania, Serapia, Moeripithecus и Arsinoea – полностью вымершая группа из позднего эоцена и раннего олигоцена (39–30 млн лет назад) Северной Африки, известна почти исключительно из Файюмского оазиса в Египте (только самая ранняя биретия Biretia piveteaui происходит из Ливии, а самый поздний локонепитек Lokonepithecus manai – из Кении). Наряду с эосимидами, афротарзиидами и амфипитецидами они были участниками третьей радиации приматов и с большой вероятностью явились предками последующих обезьян-антропоидов. Как и рассмотренные выше родственники, парапитековые имели смесь примитивных и продвинутых признаков. Причем распределение этих признаков довольно любопытное: ранние парапитековые не имеют ярких специализаций зубов и челюстей, а поздние их приобретают и становятся похожи на более древних эоценовых амфипитецид Азии. Такое хронологически нелогичное распределение, скорее всего, свидетельствует о конвергенции азиатских и североафриканских групп.
В отличие от азиатских примитивных антропоидов, парапитековые известны не только по зубам, но и полноценным черепам. В нашем распоряжении есть реконструированное лицо апидиума Apidium phiomense и целый череп более крупного парапитека Parapithecus grangeri. Внешне они напоминали современных мармозеток. Одной из самых интересных черт является очень маленький размер мозга: 11,4 см³ у парапитека. Это, конечно, больше, чем даже у более крупных адаписовых, но примерно столько же, как у аналогичных по размеру потто и лори, заметно меньше, чем у современных широконосых, и намного меньше, чем у узконосых. Относительная масса мозга получается совершенно “полуобезьянья”. Обращают на себя внимание крупные обонятельные луковицы: они, конечно, на минимальном пределе развития у полуобезьян, зато намного больше, чем у обезьян. Третий примитивный признак – размер зрительного канала, через который проходит зрительный нерв. У современных человекоподобных обезьян нерв и канал заметно толще, нежели у полуобезьян, а у парапитека оказывается ровно средним. Выходит, что мозг первых антропоидов развивался отстающими темпами в сравнении с зубами (Bush, 2004; Bush et al., 2004).
Уголок занудства. Сравнительно с более поздними антропоидами, апидиум и парапитек имели более узкую мордочку, их глазницы были еще в значительной степени развернуты вбок, а не смотрели строго вперед. Строение слуховой области, столь важной для систематики, у парапитека в наибольшей степени похоже на мелких современных широконосых и несколько примитивнее (что закономерно), чем у более позднего и сравнительно продвинутого Aegyptopithecus: барабанная пластинка окружает слуховой проход, но сохраняются уплощенные слуховые капсулы, образованные каменистой костью. Неожиданно продвинутой чертой является полное закрытие задней стенки глазницы у парапитека, так что лобная кость контачит с большим крылом клиновидной: широконосые обезьяны имеют в этом месте щель, а подобное парапитековому строение типично для узконосых. У апидиума, впрочем, эта область была схожей с таковой у цебусовых широконосых. Половинки нижней челюсти парапитековых срастаются (впрочем, у стоящей несколько особняком арсиноэи Arsinoea kallimos симфиз нижней челюсти несросшийся). Большинство парапитековых обладало тремя верхними и тремя нижними премолярами, но Parapithecus fraasi – только двумя. Parapithecus grangeri обладал странной и уникальной для приматов специализацией: у него были очень маленькие верхние резцы, а постоянных нижних не было вовсе, так что клыки оказывались самыми передними зубами и сходились между собой. При этом молочные нижние резцы у него наличествовали, а родственный и синхронный вид Parapithecus fraasi имел и постоянные.Парапитеки были мелкими обезьянками: от 126–242 г для Qatrania wingi до 559–1029 г для Serapia eocaena и несколько больше килограмма (по самой смелой оценке – до 3 кг) для Parapithecus grangeri, то есть крупнее долгопята, но меньше карликовой мартышки. От апидиума сохранилось довольно много останков, что позволило реконструировать целый скелет, от парапитека тоже есть кости конечностей. Их анатомия ясно свидетельствует о древесном образе жизни, четвероногой ходьбе, беге и прыгании по ветвям без подвешиваний на руках и вертикального лазания. Больше всего скелет парапитековых похож на скелет омомисовых и маленьких широконосых обезьян, но отличается от полуобезьян и узконосых. В частности, большая берцовая кость имела прочное соединительнотканное соединение с малой берцовой, подобное тому, что наблюдается у мышиных лемуров и многих широконосых. Внутренняя и наружная лодыжки были крупными, ограничивающими движения голеностопного сустава передне-задним направлением, что способствует силе и точности прыжков. При малых размерах тела такое строение вполне закономерно.
В отличие от предшественников и живших в то же время полуобезьян, чьи гастрономические пристрастия были весьма разнообразны, все парапитековые были фруктоядами, хотя некоторые разнообразили свое меню древесными смолами, а Parapithecus grangeri с большой вероятностью перешел на листоядность. Показательно, что 34 млн лет назад в Египте исчезли крупные фрукто– и листоядные полуобезьяны, эти ниши окончательно заняли антропоиды и сообщество африканских приматов приняло более-менее современный облик (Kirk et Simons, 2001). Впрочем, парапитековые на то и “пара-”, что еще не были совсем “-питеками”. Для того чтобы стать окончательными и безоговорочными обезьянами, им надо было продолжать развитие.
Великолепная миграция: широконосые обезьяны.
Широконосые обезьяны (Platyrrhini) – обезьяны Центральной и Южной Америк. По сравнению с узконосыми, широконосые сохранили ряд примитивных, почти полуобезьяньих признаков (например, слуховую капсулу, не полностью замкнутую глазницу, три премоляра), но компенсировали их редкостными специализированными чертами вроде хватательного хвоста и исчезновения третьих моляров у многих видов. Впрочем, для того чтобы распознать широконосую обезьяну, необязательно заглядывать ей в рот и считать зубы, можно узнать ее в лицо: носовая перегородка у нее будет толстая, а ноздри широко разнесены одна от другой и расставлены в стороны. Узконосые же обезьяны называются так не за габариты всего носа, а только за тонкую носовую перегородку; у какой-нибудь гориллы сам нос может быть сколь угодно широченный, но ноздри смотрят в одну сторону и расположены рядышком.
Возникновение широконосых весьма загадочно. Проблема в том, что Южная Америка большую часть своей истории была гигантским островом, полностью отделенным морями от прочих материков. Иногда она соединялась либо с Антарктидой (которая периодически бывала вполне теплым местом), а через нее – с Австралией, либо с Северной Америкой, а через нее – с остальным миром. Однако как-то так сложилось, что предки приматов в Южную Америку в палеоцене и первой половине эоцена не попали. А вот в середине или к концу эоцена – около 40 млн лет назад – они тут появляются, вдруг и без объявления войны. А ведь именно в это время Южная Америка находилась в очередном длительном одиночном заплыве. Ближайшей землей была Северная Америка, но самыми поздними известными оттуда приматами являются омомиды Rooneyia viejaensis и Macrotarsius montanus, имеющие в самом оптимистичном варианте датировку порядка 34 млн лет назад. Однако дело ведь не только в хронологии и географии: позднейшие североамериканские омомиды были весьма специализированными животными, из которых вывести широконосых довольно затруднительно. Конечно, всегда остается вероятность, что мы чего-то не знаем и переходные от омомисовых к широконосым пережили “темные века” на каком-нибудь острове в районе нынешней Панамы. Но тем наука и отличается, что оперирует фактами, а не догадками.
А факты таковы, что в Северной Африке в эоцене и олигоцене известно множество приматов, о части которых уже говорилось выше, в признаках которых там и сям проглядывают явственные черты широконосых. То есть получается замечательная ситуация: достаточно очевидные предки есть в Африке, а потомки – в Южной Америке. Вопрос: как они преодолели Атлантический океан? Потенциально это можно сделать несколькими способами. Во-первых, можно двинуться через Европу и цепочку островов в Северную Америку, а оттуда через Панамский пролив в Южную Америку. Во-вторых, из Африки можно пойти через Азию и Берингов пролив опять же в Северную Америку, а оттуда в Южную. Оба эти варианта неправдоподобны, поскольку предполагают слишком далекие миграции по областям, где по факту раннеолигоценовых приматов мы не находим; а Берингия к тому же совсем неподходящее для приматов место. В-третьих, из Африки теоретически можно добраться до Антарктиды, которая периодически соединялась с Южной Америкой. Этот путь не такой сумасшедший, как может показаться на первый взгляд, поскольку, как уже говорилось, климат в Антарктиде иногда был вполне тропический, а сама она соединялась с Южной Америкой. Главной проблемой были не морозы и айсберги, а морские просторы от Африки до Антарктиды. Мыс Доброй Надежды неспроста называется также Мысом Бурь; хотя в эоцене ситуация с ураганами могла быть несхожей с нынешней, все же вряд ли было какое-то течение, идущее тут с севера на юг. К тому же ископаемые сумчатые из Антарктиды известны, а плацентарные – нет.
Наконец, четвертой возможностью является вояж через Атлантику. На первый взгляд он выглядит тоже крайне сомнительным, но стоит учесть несколько важных моментов. Для начала ширина Атлантического океана была заметно меньшей, чем сейчас, ведь Южная Америка все последующее время двигалась на запад. Многим может показаться, что от Северной-то Америки до Южной всяко ближе, чем от Черного континента, но в реальности Северная миллионы лет ползла на юг, ее нынешнее положение сильно отличается от эоценового, так что расстояние от Северной Америки до Южной тогда было едва ли не большим, чем от последней до Африки. Северное и Южное пассатные течения несут воды от Западной Африки до Бразилии; неспроста в парусную эру капитаны по пути в Индийский океан предпочитали вести свои корабли от Европы сначала до Бразилии, а потом сворачивали обратно – уже к Южной Африке и мысу Доброй Надежды. Понятно, что у обезьян нет лодок, но большие реки Западной Африки – прежде всего Сенегал, Нигер и Конго – выносят в море огромное количество упавших деревьев, иногда сплетенных ветвями и корнями в довольно большие плавучие плоты. На этих естественных понтонах случайно оказываются самые разные животные, в первую очередь, понятно, древесные, в том числе обезьяны. Ясно, что долго без пресной воды они вряд ли могут протянуть, но, повторимся, океан был ýже, течение могло быть быстрее, так как на месте Центральной Америки зиял огромный пролив между Атлантическим и Тихим океанами шириной с хорошее море, да и дожди никто не отменял. К тому же никто и не говорит, что такой путь был налаженной торной дорожкой. Судя по морфологии и генетике современных широконосых обезьян, они происходят от одного предка. Не исключено, что плавание через Атлантику обезьяны совершили всего единожды. Теоретически это вообще могла быть одна беременная самка.
Достоверности сей гипотезе добавляет тот факт, что такой же путь, похоже, совершили предки кавиоморфных грызунов и плохо летающих птиц гоацинов – ныне эндемиков Южной Америки, а также амфисбен и гекконов, подходящие предки коих также обнаруживаются в Африке. Особенно интересно, что с большой вероятностью некоторые из этих групп появлялись в Южной Америке неоднократно. Споры об их происхождении не утихают многие годы, но позиция “африканистов” весьма сильна (Симпсон, 1983).
Как бы там ни было, обезьяны достигли своего Эдема. Они попали в замечательное место, где росли огромные деревья, из коры которых сочилась вкусная смола, на которых висели ароматные плоды и по которым ползали аппетитные насекомые. При этом не было ни одного достойного конкурента (южноамериканские грызуны появились примерно тогда же, но и они были почти все наземными, а немногочисленные древесные были медленными и глупыми; об опоссумах и речи нет), разве что птицы; в ветвях не прятался ни один хищник, специализированный на охоте за приматами и вообще за древесными животными, разве что птицы; да и вообще никто не мог сравниться с приматами в красоте и сообразительности, разве что птицы.
В итоге широконосые обезьяны оказались лучшим образцом кустообразной эволюции, когда в условиях незанятости идеальной экологической ниши на огромной территории из минимума предков за короткое время возникает широкий спектр линий, ближайшие из коих весьма похожи, но крайние варианты которых уже заметно отличаются друг от друга. Интересно, что многие древнейшие широконосые уже очень похожи на современных представителей, что свидетельствует о большой скорости первичного видообразования. Такое положение крайне осложняет систематику широконосых обезьян, поскольку очень трудно провести границы таксонов среди множества схожих родов и видов. В опубликованных таксономических схемах перебраны, кажется, все возможные сочетания семейств и подсемейств и все варианты отнесения подсемейств к тем или иным семействам, которых выделяют от двух до десяти; при этом обычно почти каждый род получает статус самостоятельного подсемейства. Даже молекулярная систематика в такой ситуации не то чтобы пасует, но не имеет преимущества перед классическими морфологическими методами установления родства.
Примерно 30 млн лет независимой от обезьян Старого Света эволюции дали ряд любопытных линий конвергенции, а также своеобразные группы, аналогов которым в Африке и Азии нет.
Древнейшие приматы Южной Америки долгое время были известны из Бразилии, но новейшие открытия сделаны в Перу, в отложениях, возраст которых с наибольшей вероятностью верхнеэоценовый, а то и финально-среднеэоценовый, возможно, древнее 40 млн лет и на десяток миллионов лет старше бразильских. В местонахождении Санта-Роза найдены четыре зуба приматов, из которых, правда, хорошо сохранился только один, а три прочих обломаны, так что исследователи не стали давать им формальные названия, чтобы не затруднять работу в будущем, когда появятся более полные находки.
Самый же сохранный зуб получил наименование перупитека Perupithecus ucayaliensis (Bond et al., 2015). Этот примат оказался очень примитивным – настолько, что его даже нельзя уверенно отнести к широконосым обезьянам. Он явственно архаичнее всех древних и тем паче современных широконосых, зато больше всего похож на зубы талапитека Talahpithecus parvus, который жил в Ливии тоже в конце эоцена (датировка его несколько спорна – 35–36 или 38–39 млн лет назад). Талапитек сам имеет не вполне понятное систематическое положение, так как описан всего по трем зубам, из коих два сломаны. Первоначально он был определен как олигопитековый примат, а олигопитеки – примитивнейшие обезьяны, в целом годящиеся в предки как широконосым, так и узконосым. Есть, правда, одна проблема: у олигопитековых на челюстях сохранилось только по два премоляра, а у широконосых их три. Сколько было премоляров у талапитека и перупитека – неизвестно, но в египетском Файюме есть находки похожих на талапитека обезьян с тремя премолярами. Таким образом, североафриканские корни южноамериканских широконосых вырисовываются с полной определенностью. Самое главное – нигде в мире больше нет более подходящих кандидатов на роль предков широконосых. Перупитек схож с североафриканскими древними приматами, примитивнее всех широконосых и хронологически вписывается аккурат между ними – что еще надо для полного счастья?!
Неожиданно новое открытие дало поддержку, хотя бы и призрачную, для североамериканской версии заселения Южной Америки. До сих пор считалось, что миграция совершилась около 26–27 млн лет назад, тогда как в Северной Америке позднейший примат жил 34 млн лет назад. С открытием же перупитека этот разрыв исчез! Впрочем, как уже сказано, этот аргумент очень слаб, ибо морфология важнее чисто хронологических соображений. В Северной Америке жили только полуобезьяны и омомисовые – довольно специализированные родственники современных долгопятов. Из них крайне проблематично вывести южноамериканских широконосых, а конкретно перупитек совсем на них не похож.
Так что теперь мы можем быть почти на 100 % уверенными (насколько в науке бывает 100 %-ная уверенность), что широконосые возникли из североафриканских антропоидов.
Открытие в Санта-Розе замечательно еще по двум причинам. Во-первых, судя по форме и размерам, три неназванных зуба могут представлять еще два вида, а то и рода приматов. Таким образом, уже в конце эоцена в Америке жили три вида обезьян! Из дополнительных зубов нижний моляр выглядит еще примитивнее, чем зуб перупитека, по признакам он занимает промежуточное положение между амфипитековыми и парапитековыми с одной стороны и широконосыми – с другой. Во-вторых, внимательный глаз бывалого географа может узреть, что Перуанская Амазония находится на прямо противоположном от атлантического побережья конце континента. То есть чтобы приплывшие из Африки приматы оказались у подножия Анд, им надо было пересечь весь материк. Думается, на это ушло какое-то время, очевидно, оно не было потрачено впустую, и по пути успели сформироваться несколько видов. Есть также вероятность, что приматы заселяли Южную Америку неоднократно (несколько миграций предполагалось также для южноамериканских грызунов, амфисбен и гекконов), этим можно объяснить довольно резкое отличие приматов Санта-Розы от более поздних широконосых и отсутствие находок в промежуточные этапы. Впрочем, для таких допущений нет особых оснований: за 10 млн лет признаки как раз должны были существенно трансформироваться, а находок в интервале от 40 до 26 млн нет, так как нет соответствующих местонахождений.
На что были похожи первые обезьяны Южной Америки – понять по зубам трудно. Можно лишь констатировать, что перупитеки были мелкими, вроде современных каллимико или тамаринов, причем неназванные виды были еще на треть меньше. Судя по строению зубов и их размерам, их обладатели были насекомо– и фруктоядными.
Кстати, о судьбе… Местонахождения ископаемых приматов, к сожалению, весьма редки. Обезьяны – животные древесные, а отложения почти всегда формируются в воде. Чтобы кости примата попали в палеонтологическую летопись, должно свершиться необычайное стечение обстоятельств: зверь должен или умереть около воды, или быть унесенным потоком, или упасть в воду и утонуть; тело не должны растащить и разгрызть хищники и падальщики, кости должны быстро покрыться слоем осадков, а вплоть до современности отложения не должны разрушиться в пыль; наконец, исследователи должны эти слои и кости найти, собрать, распознать и описать. Понятно, что каждый шаг на этом тернистом пути случайностей весьма маловероятен. Обезьяны очень редко падали в воду, крокодилы и пираньи не зевали, превратности геологической судьбы миллионы лет рушили напластования, палеонтологов мало, а планета велика, да и не везде реально производить раскопки по миллиону причин. Нам невероятно повезло, что есть вообще хоть какие-то местонахождения, содержащие останки приматов, хотя бы отдельные зубы, и уж тем более фантастично, что существуют сокровищницы, даже богатые обезьянами. Так что коли не судьба, то уж не судьба, а уж коли повезло – так надо радоваться!
Рис. 32. Branisella boliviana.
Собственно сами широконосые достоверно известны из верхнего олигоцена и нижнего миоцена. Древнейшей обезьяной Южной Америки, от которой сохранилось много останков, была браниселла Branisella boliviana, найденная в Боливии и имеющая датировку 26–27 млн лет назад. В 1991 году из тех же слоев был описан Szalatavus attricuspis, но, видимо, в реальности это та же браниселла. Показательно, что из всего бестиария ископаемых широконосых браниселла едва ли не единственная, не имеющая очевидной близости к какому-либо современному подсемейству, зато подходящая на роль общего предка. Всего на миллион лет моложе аргентинский Dolichocebus gaimanensis, но он уже может быть определен как капуцин – дифференциация началась.
Кстати, о древности… Датировка южноамериканских фаун – непростое дело. До появления и широкого использования радиометрических методов датировки мнения о возрасте тех или иных слоев выдвигались достаточно произвольно. В Старом Свете обычно есть возможность прокоррелировать слои из разных местонахождений, сравнить виды и прикинуть как минимум последовательность и относительный возраст отложений. Так и были созданы сами понятия эр, периодов и эпох, и описаны они были именно на основе европейских фаунистических комплексов. Однако южноамериканские животные столь сильно отличаются от европейских и даже североамериканских, что геохронологические шкалы, построенные для Южной Америки, оказываются “вещью в себе”. С последовательностью еще как-то разобрались, а вот с абсолютным возрастом долго не могли. Конечно, это привело к перекосам, причем преимущественно в сторону удревнения по сравнению с реальностью. В немалой степени этому способствовала архаичность южноамериканских зверей. Например, слои “сантакрусия” в аргентинской Патагонии сначала считались верхнеэоценовыми, потом финально-олигоценовыми, потом нижнемиоценовыми и, наконец, даже верхнемиоценовыми, то есть разброс был в пределах половины всего кайнозоя! Абсолютные датировки расставили все на свои места: сантакрусий соответствует все же нижнему миоцену. А ведь именно в этих отложениях были найдены останки гомункулюса Homunculus patagonicus: одно дело, если он синхронен адаписовым и омомисовым приматам, и совсем другое – проконсулам или сахелянтропам, есть же разница! Сейчас мы знаем, что гомункулюс жил в одно время с проконсулами.В отличие от более древних приматов, широконосые известны по весьма полным находкам, в том числе немалому числу целых черепов и нескольким скелетам. Поэтому мы точно знаем, что ископаемые широконосые принципиально не отличались от современных. Все они, без единого исключения, были древесными животными. Почти все были мелкими, как и нынешние их потомки, среди которых самые тяжелые – ревуны – редко превышают 12 кг. Только позднеплейстоценовые бразильские протопитек Protopithecus brasiliensis, картеллес Cartelles coimbrafilhoi и кайпора Caipora bambuiorum весили порядка или более 20 кг – в полтора раза тяжелее самых откормленных современных широконосых (раньше их реконструировали даже до 25–35 кг, но такие оценки наверняка завышены: Halenar, 2011).
Уголок занудства. Как уже говорилось, даже первые представители широконосых весьма похожи на современные формы и, очевидно, были их прямыми предками. Например, колумбийская Stirtonia и бразильский Cartelles сильно напоминают современных ревунов, колумбийский Miocallicebus – обезьян-прыгунов, аргентинский Tremacebus – ночных обезьян мирикин, бразильские Caipora, Solimoea и Protopithecus – паукообразных обезьян, аргентинский Dolichocebus, чилийский Chilecebus, колумбийская Laventiana, бразильский Acrecebus и панамский Panamacebus transitus – капуцинов, перуанская Canaanimico, аргентинские Mazzonicebus, Soriacebus, Propithecia, Carlocebus и Homunculus, колумбийские Mohanamico, Nuciruptor и Cebupithecia – уакари, аргентинская Killikaike и колумбийская Neosaimiri – беличьих обезьян саймири, колумбийская Cebupithecia и аргентинский Carlocebus – саки, колумбийские Lagonimico, Micodon и Patasola – игрунок. Возможно, уже в середине миоцена появляются современные роды, по крайней мере, в Бразилии из этого времени описан Cebus macrognathus.Когда Северная Америка соединилась с Южной, по Панамскому перешейку на юг хлынули орды новых животных: оленей, верблюдов, саблезубых тигров, медведей. На север миграции тоже были, но гораздо скромнее. Среди гигантских ленивцев, броненосцев и опоссумов были и приматы. Будучи тропическими животными, слишком далеко они, конечно, не продвинулись – их остановили степи и пустыни Северной Мексики, но Центральную Америку заселили плотно. Первым поспешил перебраться на новые земли Panamacebus transitus – около 20 млн лет назад, даже еще до полного соединения материков, когда между ними оставался небольшой пролив.
Еще интереснее, что обезьяны умудрились попасть на все крупные Антильские острова. Как эти древесные животные доплыли до них – остается загадкой, впрочем меньшей, чем тайна проникновения приматов в саму Южную Америку. Течения исправно выносят из Ориноко и других рек немалое число деревьев, а Гвианское течение влечет их на север – как раз вдоль Малых Антильских островов к Большим. Первым большим портом был Гаити, откуда известны плейстоценовый Insulacebus toussaintiana, родственный ночным обезьянам, а также прыгун Antillothrix bernensis, чьи субфоссильные останки датированы вообще голоценом (позднейшая дата – 3850 лет назад). Западнее лежит Куба. В миоцене тут жила родственница прыгунов паралуатта Paralouatta marianae, в плейстоцене ее сменила P. varonai. Интересно, что древнейшая паралуатта имеет очень крупные по широконосым меркам размеры, это как бы пример островного гигантизма. “Как бы” – потому что реальный размер был, конечно, не слишком значительным, примерно как у современных крупных ревунов. До совсем недавнего времени на Кубе жили буроголовая коата Ateles fusciceps, сейчас обитающая в Панаме, Колумбии и Эквадоре, A. anthropomorphus и, вероятно, еще один вид паукообразных обезьян.
Дальше всего забрался ксенотрикс Xenothrix mcgregori – он известен из плейстоцена Ямайки. Обращает на себя внимание отсутствие третьих моляров – как верхних, так и нижних, что вроде бы роднит ксенотрикса с игрунками. Однако, скорее всего, сие сходство сугубо конвергентно, так как подавляющая часть признаков достаточно специфична (благодаря чему обычно выделяется самостоятельное подсемейство Xenotrichinae, иногда даже признаваемое семейством) или сближает ксенотрикса с прыгунами.
Родство многих островных видов остается под вопросом. Подробные исследования показали, что Antillothrix, Paralouatta и Xenothrix весьма родственны между собой и ближе всего к современным прыгунам Callicebus (Horovitz et MacPhee, 1999). Это может значить, что до островов добрались далеко не все широконосые; в отсутствие конкуренции прыгуны дали свой всплеск видообразования (выражаясь умно – адаптивной радиации) с появлением конвергентных форм: Antillothrix разными чертами был несколько похож на саймири, капуцинов и игрунок, крупная Paralouatta – на ревунов, Xenothrix – на уакари. Впрочем, как уже было помянуто, до Кубы добрались и паукообразные обезьяны.
Любопытно, что теоретически обезьяны могли пропутешествовать и дальше: морские течения несут воды от Кубы до Флориды, где для приматов условия хоть и неидеальные, но терпимые. Да и расстояние там явно не больше, чем от Африки до Бразилии. Почему не осуществилась такая миграция – неизвестно. Скорее всего, просто по случайности, ведь не каждый день обезьяны совершают трансокеанские круизы на бревнах. Может, сказалось отсутствие очень крупных рек на Кубе или кипарисовые болота Флориды оказались все же слишком экзотическим местом для приматов.
Разнообразие широконосых обезьян очень велико, выделяется множество родов и видов, но систематика их очень запутана, единства среди антропологов по этому вопросу нет. Чаще выделяют семейства цебусовых и игрунковых.
Цебусовые (Cebidae) покрупнее, их размер колеблется от масштаба крысы до средней собаки. Это практически полностью древесные животные, на землю они почти не спускаются. В связи с этим хвост у многих цебусовых – паукообразных, ревуновых и капуциновых – приобрел хватательную функцию и действует как пятая конечность. Обезьяны могут брать им предметы, а не самые тяжелые паукообразные даже подвешиваются на нем без помощи рук и ног. На нижней стороне кончика хвоста нет шерсти, зато имеются папиллярные узоры, подобные кожным узорам на ладонях, стопах и пальцах. Рисунки линий индивидуальны, потенциально обезьян можно определять по отпечаткам хвоста; впрочем, зверюшки эти законопослушны, злостных правонарушений не совершают, так что надобности в “каудоскопии” нет.
Едят цебусовые преимущественно фрукты и листья, но и любую животную пищу, какую могут найти. Широконосые – дневные животные, кроме нескольких видов дурукули Aotus (они же мирикини или ночные обезьяны, иногда выделяемые в особое подсемейство Aotinae), являющихся единственными ночными обезьянами, а также родственных им прыгунов-тити Callicebus (Callicebinae), ведущих сумеречный образ жизни. Большие глаза дурукули делают их похожими на лемуров или сов, откуда происходит еще одно их название – совиные обезьяны. Прыгуны крайне разнообразны внешне, некоторые очень красивы. Они любят сидеть рядышком на ветке, трогательно переплетясь хвостиками. Между прочим, воротничковый прыгун, или белорукий тити-вдовушка, Callicebus torquatus имеет самый маленький среди приматов кариотип из 16 хромосом в диплоидном варианте.
Среди подсемейства цебусовых (Cebinae) собственно цебусы или капуцины Cebus имеют самый большой относительный размер мозга и сложное поведение. Как в неволе, так и в природе они используют простейшие орудия труда, например раскалывают орехи или раковины моллюсков о камни. Капуцины больше, чем другие широконосые, потребляют животную пищу. Сообразительность и живой нрав этих зверюшек обеспечили их успех у дрессировщиков и, в частности, на поприще киноиндустрии: именно капуцин играет обезьянку-привидение в фильме “Пираты Карибского моря”.
Ревуны Alouatta (Alouattinae) уникальны своим голосом: с помощью огромного горлового мешка-резонатора они могут кричать на несколько километров. Крики не беспорядочны: обязательно есть обезьяна-запевала, которая задает речовку могучему хору. Вся анатомия головы ревунов подчинена вокальной мании, особенно у взрослых самцов: нижняя челюсть с широченными восходящими ветвями, подъязычная кость имеет вид черпака, горло огромных размеров, а борода еще больше увеличивает визуальный эффект. Во время крика ревуны характерно, очень сосредоточенно и весьма брутально вытягивают губы трубочкой, чтоб, не дай бог, не потерять еще пару децибел. Кроме того, у ревунов указательный палец кисти работает вместе с большим, но отставляется от прочих – уникальный для приматов вариант.
Паукообразные обезьяны (Atelinae): коаты Ateles, шерстистые обезьяны Brachyteles и Lagothrix – имеют крайне вытянутые руки и ноги и длинный цепкий хвост. Пальцы на руках образуют своеобразный крючок, а большой палец редуцируется до маленького бугорка или вообще полностью, – это замечательный пример конвергенции с колобусами и гиббонами. Передвигаются паукообразные обезьяны брахиацией, то есть на руках, часто с минимальным участием ног. Конечно, так залихватски, как у гиббонов, у паукообразных скакать не получается, зато помощь цепкого хвоста придает передвижению особое своеобразие. За счет стройности тела относительный вес мозга паукообразных обезьян – один из наибольших среди мало-мальски крупных животных.
Саковые, или чертовы, обезьяны (Pitheciinae) – одни из самых эффектных приматов Южной Америки. Мохнатые саки Chiropotes satanas, Ch. chiropotes и родственные виды имеют окладистую бороду и раздвоенную шапочку на голове, сильно выступающую вперед: такое впечатление, что на них надели странный парик не по размеру. У Ch. albinasus к этой красоте добавляется ярко-розовое лицо. Белолицый саки Pithecia pithecia – вид с самым сильным половым диморфизмом среди приматов: самцы угольно-черные с широким плоским белым или оранжевым лицом, а самки серые с пестринками. Детеныши окрашены как самки, и только с возрастом самцы приобретают свое великолепие. У родственного вида P. monachus разница не так сильна, зато на голове самцов есть шапочка волос в стиле “под горшок”. Существуют и другие, тоже оригинальные виды.
Лысые уакари Cacajao calvus действительно лысые, при этом голова у них воспаленно-красного цвета. На неподготовленных людей они производят впечатление плешивых больных, но нет – так и должно быть, просто понятия о красоте бывают разные. Остальное же тело покрыто очень длинной и красивой шерстью, причем у подвида C. calvus calvus она белоснежно-белая, а C. calvus rubicundus – рыжая. Уакари иначе называются короткохвостыми саки, ведь хвост у них действительно короткий – каких-нибудь 15 см при почти полуметровом размере самого зверя. Редукция связана, как часто бывает у приматов, с крупными размерами и медленным передвижением, причем обычно по нижним ветвям деревьев. C. melanocephalus, наоборот, имеет густую шерсть на голове с начесом вперед: именно родственные виды должны максимально отличаться для избегания межвидового скрещивания.
Саймири, или беличьи обезьяны, Saimiri (Saimiriinae) – самые маленькие цебусовые, примерно четверть метра без хвоста, который в полтора-два раза длиннее тела. Это в своем роде апофеоз примата: мультяшные обезьяны максимально похожи именно на этих жизнерадостных существ с круглыми выразительными глазами, цепкими пальчиками, непрестанно что-то ищущих, исследующих, ковыряющих, бегающих огромными стаями, чирикающих и корчащих друг другу мордочки. Пять видов, из которых наиболее известен Saimiri sciureus, заселяют практически всю Южную Америку и часть Центральной.
Второе семейство широконосых – игрунковые (Callithrichidae), его представители известны также как мармозетки и тамарины. Они отличаются от цебусовых очень мелкими размерами – вплоть до величины мыши: карликовая игрунка Cebuella pygmaea может иметь длину тела всего 10 см (то есть длину пальца), плюс 20 см хвоста, и весить 100 г, хотя обычно они несколько крупнее. Прочие игрунки раза в полтора-два больше, но, конечно, тоже неспроста называются игрунками. Мелкие размеры нынешних игрунок – древнее приобретение. Уже среднемиоценовые Patasola magdalena и Micodon kiotensis имели уменьшенные габариты. Однако синхронный Lagonimico conclucatus весил 1,2 кг – многовато для любой современной игрунки; он же сохранял третьи верхние и нижние моляры, хотя и уменьшенные (Kay, 1994).
Мармозетки имеют только два моляра в каждой половинке челюсти, поскольку размеры черепа крайне малы и третьи просто не помещаются. Ручки настолько крошечные, что игрунки не могут обхватывать ветки пальчиками, поэтому большие пальцы не противопоставляются остальным, а ногти на руках и ногах вторично приобрели вид когтей; только на большом пальце стопы сохраняется плоский ноготь. По стволам эти крошечные зверьки передвигаются наподобие белок, в том числе вниз головой.
Игрунковые обезьяны представляют уникальную форму сообщества, в котором размножается только одна доминирующая самка, а все остальные члены группы, включая самцов, ухаживают за детенышами. Таким образом, мы имеем тут некий аналог социальной структуры общественных насекомых или голых землекопов. Конечно, у игрунок остальные самки не теряют способности к размножению и не превращаются в специализированных рабочих особей, но когда-то и муравьи с чего-то начинали. В отличие от остальных приматов, у мармозеток чаще всего рождается двойня (бывает и один, и три дитятки, но гораздо реже). Не очень понятно, в чем причина этого; есть мнение, что мелкой самке проще родить двух маленьких детенышей, чем одного крупного, хотя логика тут сомнительная, ведь проще-то родить одного мелкого. У многих видов большую часть заботы о малютках берет на себя отец: он сажает их на спину, носит с собой, чистит и оберегает, холит и лелеет. Только для кормления молоком папаша отдает ненаглядных отпрысков маме, но потом ревниво забирает обратно.
Игрунковые делятся на собственно игрунок родов Callithrix (иногда из него выделяются еще Callibella и Mico) и Cebuella, а также тамаринов родов Leontopithecus и Saguinus. Разнообразие тех и других крайне велико: усы и хохлы, гривы и кисточки на ушах, пятна и полосы – все идет в ход для отличия от родственников.
Игрунки питаются древесным соком; для его получения животные надгрызают стволы острыми резцами. Погрызы затягиваются тягучей смолой, которую игрунки тоже едят. В итоге все дерево покрывается овальными наростами; когда на нем не остается живого места, игрунки находят себе новое дерево. Только белоухие игрунки Callithrix aurita не умеют надгрызать кору из-за слишком маленькой мордочки, но все равно основу питания составляет смола и древесный сок, они пользуются наработками других видов. До половины рациона игрунок составляют насекомые, главным образом большие кузнечики и личинки, которых обезьянки постоянно ищут в трещинах коры своими тонкими пальчиками. Не пропускают они фрукты, птичьи яйца и даже птенцов, ящериц и лягушек.
Внешне особенно красива обыкновенная игрунка Callithrix jacchus с пучками белого пуха на ушах и пестрой серо-желтой спинкой; несколько других видов в целом похожи на нее, но, например, у белолицей игрунки C. geoffroyi кисточки ушей серые, а у черноухой C. penicillata – черные и к тому же висячие.
В отличие от игрунок, у тамаринов клыки намного больше, а резцы значительно меньше, а потому они неспособны прогрызать кору деревьев. Тем не менее они тоже любят древесные соки, смолы и нектар, хотя чаще, чем игрунки, ловят насекомых и прочих животных, а также едят фрукты и цветы. Среди тамаринов особенно выделяется императорский Saguinus imperator – с огромными висячими усами а-ля Вильгельм II, только у обезьянки усы висят вниз, а у кайзера торчали вверх. По-королевски выглядит и эдипов тамарин S. oedipus – с белоснежным плюмажем на голове.
Очень впечатляют пышной гривой львиные тамарины, из которых Leontopithecus rosalia выделяется золотым цветом. Другие могут быть контрастны: например, L. caissara имеет золотую шерсть с черными лицом, руками и хвостом, а L. chrysomelas – черную шерсть с золотыми лицом, руками и хвостом.
Гельдиева мармозетка, или каллимико, Callimico goeldii (Callimiconinae) в целом похожа на других представителей семейства, однако имеет три моляра, то есть может представлять потомков исходной для игрунок группы. Она равномерно окрашена в черный цвет.
Амазония велика, а потому раз в несколько лет исследователи находят в сельве новые виды широконосых обезьян. К сожалению, леса безжалостно вырубаются, и многие виды оказываются на грани вымирания. Часть из них, как золотистых тамаринов, удается спасать в зоопарках, но часть может пропасть, не будучи даже открыта. Есть, конечно, и радостные моменты: в 2013 году в Бразилии была вновь найдена мармозетка Марка Callithrix marcai, с 2008 года считавшаяся уже вымершей.
Бывают и “закрытия”. Как-то по чучелу из одного музея был описан особый вид игрунки замечательного пепельного цвета. Однако потом выяснилось, что чучело принадлежало ранее известной мармозетке, шкурка которой просто покрылась густым слоем пыли за долгие годы хранения.
Широконосые обезьяны известны своей склонностью образовывать группы из представителей разных видов, рядом с которыми могут кормиться и не приматы. Такое сообщество оказывается лучше защищено от хищников: например, еноты-носухи лучше нюхают, попугаи – слышат, а обезьяны – видят и соображают. Какой-нибудь онцилле или оцелоту нелегко обмануть сразу всех этих животных. Так что толерантность заложена в глубине души широконосых обезьян; если будущее человечество возникнет из капуцинов, оно наверняка будет терпимее нынешнего.
Новые приматы Старого Света: примитивнейшие узконосые обезьяны.
Узконосые обезьяны (Catarrhini) – обезьяны Старого Света: Африки, Азии и Европы. Они появились уже в верхнем эоцене, а на границе с олигоценом стали достаточно разнообразными. Как всегда бывает, переходные группы трудно однозначно классифицировать, так как они зависают между предками и потомками. В данном случае палеоприматологи нашли элегантный выход: примитивнейшие узконосые, которые не могут быть однозначно определены как мартышковые или человекообразные, выделяются в парвотряд “ранних узконосых” Eocatarrhini, тогда как более продвинутые формы, имеющие непосредственное отношение к современным, обозначаются как “истинные узконосые” Eucatarrhini. Маленькая буковка в названии, но огромный скачок в морфологии!
“Ранние узконосые” (Eocatarrhini) сами по себе подразделяются на две группы: более древние и примитивные проплиопитековые (Propliopithecoidea) известны исключительно с границы эоцена и олигоцена Северной Африки (почти исключительно из Египта), а поздние и относительно продвинутые плиопитековые (Pliopithecoidea) – из миоцена Уганды, Европы и Азии.
Проплиопитековые (Propliopithecoidea) имели еще довольно много архаичных черт строения, поэтому их систематический статус неустойчив: разные палеоприматологи предлагали объединять их с парапитековыми или, напротив, включать в состав человекообразных. Самые ранние формы – самые загадочные, что, в общем-то, закономерно.
Олигопитековые (Oligopithecinae), названные по роду Oligopithecus из нижнего олигоцена (31–33 млн лет назад) оазиса Файюм в Египте (предположительно туда же включаются катопитек Catopithecus browni из более старых отложений того же Файюма и еще более древний талапитек Talahpithecus parvus из верхнего эоцена Ливии), разными исследователями определялись как самостоятельное семейство Oligopithecidae надсемейства проплиопитековых (Propliopithecoidea), как подсемейство семейств проплиопитецид (Propliopithecidae) или плиопитецид (Pliopithecidae; в варианте с выделением подсемейств Propliopithecinae, Pliopithecinae и Oligopithecinae), как синоним проплиопитецид или парапитецин (Parapithecinae), включались в понгид (Pongidae) и даже в надсемейство адаписовых (Adapoidea), а также в качестве семейства в инфраотряд Paracatarrhini гипотряда Anthropoidea. Можно надеяться, что новые находки позволят точнее определиться в этом сложном вопросе. В то же время и в том же месте, что олигопитеки, жил странный примат – протеопитек Proteopithecus sylviae, выделенный в собственное семейство Proteopithecidae; впрочем, по общему эволюционному уровню, размерам и образу жизни он не очень отличался от своих соседей.
Очень здорово, что приматы Файюма были массовыми животными, особенно многочисленны были катопитеки, на втором месте по частоте – протеопитеки. От них, да и других приматов сохранились не только зубы, но и черепа и части скелетов. Благодаря такому богатству нам известны многочисленные подробности строения и образа жизни египетских позднеэоценовых и раннеолигоценовых обезьян; ни о каких других синхронных приматах у нас нет столь обширных сведений.
Олигопитековые и протеопитек еще имели некоторые примитивные черты: например, барабанная пластинка у них не полностью окружала слуховой канал. Зато был и прогресс: скажем, в челюстях осталась всего пара премоляров – черта, не очень надежно, но наглядно разграничивающая узконосых и всех прочих приматов. Олигопитековые имели вес от трети до полутора килограммов, вели дневной образ жизни, питались преимущественно фруктами, дополняя их листьями и иногда насекомыми; протеопитек мог вдобавок к тому лакомиться смолами и нектаром.

Рис. 33. Череп Aegyptopithecus zeuxis и реконструкция Propliopithecus.
Любопытно, что половой диморфизм по размерам клыков у катопитека и особенно протеопитека был выражен сильнее, чем у схожих по размеру тела современных обезьян (Simons et al., 1999). Крупные размеры клыков у самцов и мелкие у самок свидетельствуют о существенной межсамцовой конкуренции. Группы катопитеков и протеопитеков состояли либо из нескольких самцов со строгой иерархией и множества самок, либо вообще из одного самца с гаремом самок. Такая структура нетипична для полуобезьян, зато характерна для многих узконосых.
Пяточная кость протеопитека замечательна чудной смесью признаков, одни из которых почти идентичны чертам омомисовых, другие – видимо, конвергентно – мартышковых, а кои – так и вообще адаписовых (Gladman et al., 2013). Очевидно, на этом эволюционном уровне строение конечностей отставало от челюстей и зубов.
Позднейшим олигопитековым был некий неопределенный примат, живший в начале олигоцена в Египте. Он отличался карликовыми размерами – существенно меньшими, чем у Catopithecus и Oligopithecus (Seiffert et Simons, 2013). Трудно сказать, что довело его до жизни такой, а в конце концов и до вымирания.
Кстати, о Файюме… Файюмский оазис широко известен среди искусствоведов файюмскими портретами, сделанными на крышках саркофагов (кстати, это отличный источник антропологической информации). Но палеонтологи любят Файюм совсем не за это: в нескольких карьерах они нашли и продолжают раскапывать сотни или даже тысячи окаменелостей эоценовых и олигоценовых животных. В Файюме найдены одни из древнейших слонов и слоновых прыгунчиков, даманов и сирен, антракотериев и китов, странных арсиноитериев и еще более странных птолемайид, летучих мышей и грызунов. Нынешняя пустыня 41–29 млн лет назад была цветущим садом, в болотах которого жизнь била ключом. Из Файюма известны самые разные приматы, в том числе предковые для нескольких крупных современных групп.Проплиопитековые в узком смысле (Propliopithecinae) не слишком разнообразны – Aegyptopithecus zeuxis и четыре вида рода Propliopithecus – и известны только из Файюма в узком хронологическом интервале 29,5–31,5 млн лет назад, но чрезвычайно важны филогенетически. Один клык найден в Анголе.
Сложность разграничения парапитековых и “ранних узконосых” отлично видна на примере оманской находки в местонахождении Таках. Тут был обнаружен обломок нижней челюсти с пятью зубами. Первоначально он был описан как мэрипитек Moeripithecus markgrafi – вид, ранее известный из египетского Файюма (Thomas et al., 1991). Мэрипитек похож на проплиопитека, почему включался в проплиопитековых и даже иногда обозначался как Propliopithecus markgrafi. Зубы из Файюма, описанные как Propliopithecus ankeli, некоторыми палеоприматологами тоже определялись как принадлежавшие Moeripithecus markgrafi. Однако другие исследователи склонны обращать большее внимание на примитивные черты мэрипитека и включать его в парапитековых. В то же время оманская челюсть больше сближается с видом Propliopithecus ankeli, который признается самостоятельным и остается в проплиопитековых. И такая путаница сопровождает исследование почти каждой находки примитивных обезьян с границы эоцена и олигоцена.
Другой пример – алжирипитек Algeripithecus minutus: он описывался как парапитековая или плиопитековая обезьяна, однако с большей вероятностью является адаписовой полуобезьяной (Tabuce et al., 2009).
Из проплиопитековых лучше всего изучен египтопитек Aegyptopithecus zeuxis из олигоцена Египта (29,5–30,2 млн лет назад), от которого сохранились несколько целых черепов и фрагментарные скелеты. На первый взгляд египтопитек напоминал современных макак, благо он практически полностью соответствует им и размерами (2,5–6 кг), и пропорциями. Однако приглядевшись, в строении египтопитека нетрудно заметить массу примитивных черт: задняя стенка глазницы закрыта, да не вполне, барабанная пластинка окружает слуховой канал, но тоже не полностью, – тот и другой признаки развиты примерно как у широконосых обезьян. Совсем подкачал мозг: он у египтопитека вдвое меньше, нежели даже у карликовой мартышки (Radinsky, 1973; Simons et al., 2007). И относительный размер, и пропорции мозга египтопитека вообще оказываются как у мадагаскарских лемуров, хотя участки мозга, отвечающие за зрение, у египтопитека чуть больше, а за обоняние – чуть меньше; впрочем, на фоне современных обезьян эти “чуть” не считаются. Между прочим, это говорит о том, что увеличение мозга у широконосых и узконосых обезьян шло независимыми путями, коли уж общие предки по этому показателю находились на уровне развития полуобезьян. А это, в свою очередь, позволяет надеяться на появление в будущем новых разумных видов.
Судя по маленьким глазницам, египтопитек был дневным, а их разворот вперед говорит о хороших способностях к лазанию по деревьям. О том же свидетельствует строение конечностей: эти животные бегали по ветвям примерно как современные ревуны. В строении конечностей вообще много сходства именно с широконосыми обезьянами: руки и ноги были одинаковой длины, относительно толстые и короткие, неспособные полностью выпрямляться, зато очень цепкие. Далеко прыгать египтопитеки вряд ли умели, но хвост не утеряли, хотя вряд ли он был очень длинным.
Строение зубов свидетельствует, что египтопитеки и проплиопитеки питались почти исключительно фруктами, восполняя недостаток белков листьями. Таким образом, насекомоядное прошлое наконец-то было окончательно изжито.
Обилие черепов позволило оценить половой диморфизм и даже возрастные изменения египтопитеков: самки были существенно – вдвое – меньше и имели меньшие клыки и сагиттальные гребни на черепе. У проплиопитеков разница полов была далеко не такая значительная. С возрастом, как положено, росла морда и увеличивался сагиттальный гребень (Simons, 1987).
Плиопитековые (Pliopithecoidea), вероятно, были потомками проплиопитековых. Эта странная группа процветала от начала до конца миоцена (20–7 млн лет назад) в Китае, Таиланде, Пакистане и Европе, а одна спорная находка сделана в Уганде. Систематика плиопитековых остается предметом бурных дискуссий. С одной стороны, они объединялись с проплиопитековыми, с другой – с гиббонами. В одном из новейших вариантов плиопитековые делятся на дионисопитецид (Dionysopithecidae) и плиопитецид (Pliopithecidae); последние же – на более древнее подсемейство плиопитецин (Pliopithecinae) и более молодое крузелин (Crouzeliinae).
Кстати, о миоцене… Граница олигоцена и миоцена ознаменовалась существенным потеплением и таянием льдов Антарктиды. Тепло, правда, не вернулось к эоценовому уровню, но все же существенно превосходило современные показатели. Карта мира в целом и Евразии в частности приобрела более-менее современный вид, только юг Европы еще существенно отличался: как бы Средиземное море тянулось аж до середины нынешних Украины и Казахстана, а посреди этих вод возвышались острова, которых не найти на современной карте, в числе коих знаменит Гаргано. Примерно с середины миоцена опять стало холодать, причем ударными темпами, так что с климатической точки зрения границу между эпохами логично было бы проводить именно тут – порядка 12–14 млн лет назад.Дионисопитециды (Dionysopithecidae) представлены всего тремя нижне-среднемиоценовыми (12–20 млн лет назад) видами из Таиланда, Китая и, видимо, Пакистана – Dionysopithecus orientalis, D. shuangouensis и Platodontopithecus jianghuaiensis, но известны фрагментарные и плохо изученные находки, которые могут представлять иные роды и виды. Сложность, как обычно, в том, что найдены почти исключительно изолированные зубы. Отдельными чертами эти животные уже настолько напоминали человекообразных обезьян, что некоторые палеонтологи объединяют их с проконсулами, хотя в целом они примитивнее плиопитецид. Дионисопитек числится в сонме вероятных предков гиббонов, благо и размером он был похож – около 15 кг. Вместе с тем пяточная кость платодонтопитека довольно примитивна и похожа на кости плиопитеков и проконсулид, а если выбирать между мартышковыми и человекообразными, то на мартышковых. Фаланги платодонтопитека очень вытянуты, по этому показателю их превосходят только гиббоны (Harrison et Yumin, 1999). Дионисопитециды были вероятнейшими предками плиопитецин, которые, таким образом, имели прародину в Азии.
Не исключено, правда, что плиопитековые возникли не в Азии, а в Африке. За это говорит существование ломорупитека Lomorupithecus harrisoni в Уганде 15–20 млн лет назад и возможного плиопитекового в Кении в местонахождении Форт Тернан, правда, уже в конце миоцена 12,5–14 млн лет назад (его зуб был отнесен к Limnopithecus – роду, раньше причислявшемуся к плиопитековым, но ныне считающемуся проконсулидом, то есть человекообразным). Ломорупитек известен по разбитому черепу, в целом похожему на плиопитековых Европы. Его древность – едва ли не старше дионисопитецид – и географическое расположение говорят, что корни плиопитековых могут быть глубже, чем нам известно.
Плиопитецины (Pliopithecinae) сыграли большую роль в истории палеонтологии, поскольку их останки впервые были найдены и описаны еще в середине XIX века. Благодаря этому они вошли во все учебники антропологии, хотя, строго говоря, наверняка были тупиковой группой приматов, имеющей к человеку лишь косвенное отношение. Они известны из Европы и Китая, где существовали не слишком долго – от 17 до 11,6 млн лет назад. Достоверно известен лишь один род Pliopithecus, в котором выделяются шесть-семь похожих видов. Некоторые роды от схемы к схеме кочуют между плиопитецинами и крузелинами.
Плиопитеки из всех ископаемых приматов в наибольшей степени похожи на гиббонов, причем как строением черепа, так и зубов и конечностей. Неспроста самый примитивный европейский вид Pliopithecus piveteaui был даже описан под названием Hylobates antiquus. Впрочем, это не значит, что плиопитеки больше всего похожи на гиббонов из всех современных приматов; при таком ракурсе сравнения плиопитеки сближаются скорее с широконосыми или мартышкообразными. Плиопитеки были довольно резвыми древолазами, но точно не брахиаторами.
Особенно здорово изучен Pliopithecus vindobonensis (15–15,5 млн лет назад), так как в Словакии были найдены многочисленные его останки, а Г. Запфе описал их в монументальном труде (Zapfe, 1960).
Уголок занудства. Плиопитек имел укороченную и суженную морду, сравнительно грацильную мозговую коробку округлой формы с более-менее вертикальным лбом, умеренно развитые височные линии, либо не сливавшиеся, либо образующие низкий сагиттальный гребень. Глазницы довольно крупные, ориентированные почти вперед, но все же несколько вбок, их край утолщен почти в виде кольца. Наглядное отличие от мартышкообразных – широкое межглазничное пространство. Скуловая область очень низкая. Угол нижней челюсти выступает назад. Особенности строения зубов выдают фруктоядность. Примитивной чертой является неполное срастание барабанной пластинки – для миоцена очень примитивная черта. В сравнении с гиббоном плиопитек имел практически той же длины ноги, но куда как более короткие и толстые руки. Если у гиббона руки заметно длиннее ног, то у плиопитека – наоборот; пропорциями он больше напоминал ревунов или павианов. Кисти и стопы плиопитека были удлинены, а фаланги сужены и изогнуты, хотя и не в такой степени, как у гиббона. Тело, судя по всему, было тонкое и длинное. Строение крестца наводит на мысли о сохранении хвоста.Крузелины (Crouzeliinae): Plesiopliopithecus, Crouzelia, Barberapithecus, Anapithecus, Egarapithecus и Laccopithecus – более поздняя и продвинутая группа плиопитековых. Они известны почти исключительно из Европы (14,5–9 млн лет назад), только Laccopithecus robustus жил в Южном Китае (6–8 млн лет назад). Крузелия Crouzelia и лаккопитек Laccopithecus – очередные предполагавшиеся предки гиббонов.

Рис. 34. Череп Pliopithecus vindobonensis.
Больше останков сохранилось от анапитека Anapithecus hernyaki, особенно в венгерском местонахождении Рудабанья (9,5 млн лет назад). Это обезьяна весила 15 кг. Замечательно, что при малых различиях в размерах тела самцы и самки существенно отличались размерами клыков. Это говорит о своеобразной социальной структуре анапитеков. В черепе анапитеков вполне объемно повторяется план строения черепа более древнего плиопитека: крупные размеры, округлая мозговая коробка, сравнительно вертикальный лоб, чуть развернутые вбок глазницы с утолщенным краем, широкое межглазничное пространство, короткая морда с низкой скуловой областью. Судя по зубам, анапитеки, как и прочие плиопитековые, были фруктоядными (DeMiguel et al., 2013), хотя раньше предполагалась их листоядность. Есть и специфика: верхнечелюстные пазухи анапитеков уменьшены, хотя и не исчезли, как у мартышкообразных. Кости остального скелета тоже похожи на плиопитечий вариант, хотя фаланги изогнуты сильнее.
Кстати, о бедрах… Сложность изучения фрагментарных останков нагляднейше видна в истории с бедром из Эппельсгейма (Köhler et al., 2002). В Германии еще в 1820 г. была найдена бедренная кость довольно большого размера. Первоначально она была описана как принадлежащая дриопитеку, хотя получила сразу три названия – Paidopithex rhenanus, Pliohylobates eppelsheimensis и Pliosymphalangus. После было показано, что она заметно отличается от варианта, типичного для человекообразных обезьян, зато весьма напоминает бедренную кость Pliopithecus vindobonensis. Однако европейские плиопитеки весили около 10 кг, а эппельсгеймский примат – 22. По размерам к нему приближается Pliopithecus zhanxiangi, но он найден в Китае. В 1935 г. в том же местонахождении был найден клык самца примата, описанный как Semnopithecus eppelsheimensis, который впоследствии определялся как Pliopithecus, Rhenopithecus или Dryopithecus. В итоге плиопитековая его природа была признана наиболее вероятной, но размеры зуба говорят о том, что его обладатель был вдвое меньше, чем владелец бедра, так что отнесение их к одному виду опять же совершенно необязательно. Далее, в рядом расположенном местонахождении Сальмендинген нашлись зубы, определенные как Anapithecus hernyaki – то есть опять же, плиопитековый примат. А анапитек весил 15 кг – уже ближе к размерам эппельсгеймской обезьяны. Однако в 1990-х гг. в плиопитековой природе этих зубов появились основательные сомнения, и исследователи стали склоняться к дриопитековой версии. Наконец, очередное подробное морфологическое исследование показало, что бедро наверняка не принадлежало дриопитеку, им мог обладать либо неизвестный доселе очень крупный плиопитековый примат, либо вообще совсем своеобразная узконосая обезьяна из “третьей группы” (первые две – плиопитековые и человекообразные).Плиопитековые являют собой своеобразный аналог широконосых обезьян в Старом Свете, евразийский эксперимент: с наибольшей вероятностью они возникли в Азии, но дали всплеск разнообразия в Европе, где до этого крупных растительноядных приматов не было. Олигоценовые холода выкосили европейских жителей лесов, к середине этой эпохи тут исчезли и адаписовые, и омомисовые. Как и в случае с Южной Америкой, свободные экологические ниши просто-таки томились – когда же их займут новые жильцы, и те не заставили себя ждать. Как только в миоцене новые теплые леса заколосились от Испании до Таиланда, в рекордные сроки кустообразная эволюция заполнила европейские пущи крикливыми пожирателями плодов и листьев. Именно по этой причине быстрого видообразования из малого числа предков так трудно классифицировать плиопитековых – тут параллель с широконосыми тоже совершенно очевидна.
Правда, в это же время из Африки и с Ближнего Востока подтянулись человекообразные и мартышкообразные, составившие плиопитековым мощную конкуренцию. В конце же миоцена и вовсе стало грустно: леса сохли и заменялись саваннами. В Африке это привело к появлению австралопитеков, а в Европе – к глобальному вымиранию лесных приматов. Как-то не вставалось им на две ноги.
Последние крузелины – они же последние плиопитековые и самые специализированные среди прочих – исчезли 9 млн лет назад в Европе (Egarapithecus narcisoi) и 6–8 – в Китае (Laccopithecus robustus).
Минутка фантазии. Давным-давно никто не считает плиопитековых предками человека. Но это не отменяет того, что все задатки для появления разумности у этих обезьян были. Они обладали относительно большим мозгом и маленькими челюстями, не слишком сильным половым диморфизмом, не имели резких специализаций в строении конечностей. В каком-то смысле они находились даже в выигрышных условиях по сравнению с предками австралопитеков Африки, ведь условия Европы были более суровыми, а стало быть – располагающими к прогрессивной эволюции. В северных широтах раньше стали исчезать тропические леса, появляться саванны и степи. Тут бы плиопитекам и слезть с деревьев, заселить просторы и устроить марш на восток, юг и куда еще захочется… Что остановило их эволюцию – не вполне очевидно. С одной стороны, вымирание плиопитековых совпадает с концом миоцена и резким похолоданием, с другой – южнокитайские виды, жившие далеко на юге, потенциально могли развиваться дальше. Надо думать, основную роль сыграла конкуренция с мартышкообразными и человекообразными: “истинные узконосые” оказались быстрее, бодрее и нахальнее. Показательно, что у анапитеков постоянные зубы прорезывались заметно раньше, чем у мартышкообразных сопоставимого размера (Nargolwalla et al., 2005). Предполагалось, что раннее взросление было связано с усиленным прессом со стороны хищников или листоядностью, но новейшие исследования говорят скорее о фруктоядности анапитеков. Возможно, ускоренное развитие было способом конкуренции с “истинными узконосыми”. Как бы то ни было, укороченное детство означает меньшие возможности для обучения и в итоге интеллектуальное отставание от конкурентов.“Истинные узконосые”.
“Истинные узконосые” Eucatarrhini захватили Старый Свет. Они отличаются от прочих обезьян повышенной интеллектуальностью, исключительно дневным образом жизни (кроме сторожей и ночных диспетчеров), почти исключительной растительноядностью (хотя все не прочь при случае поесть мяса, но специализаций к этому никаких нет) и специфическими чертами типа закрытости задней стенки глазницы, отсутствия слуховых капсул и полного прирастания барабанной пластинки.
Среди узконосых выделяют две главные группы: мартышкообразных и человекообразных. Судя по всему, они разделились очень рано и достаточно быстро. Долгое время момент их расхождения был покрыт мраком неизвестности. Существование общего предка мартышкообразных и человекообразных давно предсказывалось палеоприматологами. По всем выкладкам он должен был жить в Африке или на Ближнем Востоке в олигоцене, между 30 и 25 млн лет назад: около древнейшей даты мы знаем проплиопитековых, а около молодой – уже дифференцированых мартышкообразных и человекообразных. Но предок оставался неуловим.

Рис. 35. Череп Saadanius hijazensis.
Наконец, в 2010 году и это звено стало достающим: на западе Саудовской Аравии был найден отличнейший череп (Zalmout et al., 2010). Обезьяна была названа сааданиусом Saadanius hijazensis. Его датировка – 28–29 млн лет назад, то есть идеально вписывается в требуемый интервал. Столь же красиво-промежуточна и его морфология – настолько предковая, что самого сааданиуса невозможно отнести ни к мартышкообразным, ни к человекообразным. Великому Предку – великие почести: специально для него было выделено особое надсемейство сааданиоид (Saadanioidea) с единственным семейством сааданиид (Saadaniidae). Правда, при жизни его величие не было должным образом оценено: на черепе есть следы клыков какого-то хищника. Зато теперь мы можем воздать ему должное. Сааданиус был довольно крупным зверем – 15–20 кг, хотя самки наверняка были меньше. Судя по зубам, он был фруктоядным. К сожалению, пока не найдены кости его рук и ног, так что мы можем лишь догадываться, как он передвигался, но, думается, в этом сааданиус вряд ли сильно отличался от проплиопитековых и макак.
Уголок занудства. Сааданиус обладал своеобразным набором признаков: у него была сильно вытянутая морда, большие клыки, височные линии, сходящиеся в сагиттальный гребень, не было лобных пазух (они отсутствуют у проплиопитековых, плиопитековых и мартышкообразных, зато типичны для большинства человекообразных), но имелись верхнечелюстные синусы (их также нет у мартышкообразных, но они есть у проплиопитековых, плиопитековых и человекообразных), зато барабанная пластинка полностью срасталась с другими частями височной кости и целиком окружала слуховой проход (в отличие от проплиопитековых и “ранних узконосых”, но как у “истинных узконосых”), моляры были большими и широкими. Это самая генерализованная узконосая обезьяна, какую только можно представить. Древнейшая мартышкообразная обезьяна и древнейшая человекообразная обезьяна, или Oldest monkey, oldest ape. В качестве древнейших мартышкообразных и человекообразных назывались разные животные. Лучшим кандидатом на роль древнейшей мартышки до недавнего времени считался викториапитек Victoriapithecus macinnesi, скакавший 15–20 млн лет назад по территории нынешних Кении и Уганды. Прохилобатес Prohylobates tandyi из Египта и норопитек Noropithecus bulukensis из Кении жили около 17 млн лет назад. Древнейшим же человекообразным признавался камойяпитек Kamoyapithecus hamiltoni, обитавший 23,9–27,8 млн лет назад в Кении, хотя он настолько схож с сааданиусом в своих примитивных чертах, что далеко не все исследователи были готовы признать его человекообразным приматом. Более надежные кандидаты – лимнопитек Limnopithecus legetet (17–22 млн лет назад, Кения и Уганда), угандапитек Ugandapithecus meswae (19–21,5 млн лет назад, Кения) и моротопитек Morotopithecus bishopi (20,6 млн лет назад или древнее, Уганда), хотя и их положение на древе приматов неоднозначно. Рангвапитек Rangwapithecus gordoni (19 млн лет назад, Кения) еще надежнее, но моложе. Имеющийся временной разрыв между сааданиусом и его потомками по эволюционным меркам не столь уж большой, но досадный. Естественно, дотошные палеоприматологи не могли смириться с таким положением дел. Благо недра Африки еще далеко не иссякли на свидетельства прошлого. В 2013 году американо-австралийско-танзанийская группа исследователей опубликовала описание двух древнейших обезьян (Stevens et al., 2013). Их останки, как водится, не слишком эффектны внешне (от одной сохранился обломок челюсти с одним моляром, от другой – половина нижней челюсти с четырьмя зубами), зато для специалистов несут ценнейшую информацию. Останки были найдены в Юго-Западной Танзании, около города Мбейя, в долине Руква, в местонахождении Нсунгве. Геологический слой, содержавший челюсти, образовался 25,2 млн лет назад. Левый нижний моляр был описан как нсунгвепитек Nsungwepithecus gunnelli. Его особенности больше всего напоминают характерные для мартышкообразных. Но он древнее самых древних мартышек на 5 млн лет! Четыре зуба из нижней челюсти были названы руквапитеком Rukwapithecus fleaglei. Детали строения выдают принадлежность их обладателя к примитивнейшим представителям человекообразных обезьян. Похожие существа иногда объединяются в подсемейство ньянзапитецин (Nyanzapithecinae) семейства проконсулид (Proconsulidae). Проконсулиды настолько примитивны, что не все ученые считают их настоящими человекообразными, хотя ясно, что они в любом случае предки “настоящих” человекообразных. И вот теперь мы имеем первейшего из первых или даже “нулевых”. Что значат 3 млн лет, отделяющие сааданиуса от нсунгвепитека и руквапитека? Много это или мало? Для сравнения – 3 млн лет назад наши предки были австралопитеками и еще не научились делать каменные орудия. Ясно, что за 3 млн лет могли смениться несколько видов, появиться даже несколько линий. Как часто бывает, в этих неведомых пока трех миллионах таятся очередные “недостающие звенья” между достающими “еще не вполне” и “древнейшими уже”. Великая заслуга и удача палеоприматологов – найти и описать истоки основных групп современных обезьян. Конечно, всегда хочется большего. Когда-то величайшим достижением считалось обнаружение любого древнего примата, теперь же того и гляди раздадутся недовольные голоса: “А почему вам нечего сказать об этих трех миллионах лет? Что это вообще за жалкие зубы?” Не будем слушать критиканов! Порадуемся лучше открытию очередных достающих звеньев. Работы в Африке продолжаются, хочется верить, что скоро мы увидим останки такого существа, про которое трудно будет сказать – ближе он к общему предку сааданиусу, мартышкообразному нсунгвепитеку или человекообразному руквапитеку. Благодаря работе палеоприматологов теперь мы знаем, когда и где разошлись пути мартышек и наш, когда и где были заложены очередные человеческие черты, когда и где был сделан еще один шаг к разуму.Идеальные обезьяны: мартышкообразные.
Итак, линии мартышкообразных и человекообразных разошлись. Их можно отличать по целому ряду признаков. Например, у мартышкообразных есть защечные мешки, седалищные мозоли и хвост, но нет гайморовых пазух в верхней челюсти, у человекообразных гораздо крупнее головной мозг и специализированнее конечности, отличия имеются и в строении зубов. Мартышкообразные в среднем меньше по размеру. Все эти и другие особенности позволяют распознавать ископаемых представителей даже по весьма фрагментарным останкам. К сожалению, они обычно и бывают фрагментарными.
Мартышкообразные (Cercopithecoidea), с одной стороны, многочисленны и внешне очень разнообразны, но с другой – удивительно монолитны филогенетически. Между крайними формами есть почти непрерывные морфологические переходы.
Древнейшие мартышковые появились не менее 25 млн лет назад. Они выделяются в особое семейство викториапитецид Victoriapithecidae: Nsungwepithecus, Victoriapithecus, Noropithecus, Prohylobates, Zaltanpithecus и, возможно, еще парочка родов. Только древнейший Nsungwepithecus жил в олигоцене, остальные – нижне– и среднемиоценовые, дожившие до 12 млн лет назад. Это исключительно африканские животные, их останки найдены в Танзании, Кении, Уганде, Египте и Ливии, так что возникновение мартышкообразных на Черном континенте практически неоспоримо.
Уголок занудства. От викториапитеков Victoriapithecus macinnesi сохранились целый череп, многие сотни зубов и остатки скелетов, так что их строение прекрасно изучено. Очевидно, эта обезьяна была обычнейшим видом. План строения черепа викториапитека откровенно мартышковый: выступающая морда, развернутые вперед глазницы, довольно сильное надбровье, узкое межглазничное пространство, длинные и узкие носовые кости, отсутствие лобных и верхнечелюстных синусов. Викториапитеки весили 3–4 кг, крупные самцы могли достигать аж 7–10,5 кг. Конечности были приспособлены к быстрому четвероногому бегу как по ветвям, так и по земле. Показательно, что фаланги викториапитека были короче, чем у мелких древесных мартышек, и даже короче, чем у полуназемных мандрилов, но такие же, как у наземных павианов и мартышек-гусаров. Викториапитек, судя по строению седалищной кости, имел седалищные мозоли и подвижный хвост (McCrossin et Benefit, 1992). Иначе говоря, седалищные мозоли были уже у первых мартышкообразных, еще до их разделения на современные группы.В целом викториапитек удивительно похож на самых обычных современных мартышкообразных типа мартышек или макак. Получается, этот план строения тела оказался настолько удачным, что не возникало никакой нужды его менять больше десяти следующих миллионов лет. Это универсальное строение, идеально приспособленное сразу к разным типам местообитаний. Небольшими модификациями из него можно получить массу других вариантов – приспособлений к каким-то конкретным условиям.
Изобилие молочных зубов викториапитеков на острове Мабоко в Кении позволяет изучить не только особенности взросления этих обезьян, но и социальную структуру (Benefit, 1994). Клыки самцов встречаются намного чаще, чем клыки самок. Такое распределение говорит об организации общества наподобие макак: молодые самцы покидают группу, в которой родились, по полной программе испытывают невзгоды и опасности одинокой жизни и гораздо чаще гибнут. В группах же оказывается много взрослых самок и совсем мало самцов. Опять же это – удивительно стабильный в течение миллионов лет вариант.

Рис. 36. Череп Victoriapithecus.
Показательно, что едва ли не самая примитивная часть викториапитека – мозги (Gonzales et al., 2015). Особенно впечатляют размеры его обонятельных луковиц, контрастирующие с маленьким общим объемом: по этим показателям викториапитек больше похож на лемуров, египтопитеков и парапитеков. Объем мозга был 35,6 см³ – вдвое больше, чем у самок, и чуть больше, нежели у самых крупных самцов египтопитеков (по старым оценкам – 54 см³ – выходило, что викториапитек почти догонял мартышек среднего размера). На примере викториапитека можно воочию убедиться, что, при всей важности мозга для приматов, он на самом деле зачастую эволюционировал по остаточному принципу – после конечностей и зубов. Сколь часто звучит, что повышенный интеллект для приматов – самое святое! Сколь часто палеонтологическая реальность опровергает пафосную теорию…
Мартышковые (Cercopithecidae) подразделяются на собственно мартышковых Cercopithecinae (мартышки, макаки, мангабеи, мандрилы, павианы и гелады) и тонкотелых обезьян Colobinae (как это ни странно, их синоним – толстотелые; колобусы, носачи и лангуры). Они известны как минимум с позднего миоцена, примерно с 10 млн лет назад, причем уже во множестве видов; менее достоверные останки известны и из среднемиоценовых отложений, когда мартышковые, видимо, и появились. Все древнейшие находки: Colobus, Libypithecus, Microcolobus – сделаны в Африке.
Тонкотелые начали захватывать мир раньше: в верхнем миоцене представители рода мезопитеков Mesopithecus заселили Южную Европу, дошли до Ирана, Афганистана и Индии, мьянмарколобусы Myanmarcolobus yawensis уже жили в Бирме, а лангуры Presbytis – в Индии. В начале плиоцена в европейских лесах – от Франции до Болгарии, Молдавии и Украины – жевали листья родственные долихопитеки Dolichopithecus. В середине плиоцена тонкотелые освоили Азию, причем к этому моменту они оккупировали не только весь нынешний ареал, но распространились и гораздо севернее – мезопитеки до Германии, а парапресбитисы Parapresbytis eohanuman аж до Северной Монголии и Забайкалья. В конце плиоцена долихопитеки Dolichopithecus (Kanagawapithecus) leptopostorbitalis добрались до Японии, в Бирме и Индии появляется современный род хануманов Semnopithecus, а в Китае – носатые обезьяны Rhinopithecus. Своя эволюция продолжалась и в Африке: на протяжении плиоцена и плейстоцена тут обитали Cercopithecoides, Kuseracolobus, Rhinocolobus, Paracolobus и Colobus.
Собственно мартышковые вышли из Африки позднее тонкотелых: в начале плиоцена они прибыли в Европу, а в конце плиоцена жили уже по всей Европе и Азии. Без сомнения, всех превзошли макаки Macaca, которые появились еще в верхнем миоцене Северной Африки и огромное количество видов коих с начала плиоцена разбрелось от Испании, Франции и Германии до Китая, Японии и Индонезии. В их числе по всему югу Европы – в Италии, Испании, Германии, Франции, Венгрии – был распространен бесхвостый макак Macaca sylvanus, ныне обитающий на севере Африки и на Гибралтарской скале. В Европе жили и другие, ныне вымершие виды макак. В прошлом они населяли также Кавказ и даже Монголию (Macaca anderssoni). В нижнем плейстоцене в Китае некоторые виды достигли приличных размеров, неспроста один из них назван мегамакакой Megamacaca lantianensis. В конце плиоцена особенно удачным оказался близкий к макакам род парадолихопитеков Paradolichopithecus: его представители известны от Франции, Румынии и Греции (P. arvernensis) до Таджикистана (P. suschkini) и Китая (P. gansuensis). Тогда же по Индии и Китаю бегали проциноцефалы Procynocephalus. Удивительным образом, ни макаки, ни парадолихопитеки не проникли в тропические части Африки. Судя по всему, Сахара была лучшим барьером, чем даже морские проливы.
В Африке жизнь кипела своим чередом, плиоценовые саванны просто кишели павианами Parapapio, Pliopapio, Gorgopithecus, Dinopithecus, Procercocebus и первыми представителями уже современных родов павианов Papio и мангабеев Cercocebus. Целый ряд видов ископаемых гелад теропитеков Theropithecus на протяжении плиоцена и плейстоцена заселял всю Африку, в конце плиоцена попал в Индию, а в плейстоцене каким-то образом просочился в Испанию (что имеет прямое отношение к появлению тут человека – ведь в теории сюда можно попасть через Гибралтар или же добраться вдоль бережка в обход Средиземного моря). Многие древние павианы были гораздо крупнее современных. Так, гелада Theropithecus oswaldi могла достигать веса в 100 кг, тогда как даже большой самец крупного мандрила весит всего 35 кг. Такие павианы, как Dinopithecus и Gorgopithecus, вполне достойны названия саблезубых обезьян, ибо размеры их клыков были не меньше, чем у пресловутых саблезубых тигров.
Минутка фантазии. Интересно, что в эволюции павианов прослеживается универсальная тенденция к увеличению головного мозга. Хотя темпы такого роста не слишком высоки, он вполне достоверен и происходил тогда же, когда в Африке жили австралопитеки, причем у последних мозг увеличивался едва ли не меньшими темпами. Таким образом, павианы вполне могли бы обогнать двуногих конкурентов и развиться в собственное парачеловечество, если бы… Вероятно, причиной остановки прогресса послужила чрезмерная “бюрократизация” в обществе павианов, их повышенная агрессивность, жесткая иерархичность и приверженность строгому распорядку и субординации.В конце плиоцена в Африке появляются современные мартышки Cercopithecus, а в середине плейстоцена современные виды зеленых мартышек Chlorocebus aethiops и мартышек-гусаров Erythrocebus patas.
Плейстоценовые оледенения выморозили обезьян в Европе и значительной части Азии, а опустынивание Средней Азии и Ирана истребило местных приматов; африканская и азиатская части ранее единого ареала оказались разделены. В итоге сейчас мартышковые обитают только в Африке, Южной, Восточной и Юго-Восточной Азии. От европейских обезьян ничего не осталось, популяция макак на Гибралтарской скале на самом юге Пиренейского полуострова, скорее всего, не реликтовая, а заселена сюда в исторические времена людьми. В Западной Азии чудом сохранились лишь павианы-гамадрилы на юго-западе Аравийского полуострова; предполагалось, что они могли быть завезены человеком сравнительно недавно, но анализ мтДНК показал, что заселение свершилось более 12 тыс. лет назад, а стало быть, скорее всего, без помощи людей (Kopp et al., 2014).
Несмотря на плейстоценовые потери, мартышковые являются одной из самых экологически пластичных и эволюционно преуспевающих групп приматов.
Мелкие виды мартышковых – мартышки и мангабеи – обычно сугубо древесные формы, средние – макаки – одинаково ловко бегают и по земле, и по ветвям, а крупные – мандрилы, павианы и гелады – наземные. Мартышковые заняли весьма широкий спектр экологических ниш, но все являются дневными, стадными и растительноядными.
Африканские мартышки: обыкновенные Cercopithecus, черно-зеленые Allenopithecus, зеленые Chlorocebus, гусары Erythrocebus и карликовые Miopithecus – возникли совсем недавно – около 2,5 млн лет назад и позже, фактически они современники нашего рода Homo. Однако, в отличие от гоминид, число видов которых скорее уменьшалось со временем, пока не свелось к одному, мартышки бурно наращивали свое разнообразие. Конкретные виды отличаются зачастую экологическими тонкостями: например, мартышка диана Cercopithecus diana держится только в первичном лесу и очень не любит заходить во вторичный, похожая мартышка салонго Cercopithecus dryas процветает во вторичном и даже предпочитает его первичному, тогда как большая белоносая мартышка Cercopithecus nictitans любит держаться в переходной зоне от дождевого леса к саванне. Зеленые мартышки, или верветки, Chlorocebus ведут уже полудревесный-полуназемный образ жизни в довольно засушливых районах Африки. Мартышки гусары Erythrocebus patas приспособились к жизни в открытой саванне, где они бегают подобно мелким антилопам. Большинство мартышек питаются фруктами и в меньшей степени листьями, но голубая мартышка Cercopithecus mitis в большом количестве ест также медленных беспозвоночных.
Ареалы многих видов совпадают почти полностью, ведь зона лесов в Африке ограничена, так что среди мартышек хорошо поработал половой отбор. Большинство видов отличаются почти исключительно формой и цветом пятен и пучков волос на лице, это ясно даже по названиям: желтоносая, совинолицая, голуболицая, белощекая, чернощекая белоносая, коронованная, чубатая, усатая, бородатая, белогубая, красноухая мартышка с пятном на носу, большая белоносая мартышка, малая мартышка с белым пятном на носу. Те же и другие соревнуются в окраске живота или хвоста: белогорлая, краснобрюхая, золотобрюхая, золотая, краснохвостая, рыжехвостая. Калейдоскоп настолько пестр, популяционная и индивидуальная изменчивость столь велики, а переходы такие постепенные, что среди систематиков никогда не утихнут споры даже о числе родов и видов, не говоря уж о подвидах.
Макаки Macaca – самые холодоустойчивые обезьяны (кроме человека); особенно выделяются в этом отношении тибетские M. thibetana и японскиея макаки M. fuscata, каждую зиму сталкивающиеся с морозом и снегом. Эксперименты показывают, что макаки вполне могут жить на круглогодичном вольном выпасе в климате современной Германии. В военном Харькове три сбежавших из разбомбленного зоопарка макаки прожили без малого два года – перезимовали две зимы, – партизаня в здании Госпрома в самом центре города.
Достаточно крупные размеры и всеядность делают макак универсальными обезьянами и позволяют им выживать в самых разных местах – от скалистых утесов до густых лесов, от морских побережий до поселений людей в качестве воришек-нахлебников-мусорщиков. Жизнь шумными компаниями, подвижность и сообразительность – отличная защита от большинства хищников.
Самые банальные макаки – азиатские резусы M. mulatta и крабоеды M. fascicularis, а также североафриканские маготы M. sylvanus.
Резко выделяются устрашающей внешностью некоторые представители группы целебесских макак, или черные павианы, – M. hecki, M. maura, M. nigra, M. nigrescens. У этих угольно-черных обезьян поистине демонический облик: странная вытянутая морда, хохол на макушке и огромные зубы.
Другие виды имеют свой неповторимый облик: индийский львинохвостый макак M. silenus обладает шикарной белой гривой и пушистой кисточкой на длинном хвосте, тогда как у близкородственного свинохвостого M. nemestrina и грива гораздо скромнее, и хвостик крючком.
Африканские мангабеи: обыкновенные Cercocebus, бородатые Lophocebus и горные Rungwecebus – филогенетически наиболее близки павианам, но ведут древесный образ жизни; фактически они занимают ту же экологическую нишу, что макаки в Азии, тут мы видим пример своего рода микроконвергенции на уровне подтриб в пределах близкородственной в целом группы. У мангабеев хвост очень длинный и имеет очень слабую хватательную способность – уникальный случай среди узконосых приматов, хотя, конечно, они бесконечно далеки от возможностей цепкохвостых широконосых. Внешность некоторых видов примечательна панковскими хохлами-ирокезами и залихватскими гусарскими усами или бакенбардами, а то и бровями а-ля Мефистофель. Танзанийский Rungwecebus kipunji уникален тем, что умудрился быть неописанным до 2005 года, проживая в более-менее исследованной зоологами местности.
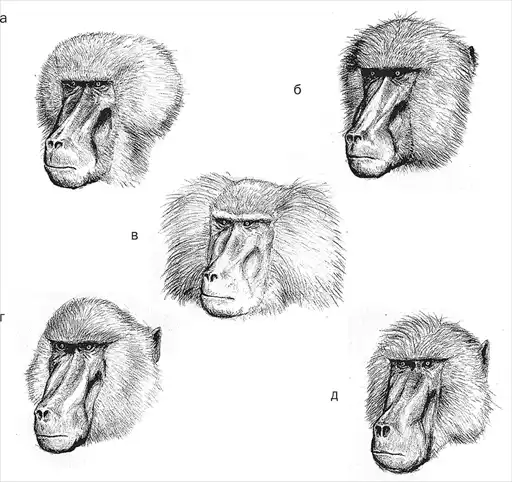
Рис. 37. Павианы: гвинейский P. papio (а), анубис P. anubis (б), гамадрил P. hamadryas (в), бабуин P. cynocephalus (г), чакма P. ursinus (д).
Мандрилы – Mandrillus и павианы Papio – крупные животные с клыками как у леопарда, очень сильные и агрессивные. Среди них особенно цветасты западноафриканские мандрилы с их ярко раскрашенной мордой и задом. Рекордные самцы мандрила Mandrillus sphinx могут достигать метра в длину и 50 кг веса! Это предел для современных мартышковых обезьян. Впрочем, обычно они в полтора раза меньше, а самки и вовсе весят в среднем 15 кг. Другой рекорд мандрилов – способность собираться в огромные стада, самое внушительное из которых состояло из примерно 1300 особей! Очевидно, что набеги таких орд на плантации местных жителей заканчиваются праздником для мандрилов и катастрофой для поселян.
Кстати, о леопардах и уроках… В некоторых африканских странах возникает хитрая связь между браконьерством и успеваемостью школьников: когда охотники истребляют хищников, прежде всего леопардов, то плодятся мандрилы и павианы, они разоряют поля, на охрану и защиту коих посылаются дети, которые прогуливают уроки и в итоге плохо учатся. Мораль – берегите природу!И мандрилы, и павианы питаются большей частью растительной пищей, но регулярно ловят мелких животных типа дукеров или детенышей антилоп. Показательно, что это никоим очевидным образом не отражается на их зубочелюстном аппарате; разрывают же они добычу руками, хотя бы и не голыми, а мохнатыми.
Мандрилы ведут более-менее древесный образ жизни, тогда как павианы уже почти полностью наземны и забираются на деревья только на ночевку или спасаясь от хищников.
Наземные павианы представляют вариант жестко построенного иерархического общества, где каждая особь кому-либо подчинена и кого-либо подчиняет. Иерархия основана на физической силе и жизненном опыте. Все дозволено лишь самым маленьким детенышам и вожакам стада. При переселениях стадо павианов представляет собой образец построения группы на марше. В центре стада движутся самки с детенышами, возглавляет шествие вожак, а по сторонам охраняют самцы. Жесткая иерархическая система держится на альфа-самцах. Интересно, что почти все нововведения и инициативы рождаются в “низах общества” – среди павианов самого низшего ранга, чаще среди самок, которые не так заняты поддержанием своего социального статуса, но которым достаточно плохо живется, чтобы хотелось стремиться к лучшему. Тот же эффект ярко был продемонстрирован в наблюдениях над группой японских макак, которых исследователи подкармливали бататами. Когда одна самка низшего ранга случайно уронила батат в воду, она обнаружила, что чистым его гораздо приятнее есть – песок на зубах не скрипит. Она стала регулярно мыть клубни, от нее научился ее детеныш, а после нововведение распространилось “от низов к верхам”. Последними научились мыть клубни альфа-особи; им и так хорошо, их позиция – лучше, когда ничего не меняется, пусть все навеки застынет в стабильности.
Раньше павианов часто предлагали в качестве модели первобытного человеческого стада. Однако закрепленность и регламентированность взаимоотношений среди членов такого общества не дает возможности развития, закрепления новаций и распространения их по всем социальным слоям. Поэтому маловероятно, что отношения среди древнейших людей были похожи на отношения среди павианов.
Кстати, о светофорах и доброте… Иерархия бывает разной – совсем жесткой или же с умом, зависимой от ситуации. Бродячие собаки имеют вожака, но замечено, что при переходе через улицу руководство переходит к другой псине – особо интеллектуальной, умеющей наиболее адекватно отслеживать светофоры и поведение людей. У людей эта способность переключать доминирование в определенных ситуациях развита еще лучше. Классическая иллюстрация – фраза водителя Копытина в сцене погони в фильме “Место встречи изменить нельзя”: “В кабинете у себя командуй, Глеб Егорыч. А тут я…” Люди делают это легко и непринужденно и обычно даже не замечают этого. Например, во время лекции доминант – лектор, в его аудитории могут сидеть самые разные люди – врачи, милиционеры, слесари или чиновники, но все они молча слушают и послушно записывают сказанное. На дороге доминант – инспектор ГАИ, тут он получает власть над врачами, лекторами и слесарями, иногда (а по-хорошему всегда) даже над чиновниками. В школе доминант – учитель, в больнице – врач. Когда там протекает труба, безоговорочным доминантом становится сантехник, временно он получает власть отменить урок или перенести операцию. Более того, когда такое переключение нарушается, общество перестает нормально функционировать. Если в больнице или школе доминантом становится чиновник, охранник или уборщица, то начинается бардак. Сосредоточение власти в одних руках позволяет решать определенные задачи в некоторых ситуациях, но не должно быть излишним. Благодаря разделению ролей и смене доминирования человечество совершило все свои великие достижения. Удивительные изменения социальной структуры произошли в одной из групп павианов, живущей в густо населенной людьми местности. Обезьяны не могут удержаться и грабят плантации; владельцам полей это не нравится, и они берутся за оружие. Конечно, первыми под раздачу попадают самые агрессивные и самые наглые самцы павианов. И вот в результате систематического уничтожения наиболее злобных доминантов резко изменилось соотношение полов – самок оказалось намного больше, чем самцов, обезьяны стали несравненно добрее, уровень агрессии заметно снизился. В этой группе появилось даже такое невиданное среди павианов явление, как груминг – чистка шерсти – самцов самцами. Так вот он – путь к всеобщему счастью, доброте и взаимопониманию!Особый интерес представляет систематика павианов – проклятье любителей однозначных схем. В зависимости от подхода можно выделить от одного до пяти или даже семи современных видов. Дело в том, что крайние географически разнесенные друг от друга варианты достаточно отчетливо отличаются на глаз. Но в промежутках есть смешанные популяции, в которых идет гибридизация, так что границы между видами оказываются весьма туманными. Получаются цепочки не то видов, не то подвидов, ломающие школьные представления о систематике.
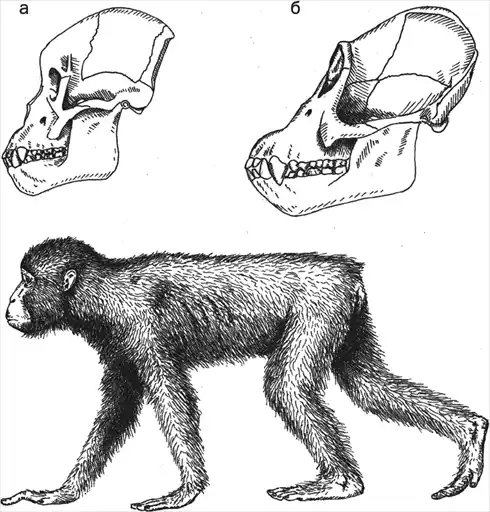
Рис. 38. Черепа проконсула (а) и афропитека (б); реконструкция проконсула.
Уголок занудства. Картина расселения и гибридизации павианов всегда привлекала исследователей (например: Newman et al., 2004). Гвинейские павианы P. papio живут на крайнем западе Западной Африки. Их ареал без малейшего перерыва продолжается в ареал анубиса. Они самые мелкие – вдвое меньше южноафриканских чакм. Гвинейские павианы имеют красновато-бурый цвет и маленькую гриву. Павиан анубис, или оливковый, P. anubis расселен широкой полосой по Сахелю от южных рубежей Сахары до тропических лесов Центральной Африки и от Западной Африки до Восточной, где его ареал соприкасается с ареалами гамадрила (с которым анубис гибридизуется в Эфиопии) и желтым павианом. Анубис имеет массивное сложение, серовато-буровато-зеленоватый цвет и густую, но короткую гриву. Гамадрил, плащеносный или священный павиан, P. hamadryas населяет Аравию и Африканский Рог, похож на P. anubis, с коим регулярно скрещивается, и P. papio. Этот вид отличается также мощной конституцией, серым цветом и богатой гривой. Желтый павиан, или бабуин, P. cynocephalus освоил Африку южнее и восточнее от зоны лесов, на севере соприкасаясь с ареалом анубиса, а на юге – чакмы. Хотя его зона распространения не пересекается с ареалом гвинейского павиана, они прекрасно скрещиваются между собой в зоопарке. Бабуины желтовато-бурые, с вытянутым телом, длинными ногами и хвостом, хотя не столь удлинены и крупны, как чакмы; у бабуинов есть бакенбарды, но нет гривы. Из желтых павианов предлагается выделить в качестве самостоятельного вида бабуина Кинда P. kindae, отличающегося вдвое меньшими размерами и укороченной мордой. Медвежий павиан, или чакма, P. ursinus занял Южную Африку. Северные группы, пограничные с бабуинами, предлагается выделить в отдельный вид сероногого павиана P. griseipes. Чакма – самый крупный вид, с очень вытянутыми пропорциями, серого или темно-бурого окраса, совсем без бакенбард и гривы.Гелады Theropithecus gelada – эфиопские павианы – внешне очень похожи на обыкновенных павианов, но в реальности отстоят от них больше, чем мангабеи, и выделяются в отдельную подтрибу. Современные гелады населяют исключительно горы Эфиопии, где бывает довольно холодно, почему имеют густую шерсть в виде огромной гривы, переходящей в богатую мантию на плечах и спине. Постоянное карабканье по крутым скалистым горам развило в геладах невероятную цепкость, а по деревьям они никогда не лазают за неимением деревьев. Кстати, образ их жизни навел некоторых исследователей первой половины XX века – например, А. П. Быстрова – на мысль о происхождении прямохождения в горной местности.
Очень много времени гелады проводят сидя на заду, подняв тело вертикально. Это приводит к неожиданной проблеме: ведь у павианов самки демонстрируют готовность к размножению набухающей половой кожей, расположенной вокруг половых органов. А у сидящих самок гелад ее просто не видно. Задача решилась развитием голого участка ярко-красной кожи в виде ошейника, переходящего в треугольник на груди. У самок она набухает кровью и сильно увеличивается во время готовности к размножению, так что у сидящей обезьяны ее видно издалека. У самцов такое же красное пятно имеет также сигнальную функцию, но подтекст меняется – им они сигнализируют о своей доминантности, ведь группы гелад представляют собой гаремы. Впрочем, отдельные гаремы могут собираться в стада вплоть до 670 особей.
По экологической необходимости гелады – почти исключительно травоядные существа, в зависимости от сезона собирающие вершки или корешки, но предпочитающие семена. По этой причине у них отлично развиты противопоставление большого пальца кисти и точечный захват; только человек превосходит их в этом искусстве.
Нельзя не заметить, что в плиоцене и плейстоцене гораздо более многочисленные и широко распространенные гелады были основными конкурентами австралопитеков и первых людей, причем обезьяны имели, казалось бы, очевидное преимущество в размерах и силе. Однако на большей части Африки гелады в итоге вымерли, сохранившись лишь в самых труднодоступных и малонаселенных районах. Очевидно, гоминиды одержали сокрушительную победу в напряженной войне, длившейся пару миллионов лет. Что стало залогом успеха наших предков? Хотелось бы верить, что способность быстро соображать и приспосабливаться к новым условиям, использовать больший спектр ресурсов и воспитывать детей. Но не исключено, победила слабость австралопитеков, тогда как мощь гелад сработала против них, но на наших предков: от 3,3 до 2 млн лет разнообразие и размеры гелад росли, они успешно вытесняли австралопитеков из экологической ниши бродячих собирателей семян, двуногим бедолагам было некуда податься от клыкастых и гривастых супротивников. С горя и безысходности они подались в падальщики и мелкие хищники – уж лучше соревноваться с десятикилограммовым шакалом, чем со стокилограммовой обезьяной. Но поев мяса и закалившись в боях с гиенами и львами, гоминиды набрались ума-разума, взяли в руки копья и вернулись к былым обидчикам уже не как бедные родственники, а с гастрономическим интересом. Тут-то и кончились светлые деньки гелад, да и сами гелады…
Тонкотелые отличаются от мартышковых в узком смысле исключительной древесностью, что привело к грацилизации тела и изменению формы кисти и стопы, а также узкой специализацией к питанию только листьями, что отразилось как на строении зубов (моляры с очень высокими бугорками), ротовой полости (защечные мешки развиты слабо или даже отсутствуют), так и пищеварительного тракта (желудок состоит из трех или даже четырех отделов, в одном из коих живут симбиотические бактерии, а в нижнем выделяется соляная кислота; кроме того, бактерии сидят в увеличенной слепой кишке и специальном отрезке толстой кишки – проксимальной ободочной). Малопитательность листьев и трудности их усвоения приводят к тому, что до трети веса обезьяны может приходиться на недопереваренные листья в ее желудке. Впрочем, как любые приматы, при случае большинство тонкотелых едят и фрукты, и насекомых, и других мелких животных.
Тонкотелые делятся на африканских колобусов и азиатских лангуров. Приятно, что морфологическая логика идеально совпадает с географической.
Африканские колобусы (они же гверецы или толстотелы) менее разнообразны, чем мартышки или азиатские тонкотелые, но не менее красивы. Они делятся на черно-белых Colobus (Colobus), черно-красных C. (Piliocolobus) и зеленых, или оливковых, C. (Procolobus); иногда всем им придается ранг самостоятельных родов. Особенно эффектны черно-белые гверецы, имеющие при общем черном фоне длинную белую шерсть в виде мантии на плечах и огромной кисти на хвосте; виды отличаются пропорциями черного и белого; впрочем, черная гвереца сатана C. satanas абсолютно угольная. Детеныши чисто белые. К сожалению, красота требует жертв: на гверец усиленно охотятся из-за шкур, идущих на статусные наряды и украшения. Древесность гверец почти абсолютная, поэтому их пальцы руки работают как единый крючок, а большой палец редуцируется до маленького бугорка.
Некоторые колобусы чрезвычайно специализированы к питанию листьями даже на фоне других тонкотелых; например, занзибарские красные колобусы Кирка Colobus (Piliocolobus) pennantii kirkii (или Piliocolobus kirkii) вообще неспособны усваивать сахар из спелых фруктов, зато имеют четырехкамерный желудок. Они любят есть уголь, видимо для нейтрализации токсинов, содержащихся в листьях.
Уголок занудства. Многокамерный желудок тонкотелых имеет в предельном варианте четыре камеры (Chivers, 1994; Kay et Davies, 1994). Первая – saccus gastricus – главная часть желудка, в которую впадает пищевод. Ее слизистая содержит желудочные железы, выделяющие слизь с ферментами, и лимфатические узлы. Вторая – pre-saccus gastricus – преджелудок, расположен сбоку параллельно главной части и частично сегментирован. Это дополнительный ферментативный отдел с различными типами слизистой. Он имеется у представителей Procolobus, Piliocolobus, Rhinopithecus, Pygathrix и Nasalis, но отсутствует у Colobus, Semnopithecus, Trachypithecus и Presbytis. Третья – tubus gastricus – трубка наподобие толстой кишки, подразделенная на вздутые сегменты-гаустры, содержащие симбиотических бактерий. В ее нижней части железы продуцируют соляную кислоту и разные ферменты. Четвертая – pars pylorica – пилорическая или привратниковая часть; ее железы выделяют только слизь.Азиатские тонкотелые невероятно разнообразны. Юго-Восточная Азия и Индонезия – чрезвычайно географически расчлененная территория, на материке много гор с долинами, а острова – вообще лучшая эволюционная лаборатория. Варианты тонкотелых возникали, судя по всему, очень быстро, в течение последних нескольких миллионов лет, а на островах наверняка – последних тысячелетий. Далеко не все формы четко отличимы друг от друга. Поэтому до сих пор среди приматологов нет согласия относительно числа не только видов, но и родов тонкотелых.
Самые “усредненные” азиатские тонкотелые – лангуры хануман Semnopithecus, живущие на Индостане и Шри-Ланке. Лангуры удивительно экологически пластичны: они способны жить в засушливых открытых пространствах и тропических лесах, на побережье и в Гималаях на высоте в 4000 метров над уровнем моря. Это самые обычные животные в Индии, благо лангуры священны и их никто не трогает. Зная свою безнаказанность, эти стройные серые обезьяны наглеют до крайности – не один турист пострадал от их бесцеремонности. Именно лангуры, скорее всего самый обычный их вид S. entellus, послужили прототипом бандерлогов Р. Киплинга.
Намного более красочны зондские лангуры Presbytis: разных цветов, с ирокезами и бакенбардами, эти бойкие обезьяны очень оживляют тропические леса островов Индонезии. Каштановый лангур Presbytis rubicunda с Калимантана имеет приятный красноватый цвет, тогда как лангуры Хосе P. hosei и Томаса P. thomasi – серые, со стоячей на макушке шерстью, точно как у чертей с шишом на средневековых русских иконах (какое раздолье тут открывается для графоманских измышлений на тему индийско-русских связей в незапамятные времена!). Родственные хохлатые лангуры Trachypithecus тоже имеют высокий острый хохол на голове, отчего несколько напоминают хохлатых мангабеев, тем более что и телосложение у них в целом схоже. Видов и подвидов этих обезьян величайшее множество, их систематику впору выделять в особый олимпийский вид спорта. Особенно красив золотоголовый лангур T. poliocephalus. Очковые T. obscurus и серебристые лангуры T. cristatus сами серенькие, зато детеныши у них ярко-желтые.
Особняком стоит немейский тонкотел Pygathrix nemaeus из Индокитая. Это едва ли не самая разноцветная обезьяна из всех: белый, оранжевый, желтый, черный с бурыми подпалинами, серый цвета составляют неповторимый наряд этого примата, причем три подвида еще отличаются друг от друга.
Ринопитеки Rhinopithecus в отечественной литературе часто называются “носатыми обезьянами”, но это неверный – ошибочно укороченный – перевод с английского. В действительности они snub-nosed – коротконосые, так как у них действительно нос укорочен до полного отсутствия, снаружи видны только ноздри. Рокселланов золотой ринопитек Rh. roxellana из Тибета имеет незабываемый золотой цвет густой шерсти и голубую мордочку.
Прямая противоположность ринопитекам – калимантанские обезьяны носачи Nasalis larvatus. Они запоминаются с первого взгляда: у самцов огромный, свисающий вниз нос, придающий им вид пожилого серьезного клоуна на пенсии; у самок он остренький и курносый, делающий их легкомысленными кикиморками. Любопытно, что близкородственный одноцветный носач N. concolor с Ментавайских островов имеет вполне стандартный нос (зато он уникален среди тонкотелых очень коротким хвостом – всего около 15 см). Носачи, кроме своего носа, замечательны размерами: при среднем весе самцов 20,4 кг они являются самыми тяжелыми сугубо древесными приматами, кроме орангутанов.
Заря в преддверии заката: первые человекообразные.
Наш путь через дебри эволюции приматов подошел к последнему кустистому ответвлению, от коего доныне сохранилась лишь одна зеленеющая ветка и две откровенно засыхающие. Прочитав про зелень, кое-кто наверняка подумал о себе любимом, но увы – вряд ли среди читателей сей книги есть гиббоны, а в виду имелись именно они. Засыхающие же сучья – это орангутаны и африканские гоминоиды: гориллы, шимпанзе и люди. В прошлом гоминоиды цвели куда как пышнее.
Человекообразные Hominoidea (они же Anthropoidea или Anthropomorpha) отличаются от мартышкообразных в среднем более крупными размерами, большим мозгом, отсутствием защечных мешков и наружного хвоста, а также деталями строения зубов.
Гоминоиды появились в позднем олигоцене и пережили свой расцвет в миоцене. Известно огромное множество ископаемых видов, из которых подавляющее большинство являются тупиковыми формами. Разобраться в них не так-то легко, ведь самый ходовой элемент тут – отдельные зубы или даже их обломки, а у родственных видов они могут быть весьма схожи. Тем не менее ясно, что самыми древними и архаичными являются проконсулиды Proconsulidae и дендропитециды Dendropithecidae. Тех и других из-за их примитивности иногда возводят до ранга собственных надсемейств Proconsuloidea и Dendropithecoidea – шаг, оправданный скорее филогенетически, чем морфологически. Проконсулиды и дендропитециды – почти полностью африканские приматы (единственное исключение – одна находка в Саудовской Аравии), так что возникновение человекообразных в Африке практически несомненно.
Центры происхождения и происхождение мыслей о центрах происхождения мысли. Долгие десятилетия в антропологической литературе бурно обсуждался вопрос о центрах происхождения человекообразных обезьян и человека, причем эти две проблемы обычно никак не разделялись. Вплоть до конца XX века в учебниках обязательным был раздел о “географической прародине человека”. С XIX века рассматривалась вероятность появления человекообразных обезьян и человека в Южной Европе, так как именно тут впервые были найдены останки дриопитеков. Эти воззрения в нетронутом виде дожили до современности в заповедных отечественных школьных учебниках, как испорченный граммофон, воспроизводящий заевшую пластинку времен зари науки. В первой половине XX века многие антропологи считали прямыми предками человека рамапитеков и сивапитеков, многочисленные останки коих сохранились в миоценовых отложениях Пакистана и Индии. Основным аргументом было строение их зубной системы, в частности сравнительно небольшие клыки. К тому же до первой трети XX века находки ископаемых человекообразных обезьян из Африки не были известны, да и долго после эти находки были слишком фрагментарными и немногочисленными. Из Азии же происходили и черепа питекантропов и синантропов – древнейших прямоходящих, известных до открытия австралопитеков (которые к тому же долгое время после первоописания рассматривались многими антропологами как тупиковая ветвь эволюции). В итоге так называемая “гипотеза азиатской прародины” считалась одной из ведущих до 1960-х годов. В настоящее время, с открытием практически непрерывной линии эволюции гоминид в Африке и неоткрытием такой линии в Азии, “азиатская концепция” вспоминается только как элемент истории антропологии. Позже находок в Азии были сделаны богатейшие сборы в Африке. Сейчас описана целая плеяда видов высших африканских приматов, живших с конца олигоцена до современности. Их морфология преемственна от более древних африканских “ранних узконосых” к австралопитекам и современным человекообразным обезьянам. Посему из трех возможных центров происхождения исходного предка человека Африка, бесспорно, побеждает.Проконсулиды Proconsulidae включают самых древних из известных человекообразных. Внутреннее подразделение проконсулид остается предметом бурных споров, но кажется удобным разделить их на подсемейства проконсулин Proconsulinae, ньянзапитецин Nyanzapithecinae и афропитецин Afropithecinae. Самый примитивный из всех – камойяпитек Kamoyapithecus hamiltoni, живший в конце олигоцена, в интервале от 27,5±0,3 до 24,2±0,3 млн лет назад в Кении. Многими своими чертами камойяпитек схож с сааданиусом, так что его можно считать еще одним достающим звеном – между примитивнейшими узконосыми и человекообразными. Однако удобно включать его уже в проконсулин.
Прочие проконсулины Proconsulinae: Proconsul, Kalepithecus, Limnopithecus, Nacholapithecus – бегали по восточноафриканским лесам 20–15 млн лет назад. Они известны по огромному количеству остатков, в том числе почти целым черепам и скелетам. Больше всех разрекламированы собственно проконсулы, в частности Proconsul heseloni, так как именно к этому виду принадлежит известнейший череп и скелет самки KNM-RU 7290, чей кривоватый анфас чаще, впрочем, фигурирует в популярных книгах под обозначением P. africanus. Большинство проконсулов были размером меньше шимпанзе: P. heseloni – самки 9–11 и самцы 20 кг, P. nyanzae – 35–38 и 26–28 кг, но огромные P. africanus достигали аж 63–87 кг.
Хотя часто проконсулов воспроизводят похожими на шимпанзе, они отличались массой примитивных черт. Проконсулы имели очень слабое надбровье, сравнительно небольшие размеры морды и клыков, узкое носовое отверстие, мелкое небо; мозг у самки KNM-RU 7290 достигал 130,3 см³ (то есть как у крупных самцов сиамангов и вдвое с лишком меньше, нежели у самых захудалых шимпанзе), а его форма больше похожа на мозг широконосых обезьян. Строение зубов проконсулов замечательно генерализованное, то есть годящееся в предки кому угодно: на молярах эмаль сравнительно толстая, но не слишком, цингулюм – утолщение эмали в виде пояска у шейки зуба – бывает развит, а бывает и ослаблен. Кстати, к толщине эмали зубов и цингулюму учеными проявляется повышенный интерес, эти признаки используются в числе основных диагностирующих при систематике древних гоминоидов.
Тело и конечности первых человекообразных совсем не были похожи на шимпанзиные. Бегали все проконсулиды – и проконсулины в частности – примитивно: на четвереньках, с опорой на ладонь; при этом длина рук и ног была примерно одинаковой. Морфологических приспособлений к вертикальному лазанию и подвешиванию на ветвях они либо вовсе не имели, либо только начинали их развивать. Благодаря находкам нескольких скелетов мы знаем, что Proconsul heseloni (17–18,5 млн лет назад) был совсем-совсем четвероногий и горизонтальный, а более поздний (15–16 млн лет назад) нахолапитек Nacholapithecus kerioi из Кении уже начал приобретать способности к вертикальному лазанию и, соответственно, вертикальному положению тела и головы (в частности, у него были чуть длиннее руки) – это были первые робкие подвижки в сторону нашего нынешнего состояния. Оба вида уже были бесхвостыми, так что сия черта, многими воспринимающаяся как сугубо человеческая, как минимум всемеро старше нашего рода.
Уголок занудства. Лопатка Proconsul heseloni больше похожа на таковую колобусов и прочих не подвешивающихся на руках приматов. Грудная клетка сравнительная длинная и узкая. Длинные кости массивные. Шиловидный отросток локтевой очень большой, образующий сустав как с трехгранной, так и с гороховидной костью; кисть длинная и узкая, но ее фаланги сравнительно короткие и слабо изогнутые. В запястье сохраняется самостоятельная центральная кость; таковая имеется у широконосых и мартышкообразных обезьян, тогда как у молодых гиббонов и орангутанов она тоже свободна, но не двигается отдельно от ладьевидной, а у старых может срастаться с последней; у горилл, шимпанзе и человека центральная кость срастается с ладьевидной еще в эмбриональном состоянии. Подвздошная кость проконсула узкая, по форме и ориентации больше похожая на кость мартышкообразных; на седалищной нет седалищной бугристости, так что сидел и спал проконсул в позах, типичных для широконосых, а не узконосых обезьян. Стопа больше всего напоминает стопу древесных, но нечеловекообразных приматов. Проконсул имел особую кость прехаллюкс, соединявшуюся с основанием первой плюсневой; такая же встречается у некоторых широконосых, египтопитеков и гиббонов, но отсутствует у мартышкообразных и высших человекообразных (Lewis, 1972). Добро пожаловать, экембо! или Новый образ проконсула? Систематика первых обезьян – хитрая наука на грани искусства. В ход идут как объективные параметры вроде размеров зубов, так и показатели формы, определяемые на глаз. Только пересмотрев сотни зубов, можно научиться различать хитрые одонтологические признаки вроде развития дистолингвального цингулюма, степени изгиба дистального края коронки и формы буккального профиля. Проблема в том, что, во-первых, разные антропологи смотрят на разные зубы, а во-вторых, придают признакам неодинаковый смысл. И конечно, никуда не девается индивидуальная, половая и возрастная изменчивость. Посему не странно, что среди человекообразных палеоприматологи выделяют сильно разное число не только видов и родов, но даже семейств! Особенно лихорадит систематику древнейших представителей – проконсуловых. Хорошо жилось систематикам конца XIX – начала XX века. Сначала всех первобытных человекообразных до кучи валили в единый род Dryopithecus, потом начали выносить азиатских представителей в свои роды (каковых навыделяли больше десятка, из которых валидными оказались… примерно два), наконец, дошли руки и до африканских зверей. Их стали называть проконсулами – Proconsul. Когда критическая масса находок выросла и стали очевидны существенные отличия разных “проконсулов”, опять пошла закономерная волна дробительства: названия родов африканских антропоидов посыпались как из рога изобилия, а свежеиспеченные таксоны стали расползаться по своим подсемействам и семействам. Однако некое ядро оставалось неприкосновенным: несколько видов считались “образцовыми проконсулами”, на которых никто не покушался. Но можно ли устоять перед соблазном выделить еще один род? Никак нельзя! И потому группа палеоприматологов сделала это – описала род Ekembo (McNulty et al., 2015). В роде Proconsul остались виды P. africanus, P. major и P. meswae из кенийских местонахождений Тиндерет, а также P. major из Уганды (этот последний – весьма спорный, другими исследователями он описывался как Ugandapithecus major, Ugandapithecus gitongai и Morotopithecus bishopi; равным образом P. meswae часто рассматривается как Ugandapithecus meswae). Те же останки, что были найдены на берегу озера Виктория в кенийских местонахождениях Кисингири, выделены ныне в новый род Ekembo. В нем оказались виды E. heseloni и E. nyanzae. Уже говорилось, что к виду heseloni принадлежит известнейший череп KNM-RU 7290. Так что же – переписываем учебники? Ставим под картинками новые подписи? Но. Стоит ли спешить? Насколько такая система лучше прежней – покажут новые исследования. Хотя отличия Proconsul и Ekembo показаны достаточно надежно – новоявленный род заметно мельче и грацильнее, – остается неочевидным: достойны ли они родового статуса? Существование разных видов не было секретом и раньше, виды в новом исследовании не подвергаются сомнению. А надежного критерия рода покамест никто из систематиков не предложил. Так что экзотическое “экембо” должно еще подтвердить право на существование. Желательно – практикой: если парадигма двух родов позволит лучше классифицировать новые находки и позволит уточнить родословную первых человекообразных – добро пожаловать, экембо!Примерно синхронен камойяпитеку руквапитек Rukwapithecus fleaglei, обитавший 25,2 млн лет назад в Танзании. Он близок ньянзапитецинам Nyanzapithecinae: Mabokopithecus, Nyanzapithecus, Rangwapithecus, Turkanapithecus, чьи зубы находят в кенийских и танзанийских отложениях с датировками от 19 до 13 млн лет назад. От прочих проконсулид ньянзапитецины отличаются широкими и короткими резцами, а также другими частностями строения зубов. Лучше прочих изучен турканапитек Turkanapithecus kalakolensis – от него сохранился почти целый череп и значительная часть скелета. Турканапитек был отдаленно похож на шимпанзе, но имел намного меньшие размеры – около 10 кг, гораздо более короткую морду со сравнительно короткими клыками, довольно слабое надбровье даже у самцов, очень широкое межглазничное пространство, сильно расширенные скуловые дуги при суженной мозговой коробке, мозг всего 84,3 см³ – как у макаки, заметно меньше, чем у гиббона, и почти в пять раз меньше, чем у шимпанзе. Ньянзапитецины были вообще не слишком крупными: ньянзапитеки Nyanzapithecus имели размер макаки – 8–11 кг, а рангвапитек Rangwapithecus gordoni весил примерно 15 кг. Короткомордый ньянзапитек назывался в числе возможных предков ореопитека (Harrison, 1986), а листоядный рангвапитек – орангутана, но трудно судить об этом уверенно из-за их фрагментарности.
Третье подсемейство проконсулид – афропитецины Afropithecinae. Его представители: Afropithecus, Equatorius и Morotopithecus – обитали в ранне– и среднемиоценовых лесах Восточной Африки 21,5–14 млн лет назад, а гелиопитек Heliopithecus leakeyi жил в Саудовской Аравии 17–18 млн лет назад. Таким образом, гелиопитек оказывается первым внеафриканским гоминоидом, с него можно вести отсчет выходов из Африки, закончившийся в конце концов расселением сапиенсов. Особо интересно, что гелиопитек примитивнее африканских родственников: этот факт мог определить пути эволюции всех последующих европейских и азиатских гоминоидов.
Моротопитек Morotopithecus bishopi – самый древний из афропитецин и один из самых древних гоминоидов, по части признаков он даже примитивнее гиббонов. По строению верхней части бедренной кости он уникален, а если на кого и похож, то на мартышкообразных. Зато моротопитек имел довольно крупные размеры – 40–50 кг – и общий план строения крупной человекообразной обезьяны. В отличие от многих родственников, он достаточно часто лазал в вертикальном положении, цепляясь за ветви преимущественно руками, и даже мог неспешно брахиировать. С некоторой вероятностью он является предком более поздних человекообразных обезьян.
Кстати, о вертикалях и горизонталях… Вертикальное лазание стало одним из важнейших условий появления прямохождения. Утяжелившиеся человекообразные в некоторый момент перестали много прыгать и перешли к хождению по горизонтальным ветвям. Но ходить на четвереньках по ветвям крупному животному тоже не очень удобно. К тому же замедлившееся и передвигающееся по довольно толстым сучьям животное рискует попасться на обед хищнику. Доселе эта проблема решалась подвижностью, но как раз ее-то гоминоиды и растеряли. Из этого есть оригинальный выход – стать крупнее и сильнее, чтобы уже никакой леопард не посмел напасть (есть другой способ – стать мелким, чтобы хищнику было энергетически невыгодно гоняться за лилипутом, но это путь в интеллектуальный тупик, почти невозможный для высоко социальных человекообразных). Однако тяжелому зверю еще труднее ходить по веткам. Так развивается вертикальное лазание. Но и оно спасает не полностью, так что тенденция спускания на землю будет в такой эволюционной линии просто неизбежной. Что мы и видим в палеонтологической линии приматов. На земле, конечно, опасностей добавляется, но еще частично древесный зверь, который должен уметь подтягивать свое мощное тело на ветвях, имеет такую мускулатуру, что может дать затрещину любому хищнику. Гориллы тому примером. Из-за вертикального лазания тело приобретает новое положение, перпендикулярное тому, что было привычным от ланцетника доселе. Органы, до сих пор мирно подвешенные на арке позвоночника, начинают давить друг друга: сверху без конца стучит беспокойное сердце, ходят ходуном легкие, диафрагма давит на печень и желудок, а кишечнику и мочевому пузырю достается больше всего. А уж что делается с маткой… Ужас просто! Конечно, внутренние органы у приматов с вертикальным положением тела не смещаются слишком уж радикально, печень с сердцем не меняются местами, но определенные изменения, безусловно, происходят. Например, сердце теперь должно качать кровь вверх, а не вперед, особенно сложно вернуть венозную кровь обратно. Таким образом, положение тела при вертикальном лазании стало важнейшим залогом, частично поводом и даже гарантией развития прямохождения. Кстати, не в этом ли причина сохранения четвероногости у павианов, тоже вышедших в саванну? У них не было крупных вертикально лазавших предков, так что и появление в павианьей линии прямохождения было бы чудом. Некоторым суррогатом является типичная для павианов поза отдыха – сидя, с выпрямленной спиной, – но из статичной позы активного хождения на двух ногах не создашь.Часть похожих находок из Кении и Уганды описана как угандапитеки Ugandapithecus – U. meswae, U. legetetensis, U. major и U. gitongai, в последовательном ряду которых размеры все время увеличивались (Pickford et al., 2009). Ugandapithecus major раньше назывался Proconsul major, но резко отличается от проконсулов строением скелета – не только размерами 60–90 кг, но и более существенными чертами. Однако самостоятельный статус угандапитеков признается не всеми исследователями.
Лучше всех из афропитецин изучен афропитек Afropithecus turkanensis, от которого сохранился почти целый череп и много более фрагментарных частей. Уникальность афропитека в резко сниженном половом диморфизме по размерам клыков, притом что сами клыки очень большие и очень толстые. Обычно у приматов, да и вообще любых млекопитающих, особенно нехищных, крупные размеры клыков однозначно указывают на мужской пол их обладателя (достаточно посмотреть на мандрилов). Если же самцы с самками отличаются не очень резко, то и клыки у них небольшие (чему примером может служить человек). Афропитек же являет собой разительное исключение: самцы и самки этого вида надежнее различались по строению премоляров, но не клыков. Судя по всему, такая особенность была следствием питания какими-то твердыми семенами или орехами, которые афропитеки грызли как раз клыками (Rossie et MacLatchy, 2013). Из-за этого же афропитеки имели характерную внешность: сильно выступающую вперед морду, широченные резцы, огромные височные мышцы и, соответственно, сагиттальный гребень на своде черепа, уменьшенные гайморовы пазухи, высокую нижнюю челюсть. Кстати, в меньшей степени то же было характерно для нахолапитека, а среди современных обезьян – для мохнатых саки Chiropotes и уакари Cacajao (нелишне вспомнить и ганлею), так что тут мы имеем очередной пример конвергенции.
Экваториус Equatorius africanus, живший 15,4–15,6 млн лет назад в Кении, судя по строению костей, вел полуназемный образ жизни (Patel et al., 2009). Конечно, он не достиг даже степени наземности павианов, но это был первый заход гоминоидов на сушу – маленький шаг для экваториусов, но огромный скачок для гоминоидов! Не пройдет и 10 млн лет, как потомки проконсулид полностью освоят африканскую саванну.
Уголок занудства. Чтобы Читатель проникся не только антропологическими байками, но нюхнул и настоящей науки, полезно привести без перевода на человеческий язык список признаков наземности и древесности экваториуса, позаимствованный из статьи, посвященной этому вопросу (Patel et al., 2009). Признаки, свидетельствующие о полуназемности: большой бугорок выступает выше головки плечевой кости; на дистальной части плечевой медиальный надмыщелок в состоянии ретрофлексии; проксимальная часть локтевой с выдающимся дорзально локтевым отростком, блоковидная вырезка глубокая, венечный отросток хорошо развит; головки метакарпалий с хорошо развитыми поперечными дорзальными гребнями и пальмарно широкой суставной поверхностью; фаланги кисти короткие, массивные и прямые; проксимальные фаланги кисти укорочены относительно метакарпалий сравнительно с большинством наземных мартышкообразных. Древесные или примитивные Proconsul-подобные черты: диафиз плечевой в состоянии ретрофлексии, выражен отдельный латеральный надмыщелковый гребень; лучевая кость прямая и грацильная; головка лучевой циркулярная; метакарпалии короткие, с дорзально суженными проксимальными суставными поверхностями; проксимальные фаланги кисти относительно метакарпалий длиннее, чем у постоянно наземных мартышкообразных типа Theropithecus и Papio. Для восприятия этой и прочей подобной тарабарщины надо бы для начала знать анатомические плоскости и направления. Сагиттальная плоскость проходит спереди назад и сверху вниз и делит тело на правую и левую стороны, парасагиттальная параллельна ей, но идет не строго посередине; фронтальная плоскость проходит сверху вниз и поперек, отделяет перед от зада; трансверзальная, она же поперечная плоскость делит тело поперек, для человека она же горизонтальная и будет проходить параллельно земле. Медиально – близко к середине, к центру тяжести (позвоночник в теле); мезиально – близкий термин, используется либо как синоним, либо как обозначение середины на некой протяженности (локоть на руке); латерально – сбоку (ухо на голове); дорзально – на спинной стороне (лопатка на туловище; в том числе на тыльной стороне кисти); вентрально – на брюшной стороне (грудина на туловище); краниально – в направлении переднего конца тела и головы; каудально – в направлении заднего конца тела и хвоста; проксимально – ближе к началу, телу и центру тяжести (плечо на руке, локоть на предплечье, запястье на кисти); дистально – ближе к концу, дальше от тела и центра тяжести (пальцы на руке, запястье относительно предплечья, локоть относительно плеча); волярно или пальмарно – на ладонной стороне кисти; плантарно – со стороны стопы; ульнарно – на предплечье или кисти со стороны локтевой кости и мизинца; радиально – на предплечье или кисти со стороны лучевой кости и большого пальца; лябиально или буккально – на зубе или челюсти со стороны губ или щеки; лингвально – на зубе или челюсти со стороны языка.Otavipithecus namibiensis уникален своим географическим положением, ибо его челюсть найдена в Намибии, в местности, ныне явно не приспособленной для человекообразных обезьян. С некоторой вероятностью отавипитек родственен афропитецинам, но при сравнительно поздней датировке – 13 млн лет назад – он крайне примитивен и по части признаков сближается вообще с плиопитековыми и дендропитецидами. Возможно, Южная Африка была своего рода заповедником архаичных форм.
До сих пор я подчеркивал примитивные и негоминоидные черты проконсулид, так что Читатель вправе спросить: “Так почему же, собственно, они считаются первыми человекообразными?” Конечно, несколько больше признаков проконсулид сближают их именно с антропоидами. Например, сроки прорезывания постоянного первого нижнего моляра у афропитека были существенно большими, нежели у мартышкообразных, зато в точности как у шимпанзе (Kelley et Smith, 2003). Значит, детство было удлинено, а это – один из многочисленных шагов к разуму.
Дендропитециды (Dendropithecidae): Dendropithecus, Micropithecus и Simiolus – жили в начале и середине миоцена (20–14,5 млн лет назад) в Кении и Уганде. Одна из особенностей этих странных обезьян – мощные, недлинные, но толстые конические клыки у самцов. От микропитека Micropithecus clarki сохранились части черепа, так что мы знаем, что эти животные имели большие глазницы, широкое межглазничное пространство, сравнительно маленькую морду и грацильную нижнюю челюсть. Поэтому они, равно как и дендропитеки Dendropithecus macinnesi, назывались в качестве возможных предков гиббонов. Географически это выглядит странно, ибо дендропитециды неизвестны в Азии, а гиббоны – в Африке. К тому же дендропитециды бегали по веткам на четвереньках и не имели каких-либо приспособлений к брахиации.
От скелетов дендропитецид сохранилось не так мало костей, особенно от симиолуса Simiolus enjiessi, благодаря чему нам известно, что они обладали вытянутыми грацильными конечностями примитивного строения, напоминающими скорее вариант широконосых, нежели мартышкообразных или человекообразных обезьян (Rose et al., 1992). Таким образом, множество очень примитивных черт дендропитецид позволяют считать их параллельной остальным человекообразным линией эволюции, сохранявшей массу пережитков едва ли не эоценовых времен.
Некоторые древние человекообразные имеют своеобразную морфологию, позволяющую выделить их в отдельные группы. Например, несколько спорным статусом обладают грифопитециды Griphopithecidae – первые в основном неафриканские гоминоиды. Их номинативное подсемейство Griphopithecinae представлено единственным родом грифопитек Griphopithecus. Этот или очень похожий примат жил 17 млн лет назад на юге Германии (Böhme et al., 2011; Heizmann et Begun, 2001). От него сохранился лишь один поломанный зуб, но это первый европейский гоминоид. Другие виды грифопитеков: G. alpani, G. darwini и G. suessi – обитали около 14–15 млн лет назад в Турции, Австрии и Швейцарии. Это были довольно крупные древесные четвероногие поедатели фруктов, твердых плодов и орехов, жившие во влажных субтропических лесах. О них известно крайне мало, но грифопитеки были, вероятно, общими предками всех следующих неафриканских гоминоидов.
В целом похожие кениапитецины Kenyapithecinae жили 13,4–14 млн лет назад в Кении (Kenyapithecus wickeri) и Турции (K. kizili). Они тоже могли есть какие-то твердые семена, хотя точно это утверждать трудно.
Человекообразные в рыжих тонах: Азия и Европа.
Расселившиеся за пределы Африки гоминоиды дали новый всплеск разнообразия. Местами оно приобретало довольно экзотичные формы, как, например, на острове Гаргано в Средиземном море, где жил ореопитек Oreopithecus bambolii, выделяемый в самостоятельное семейство ореопитецид Oreopithecidae. Эта небольшая обезьяна отличалась массой специфических черт, в числе коих резко уменьшенные резцы, сравнительно маленькие клыки у самцов – свидетельство пониженной агрессивности и слабой иерархичности, необычайное сходство верхних и нижних моляров, центроконид – особый бугорок на молярах. Специфику скелета, полупрямохождение и умелые ручки ореопитека мы уже достаточно подробно разобрали выше, тут же повторимся лишь, что наиболее вероятные предки сего таинственного зверя обнаруживаются в Африке, где ньянзапитек и мабокопитек демонстрируют с ним замечательное сходство. Какими извилистыми путями кенийских обезьян занесло на сказочный северный остров – загадка зоогеографии.
Другая тайна – происхождение гиббонов.
Долой гипотезу гигантского гиббона! Даешь гипотезу карликового гиббона! Плиобатес из Испании – новый предок? Известно великое множество ископаемых обезьян. Но сотни уже известных видов – явно капля в море реально существовавших разновидностей. Чем больше мы знаем, тем лучше мы понимаем, чего мы не знаем. И при этом известно, в каких слоях и каких местах лучше всего искать то, чего больше всего хотелось бы найти. Поэтому палеоприматологи рыщут по карьерам и оврагам всего мира в поисках чего-то новенького. И поэтому закономерно открытие не только новых видов, но и более крупных систематических единиц. А посему великое дело – описание плиобатеса Pliobates cataloniae, выделенного в самостоятельное семейство Pliobatidae (Alba et al., 2015). Его останки найдены в Северо-Западной Испании и имеют возраст 11,6 млн лет. Сохранность уникальна: палеонтологам редко достаются скелеты, включая череп, конечности и даже кости запястья и стопы. Череп плиобатеса выглядит очень странно: мозговая коробка относительно большая, хотя и приплюснутая, мордочка крохотная, глазницы огромные и совершенно круглые. При этом мозгов было не так уж богато – 69–75 см³, как не у самой крупной мартышки. Даже у гораздо более древних проконсулов мозга было в два с лишним раза больше, да и современные гиббоны обгоняют испанскую обезьяну в полтора раза. Особое внимание привлекают махонькие клыки, едва выступающие за уровень соседних зубов, отчего череп плиобатеса смахивает на остов вампира-недокормыша. Питался плиобатес в основном фруктами. Руки плиобатеса очень длинные и вытянутые. Судя по строению запястья, в основном он бегал по горизонтальным ветвям, хотя уже мог подвешиваться к веткам снизу. Однако он не умел лихо брахиировать подобно нынешним гиббонам, в этом смысле плиобатеса нельзя назвать слишком специализированным – хорошая черта для потенциального Великого Предка. Открытие плиобатеса проливает свет на эволюцию всех человекообразных. Дело в том, что мелкие обезьяны вообще редко и плохо сохраняются в ископаемой летописи. Из-за этого создается впечатление, что первые человекообразные – проконсулиды – были крупными, а лишь потом часть из них измельчала. Но так ли это? Размер тела плиобатеса был очень маленький – всего 4–5 кг, то есть с хорошую кошку. Отдельные черты плиобатеса выглядят очень примитивно и сближают его с загадочными дендропитеками, другие же весьма похожи на гиббоньи. Вместе с тем по совокупности признаков плиобатес лишь едва прогрессивнее проконсулид и примитивнее всех прочих человекообразных. Получается, что такими – мелкими древесными древолазами-недобрахиаторами – должны были быть общие предки гиббонов и крупных человекообразных, да и нас тоже. Стало быть, плиобатес – очередное достающее звено, Великий Предок? Авторы первоописания именно на этой пафосной ноте и заканчивают свое исследование: возможно, единый прародитель всех человекообразных был более гиббоноподобным, чем орангутано-шимпанзе-гориллоподобным. Что ж, байка про “питекантропа – гигантского гиббона” давно отправлена в разряд забавных выкрутасов истории палеоантропологии. Пришла пора “концепции карликового гиббона”? Впрочем, есть парочка зловредных но. Самое обидное, датировка плиобатеса не такая уж запредельная. В это же время в Африке некие обезьяны уже начали выглядывать из джунглей в саванну. Задолго до испанского зверя по Африке и Азии уже скакали весьма разнообразные человекообразные, и почти никто из них не был специфически схож с гиббонами. В частности, длинные кости рук плиобатеса выглядят все же чересчур вытянутыми. Конечно, они еще не были явно брахиаторными, но находились явно на пути к этому состоянию. Странно, если бы сравнительно короткие руки проконсулов сначала удлинились до состояния плиобатеса, а потом снова укоротились в большинстве линий, кроме гиббоньей. Некогда бурно обсуждавшаяся “брахиаторная гипотеза”, согласно которой предки человека были брахиаторами, в чистом виде давно признана несостоятельной, хотя, конечно, никто не отрицает, что элементы брахиации в локомоторном репертуаре древнейших человекообразных присутствовали. Как уже говорилось выше, и с мозгами у плиобатеса не фонтан. Неужели со времен проконсулов они сначала уменьшились, чтобы потом снова увеличиться? Кроме того, как часто бывает, подводит география. Конечно, не слишком вероятно, что предки гиббонов возникли на крайнем западе Европы, а потом расселились до Тихого океана и сохранились лишь в Юго-Восточной Азии и Индонезии. Вряд ли плиобатес был прямым предком гиббонов. Но из всех наличных ископаемых он ближе всего к ним. Сочетание неподходящей датировки и локализации с мозаикой генерализованно-специализированных черт может говорить о том, что плиобатес, скорее всего, являлся реликтовым потомком примитивных человекообразных, сохранившимся на краю Земли, тогда как в Африке и Азии эволюция уже дала гораздо более продвинутых обезьян. Кто-то очень похожий на плиобатеса, но еще более примитивный, живший раньше на полтора десятка миллионов лет и в Африке, действительно мог быть Великим Предком. Тогда проконсулиды – далеко не самые примитивные человекообразные, тогда многое сходится, но возникают и новые вопросы. Дело за малым: найти аналог плиобатеса, но в Африке и с датировкой 25–30 млн лет.Подходящий кандидат на звание предка гиббона – юаньмоупитек Yuanmoupithecus xiaoyuan из Южного Китая (7,1–9 млн лет назад), однако до крайности плохо известный – всего лишь по нескольким зубам.
Гиббоновые Hylobatidae населяют с плиоцена поныне Юго-Восточную Азию и Индонезию. Резкая специализация, очевидно, ставит их особняком среди прочих человекообразных. Прямые предки гиббоновых точно не известны, на их роль выдвигались разные ископаемые приматы – Propliopithecus из олигоцена Египта, Pliopithecus и Crouzelia из миоцена Европы, Laccopithecus и Yuanmoupithecus из миоцена Китая, Dionysopithecus из миоцена Китая, Пакистана и Таиланда, Krishnapithecus из миоцена Индии, Dendropithecus, Limnopithecus и Micropithecus из миоцена Восточной Африки. Низведение корней гиббоновых аж к нижнему олигоцену создало мнение о более раннем их отделении от прочих гоминоидов, чем даже проконсулид, а резкие отличия от человека – о примитивности в сравнении с крупными человекообразными. Этому немало способствовали устоявшиеся стереотипные представления о человеке как венце эволюции, шимпанзе – как почти-человеке, дриопитеках – как почти-шимпанзе, а проконсулах – как почти-дриопитеках. В реальности же проконсулиды заметно примитивнее, специализации гиббоновых не примитивны, а, напротив, очень и очень продвинуты, а сама филогенетическая линия может быть далеко не столь древней. Гиббоны запросто могли появиться в самом конце миоцена или даже в плиоцене; древнейший достоверный обнаружен Эженом Дюбуа в Триниле вместе с питекантропом. Известные ископаемые гиббоны принадлежат уже к современным родам и даже современным видам, так что почти не отличаются от них. Таким образом, фактически гиббоны являются высшим и самым продвинутым вариантом эволюции человекообразных.
Гиббоновые – животные не очень большие, весом от 5 до 12 кг; самые отъетые сиаманги могут достигать 23 кг. Они имеют грацильный череп с ослабленным рельефом, маленькую морду с небольшими зубами, но длинными тонкими клыками, относительно тела крупный, а на самом деле маленький головной мозг – около 100 г, примерно как у среднеразмерных мартышкообразных. Руки гиббонов чрезвычайно удлинены и намного больше длины ног и тела. Такие пропорции обусловлены замечательным способом локомоции – брахиацией, то есть передвижением только с помощью рук. Гиббон раскачивается на ветке на одной руке, перебрасывается на другую ветку другой, а ноги в этом никак не участвуют. Специализация к брахиации у гиббонов так велика, что они не могут передвигаться по земле на четырех ногах и при необходимости спуститься на землю ходят на двух, поднимая руки вверх. Пальцы кисти образуют крючок, удобный для цепляния за ветви. Большой палец на руке замечательно длинный – вдвое больше, чем у человека, но практически не противопоставляющийся остальным, тем более что из-за крайней удлиненности пясти кончик большого пальца достает только до основания остальных. Из-за этого гиббонам крайне трудно что-либо брать рукой, они очень неуклюже сгребают предметы всей кистью. Она у гиббонов рассчитана на растяжение, а не сжатие: в частности, в запястье есть особая кость os Daubentonii, расположенная в толстом мениске, который укрепляет соединение шиловидного отростка локтевой кости с гороховидной костью.
Кстати, о скалолазах… Измерения профессиональных скалолазов показали, что у них сравнительно с обычными людьми весьма короткие ноги. Длинные ноги много весят, а это очень мешает при карабканье по вертикальным стенам. Так что у эволюции всегда есть возможности для неожиданных поворотов: возникни необходимость, из человека запросто может получиться брахиирующее чудо с мощными длинными руками и коротенькими, но тоже цепкими ножками.Специализированной чертой гиббонов являются маленькие седалищные мозоли, иногда подчеркнутые длинной шерстью выделяющегося цвета; на седалищных костях для их крепления имеются большие плоские поверхности. Скорее всего, седалищные мозоли гиббонов возникли конвергентно с мозолями мартышкообразных, а не являются общим древним наследием, за это говорят особенности их строения, прикрепления и развития (McCrossin et Benefit, 1992). Тут же можно упомянуть, что седалищные подушки шимпанзе устроены совсем иначе (состоят в основном из жира, а не утолщенной кожи). С изобретением стульев человек тоже вступил на скользкую дорожку, ведущую к развитию седалищных мозолей; коли у родственников они появлялись, то куда и нам деваться.
Гиббоны многочисленны по меркам современных человекообразных – специалисты выделяют от пяти до шестнадцати видов, объединяемых иногда в один род Hylobates, а иногда разделяемых на Hylobates, Bunopithecus, Nomascus и Symphalangus, которым не менее часто придается подродовой статус. Впрочем, принадлежность к разным родам или подродам не мешает гиббонам давать гибридов. Все это свидетельствует о значительном сходстве разных гиббонов и наверняка об их совсем недавнем эволюционном происхождении. Самые известные – белорукий гиббон H. lar, белощекий H. concolor, серебристый H. moloch и белобровый H. hoolock.
Белорукие H. lar и чернорукие гиббоны H. agilis имеют несколько контрастных вариантов окраски – черный, красно-коричневый и белый, а у китайского белощекого H. leucogenys, белощекого H. concolor и белобрового H. hoolock самцы черные, а самки белые или золотистые.
Самый большой гиббон – сиаманг Hylobates (Symphalangus) syndactylus или Symphalangus syndactylus – отличается срастанием указательного и среднего пальцев на стопе (часто ошибочно пишут, что у них сращены пальцы на кисти); за такое строение сиамангов называют еще симфалангами. Вторая особенность сиамангов – огромный горловой мешок у самцов и самок, позволяющий им петь громче всех прочих человекообразных, кроме разве что тирольцев и оперных примадонн. Также сиаманги – самые длиннорукие приматы из всех: их руки в полтора раза длиннее ног.
Живут гиббоны семейными группами – папа, мама и детеныш. Эти обезьяны уникальны своими вокальными способностями – они поют по утрам на вершинах деревьев всей семьей, чтобы соседи знали, чья тут территория.
Кстати, о птичках… Гиббоны, как известно, поют. Но этим занимаются не только они: во-первых, иногда поют и люди (хотя гораздо реже гиббонов, которые делают это ежедневно), во-вторых, многие птицы. При этом часть птиц поет вполне творчески, им надо долго этому учиться, у них бывают диалекты и индивидуальные уровни мастерства, бездари и таланты (это не касается некоторых халтурщиков типа петухов и кукушек, чьи вокализации на сто процентов врожденны и ни от чего не зависят). Люди еще и говорят и, что характерно, тоже этому долго учатся. Удивительно, но у птиц, поющих с обучением, генетика и нейрофизиология пения оказались необычайно похожи на генетику и нейрофизиологию речи у людей (Pfenning et al., 2014). За то и другое отвечают очень похожие комплексы генов и близкие по происхождению и функциям участки мозга. Ясно, что способности эти развились совершенно независимо, так что тут мы имеем замечательный пример генетической конвергенции. Более того, разные поющие птицы приобрели свои замечательные способности независимо друг от друга, ведь единого предка-певца никогда не существовало. Было бы чрезвычайно интересно сравнить в том же аспекте гиббона и человека: думается, наши дарования тоже имеют независимое происхождение. Судя по всему, некоторые сложные признаки можно реализовать не столь уж большим количеством генетических путей: сколь ни богата природа на выдумки, все же и она имеет ограничения.Следующие гоминоиды отличаются друг от друга уже совсем незначительно, а потому обычно объединяются в рамках одного семейства. Тут появляются варианты, как это семейство называть. Традиционно крупных человекообразных разделяли на понгид и гоминид. Отличия человека от орангутанов, горилл и шимпанзе вроде бы слишком очевидны, чтобы сваливать их в кучу. Однако филогения позволяет классифицировать их иначе. Ведь по пути к человеку раньше всех отделилась линия орангутанов, намного позже среди африканских человекообразных – линия горилл, затем шимпанзиная разошлась от человеческой, а уж в самом конце появились два вида шимпанзе и разные виды людей, из которых все, кроме одного, исчезли. Таким образом, филогенетически получается, что человек ближе к шимпанзе, чем шимпанзе к горилле, а к горилле ближе, чем горилла к орангутану.
Уголок занудства. Кладистика – способ построения систематики на основе исключительно порядка ветвления филогенетического древа. Все потомки одного предка считаются принадлежащими к одной таксономической группе. В кладистике используются свои термины, придающие ей дополнительную внешнюю беспристрастность, политкорректность и наукоподобие. Плезиоморфный признак – присущий предкам и общий для всех потомков, по-простому – примитивный; симплезиоморфия – родство по такому признаку – считается незначимым и не учитывается при построении схемы. Апоморфный признак характеризует только какую-то конкретную группу живых существ, по-человечески такой называется специализированным или продвинутым; синапоморфия – родство по такому признаку – признается единственно значимым для установления близости групп. Гомоплазия – сходство признаков в разных группах, возникшее независимо, – то же самое, что результат конвергенции. В кладистике фактически игнорируются идеи об ароморфозах и идиоадаптациях, уровнях и значениях эволюционных преобразований. Это сделано с целью объективизировать систему, избавить ее от оценочных суждений. Построение филогенетических деревьев по возможности автоматизировано и формализовано. Это удобно, особенно для не слишком опытных морфологов, к тому же ограниченных во времени грантами и сроками сдачи статей в печать. Однако выбор анализируемых признаков по-прежнему остается за человеком, а применяемый при их обсчете кластерный анализ дает не столь однозначные результаты, как хотелось бы, так что мнение исследователя исключить все же не удается. Посему кладистический подход в систематике, с одной стороны, завоевал почти абсолютное господство в современной биологии, с другой – постоянно критикуется.Наиболее крайний вариант систематики предложили молекулярные биологи (Goodman et al., 1998). Согласно им, семейство Hominidae состоит из одного подсемейства Homininae (неясно, зачем его тогда вообще выделять, но так сделано в первоисточнике), в котором выделяются три трибы. Первая триба – Oreopithecini. Вторая – Hylobatini – с единственной подтрибой Hylobatina включает два монотипичных рода: Symphalangus syndactylus и Hylobates lar. Вторая триба – Hominini – включает две подтрибы. Первая – Pongina с сивапитеком Sivapithecus и орангутаном Pongo. Вторая – Hominina с четырьмя родами: Samburupithecus, Graecopithecus, Gorilla и Homo. Род Homo подразделяется на два подрода: шимпанзе H. (Pan) (с видами H. (P.) troglodytes и H. (P.) paniscus) и H. (Homo) sapiens, сюда же вклиниваются австралопитеки (Goodman et al., 1998). В принципе, если попытаться привести систематику водорослей, жуков и приматов к общему знаменателю, такая схема вполне оправдана. Жаль только, в ней напрочь растворяются почти все ископаемые формы – им просто не хватает места; на практике такой схемой невозможно пользоваться. Посему она не нашла доброго отклика в сердцах антропологов, а лишь осталась навеки в истории науки как величайшая попытка низвести человека с высот исключительности.
Существует огромное количество других вариантов классификации крупных человекообразных, в подавляющем их числе признается лишь одно семейство гоминид Hominidae, но мы используем более консервативную версию, дабы подчеркнуть различия и специализации разных групп. О неисключительности человека и так было довольно сказано выше, пора обратить взор на специфику.
Понгиды Pongidae (или Anthropomorphidae) – крупные человекообразные обезьяны, населявшие со среднего миоцена экваториальные и тропические леса Африки, Европы и Азии. Четыре вида сохранились по наши дни, но ископаемых форм гораздо больше, и они гораздо разнообразнее.
Азиатская часть филогенетического куста представлена рамапитецинами Ramapithecinae, гигантопитецинами Giganthopithecinae, дриопитецинами Dryopithecinae и понгинами Ponginae.
Рамапитецины Ramapithecinae – Sivapithecus и Ankarapithecus – жили от 12,5 до 8 млн лет назад. Подавляющая часть останков найдена в Сиваликских холмах на стыке Пакистана, Индии и Непала. В первой половине XX века была описана целая куча родов и видов сиваликских приматов, в ход шли почти все, даже самые фрагментарные находки. Сейчас признается от трех до пяти видов сивапитеков Sivapithecus: самый древний и некрупный S. indicus (10,5–12,5 млн лет назад, самцы 30–45 кг, самки 20–25 кг); крупнейший S. parvada (10,1 млн лет назад, самцы 60–75 кг, самки 30–45 кг), их потомок S. sivalensis (8,5–9,5 млн лет назад, промежуточного между предыдущими размера), а также его возможные синонимы S. punjabicus и S. simonsi. Разница между всеми ними не такая уж большая, что наглядно видно по диагностике самого целого черепа, определявшегося и как S. indicus, и как S. punjabicus, и S. sivalensis.
Кстати, о чехарде… Как известно, ученые, занимающиеся классификацией, делятся на “дробителей” и “объединителей”. Так было всегда и пребудет вовек. Первые склонны давать новое название каждому древнему огрызку, вторые готовы слить воедино и слона с тенреком. Посему систематика ископаемых гоминоидов чрезвычайно запутанна. Исторически так сложилось, что первыми стали известны европейские дриопитеки, затем азиатские сивапитеки, а после – африканские проконсулы. Чаще всего одни и те же находки обозначались разными авторами под несколькими названиями, которые потом могли оказаться разнесенными даже в разные семейства. Потому одни и те же слова встречаются в самых разных сочетаниях: Proconsul africanus назывался Dryopithecus africanus, Sivapithecus africanus и Kenyapithecus africanus; Equatorius africanus имеет частичные синонимы Kenyapithecus africanus, Griphopithecus africanus, Proconsul nyanzae и Sivapithecus africanus; Nyanzapithecus vancouveringorum в литературе может быть помянут как Dryopithecus (Rangwapithecus) vancouveringi, Proconsul vancouveringi или Rangwapithecus vancouveringi; Ugandapithecus major – как Proconsul major, Dryopithecus (Proconsul) major или Morotopithecus bishopi. Род Sivapithecus – это то же, что Ramapithecus, Bramapithecus, Palaeopithecus, Anthropopithecus, Sugrivapithecus и Dryopithecus (Sivapithecus), тогда как Dryopithecus – Adaetontherium, Anthropodus, Neopithecus, Hispanopithecus и Hungaropithecus. Очень не повезло роду кениапитеков, ведь под названием Kenyapithecus africanus кроются останки и Proconsul africanus, и Equatorius africanus, и Mabokopithecus clarki, и Kenyapithecus wickeri. Разобраться в этом балагане крайне трудно даже узким специалистам, особенно учитывая крайнюю фрагментарность большинства находок.От сивапитеков сохранилось огромное количество челюстей и зубов, а также часть черепа. Череп замечательно похож на орангутаний: с высокой вогнутой мордой, резко выступающими челюстями, вытянутыми вертикально овальными глазницами, высоко поднятыми над носовым отверстием, резко суженным межглазничным пространством. Нижняя челюсть весьма тяжелая. Верхние центральные резцы очень широкие, а боковые маленькие, клыки умеренно крупные, моляры с толстой эмалью и без цингулюма.

Рис. 39. Черепа Sivapithecus (а), Ankarapithecus (б) и Dryopithecus (в).
Найдены и кости посткраниального скелета сивапитеков, хотя сравнительно немногочисленные. Они замечательно отличаются от соответствующих костей современных человекообразных. Например, верхняя часть плечевой больше напоминает вариант павианов, а нижняя – африканских человекообразных; нижняя часть большой берцовой формой суставной поверхности похожа на таковую у мартышкообразных, но показателем сечения и внутренней лодыжкой – человекообразных, прежде всего шимпанзе; крючковидная кость не имеет крючка. Кости запястья приспособлены к костяшкохождению – с опорой на согнутые пальцы (Begun et Kivell, 2011); этот способ, видимо, возникал среди человекообразных независимо как минимум трижды: в линиях, ведущих к орангутанам, гориллам и шимпанзе. Однако строение фаланг указывает, что сивапитек ходил с опорой на ладонь (Rose, 1986). Не очень ясно, что значат все эти противоречия. Видимо, сивапитеки были очень своеобразными животными: на лицо орангутанами, руками и ногами – частично павианами, частично шимпанзе. Понятно только, что прямого аналога им сейчас нет.
Таз сивапитека. Люди встали на две ноги примерно 7–6 млн лет назад. Часто по умолчанию считается, что предки были в принципе похожи на современных человекообразных обезьян – орангутанов, горилл и шимпанзе, а то и гиббонов. Дескать, скакали по веткам этакие “протошимпанзе”, потом слезли с дерева и стали ходить на двух ногах. А кто не слез, тот так и прыгает до сих пор по лесам. Обезьяны сохранили примитивные черты, мы изменились. Но так ли это? На самом деле, много ли мы знаем о способе передвижения древних приматов? Как это вообще узнать? Ведь чаще всего от них находят зубы и обломки челюстей, кости скелета сохраняются редко и плохо. Если в Африке еще найдены несколько скелетов проконсулов, то в Азии с этим совсем беда. До сих пор бесчисленные сивапитеки и их родичи известны почти исключительно по зубам, мы более-менее представляем, что они ели, но как они добирались до плодов – пока оставалось загадкой. Но все тайное когда-нибудь становится явным. В 1990 году в Пакистане, на плато Потвар, была найдена тазовая кость. Через двадцать лет – в 2010 году – она была определена как кость примата. А в 2015 году вышла статья с ее описанием (Morgan et al., 2015). Судя по месту обнаружения и датировке – 12,3 млн лет назад, кость принадлежала Sivapithecus indicus, потому что ранее тут нашли верхнюю челюсть и три зуба именно этого вида. Размеры кости позволили предположить, что это была самка весом около 20–25 кг – как раз подходящий размер, ранее предполагавшийся на основании размеров зубов. Исследователи сравнили таз сивапитека с костями множества прочих обезьян. Выводы были довольно неожиданными. Судя по совокупности признаков таза, сивапитеки были неторопливыми четвероногими приматами, предпочитавшими осторожно и даже вдумчиво ходить по ветвям, как более-менее горизонтальным, так и по вертикальным и расположенным наискосок – в любых направлениях, способными далеко отводить конечности в сторону и даже подвешиваться на трех или четырех лапках, главное – без экстремальных прыжков и легкомысленных подвешиваний и раскачиваний на руках. Впрочем, строение рук говорит все же о некоторых способностях к подвешиванию на ветках; очевидно, разные части скелета эволюционировали с разной скоростью. Таз сивапитека был ориентирован вдоль позвоночника, как у мартышкообразных. У современных человекообразных крылья подвздошной кости все же несколько расходятся в стороны; человек же являет крайний вариант в этом ряду. “Поясничный индекс” – соотношение ширины поясницы к ее передне-заднему диаметру – у человекообразных обезьян больше 120, то есть “талия” очень широкая. У широконосых обезьян Южной Америки это же соотношение примерно равно 100, то есть они круглые в сечении. Мартышкообразные имеют индекс меньше сотни, как и сивапитек, у которого указатель равен 90–100. Таз сивапитека очень массивен. Учитывая не слишком большие размеры тела, такое усиление говорит о значительных нагрузках, передающихся от опоры, и – в совокупности с другими параметрами (например, усилением подвздошной бугристости) – о четвероногом передвижении. Ширина седалищного бугра у приматов здорово коррелирует с наличием или отсутствием седалищных мозолей. Сивапитек, что приятно, попадает все же в группу без мозолей, то есть ближайших человеческих родственников. Вертлужная впадина сивапитека очень глубокая, что означает усиление тазобедренного сустава, чем сивапитек напоминает мартышковых. Однако по площади полулунной поверхности (суставной поверхности вертлужной впадины) он ближе к паукообразным широконосым и крупным человекообразным обезьянам. От другого вида – Sivapithecus sivalensis – известна бедренная кость, ее головка круглая, почти полностью погруженная в вертлужную впадину. Сочетание получается необычное: с одной стороны, сустав очень прочный, с другой – весьма подвижный, способный к вращательным движениям. Обычно это вещи не то чтобы взаимоисключающие, но, скажем осторожно, плохо сочетающиеся. Вероятно, это связано с четвероногим хождением по ветвям в сочетании с отсутствием хвоста. Хорошо мартышкам бегать по ветвям – они балансируют длинным хвостом. А попробуйте удержаться на суку, будучи довольно крупным зверем и без никакого уравновешивателя. Придется активнее двигать поясницей, а это дает повышенные нагрузки на суставы, что и вызывает тот странный комплекс, который мы видим у сивапитека. Кстати, можно вспомнить, что и плечевые кости сивапитеков больше схожи с мартышковыми, а не орангутаньими. То же можно сказать и о других известных посткраниальных костях сивапитеков. Кстати, по всем основным параметрам новообретенный таз мало отличается от таза проконсула Proconsul nyanzae. По многим частным параметрам и общему комплексу проконсул оказывается закономерно более мартышкообразным, чем сивапитек. Впрочем, у сивапитека больше черт вообще широконосых обезьян. Сивапитек отличался от проконсула одновременно большей подвижностью суставов ноги и большей же их прочностью. Но челюсти с зубами никто не отменял. А по ним сивапитеки – ближайшие родственники орангутанов. Исследователи честно признаются, что пока не знают, как объяснить такое расхождение (тут самое место появиться креационистам и радостно закричать: “АГА!!!” – но мы не дадим им этого шанса). Есть две гипотезы. Согласно первой, сходство сивапитеков и орангутанов по зубам является конвергентным, случайным, возникшим в силу близкой диеты. Конвергенция – обычнейшее явление в живом мире. Среди приматов тому тоже немало примеров. Можно, скажем, вспомнить челюсти колобусов и ореопитеков или плезиадаписов и руконожек. Ясно, это не отменяет факта, что сивапитеки – человекообразные приматы, но они могут представлять особую тупиковую линию развития. Второй вариант: сивапитеки действительно родственны орангутанам, но отличались способом передвижения. В строении конечностей конвергенция распространена не реже, если не чаще, чем в зубах. Скажем, кисти паукообразных, колобусов и гиббонов близки по целому ряду показателей; если задача – зацепиться за ветку и быстро ее отпустить, то решение будет одинаковым, тем более что исходник-то общий, все же так или иначе родственники. Теоретически эволюция конечностей может совершаться очень быстро, так что не исключено, что вплоть до 10 млн лет назад или даже дольше способ передвижения человекообразных был совсем не таким, как сейчас. В этом случае нынешнее состояние орангутанов, горилл и шимпанзе – столь же новомодное эволюционное изобретение, как и прямохождение человека. Интуитивно антропологи часто склонны отдавать первенство важности черепу, но нет ли в этом “культа черепа”? Поэтому исследователи таза сивапитека корректно не дают преимущества ни одной из двух версий. Будет больше костей – будет больше знаний.Ближайший и синхронный родственник гималайских сивапитеков – анкарапитек Ankarapithecus meteai – найден в Центральной Турции. От него сохранилась часть лица, в целом аналогичная сивапитечьей и орангутаньей, хотя не такая плоская. Нижняя челюсть тоже похожа на таковую сивапитеков – высокая и очень массивная.
Гигантопитеки Giganthopithecinae были поздними потомками азиатских сивапитеков. Возможное достающее звено между ними символизируют два моляра из Сивалика в Пакистане с древностью 9–11,6 млн лет назад, описанные как Chinjipithecus atavus, но выглядящие как уменьшенные копии зубов гигантопитека (Koenigswald, 1981).
Надежно выделяются два вида гигантопитеков: более древний и мелкий североиндостанский Gigantopithecus giganteus (он же G. bilaspurensis и Indopithecus giganteus; 10,1–6 млн лет назад) и молодой крупный южнокитайско-вьетнамско-яванский G. blacki (известный также как Giganthropus; 1,96–0,38 млн лет назад). Гигантопитеки – феноменальные животные – известны из большого числа местонахождений и в огромном интервале времени. Однако, как уже упоминалось, от них сохранились сотни зубов и ни одного черепа, лишь пять нижних челюстей позволяют хоть как-то представить внешний вид этих колоссальных зверей.
Обычно гигантопитеков воспроизводят как неких кинг-конгов немереного роста. В действительности аллометрические закономерности могли выразиться в быстрейшем росте челюстей сравнительно с габаритами тела, так что в реальности гигантопитеки, вероятно, были всего на пятую часть или четверть длиннее, но в полтора-два раза тяжелее горилл (Johnson, 1979).
Нижние челюсти гигантопитеков поражают масштабами – в полтора раза больше, чем у гориллы, у которой морда вообще-то тоже не кукольная. Зубная система уникальна для приматов: моляры, премоляры и даже клыки схожей формы, огромных размеров, с бугристой и складчатой эмалью, чуть ли не как на зубах копытных травоядных. Особенное же сходство моляры гигантопитеков имеют с зубами панд – удивительная конвергенция приматов и медведеенотов. Нижние резцы этих странных обезьян относительно уменьшены, а клыки толстые, но короткие. Судя по всему, гигантопитеки были огромными фрукто– и листоедами, практически гарантированно наземными – под огромным весом деревья просто ломались бы.
Кстати, о натюрмортах… Бамбук превосходен тем, что его мало не бывает, а растет он очень быстро, это сорняк, который захочешь – не изведешь. Но он же имеет тот огромный минус, что после цветения, которое захватывает сразу все бескрайние заросли одновременно, эта деревянистая трава сохнет и гибнет. Цветение бамбука случается едва ли не раз в сто лет, но это критическое время, когда все зависимые от него животные попадают под лезвие естественного отбора. Трагична не только гибель от голода, но и резкое сокращение генетического разнообразия; возникает так называемое “бутылочное горлышко” – выживают единицы, и в следующее поколение переходит очень малая часть вариантов генов. А суженная изменчивость чревата уязвимостью при последующих вызовах природы. Когда же “бутылочные горлышки” повторяются регулярно (а в случае с бамбукоедами это практически неизбежное проклятие), то все представители вида становятся фактически клонами. Любая недобрая мутация или существенное изменение окружающей среды – колебание климата, эпидемия, новый хищник – запросто может сгубить всю популяцию в одно мгновение. Если гигантопитеки действительно были специализированными пожирателями бамбука, остается удивляться, как они вообще протянули столько времени. Цветение бамбука приводит к бутылочному горлышку – такой вот смертельный эволюционный натюрморт мог свести гигантопитеков в могилу… Впрочем, новейшие исследования показывают, что гигантопитеки не были слишком специализированы и питались самой разнообразной лесной растительностью. Их исчезновение было вызвано, видимо, банальным сокращением тропических лесов во время похолоданий.Дриопитецины Dryopithecinae: Anoiapithecus, Dryopithecus и Lufengpithecus – своеобразные приматы, жившие от 12,3 до 8,5 млн лет назад в Европе и от 11 до 1,9 млн лет назад или даже позже в Китае.
Специфический и самый древний представитель – анойяпитек Anoiapithecus brevirostris – известен из отложений в Каталонии с возрастом 12,3–11,9 млн лет. Название – “короткомордый” – лучше всего характеризует его главную особенность.
Наиболее известны и лучше всех изучены собственно дриопитеки Dryopithecus. Их многочисленные останки описывались из самых разных европейских стран с середины XIX века. Попервоначалу и сгоряча, за неимением более подходящих кандидатов, дриопитеки были зачислены в предки человека; эта версия до сих пор тлеет в школьных учебниках, хотя уже сто лет назад была отвергнута в науке. Сейчас ясно, что дриопитеки были в некотором роде аналогом европейских орангутанов.
Уголок занудства. За полтора столетия было придумано много альтернативных названий для дриопитеков, но сейчас большинство исследователей выделяют всего от трех до пяти видов. D. fontani – самый древний вид, обитавший во Франции, Австрии и, видимо, Северной Испании 11–12 млн лет назад; D. crusafonti – испанский дриопитек (возможно, синоним D. laietanus), 10,5 млн лет назад; D. brancoi – его многочисленные останки найдены в Венгрии, а один зуб – в Германии, 9,7 млн лет назад; D. laietanus – самый поздний испанский вид, 9,6–9,7 млн лет назад. Иногда испанские D. crusafonti и D. laietanus выделяются в особый род Hispanopithecus. К нему может присоединяться D. brancoi, но он же часто определяется как Rudapithecus hungaricus, так как голотипом (образцом при первоописании) для D. brancoi послужил третий моляр из Германии, который, строго говоря, мог принадлежать кому угодно, а большинство находок Rudapithecus сделано в Венгрии. Венгерские находки стали также основой для описания видов Ataxopithecus serus и Bodvapithecus altipalatus, никем ныне не признающихся за самостоятельные. В Грузии найден кусок верхней челюсти с двумя зубами, названный Udabnopithecus garedziensis, но с наибольшей вероятностью принадлежащий все к тому же виду D. brancoi. Кроме того, в Китае раскопана нижняя челюсть с возрастом 6–8 млн лет назад, получившая название D. wuduensis; она вполне похожа на челюсти дриопитеков, сомнение вызывает в основном географическое положение – больно уж далеко от Европы.Дриопитеки были животными размером несколько меньше современных карликовых шимпанзе – 15–45 кг, в целом похожими на сивапитеков и орангутанов: с резко покатым лбом и умеренным надбровьем, округлыми глазницами, весьма широким носовым отверстием, не слишком вытянутой мордой с высоким альвеолярным отростком и скошенными скулами (чем заметно отличаются от сивапитеков и анкаропитека), очень мощной нижней челюстью, большими клыками, узкими и длинными центральными верхними резцами. Наглядным отличием от сивапитеков является тонкая эмаль моляров, сходством – отсутствие цингулюма.
Скелет дриопитеков известен достаточно хорошо, особенно благодаря находкам в Рудабанье в Венгрии и Кан-Йобатерес в Испании. Тело их было приспособлено как к четвероногому хождению по ветвям, так и – даже в большей степени – к вертикальному лазанию и подвешиванию на ветвях; такого сочетания типов передвижения нет среди современных человекообразных. Достижением дриопитеков стало удлинение рук – наконец-то эта специфическая черта современных человекообразных впервые проявилась у явных ископаемых родственников. У более древних проконсулид руки были короткие; ореопитеки оказались еще более длиннорукие, но они жили в среднем чуть позже дриопитеков. Пальцы на руках дриопитеков были тоже длинные и сильно изогнутые, явно приспособленные для цепляния за ветви. В целом строение рук больше всего похоже на вариант орангутанов, что, в общем-то, закономерно. Вместе с тем позвоночник больше похож на вариант широконосых и гиббонов, а большая берцовая – макак и гиббонов, чем современных крупных человекообразных обезьян.
Половой диморфизм у дриопитеков был достаточно сильным, что, впрочем, типично почти для всех мало-мальски крупных обезьян.
Кстати, о Рудабанье… В Венгрии, в замечательном местонахождении Рудабанья, обнаружены останки двух видов приматов – плиопитецид Anapithecus hernyaki и дриопитеков Dryopithecus brancoi. Замечательно, что они были схожих размеров и образа жизни. Возникает закономерный вопрос: как же они решали проблему конкуренции? Исследование тонкостей строения моляров и микростертости эмали показало, что, хотя и анапитеки, и дриопитеки ели в основном сочные фрукты, первые разбавляли их листьями, а вторые – твердыми плодами или орехами (Deane et al., 2013). На основании половозрастного распределения останков в Рудабанье было сделано предположение, что дриопитеки D. brancoi охотились за детенышами анапитеков A. hernyaki: среди первых встречены почти только взрослые особи, а среди последних много детенышей (Kordos et Begun, 2001). Однако более тщательные исследования показали, что, во-первых, разница частот не столь уж очевидна, а самое главное – останки двух видов залегают в несколько разных отложениях, так что они, видимо, предпочитали различные условия жизни (Armour-Chelu et al., 2005). Так что картина охоты “почти-шимпанзе” за “почти-гиббоном”, видимо, останется не воплощенной в красках…Позднейшие и географически обособленные дриопитецины люфенгпитеки Lufengpithecus найдены в Юго-Западном Китае. Как обычно бывает, исследователи разродились фонтаном имен: L. keiyuanensis, 8,3–10,5 млн лет назад (он же S. xiaolongtanensis, S. yunnanensis и Dianopithecus progressus, не говоря о комбинациях с родовыми названиями Laccopithecus, Dryopithecus, Sivapithecus и Ramapithecus), L. hudienensis, 7,1–8,2 млн лет назад (он с большой вероятностью может быть синонимом L. keiyuanensis и точно синоним Lufengpithecus yuanmouensis, Sinopithecus xiaoheiensis, Homo erectus zhupengensis или H. habilis zhupengensis, а также H. orientalis – просто праздник какой-то!), и L. lufengensis, 6,2–6,9 млн лет назад (который тоже фигурирует в литературе как минимум под 13 названиями!).
Люфенгпитеки известны по четырем черепам, распределенным по-даосски гармонично: два детских и два взрослых, из коих один – самца и один – самки. Правда, все эти черепа не слишком гармонично расплющены в лепешки, но и в этом можно найти свое дао. Реконструированные черепа в чем-то схожи с дриопитеками – верхние центральные резцы узкие и длинные, а в чем-то отличны – глазницы прямоугольные, верхний край носового отверстия расположен выше нижнего края глазницы, клыки у самцов тонкие и очень длинные, эмаль зубов толстая.
Три сказа о люфенгпитеках.
Сказ первый: о том, как мудрецы взглянули на лик Люфенгпитека и как Люфенгпитек Китай и Европу сроднил. Хорошей сказке полагается начинаться примерно так: давным-давно, в незапамятные времена (1988 г.), в далеком-предалеком Южном Китае, в цветущей долине Юаньмоу, один трудолюбивый китаец рубил бамбук / копал канаву / искал козу, да и нашел череп. Удивился китаец премного и отнес череп Великим Мудрецам, жившим в Университете. А был то череп детеныша обезьянки. Он был маленький, на левый глаз кривенький, но все ж красивый. И за это назвали его YV0999, что в переводе значит Lufengpithecus hudienensis. Все любовались черепом, и многие мудрецы писали про него ученые статьи. Однако ж нелегко сложилась судьба YV0999: лишь одна черно-белая зернистая фотография его гуляла по бескрайним просторам интернета, и несмотря на то, что часто поминали его, существовал он в полном одиночестве. Никто не хотел сравнивать его с детенышами других обезьян, и полноценного анализа за последующие 24 года (конечно, эпичнее было бы тридцать лет и три года, но, видать, мудрецы поторопились) ни один мудрец так и не сделал. Но всякому сроку приходит свой конец. Два мудреца, жившие по разные стороны Великого Океана, – Джей Келли из пыльной Аризоны и Фенг Гао из дождливой Юньнани – удивительной силой интернета соединили свои невероятные усилия и сняли проклятье одиночества с YV0999 (Kelley et Gao, 2012). Навострили они волшебные Циркули Скользящие, пошли в хранилища заветные и разом измерили 10 черепов детенышей шимпанзе, 9 – горилл и 11 – орангутанов (лучше б, конечно, сорок сороков, но столько не нашлось, а как по сусекам поскребли, по амбарам помели – вот и набралось 30 черепов, это вам не две горсти все ж!) ажно по 17 признакам (лучше б, конечно, по тьме тьмущей и чтоб без счета, но, как говорилось, череп кривенький был, махонький). Составили они потом Матрицу Многостолбовую Малострочную, расчехлили Великую Машину Счетную, вложили в нее циферки полученные, да такой завели в ней Анализ Кластерный да Дискриминантный, что аж стон по земле пошел! И выдала им Машина картинку дивную да цветную притом. Глянули на нее Джей и Фенг и аж заколдобились. Да и было отчего! Ибо выходило из той картинки цветной две вещи: одна явная, а другая – тайная. Явная была такова, что YV0999 вовсе не схож с рыжим зверем-орангутаном индонезийским, что казалось очевидным мудрецам древности, кои в былые времена говаривали (а то и пописывали): “Ай до чего ж похож наш люфенгушка на предка орангутанушки! – вылитые дед да внучок!”, да длинные седые бороды при том поглаживали. А зато выходило из той картинки кластерной, что схож YV0999 с обезьяном-шимпанзе африканским. Зело чудно показалось это Джей и Фенгу, ибо обезьян-шимпанзе живет в далекой Африке, а до Царства Орангутанов от Юаньмоу – рукой подать. Впрочем, у картинки и оборотная сторона была, потаенная, – в средней части ее смешались в кучу (хочется ляпнуть “кони, люди”, но это совсем из другой сказки, про удивительную Вента-Мицену Гишпанскую) гориллы, шимпанзе и орангутаны. Так-то часто бывает, что самое дивное на виду лежит, но глаз мимо ходит да дивноты той не замечает. А сталось то оттого, что Алгоритм все выбранный решает в Анализе Кластерном, а всех тех Алгоритмов – тьма тьмущая да еще один с привесочком. Не только измерили Джей и Фенг черепа, но и описали таинственные дискретные признаки, тайное генетическое значение коих никому доселе неведомо, но всегда всех интригует безмерно. И вышла у них табличка предивная, ибо в ней-то почти все признаки, окромя двух с половиною, сошлись у YV0999 и зверя-орангутана, а не сошлись с обезьянами африканскими, что не в лад пошло с картинкою кластерной. Но не остановились на том Джей и Фенг, провели они еще и фаун сравнение. И обнаружили они, что фауны, в коих находили доселе люфенгпитеков, вовсе не схожи по составу своему с фаунами, в коих сивапитеки да хоратпитеки обнаружены. Хоть и мало о чем говорит сие, но как бы намек тут некий мудрецам приоткрылся. И задумались тогда крепко Джей и Фенг: кому ж родня тогда YV0999? И открылось им, что близок он к стволовой линии гоминид, кои, окромя горилл, и шимпанзей, и человеков в себя включают сродственно. Все ж никак не может стоять Поднебесная без того, чтобы и в ней стволовой Великий Предок не нашелся. А чтоб явнее та истина всем казалася, сравнили Джей и Фенг YV0999 с Rudapithecus из страшной, дикой и вечно холодной Восточной Европы (хоть и найден Rudapithecus в Европе Центральной, однако ж глобусы в Аризоне и Юньнани, видимо, малость перекошенные, али долго на боку лежали-сплющились, али карту еще Клавдий Птолемей рисовал – то нам неведомо). И, конечно, нашли они сходства необычайные, удивления достойные, в зубах заключающиеся. Впрочем, сравнение то было предварительное и целью имело интригу вызвать и зуд мозговой у приматологов. Смелы были Джей и Фенг: задумали они поразить прочих мудрецов смелою догадкою, что шли Люфенгпитеки до Китая не по берегу морскому, как примитивные косматые Pongo делали, а по пути Северному, через горы высокие Тибетские, через степи широкие Ордосские, через пески зыбучие Монгольские да до самых до лесов дремучих Южнокитайских. Долог и труден был путь Великого Предка, да на то он и Великий, чтоб все препоны преодолеть да окольною дорогою диких понгов обогнать. И неважно показалось Джей и Фенгу, что на Северном Пути о гоминоидах и слыхом не слыхивали, и нюхом не нюхивали: на то она и Догадка Ученая, чтоб затем в находках воплотиться и всех своею глубиною и прозорливостью поразить. А после сели Джей и Фенг за свои компьютеры многоклавишные да разноязыкие, да и написали статью о четырех страничках, да и опубликовали ее врагам на зависть, а нам на удивление. Тут и сказке конец, а кто прочел, тот молодец. Сказ второй: о том, как лик Люфенгпитека взглянул на мудрецов и как Люфенгпитек Китай обособил. Велика страна Китай, бесчисленны ее жители, беспредельны рисовые поля, и недра ее бездонны. Редкий шахтер потревожит своей мотыгой лигниты Жоатонга. Миллионы лет лежат под бамбуковой сенью нетронутые богатства – бивни слонов-стегодонов, зубы зайцев-атилепусов, черепа обезьян-люфенгпитеков. Но даже в Поднебесной время неумолимо течет. Вот уж изобретены порох и компас, построена и уже развалилась Великая Стена, основана Вечная Империя и сметена Пламенной Революцией. Доходит черед и до древних костей. Но тяжек труд палеонтолога: прочны камни, трухлявы кости, жарко печет солнце Юньнани, катится пот по спине землекопа. Но трудолюбие китайцев не зря вошло в поговорку. И вот из земли Шуйтангба впервые за 6 млн лет (6,0–6,5) появляется невиданное лицо. Плоско оно, круглы его глазницы, широки его скулы, и радует это китайский взгляд. Счастливы И Супин, Ден Ченлун и Ю Юшан. Скорее чистят они треснувший лоб и крохотную челюсть, с удивлением стряхивают вековую пыль с молочных зубов. Кто перед ними? Неужели и это – предок китайцев? Лунгупо и Лунгудун, Нанкин и Чжоукоудянь, Дали и Цзиньнюшань, Мапа и Жижендун, Малудун и Лунлин – не счесть кандидатов на эту почетную должность. И вот уже созвана международная команда исследователей, трещат клавиши, гудят томографы, горят процессоры: кипит работа. Шесть-семь миллионов лет – важное время. В те времена в Африке ранние австралопитеки, робко озираясь, выходили из джунглей на простор саванн, в Европе доживали свой век последние дриопитеки, на средиземноморских островах гибли в зубах злых кошек беспечные ореопитеки, в Азии могучие гигантопитеки соревновались с пандами в пожирании бамбука, а по ветвям будущей Юньнани скакали неведомые обезьяны. Много придумано названий этим обезьянам, да трудно в них разобраться. Самые древние человекообразные Юньнани найдены около Кайюани и названы Lufengpithecus keiyuanensis (8,3–10,5 млн лет назад), более поздних из Юаньмоу прозвали Lufengpithecus hudienensis (7,1–8,2 млн лет назад), а самых последних из Шихуйба в Люфенге – Lufengpithecus lufengensis (6,2–6,9 млн лет назад). Но любят ученые люди латинский язык, а потому обогатились списки такими сказочными словосочетаниями, как Homo erectus wushanensis и Homo erectus zhupengensis, Sinopithecus xiaolongtanensis и Sinopithecus xiaoheiensis, Sivapithecus yunnanensis и Dianopithecus progressus, а также многими иными, дивными в своем благозвучии. А все потому, что обычно в руки исследователей попадают лишь зубов обломки да челюстей куски, и лишь мудрейший может разведать их истинную суть, да и то с трудом и не сразу. Бывали, конечно, и лучшие дни, найдены были и черепа люфенгпитеков, но не на радость, ибо так были сплющены и раздавлены толщами земляными, что даже китайские мастера доселе расправить лишь один смогли. Был, впрочем, и светлый луч во тьме прошедших эпох: милое лицо детеныша малого найдено было в незапамятном 1988 году, а спустя всего 24 года, в году 2012-м, описано как необычайно особенное, для всех гоминоидов изначальное. И вот ныне второй луч осветил тайны минувшего: второе лицо, тоже дитяти несмышленого и столь же милое. Антропологи китайские соединили усилия свои с антропологами американскими и описали череп сей (Ji et al., 2013). И ведь что дивно: нет в мире находок черепов детенышей человекообразных, а в Юньнани два уж таких. Новоявленный детеныш был отнесен к виду Lufengpithecus lufengensis. Хоть и мал тот детеныш, да пришлось его сравнивать с другими находками, ранее сделанными: с черепом детским первым и реконструированным взрослым. Да с обезьянами иными – орангутанами бородатыми. И вроде как похож люфенгпитек на орангутана, да вроде и не похож. Из чего вывод сделан был закономерный об особливой эволюции эндемичной в Южном Китае обезьян человекообразных, не имеющей ничего общего с путями орангов ли, горилл ли или шимпанзе каких. Ибо в Китае все вообще особенное и не может там быть банальностей заурядных и обычностей обыденных. Велика страна Китай, и недра ее бездонны. Много еще хранят они черепов, зубов и отпечатков. И многое еще узнаем мы о прошлом. А пока шелестит бамбук под дождем, панда листья жует, да рис колосится… Сказ третий: о том, как безликий Люфенгпитек запутал мудрецов, о первом китайце и последнем люфенгпитеке. В далекие-предалекие времена (1985–1988 гг.) в туманных горах китайской Сычуани, покрытых бамбуковыми лесами и славных плюшевыми пандами, отважные китайские палеонтологи копали пещеру Лунгупо. Глубок был раскоп, многочисленны находки. Чего только не нашли доблестные ловцы знаний: и огромные мослы китайских мастодонтов, и крошечные китайских хомяков, и истлевшие мощи макак с проциноцефалами, и складчатые зубы гигантопитеков с лошадями. Все глубже рыли упорные искатели, и все больше чудес им открывалось. На пятом уровне наградой им был булыжник со сколом, на седьмом они наткнулись на верхний резец, а на восьмом ждала их сенсация – еще один обработанный булыжник да часть нижней челюсти с двумя зубами! Тут-то и разыгралась китайская антропология, да вместе с археологией. Ведь слои те были не простые, а очень древние, аж 1,96 млн лет датированные. Не было доселе видано таких древних зубов в Китае, да и во всей Азии. То есть зубов-то в Китае хватает, даже весьма славна Поднебесная драконьими зубами, которые исстари лекари перетирали на лекарства (страшно подумать, сколько уникальных окаменелостей сгинуло в их ступках!), однако же таких, чтобы как бы человеческими были, да двумя миллионами бы датировались, – это невиданно было и неслыханно. Потому-то и возликовали мудрецы китайские и назвали те находки Homo erectus wushanensis, а для непонятливых пояснили, что этот древнейший китаец был даже больше похож на H. habilis, только Конфуций учил скромными быть, отчего и назвали эректусом (Wanpo et al., 1995). И много после полицентристы торжествующе поминали его как первого человека в Китае, да и в Азии, да уж и в мире, чего уж мелочиться-то. Но не только в Китае мудрецы мудрят. Нашлись смутьяны и среди рыжих мохнатых варваров запада лаовай, кои все с ног на голову поставили: якобы коли H. erectus возник в Азии так уж слишком рано, то не мог он в сложении современного человека участвовать. Появились и такие знатоки, даобицзы “большеносые”, которые усомнились в том, что челюсть человечья (Schwartz et Tattersall, 1996). А потом и вовсе распоясались янгуйцы, “заморские черти”: взяли да написали статью, где по полочкам разложили, что резец, конечно, человечий, но даже слишком уж современный и запросто мог завалиться из вышележащего слоя, камни вообще ничем не похожи на орудия, а челюстью Лунгупо жевал не человек, а обезьяна вроде люфенгпитека (Etler et al., 2001). Сказка о двухмиллионолетнем китайце растворилась в туманах Сычуани, зато появилась новая интрига: выходит, реликтовые дриопитецины дожили до гораздо более поздних времен, чем доселе считалось. А дао-то все едино – что первый человек, что последний люфенгпитек, всяко Поднебесная в центре мира стоит, а находки в ней уникальнее, чем где-либо за ее пределами.Понгины Ponginae (они же Simiinae) в современности представлены всего одним видом – орангутан Pongo pygmaeus.
Происхождение орангутанов изучено неожиданно хорошо. В качестве отдаленных предков предполагались сивапитеки и люфенгпитеки, но в последнее время были найдены, видимо, совсем прямые пращуры. В Индокитае обнаружены зубы и челюсти трех видов хоратпитеков: Khoratpithecus chiangmuanensis жил в Таиланде 10–13,5 млн лет назад, Kh. ayeyarwadyensis – в Бирме 8,8–10,4 млн лет назад, а Kh. piriyai – опять в Таиланде 7–9 млн лет назад. Ясно, что ареал был наверняка шире, но, как обычно, что и где найдено, то и найдено.
Хоратпитеки отличаются от орангутанов ровно настолько, насколько должны бы отличаться далекие предки. Интересно, что флора в местонахождении древнейшего хоратпитека обнаруживает явные африканские корни; теоретически приматы могли в это время перемещаться от Африки до Индокитая. К сожалению, у нас слишком недостаточно останков африканских гоминоидов этого времени.
Собственно род Pongo достаточно хорошо представлен в палеонтологической летописи. Найдено множество зубов и даже два скелета – целый взрослого и фрагментарный детеныша – во вьетнамской провинции Хоа-Бин (Bacon et Long, 2001). По останкам из разных мест возрастом от среднего плейстоцена до голоцена описаны как минимум шесть подвидов ископаемых орангутанов, в том числе из Вьетнама, Южного Китая, Бирмы и с Явы. Некоторые китайские находки были определены как самостоятельный вид P. fossilis, а вьетнамские – P. hooijeri. Большинство этих вариантов морфологически слабо отличаются от нынешних “лесных людей”, но были более крупными. Думается, уменьшение размеров от плейстоцена до современности явилось прямым следствием преследования людьми и вытеснения орангутанов в наихудшие закоулки джунглей. На Яве орангутаны дожили до вполне исторических времен, вероятно вплоть до XVII века.
Ныне сохранился лишь один вид. Иногда его, правда, делят на калимантанский P. pygmaeus и суматранский P. abelii виды, но разница между ними весьма несущественна: суматранский покрупнее, поярче, чаще ест фрукты, насекомых и прочих животных, больше времени проводит на деревьях и использует орудия труда. В литературе часто упоминается, что два вида просуществовали более чем 1,5 млн лет в изоляции друг от друга, но в реальности Ява с Калимантаном соединялись и намного позже, а расшифровка полного генома позволила оценить время дивергенции в 400 тыс. лет (Locke et al., 2011; впрочем, позже оно было рассчитано опять в 1 млн лет: Prado-Martinez et al., 2013). В некоторой степени разделение орангутанов на два вида обусловлено нуждами их сохранения: чем уникальнее популяция, тем легче убедить людей ее беречь. Любопытно – генетики утверждают, что генетическое разнообразие суматранских орангутанов больше, чем калимантанских, тогда как морфологи среди последних выделяют три подвида, а среди суматранских – ни одного.
Современные орангутаны – рыжие косматые длиннорукие обезьяны. Лицо орангутанов легко узнаваемо уплощенностью и даже вдавленностью, близко посаженными глазами, очень сильно выступающими челюстями. У взрослых самцов имеются незабываемые пупырчатые кожистые выросты вокруг лица и на груди, длинные усы, борода и выражение а-ля “восточный мудрец”. Уши такие маленькие, что их видно только у детенышей и иногда самок, самцы же кажутся совсем безухими. Орангутаны предпочитают жить на деревьях, но из-за большого веса вынуждены передвигаться очень неторопливо и осторожно. Длинные руки приспособлены к брахиации, но не быстрой, как у гиббонов, а медленной. Крупные самцы, вес которых в среднем 45–90 кг, но может достигать 190 кг, часто ходят по земле, опираясь при этом на согнутые фаланги пальцев, однако не совсем так, как это делают гориллы и шимпанзе. Самки заметно меньше – 40–45 кг, они почти все время проводят на деревьях с детенышами. Суматранские орангутаны реже спускаются на землю, так как там их ждут тигры; на Калимантане полосатые хищники тоже водились, но были выбиты людьми не то еще в плейстоцене, не то лет двести назад. Так или иначе, из крупных человекообразных орангутаны – самые древесные. Из-за этого их руки чрезвычайной длины, большой палец кисти крайне укорочен и почти нефункционален, зато пястные кости крайне вытянуты и изогнуты. Нога тоже изменена соответствующе: большой палец стопы почти полностью редуцирован – у 60 % орангутанов концевой фаланги и ногтя вообще нет, особенно в этом преуспевают самки, что наводит на мысль о сцепленном с полом наследовании признака (Tuttle et Rogers, 1966).
Орангутаны заслужили славу очень спокойных и мирных животных, но не так давно выяснилось, что на Суматре самки регулярно охотятся на медленных лори (Hardus et al., 2012), а на Калимантане детеныши и подростки иногда ловят сомиков в подсохших водоемах (Russon et al., 2014; кстати, какой подарок ученых сторонникам “гипотезы водной обезьяны”! Правда, те все равно не читают научных журналов…). Едят они и других животных, когда те подворачиваются под руку, но предпочитают все же дурианы – очень колючие, очень вонючие, но очень вкусные плоды. Орангутаны довольно часто используют орудия труда, хотя и самые простецкие – разного рода палки-ковырялки для добывания термитов, меда из пчелиных гнезд и очистки родственных дурианам плодов Neesia от шерстовидных волокон; широкими листьями они трогательно укрываются от дождя как зонтиками или используют их как прихватки, чтобы брать колючие ветки. Однако образ жизни орангутанов мало способствует развитию трудовых навыков, тут у них маловато перспектив.
Социальная структура современных орангутанов сильно нарушена, так как люди слишком много преследуют их и вытесняют в неудобные местности. Раньше, по-видимому, орангутаны были куда как более общительными существами, жизнь группами и обучение детенышей должны были существенно развивать их интеллект (Schaik, 2002). Однако в настоящее время на Калимантане они живут поодиночке – многому ли научишься в таких условиях? На Суматре их первоначальный образ жизни сохранился чуть лучше: самец контролирует большую территорию, которая включает участки нескольких самок с детенышами, хотя и тут пары образуются только на период размножения. Поэтому и здесь у деток возможности для развития не лучше калимантанских. Лишь в резерватах и зоопарках они могут проявить свои потенциальные дарования. Какая судьба ждет рыжих “лесных людей”?..
Кстати, о тайнах… Часть ископаемых человекообразных пока не находит себе места в классификации. Kogolepithecus morotoensis из Уганды, живший 17,5 млн лет назад, известен по четырем зубам, Helladopithecus semierectus из Греции (17 млн лет назад) – по обломку бедренной кости, Langsonia liquidness из Вьетнама (475 тыс. лет назад) – по пяти зубам из единственной пещеры Там-Хуен. В отложениях формации Нгорора в Туген-Хиллс в Кении (12,4–12,5 млн лет назад) обнаружены зубы как минимум одной крупной (схожей с проконсулом – но поздновато для этого рода!) и двух мелких человекообразных обезьян, а также “не мартышкообразного узконосого” примата. Обломок нижней челюсти из Нигера с датировкой 5–11 млн лет назад – единственная находка человекообразного примата из Западной Африки. Фрагмент более всего похож на челюсть шимпанзе, но обнаружен далеко за пределами современного ареала шимпанзе и горилл, зато сравнительно недалеко от чадского местонахождения сахелянтропа. Samburupithecus kiptalami из Кении (8,5–9,5 млн лет назад) имел размер современной гориллы; он образует хронологический мостик от хорошо изученных ранне– и среднемиоценовых гоминоидов к современным. Еще один – пока безымянный – вид крупных человекообразных известен по единственному премоляру из Накали в Кении с датировкой 9,8–9,88 млн лет назад; там же найдены останки еще двух видов “мелких не мартышкообразных узконосых”. Исчезновение тропических лесов в Восточной и Южной Африке лишило нас находок; предки шимпанзе и горилл, судя по всему, жили где-то в Центральной Африке, но там их останки пока не обнаружены.Человекообразные в черных тонах: африканские человекообразные – почти люди и люди.
Подсемейство Gorillinae (оно же Anthropopithecinae или Anthropithecinae) практически никем не признается за валидное в современной систематике. Отличия горилл и шимпанзе от людей в масштабе всех приматов слишком незначительны, да к тому же гориллы отделились от шимпанзино-человеческой линии заметно раньше разделения шимпанзе и людей, а потому обычно всех африканских человекообразных объединяют в гоминид Hominidae и гоминин Homininae. Такой подход совершенно логичен филогенетически и узаконен таксономически. Но: если объединять шимпанзе с человеком в одном подсемействе или даже роде, то как подчеркнуть специфику человеческой линии? Будь бы еще только один вид современного человека, можно было бы обойтись безо всякого подчеркивания. Так ведь ископаемых двуногих предков очень много, они достаточно разные и все отличаются от шимпанзе. Можно бы, конечно, обойтись трибами и подтрибами, но зачем мелочиться? Может антрополог раз в жизни спокойно предаться антропоцентризму? Это всяко проще, чем городить странные конструкции типа “крупные африканские нечеловеческие человекообразные обезьяны” и “крупные африканские человеческие человекообразные обезьяны” – в разделении гориллин и гоминин смысл тот же, но воплощение более простое.
Происхождение горилл и шимпанзе покрыто мраком неизвестности. Впрочем, в последние годы в нем появились первые робкие лучики света: из Эфиопии был описан хорорапитек Chororapithecus abyssinicus, обитавший тут в конце миоцена 8 млн лет назад (Suwa et al., 2007), а из Кении – накалипитек Nakalipithecus nakayamai, живший 9,8–9,88 млн лет назад (Kunimatsu et al., 2007).
Хорорапитек Chororapithecus abyssinicus известен из местонахождения Бетиха по девяти зубам размером с горилльи и очень на горилльи похожим. Отличия заключаются почти только в более низких бугорках моляров и толстой эмали. Посему он из всех известных ископаемых приматов больше всех похож на предка гориллы. Впрочем, распределение толщины эмали у хорорапитека довольно специфическое, так что совсем прямым предком он, вероятно, все же не был. Да и географически хорорапитек расположился не слишком удачно для того, чтобы быть пращуром горилл, – Эфиопия не Уганда и не Конго. Палеоэкологические реконструкции указывают на обитание хорорапитека в прибрежных зарослях вокруг рек и озер, не так далеко от открытых саванн – окончание миоцена и обезлесение Африки были не за горами.
Накалипитек Nakalipithecus nakayamai известен по обломку нижней челюсти с тремя зубами и еще одиннадцати изолированным зубам. Не столь богато, как хотелось бы, но, по крайней мере, теперь исследователи точно знают, где лежат сокровища, так что новые открытия нам гарантированы. Накалипитек имел размеры примерно как у самок орангутанов и горилл. Его клыки весьма короткие, хотя и массивные, похожие на заостренные премоляры, а эмаль моляров толстая. Зубы накалипитека здорово похожи на зубы Ouranopithecus macedoniensis, горилл и шимпанзе, так что из всех прочих обезьян он идеально подходит на роль последнего общего предка современных африканских человекообразных и человека. Вот оно – очередное “достающее звено”, Великий Предок, столь долго искомый. И пусть пока в наших руках лишь горсть зубов, зато нам известно, где искать и что искать.
Существование в Туген-Хиллс, Бетихе и Накали нескольких видов мелких и крупных человекообразных в интервале от 12,5 до 9,8 млн лет назад ставит крест на гипотезе вымирания африканских человекообразных в конце миоцена и реконкисте их из Европы. А ведь в некоторый момент такая концепция была довольно хорошо разработана: согласно ей, средне-позднемиоценовые пертурбации климата сгубили гоминоидов Африки, а прямыми предками современных горилл, шимпанзе и человека являются европейские уранопитеки, грекопитеки и пиеролапитеки, вторично вернувшиеся на исходную прародину.
Действительно, картина достаточно странна: Европа времени около 10 млн лет назад оказывается едва ли не богаче человекообразными, чем Африка. Впрочем, такая ситуация – в большей степени итог недостатка подходящих местонахождений в Африке, плохой сохранности окаменелостей и их недостаточной изученности.
Но европейские “африканские” гоминоиды сами по себе интересны. Древнейший из них – пиеролапитек Pierolapithecus catalaunicus – жил в Испании 11,9 млн лет назад. От него сохранился почти целый скелет с черепом, хотя и основательно погрызенный каким-то хищником.
Череп пиеролапитека своеобразен: с низким, широким и чрезвычайно сильно выступающим лицом, умеренным надбровьем, низкими широкими глазницами, широким межглазничным пространством и очень широким носом, почти квадратным глубоким небом, огромными узкими клыками, широкими верхними центральными резцами. В этом комплексе сочетаются как примитивные, так и продвинутые черты: в анфас пиеролапитек похож на гориллу, а вот в профиль – скорее на сааданиуса или афропитека. В целом он вполне подходит на роль предка современных африканских человекообразных, только вот география подводит – Северная Испания все же не граничит с Африкой. Теоретически приматы могли бы перебираться через Гибралтар, но в реальности это трудновато, скорее уж они мигрировали вдоль берегов Средиземного моря через Ближний Восток.
Строение тела пиеролапитека наконец-то похоже на современных крупных человекообразных: грудная клетка широкая и уплощенная спереди назад, поясница укорочена и расширена; исчез сустав между локтевой костью и запястьем; таз имеет промежуточное строение между мартышкообразными и проконсулами с одной стороны и современными человекообразными – с другой, что примерно соответствует варианту гиббонов; коленная чашечка низкая, широкая и толстая (отличается от узкой и тонкой широконосых, мартышкообразных, Proconsul, Nacholapithecus и гиббонов, но аналогична надколеннику современных крупных человекообразных и человека). Впрочем, еще не все признаки пришли в современное состояние. Судя по строению фаланг, пиеролапитек ходил на четвереньках с опорой на ладонь, а не согнутые фаланги. Очевидно, пиеролапитеки совершили переход от четвероногого бегания по ветвям к вертикальному лазанию по деревьям, хотя еще не были способны подвешиваться на руках, как современные человекообразные.
Уголок занудства. Ладоне– и костяшкохождение отражается на разных костях скелета, сильнее всего, очевидно, на пястных и фалангах кисти. На головках пястных костей и основаниях проксимальных фаланг суставные поверхности у ладонеходящих приматов ориентированы дорзально и сглажены для облегчения отгибания пальцев вверх, а у костяшкоходящих – на головках пястных тоже дорзально, но с ограничителем разгибания в виде поперечного костного гребня, а на проксимальных фалангах – проксимально, то есть с торца. У ладонеходящих на пальмарной стороне основания проксимальной фаланги имеются два мощных бугорка для укрепления крупных сесамоидов, ограничивающих канал для сухожилия длинного сгибателя, весьма напрягающегося при чрезмерном разгибании пальца, а у костяшкоходящих этих бугорков нет. Головки проксимальных фаланг у ладонеходящих вытянуты спереди назад, а у костяшкоходящих – дорзо-пальмарно, а сама фаланга из-за этого сильнее изогнута, чтобы следующая – медиальная – оказалась опорой, лежащей дорзальной поверхностью горизонтально на земле.
Рис. 40. Черепа Pierolapithecus catalaunicus (а), Ouranopithecus macedoniensis (б) и челюсть Nakalipithecus nakayamai (в).
Пиеролапитеки жили в теплых влажных лесах и питались преимущественно фруктами.
Любопытно, что пиеролапитеки обитали одновременно и в тех же местах, что и дриопитеки. Посему некоторые палеоприматологи не желают пускать их в тесный кружок африканской родни и прямо относят испанских “недогорилл” к Dryopithecus fontani или, более осторожно, к трибе Dryopithecini. Однако отличия пиеролапитеков от дриопитеков все же достаточно заметны, а прогрессивные черты и сходство с современными человекообразными несомненны.
На противоположном конце Европы и в Малой Азии жили родственные уранопитеки и грекопитеки. В Греции найдены череп и несколько нижних челюстей уранопитека Ouranopithecus macedoniensis (9,2–9,6 млн лет назад), а также одна описанная как Graecopithecus freybergi (6,6–8 или, менее вероятно, 9–9,5 млн лет назад). Трудно понять, представляют ли уранопитек и грекопитек один вид или два рода. Сложность в том, что грекопитек описан по плохо сохранившейся нижней челюсти с разрушенными зубами. Все же между ними есть некоторые отличия, тем более они с большой вероятностью жили в разное время.
Уранопитеки изучены гораздо лучше. Они были крупнее всех прочих европейских приматов – размером с самку гориллы, около 50–70 кг. Череп греческого уранопитека отличается от черепа прочих человекообразных очень низким расположением и массивностью скуловых костей, отчего лицо приобретает крайне тяжелый вид. Лицо несколько вдавлено. Верхняя челюсть умеренно выступает вперед, примерно как у дриопитеков и горилл – сильнее, чем у проконсулид и гиббонов, но слабее, нежели у орангутанов, шимпанзе и даже австралопитеков. Глазницы почти прямоугольные, межглазничное расстояние и носовое отверстие широкие, небо глубокое. Верхние резцы очень широкие, клыки толстые и не слишком длинные, моляры большие и имеют крайне толстую эмаль, что предполагает питание какой-то очень твердой пищей.
Не так давно был описан особый вид турецкого уранопитека Ouranopithecus turkae, жившего позже греческого, 7,4–8,7 млн лет назад. Турецкий отличается бóльшими размерами, менее выступающей челюстью и более короткими клыками.
Уранопитеки жили в более открытых местообитаниях, чем большинство человекообразных, так как в это время в Европе леса постепенно исчезали и сменялись саваннами. Некоторые исследователи считают, что уранопитеки могли быть предками австралопитеков, однако у тех и других есть свои специализации, не позволяющие им выстроиться в стройный ряд “отцы и дети”. Все же некоторый параллелизм, особенно с Australopithecus africanus, не может не радовать. Если бы не оледенения, окончательно сгубившие европейскую тропическую флору и фауну, как знать – возможно, человечество появилось бы из уранопитеков?..
Последний из обезьян. В наши дни Европа не может похвастаться разнообразием приматов. Один вид макак на одной скале в Гибралтаре, еще один двуногий безволосый (правда, он – повсюду) – вот, собственно, и всё. Обезьяны в зоопарках, конечно, не в счет. Но так было не всегда. Когда-то Европу населяли довольно многочисленные приматы. В эоцене и олигоцене тут резвились адаписовые и омомисовые полуобезьяны, в миоцене – плиопитеки, мезопитеки, ореопитеки, анойяпитеки, дриопитеки, уранопитеки, грекопитеки и пиеролапитеки, в плейстоцене – макаки и теропитеки. Но климат становился все холоднее, и обезьяны исчезали… Когда же Европа лишилась последних представителей человекообразных? В первом номере Journal of Human Evolution 2012 года международная группа исследователей опубликовала описание находки, которая может пролить свет на этот вопрос (Spassov et al., 2012). В Болгарии в карьере Азмака около Чирпана были найдены остатки ископаемой фауны, включающей позднемиоценовых представителей слонов, саблезубых тигров, газелей, примитивных носорогов, гиппарионов и других животных. Сочетание видов млекопитающих позволило оценить время отложения слоев в 7 млн лет. Среди костей обнаружен и один зуб – левый второй верхний премоляр – человекообразной обезьяны. Зуб целый, хотя и очень стертый. Морфологию его жевательной поверхности оценить практически невозможно, однако форма и размеры коронки оказались в наибольшей степени соответствующими Ouranopithecus macedoniensis, а малые размеры корней могут свидетельствовать о родстве с Graecopithecus freybergi. Эти два близких вида гоминоидов жили в Греции в позднем миоцене, около 8,7–9,6 млн лет назад. В то же время болгарский зуб отличается от грузинского удабнопитека и турецкого уранопитека, имеющих примерно те же датировки, что у греческих обезьян. Очевидно, виды гоминоидов закономерно распределялись географически: в Европе – на запад от Черного моря – жили одни обезьяны, а в Азии – на юг и восток – другие. Видимо, зуб из Болгарии принадлежал одной из последних человекообразных обезьян Европы. Примерно в то же время – чуть раньше или чуть позже – вымерли и ореопитеки в Италии. Их сгубило то же похолодание, что раздвинуло саванны в Африке и выгнало на их просторы предков австралопитеков. Европейские гоминоиды не смогли или не успели адаптироваться к новым условиям. Северное расположение не оставило им шансов на развитие. Человекообразные исчезли из Европы, и на долгих 6 млн лет она осталась вотчиной только мартышкообразных. Чуть более 1 млн лет назад человекообразные в лице человека взяли реванш, но это уже совсем другая история…Итак, после всех вымираний крупные африканские человекообразные представлены ныне двумя родами с тремя видами. Гориллы Gorilla gorilla населяют Западную и Центральную Африку (иногда горная горилла выделяется в особый вид Gorilla beringei, но это, как и в случае с орангутанами, аргументировано лишь генетически и обусловлено в немалой степени нуждами охраны и спасения горилл). Шимпанзе делятся на два вида: обыкновенные Pan troglodytes живут также в Западной и Центральной Африке севернее от Конго, а карликовые, или бонобо, Pan paniscus – южнее этой реки в Заире.
Гориллы – самые крупные современные обезьяны. Конечно, измерять приматов можно по-разному. Рост горилл не такой уж запредельный, как многим может показаться, – в среднем у самцов 1,65–1,75, а у самок так и вовсе 1,4–1,5 м – ниже большинства европейцев. Самый высокий горилл был ростом 1,94 м – всяко меньше большинства баскетболистов. Другое дело – вес. Тут гориллам действительно нет равных: в среднем самки весят 60–100 кг, а самцы – 140–200 кг, с рекордом в природе 266 кг, а в неволе так и вовсе до 388 кг! Благодаря огромнейшим мышцам и здоровенной морде гориллы человек рядом с гориллой выглядит маленьким.
Гориллы настолько могучи, что не имеют в природе врагов, кроме людей. Лишь изредка леопард может напасть на детеныша. Излишняя безопасность привела к уменьшению стимулов к эволюции и развитию интеллекта, хотя потенциально гориллы крайне умны, что наглядно демонстрируют в экспериментах.
Череп горилл легко узнаваем по огромным общим размерам и мощнейшему развитию рельефа – надбровного валика, сагиттального и затылочного гребней. Богатырские жевательные мышцы сходятся у них на макушке, так что, когда мы смотрим на здоровенную башку гориллы, мы на самом деле видим немало шерсти, большие мышцы, толстый череп и не так уж много мозгов (в отличие от человека, размер мозга которого не слишком замаскирован всем, что покрывает его). Впрочем, “не так уж много мозгов” гориллы – это только в сравнении с нами, шибко умными, а на самом деле все равно рекорд для приматов: 535 см³ в среднем у самцов, с индивидуальным рекордом 752 см³. У горилл могучая нижняя челюсть, иногда довольно сильно выступающая вперед, для обозначения чего даже предложен специальный термин “нижнечелюстной прогнатизм”, впрочем неупотребительный.
Огромный вес делает горилл почти полностью наземными животными. Однако вся их морфология вопиет, что спуск на землю произошел эволюционно совсем недавно; строго говоря, неизвестно когда, но достаточно уверенно можно предположить, что позже появления австралопитеков. По земле гориллы передвигаются, как и шимпанзе, на четвереньках с опорой на согнутые фаланги пальцев. Из-за этого для противостояния тяжести туши головки пястных костей и проксимальные фаланги кисти резко расширены, гороховидная кость огромная, сложно устроенная, укрепляющая запястье. Тыльные стороны средней и концевой фаланг пальцев кисти не только голые, но и имеют пупырчатую поверхность – почти папиллярные узоры.
Как и у орангутанов, половой диморфизм – различие самцов и самок – у горилл выражен очень резко: самцы почти вдвое крупнее. Старые доминантные самцы отличаются серебристым цветом спины, они пасут гарем из нескольких самок с детенышами, а также молодых самцов. Когда эти молодые самцы подрастают, они образуют свою группу, уводя самок у патриархов.
Шимпанзе – самые близкие наши родичи.
Шимпанзе в ископаемом виде представлены чрезвычайно скудно: найдены лишь три зуба в кенийской местности Туген-Хиллс с датировкой около 545 тыс. лет назад (McBrearty et Jablonski, 2005). Они ничем принципиально не отличаются от современных и ничем не могут помочь в решении вопроса о происхождении этого рода. Однако сопоставление данных генетики и палеонтологии позволяет оценить время расхождения шимпанзиной и человеческой линий в 7–11 млн лет, причем большинство ученых склоняется к наименьшей цифре.
Обыкновенные шимпанзе отличаются от карликовых шимпанзе бонобо размерами и поведением. Обыкновенные имеют рост около 1,4 м у самок и 1,5 м у самцов и вес 40 и 50 кг соответственно, хотя отборные особи могут достигать и 80 кг. Бонобо гораздо мельче и грацильнее: 1,2 м ростом и весом самок и самцов 33 и 43 кг, максимум – до 60 кг. Морда и клыки обыкновенных гораздо внушительнее, лицо обычно желтое, а уши безволосы и лопоухи, у бонобо же лицо более интеллигентное и черное, а уши сравнительно маленькие и пушистые. У обыкновенного шимпанзе объем мозга в среднем 394 см³, у бонобо – 349 см³ (вот она, магия чисел!).
Примечательно, что различия обыкновенных шимпанзе и бонобо по размерам челюстей и зубов, а также по уровню полового диморфизма вызваны не какой-то спецификой питания, а разницей в уровнях межсамцовой и внутригрупповой агрессии и возбудимости. Бонобо гораздо спокойнее, более уравновешенны и дружелюбны. Кстати, они довольно часто в природе ходят на двух ногах, причем иногда не для дела, а просто потому что им так нравится. Бонобо регулярно переносят в руках разнообразные предметы или детенышей.
Группы шимпанзе владеют определенными участками леса, однако состав самой группы не так стабилен, как у горилл. Отдельные особи – особенно самки – могут достаточно свободно переходить из стада в стадо. Внутри группы имеется иерархия, но она далеко не столь жесткая, как у павианов. Каждый индивид может завоевать авторитет сородичей не только силой и агрессией, но благодаря уму и сообразительности. Широко известен случай, когда самец шимпанзе, стоявший на низшей ступени социальной лестницы, добился места вожака, догадавшись напугать соплеменников громыханием пустых канистр из-под керосина, украденных у исследователей.
Кстати, о гнездах… Шимпанзе каждый вечер, укладываясь спать, делают себе гнездо, обычно на дереве. Это не слишком масштабное сооружение из заверченных веток, мало спасающее от чего-либо, но дающее ощущение комфорта и уюта. Однако показательно, что шимпанзе никогда не пользуются гнездами дважды. Кочевая жизнь приводит их каждый вечер на новое место, хотя перемещения и происходят в границах определенной территории. Думается, австралопитеки вели себя примерно так же. В этом смысле изобретение людьми дома, постоянного места жительства и уж подавно прописки с регистрацией – странная новация, вызванная ненормальной численностью. Пока было куда брести, а границы, таможни, визы и паспортный контроль не превратили планету в тюрьму строгого режима, гоминиды перемещались сколько хотели. Человек – прирожденный путешественник, страннические наклонности прошиты в его обезьяньей сути как минимум с палеоцена. Потому-то людям так нравится открывать что-то, даже если они знают, что это уже прекрасно известно другим. Скажем, в большом городе открывается новая станция метро – многие люди едут “открывать” ее и потом рассказывают об этом знакомым-родственникам так, как будто на станции до них не ступала нога человека и вообще они съездили на доселе неведомый континент. Нам интересно бывать в новых местах, хотя и про родную территорию мы, конечно, не забываем. Так в людях уживаются сбалансированные патриотизм-территориальность с первооткрывательством-бродяжничеством.Шимпанзе во многих деталях поведения похожи на человека. И чем дольше изучают их этологи, тем больше выявляется это сходство. Шимпанзе иногда кооперируются для охоты на мелких животных. Они используют палочки для выуживания термитов из ходов термитников. При этом в некоторых группах принято специально обкусывать такие палочки. Иногда термиты выкапываются с помощью палки, используемой как лопата, даже с упором ногой в торчащие вбок ветки. Другие шимпанзе раскалывают орехи камнями. Примечательно, что камни для этого специально никогда не обрабатываются, но подыскиваются определенной формы. Поскольку в тропическом лесу подходящие булыжники могут быть в дефиците, шимпанзе иногда хранят их и, возвращаясь на место после отсутствия, отыскивают старые орудия, а не находят новые. Третьи шимпанзе изготовляют из широких листьев “кружки” для воды или делают из жеваных листьев губки для собирания воды из пней. Недавно описано изготовление шимпанзе “копий”, заостренных с помощью зубов и используемых для охоты на галаго. Шимпанзе могут отлично жить и без орудий – многие и живут, но с ними жизнь облегчается и разнообразится. Существуют особые традиции использования орудий, свойственные отдельным популяциям обезьян. Традиции существуют и в области общения. Например, отличаются способы приветствия. Есть даже группы шимпанзе, в которых принято “рукопожатие” – касание рукой к руке. Пристальный взгляд и оскал у обезьян, как и у человека, означают угрозу, а ласковое прикосновение и поглаживание – дружелюбие. Они могут дружить и враждовать, любить и ненавидеть, обманывать и ругаться. Наконец, они смеются, у них есть юмор.
Интеллект шимпанзе, по мнению тех, кто с ними работает, приблизительно соответствует таковому трех-четырехлетнего ребенка. Впрочем, нельзя и переоценивать способности обезьян. Так, настоящей орудийной деятельности у них не существует: преобладает деструктивное поведение, а конструктивное находится лишь в зачаточном состоянии. Шимпанзе неспособны долго и целенаправленно обучаться, передача культурных навыков и закрепление нововведений происходит во многом случайно, часто полезные знания утрачиваются. Уровень кооперации весьма низок – шимпанзе не так часто делают что-то сообща, с единой целью.
Минутка фантазии. В 2004 г. новостные агентства и даже научные журналы всколыхнула новость о том, что на севере Конго, в лесу около города Били, исследователи наблюдали неких странных обезьян – двухметрового роста, с черными лицами и огромными сагиттальными гребнями, ходящих на двух ногах, живущих в болотистой местности, строящих гнезда на земле, как гориллы, но питающихся фруктами подобно шимпанзе, убегающих при приближении людей, оставляя фекалии в три раза больше шимпанзиных и огромные следы, превосходящие горилльи. Местные жители добавили к этому, что обезьяны бывают двух типов: тех, что лазают по деревьям, можно убивать отравленными стрелами, а вот тех, что побольше и живут на земле, отравленные стрелы не берут, зато сами эти чудища убивают даже львов. Моментально появились предположения, что это не то новый неведомый вид обезьян, не то гибриды шимпанзе и горилл. Появилось и красивое название: “обезьяны Бондо”. Какая сенсация! Однако специальные экспедиции, отправившиеся в лес Били, показали, что все не так уж чудесно. Никаких следов горилл тут не нашлось, зато встретились шимпанзе самого обычного подвида Pan troglodytes schweinfurthii, хотя действительно весьма крупные и регулярно устраивающие гнезда на земле. Открытие нового вида и даже подвида не состоялось, зато исследователи сделали массу новых наблюдений за поведением наших ближайших родственников. Африка вообще полна тайн. С XIX века до наших дней появляются упорные слухи о существовании гибридов между шимпанзе и гориллами, обычно их называют коолокамба, иногда соко, коула-нгуйя, н'гуи-мун или чего. Действительно описано довольно много живых особей и черепов с промежуточными признаками. Показательно, что таковые происходят только из областей, где водятся и гориллы, и шимпанзе. Причем подавляющая часть таких особей – самки, что наводит на мысли о неравной выживаемости гибридов, ведь замечено, что при отдаленной межвидовой гибридизации млекопитающих самки оказываются жизнеспособнее самцов. Теоретически в метисации шимпанзе и горилл нет чего-то невероятного, тем более что неоднократно отмечались смешанные группы двух видов, пасущихся вместе и даже играющих друг с другом. Одна беда: стопроцентных доказательств гибридизации за полтора столетия так и не было получено. Основная часть сообщений о коолокамба публиковалась в XIX и начале XX века, когда африканские приматы были вообще слабо изучены. Сейчас же, когда обезьян становится все меньше, а исследователи уже не стреляют их почем зря, вероятность наткнуться на настоящего гибрида стремительно падает. Возможно, вопрос решат ДНК-анализы из старых образцов, хотя пока такие попытки положительных результатов не дали. Коли уж зашла речь о метисации, никак нельзя забыть опыты Ильи Ивановича Иванова – выдающегося отечественного биолога. В 1926 г. он пытался скрестить шимпанзе и человека, но безуспешно. Аналогичные эксперименты, кстати, планировались и в Италии, но там их запретил папа римский. По этому поводу существует множество домыслов и баек, но действительность банальна: гибриды не получаются. Очевидно, главной виной всему разница в количестве хромосом – у шимпанзе на одну пару больше. Правда, разным подвидам домовой мускусной землеройки Suncus murinus не мешает даже разница в пять пар хромосом (от 15 до 20), а бабочкам горошковым беляночкам Leptidea sinapis – и вовсе в пятьдесят (от 56 до 106)! Есть и другие примеры видов с разным числом хромосом. Да оно и понятно: если бы различие в числе хромосом было совершенно непреодолимым барьером, то у всех живых существ с половым размножением было бы одно и то же их количество – как у первопредка. Но человек отличается от шимпанзе не только числом хромосом, но и их строением. И. И. Иванов не мог знать этого в 1926 г., но без его работ червь сомнения – может ли быть метис? – поныне точил бы нас. Впрочем, он и так точит некоторых недоверчивых граждан (“ученые скрывают!!!”)…Современные шимпанзе могут служить лишь общей моделью наиболее ранних ступеней эволюции предков человека. Этот уровень примерно соответствует выходу предков человека из тропических лесов в саванны и возникновению прямохождения. Кстати, есть группы шимпанзе, обитающие на границе леса и саванны. Характерно, что их поведение значительно отличается от поведения полностью лесных шимпанзе. Нельзя, однако, забывать, что и сами человекообразные обезьяны прошли длинный эволюционный путь: современные шимпанзе – это не копия наших предков и уж тем более не сами эти предки. Так, у них развилось костяшкохождение и огромные клыки, видимо несвойственные общему с человеком предку.
А что же наши предки? Где были они, как выглядели, что делали? Итак, люди…
Вкладка.

Ichthyostega – промежуточная стадия между рыбой и амфибией. Гренландия, 360 млн лет назад.

Dvinia prima – одна из зверообразных рептилий пермского периода. Россия, 254 млн лет назад.

Purgatorius – древнейший предок всех приматов. США, 65 млн лет назад.
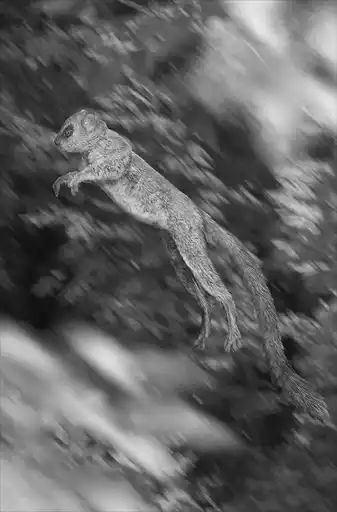
Archicebus achilles – общий предок долгопятов и обезьян. Китай, 55 млн лет назад.

Saadanius hijazensis – общий предок мартышкообразных и человеко– образных обезьян. Саудовская Аравия, 29 млн лет назад.

Proconsul heseloni – одна из древнейших человекообразных обезьян. Кения, 18 млн лет назад.
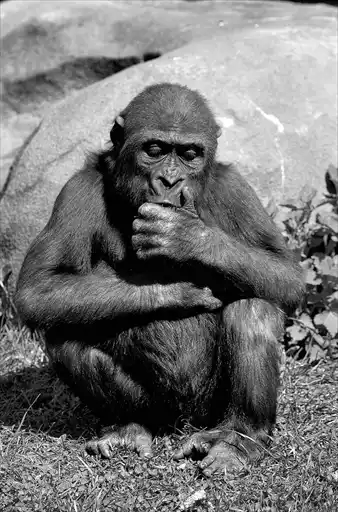
Горилла (Gorilla gorilla) – самый могучий примат современности и второй (после шимпанзе) наш ближайший родственник.

Шимпанзе (Pan troglodytes) – наш наиближайший родственник, самое умное существо на планете, не считая человека.
Литература.
Сокращения:
AJPhA – American Journal of Physical Anthropology;
CRAS – Comptes Rendus des seances de l'Académie des Sciences de Paris;
JAS – Journal of Archaeological Science;
JHE – Journal of Human Evolution;
PNAS – Proceedings of the National Academy of Sciences, USA;
PRS – Proceedings the Royal Society, ser. B, Biological Science.
Березкин Ю. Е. Африка, миграции, мифология. Ареалы распространения фольклорных мотивов в исторической перспективе. СПб.: Наука, 2013. 320 с.
Бужилова А. П. Адаптивные процессы у древнего населения Восточной Европы (по данным палеопатологии). М., рук. докт. дисс., 2001. 451 с.
Вишняцкий Л. Б. Неандертальцы: история несостоявшегося человечества. СПб.: Нестор-История, 2010.
Власенко А. Н., Дробышевский С. В. Морфофункциональные адаптации статолокомоторного аппарата и двигательное поведение классического неандертальца // Вестник Московского университета. Серия XXIII. Антропология. 2010. № 4. С. 50–56.
Длусский Г. М. Некоторые соображения о начальных этапах антропогенеза // Вопросы антропологии. 1980. Вып. 66. С. 85–90.
Докинз Р. Расширенный фенотип: длинная рука гена. М.: Corpus, 2010. 512 с.
Докинз Р. Самое грандиозное шоу на Земле. Доказательства эволюции. М.: Corpus, 2012. 528 с.
Дробышевский С. В. Эволюция мозга человека (анализ эндокраниометрических признаков гоминид). М.: ЛКИ, 2012. 178 с.
Дробышевский С. В. Предшественники. Предки? Часть V: Палеоантропы. 3-е издание. М.: ЛКИ, 2014а. 312 с.
Дробышевский С. В. Происхождение человеческих рас. Закономерности расообразования. Африка. М.: URSS, 2014б. 404 с.
Еськов К. Ю. Удивительная палеонтология. История Земли и жизни на ней. М.: НЦ ЭНАС, 2007. 312 с.
Киттельсен Т. В стране троллей. Кто есть кто в норвежском фольклоре. М.: ОГИ, 2009. 272 с.
Кунин Е. Логика случая. О природе и происхождении биологической эволюции. М.: Центрполиграф, 2014.
Кэрролл Р. Палеонтология и эволюция позвоночных. Т. 2. М.: Мир, 1993а. 283 с.
Кэрролл Р. Палеонтология и эволюция позвоночных / Под ред. В. И. Громовой. Т. 3. М.: Мир, 1993б. 312 с.
Линдблад Я. Человек – ты, я и первозданный. М.: Прогресс, 1991. 264 с.
Лопатин А. В. Строение черепа Archaeoryctes euryalis sp. nov. (Didymoconidae, Mammalia) из палеоцена Монголии и систематическое положение семейства // Палеонтологический журнал. 2001. № 3. С. 97–107.
Лопатин А. В. Особенности развития фауны мелких млекопитающих Азии в раннем палеогене // Экосистемные перестройки и эволюция биосферы. М.: ПИН РАН, 2004. Вып. 6. С. 87–96.
Марков А. Рождение сложности. Эволюционная биология сегодня. Неожиданные открытия и новые вопросы. М.: Corpus, 2010. 552 с.
Марков А. Эволюция человека. Книга первая. Обезьяны, кости и гены. М.: Corpus, 2012а. 496 с.
Марков А. Эволюция человека. Книга вторая. Обезьяны, нейроны и душа. М.: Corpus, 2012б. 512 с.
Марков А., Наймарк Е. Эволюция. Классические идеи в свете новых открытий. М.: Corpus, 2014. 656 с.
Основы палеонтологии. Т. 13. М.: Государственное научно-техническое издательство литературы по геологии и охране недр, 1962. 423 с.
Ражев Д. И. Комплекс остеологических признаков всадников // Новое в археологии Южного Урала. 1996. С. 251–259.
Рэнгем Р. Зажечь огонь. Как кулинария сделала нас людьми. М.: Corpus, 2012. 336 с.
Савельев С. В., Негашева М. А. Практикум по анатомии мозга человека. М.: Веди, 2005. 200 с.
Симпсон Дж. Великолепная изоляция. М.: Мир, 1983. 256 с.
Соколов А. Б. Мифы об эволюции человека. М.: Альпина нон-фикшн, 2015. 390 с.
Шишкин М. А. Эволюция шейных позвонков у темноспондильных амфибий и дифференциация ранних тетрапод // Палеонтологический журнал. 2000. Т. 34. № 5. С. 62–74.
Alba D. M., Moyà-Solà S. et Köhler M. Canine reduction in the Miocene hominoid Oreopithecus bambolii: behavioural and evolutionary implications // JHE, 2001, V. 40, № 1, pp. 1–16.
Alba D. M., Almécija S., DeMiguel D., Fortuny J., Ríos de los M. P., Pina M., Robles J. M. et Moyà-Solà S. Miocene small-bodied ape from Eurasia sheds light on hominoid evolution // Science, 2015, V. 350, № 6260, pp. aab2625–1 – aab2625–11.
Allsworth-Jones P., Harvati K. et Stringer C. The archaeological context of the Iwo Eleru cranium from Nigeria and preliminary results of new morphometric studies // West African archaeology: new developments, new perspectives. BAR, Archaeopress, 2010, pp. 29–42.
Almecija S., Shrewsbury M., Rook L. et Moyà-Solà S. The morphology of Oreopithecus bambolii pollical distal phalanx // AJPhA, 2014, V. 153, № 4, pp. 582–597.
Angst D., Lécuyer C., Amiot R., Buffetaut E., Fourel F., Martineau F., Legendre S., Abourachid A. et Herrel A. Isotopic and anatomical evidence of an herbivorous diet in the Early Tertiary giant bird Gastornis. Implications for the structure of Paleocene terrestrial ecosystems // Naturwissenschaften (advance online publication), 2014, doi: 10.1007/s00114-014-1158-2.
Archibald J. D. et Averianov A. Phylogenetic analysis, taxonomic revision, and dental ontogeny of the Cretaceous Zhelestidae (Mammalia: Eutheria) // Zoological Journal of the Linnean Society, 2012, V. 164, pp. 361–426.
Armour-Chelu M., Andrews P. et Bernor R. L. Further observations on the primate community at Rudabánya II (late Miocene, early Vallesian age), Hungary // JHE, 2005, V. 49, № 1, pp. 88–98.
Arsuaga J. L. El Collar del Neandertal. Ediciones Temas de Hoy, Col. Tanto por Saber, 1999.
Asfaw B., White T. D., Lovejoy O., Latimer B., Simpson S. et Suwa G. Australopithecus garhi: a new species of early hominid from Ethiopia // Science, 1999, V. 284, № 5414, pp. 629–635.
Backwell L. R. et d'Errico F. Evidence of termite foraging by Swartkrans early hominids // PNAS, 2001, V. 98, № 4, pp. 1358–1363.
Bacon A.-M. et Long V. Th. The first discovery of a complete skeleton of a fossil orang-utan in a cave of the Hoa Binh Province, Vietnam // JHE, 2001, V. 41, № 3, pp. 227–241.
Barham L. Some initial informal reactions to publication of the discovery of Homo floresiensis and replies from Brown & Morwood // Before Farming, 2004, V. 4, pp. 1–7.
Barker G., Badang D., Barton H., Beavitt P., Bird M., Daly P., Doherty C., Gilbertson D., Glover I., Hunt C., Manser J., McLaren S., Paz V., Pyatt B., Reynolds T., Rose J., Rushworth G. et Stephens M. The Niah Cave Project: the second (2001) season of fieldwork // Sarawak Museum Journal, 2001, V. 56, n.s. 77, pp. 37–119.
Barrow E., Seiffert E. R. et Simons E. L. A primitive hyracoid (Mammalia, Paenungulata) from the early Priabonian (Late Eocene) of Egypt // Journal of Systematic Palaeontology, 2010, V. 8, № 2, pp. 213–244.
Beard K. C. Gliding behavior and palaeoecology of the alleged primate family Paromomyidae (Mammalia, Dermoptera) // Nature, 1990, V. 345, № 6273, pp. 340–341.
Beard K. C. Origin and evolution of gliding in early Cenozoic Dermoptera (Mammalia, Primatomorpha) // Primates and their relatives in phylogenetic perspective. Ed.: R. D. E. MacPhee. New York: Plenum Press, 1993, pp. 63–90.
Beard K. Ch. et Wang J. The eosimiid primates (Anthropoidea) of the Heti Formation, Yuanqu Basin, Shanxi and Henan Provinces, People's Republic of China // JHE, 2004, 46, pp. 401–432.
Beard K. Ch., Jaeger J.-J., Chaimanee Y., Rossie J. B., Soe A. N., Tun S. Th., Marivaux L. et Marandat B. Taxonomic status of purported primate frontal bones from the Eocene Pondaung Formation of Myanmar // JHE, 2005, V. 49, № 4, pp. 468–481.
Beard K. Ch., Marivaux L., Tun S. Th., Soe A. N., Chaimanee Y., Htoon W., Marandat B., Aung H. H. et Jaeger J. New sivaladapid primates from the Eocene Pondaung Formation of Myanmar and the anthropoid status of Amphipithecidae // Bulletin of Carnegie Museum of Natural History, 2007, № 39, pp. 67–76.
Beard K. Ch., Marivaux L., Chaimanee Y., Jaeger J.-J., Marandat B., Tafforeau P., Soe A. N., Tun S. Th. et Kyaw A. A. A new primate from the Eocene Pondaung Formation of Myanmar and the monophyly of Burmese amphipithecids // PRS, 2009, pp. 1–10.
Begun D. R. et Kivell T. L. Knuckle-walking in Sivapithecus? The combined effects of homology and homoplasy with possible implications for pongine dispersals // JHE, 2011, V. 60, № 2, pp. 158–170.
Benefit B. R. Phylogenetic, paleodemographic, and taphonomic implications of Victoriapithecus deciduous teeth from Maboko, Kenya // AJPhA, 1994, V. 95, № 3, pp. 277–331.
Berger L. R., Churchill S. E., De Klerk B. et Quinn Rh. L. Small-bodied humans from Palau, Micronesia // PLoS ONE, 2008, V. 3, № 3, p. e1780.
Bergh van den G. D., Meijer H. J., Due R. A., Morwood M. J., Szabó K., Hoek Ostende van den L. W., Sutikna T., Saptomo E. W., Piper P. J. et Dobney K. M. The Liang Bua faunal remains: a 95 k.yr. sequence from Flores, East Indonesia // JHE, 2009, V. 57, № 5, pp. 527–537.
Bergh van den G. D., Kaifu Y., Kurniawan I., Kono R. T., Brumm A., Setiyabudi E., Aziz F. et Morwood M. J. Homo floresiensis-like fossils from the early Middle Pleistocene of Flores // Nature, 2016a, V. 534, № 7606, pp. 245–248.
Bergh van den G. D., Li B., Brumm A., Grün R., Yurnaldi D., Moore M. W., Kurniawan I., Setiawan R., Aziz F., Roberts R. G., Suyono, Storey M., Setiabudi E. et Morwood M. J. Earliest hominin occupation of Sulawesi, Indonesia // Nature, 2016b, V. 529, № 7585, pp. 208–211.
Berzi A. The Oreopithecus bambolii // JHE, 1973, V. 2, № 1, p. 25.
Bininda-Emonds O. R. P., Cardillo M., Jones K. E., MacPhee R. D. E., Beck R. M. D., Grenyer R., Price S. A., Vos R. A., Gittleman J. L. et Purvis A. The delayed rise of present-day mammals // Nature, 2007, V. 446, № 7135, pp. 507–512.
Bird M. I., Taylor D. et Hunt Ch. Palaeoenvironments of insular Southeast Asia during the last glacial period: a savanna corridor in Sundaland? // Quaternary Science Reviews, 2005, V. 24, pp. 2228–2242.
Bloch J. I. et Silcox M. T. New basicrania of Paleocene-Eocene Ignacius: re-evaluation of the Plesiadapiform-Dermopteran link // AJPhA, 2001, V. 116, № 3, pp. 184–198.
Bloch J. I., Silcox M. T., Boyer D. M. et Sargis E. J. New Paleocene skeletons and the relationship of plesiadapiforms to crown-clade primates // PNAS, 2007, V. 104, № 4, pp. 1159–1164.
Bocherens H., Schrenk F., Chaimanee Y., Kullmer O., Mörike D., Pushkina D. et Jaeger J.-J. Flexibility of diet and habitat in Pleistocene South Asian mammals: implications for the fate of the giant fossil ape Gigantopithecus // Quaternary International, 2016, pp. 1–8.
Böhme M., Aziz H. A., Prieto J., Bachtadse V. et Schweigert G. Bio-magnetostratigraphy and environment of the oldest Eurasian hominoid from the Early Miocene of Engelswies (Germany) // JHE, 2011, V. 61, № 3, pp. 332–339.
Bond M., Tejedor M. F., Campbell K. E., Chornogubsky L., Novo N. et Goin F. Eocene primates of South America and the African origins of New World monkeys // Nature, 2015, V. 520, № 7548, pp. 538–541.
Boyer D. M., Evans A. R. et Jernvall J. Evidence of dietary differentiation among late Paleocene – early Eocene plesiadapids (Mammalia, Primates) // AJPhA, 2010a, V. 142, № 2, pp. 194–210.
Boyer D. M., Prasad G. V. R., Krause D. W., Godinot M., Goswami A., Verma O. et Flynn J. J. New postcrania of Deccanolestes from the Late Cretaceous of India and their bearing on the evolutionary and biogeographic history of euarchontan mammals // Naturwissenschaften, 2010b, V. 97, pp. 365–377.
Brown P. et Maeda T. Liang Bua Homo floresiensis mandibles and mandibular teeth: a contribution to the comparative morphology of a new hominin species // JHE, 2009, V. 57, № 5, pp. 571–596.
Brown P., Sutikna T., Morwood M. J., Soejono R. P., Jatmiko, Saptomo W. E. et Due R. A new small-bodied hominin from the Late Pleistocene of Flores, Indonesia // Nature, 2004, V. 431, № 7012, pp. 1055–1061.
Brumm A., Jensen G. M., Bergh van den G. D., Morwood M. J., Kurniawan I., Aziz F. et Storey M. Hominins on Flores, Indonesia, by one million years ago // Nature, 2010, V. 464, № 7289, pp. 748–753.
Brumm A., Bergh van den G. D., Storey M., Kurniawan I., Alloway B. V., Setiawan R., Setiyabudi E., Grün R., Moore M. W., Yurnaldi D., Puspaningrum M. R., Wibowo U. P., Insani H., Sutisna I., Westgate J. A., Pearce N. J. G., Duval M., Meijer H. J. M., Aziz F., Sutikna Th., Kaars van der S., Flude S. et Morwood M. J. Age and context of the oldest known hominin fossils from Flores // Nature, 2016, V. 534, № 7606, pp. 249–253.
Bunn H., Pickering T. et Domínguez-Rodrigo M. Bovid mortality profiles and early hominin meat-foraging capabilities at Olduvai Gorge, Tanzania // Abstracts European Society for the study of Human Evolution. Bordeaux, 2012, September.
Bush E. Ch. Evolution and scaling in mammalian brains. Ph.D. thesis. California Institute of Technology, Pasadena, California, 2004, 55 p.
Bush E. C., Simons E. L. et Allman J. M. High-resolution computed tomography study of the cranium of a fossil anthropoid primate, Parapithecus grangeri: new insights into the evolutionary history of primate sensory systems // The Anatomical Record, Part A, 2004, V. 281A, pp. 1083–1087.
Calandra I., Schulz E., Pinnow M., Krohn S. et Kaiser Th. M. Teasing apart the contributions of hard dietary items on 3D dental microtextures in primates // JHE, 2012, V. 63, № 1, pp. 85–98.
Carrigan M. A., Uryasev O., Frye C. B., Eckman B. L., Myers C. R., Hurley Th. D. et Benner S. A. Hominids adapted to metabolize ethanol long before human-directed fermentation // PNAS, 2014, V. 112, № 2, pp. 458–463.
Cartmill M. Arboreal adaptations and the origin of the order Primates // The functional and evolutionary biology of primates / Ed. R. Tuttleed. Chicago, Aldine, 1972, pp. 97–122.
Casanovas-Vilar I., Dama van J. A., Moyà-Solà S. et Rook L. Late Miocene insular mice from the Tusco-Sardinian palaeobioprovince provide new insights on the palaeoecology of the Oreopithecus faunas // JHE, 2011, V. 61, № 1, pp. 42–49.
Cerling Th. E., Mbua E., Kirera F. M., Manthi F. K., Grine F. E., Leakey M. G., Sponheimer M. et Uno K. T. Diet of Paranthropus boisei in the early Pleistocene of East Africa // PNAS, 2011a, V. 108, № 23, pp. 9337–9341.
Cerling Th. E., Wynn J. G., Andanje S. A., Bird M. I., Korir D. K., Levin N. E., Mace W., Macharia A. N., Quade J. et Remien Ch. H. Woody cover and hominin environments in the past 6 million years // Nature, 2011b, V. 476, № 7358, pp. 51–56.
Cerling Th. E., Manthi F. K., Mbua E. N., Leakey L. N., Leakey M. G., Leakey R. E., Brown F. H., Grine F. E., Hart J. A., Kaleme P., Roche H., Uno K. T. et Wood B. A. Stable isotope-based diet reconstructions of Turkana Basin hominins // PNAS, 2013, V. 110, № 26, pp. 10501–10506.
Chaimanee Y., Chavasseau O., Beard K. Ch., Kyaw A. A., Soe A. N., Sein Ch., Lazzari V., Marivaux L., Marandat B., Swe M., Rugbumrung M., Lwin Th., Valentin X., Zin-Maung-Maung-Thein et Jaeger J.-J. Late Middle Eocene primate from Myanmar and the initial anthropoid colonization of Africa // PNAS, 2012, V. 109, № 26, pp. 10293–10297.
Chaimanee Y., Chavasseau O., Lazzari V., Euriat A. et Jaeger J.-J. A new Late Eocene primate from the Krabi Basin (Thailand) and the diversity of Palaeogene anthropoids in southeast Asia // PRS, 2013, V. 280, № 20132268, pp. 1–9.
Chapman C. A. Primate seed dispersal: coevolution and conservation implications // Evolutionary Anthropology: Issues, News, and Reviews, 1995, V. 4, № 3, pp. 74–82.
Chester S. G. B., Bloch J. I. et Clemens W. A. Tarsal morphology of the oldest plesiadapiform Purgatorius indicates arboreality in the earliest primates // Annual meeting of the Society of Vertebrate Paleontology, 2012, Oct. 19.
Chester S. G. B., Bloch J. I., Boyer D. M. et Clemens W. A. Oldest known euarchontan tarsals and affinities of Paleocene Purgatorius to Primates // PNAS, 2015, V. 112, № 5, pp. 1487–1492.
Chivers D. J. Functional anatomy of the gastrointestinal tract // Colobine monkeys, their ecology, behavior and evolution. Eds. A. G. Davies et J. F. Oates. Cambridge, Cambridge University Press, 1994, pp. 205–228.
Chou H.-H., Hayakawa T., Diaz S., Krings M., Indriati E., Leakey M., Pääbo S., Satta Y., Takahata N. et Varki A. Inactivation of CMP-N-acetylneuraminic acid hydroxylase occurred prior to brain expansion during human evolution // PNAS, 2002, V. 99, № 18, pp. 11736–11741.
Chrisomalis S. Social aspects of early hominid cannibalism claims. 1997, 34 p.
Ciochon R. L., Gingerich Ph. D., Gunnell G. F. et Simons E. L. Primate postcrania from the late middle Eocene of Myanmar // PNAS, 2001, V. 98, № 14, pp. 7672–7677.
Clarke R. J. et Tobias P. V. Sterkfontein Member 2 foot bones of the oldest South African hominid // Science, 1995, V. 269, № 5223, pp. 521–524.
Clemens W. et Wilson G. Pattern of immigration of Purgatorids and other eutherians into the northern North American western interior // Annual meeting of the Society of Vertebrate Paleontology, 2012, Oct. 19.
Conway Morris S. et Caron J.-B. Pikaia gracilens Walcott, a stem-group chordate from the Middle Cambrian of British Columbia // Biological Reviews, 2012, V. 87, № 2, pp. 480–512.
Coppens Y., Tseveendorj D., Demeter F., Turbat Ts. et Giscard P.-H. Discovery of an archaic Homo sapiens skullcap in Northeast Mongolia // Comptes Rendus Palevol, 2008, V. 7, № 1, pp. 51–60.
Corruccini R. S. et McHenry H. W. Knuckle-walking hominid ancestors // JHE, 2001, V. 40, № 6, pp. 507–511.
Coster P., Beard K. Ch., Soe A. N., Sein Ch., Chaimanee Y., Lazzari V., Valentin X. et Jaeger J.-J. Uniquely derived upper molar morphology of Eocene Amphipithecidae (Primates: Anthropoidea): homology and phylogeny // JHE, 2013, V. 65, № 2, pp. 143–155.
Court N. et Mahboubi M. Reassessment of Lower Eocene Seggeurius amourensis: aspects of primitive dental morphology in the mammalian order Hyracoidea // Journal of Paleontology, 1993, V. 67, № 5, pp. 889–893.
Crevecoeur I., Skinner M. M., Bailey Sh. E., Gunz Ph., Bortoluzzi S., Brooks A. S., Burlet Ch., Cornelissen E., De Clerck N., Maureille B., Semal P., Vanbrabant Y. et Wood B. First early hominin from Central Africa (Ishango, Democratic Republic of Congo) // PLoS ONE, 2014, V. 9, № 1, p. e84652.
Curnoe D. A review of early Homo in southern Africa focusing on cranial, mandibular and dental remains, with the description of a new species (Homo gautengensis sp. nov.) // HOMO – Journal of Comparative Human Biology, 2010, V. 61, pp.151–177.
Curnoe D., Xueping J., Herries A. I. R., Kanning B., Tacon P. S. C., Zhende B., Fink D., Yunsheng Z., Hellstrom J., Yun L., Cassis G., Bing S., Wroe S., Shi H., Parr W. C. H., Shengmin H. et Rogers N. Human remains from the Pleistocene-Holocene transition of southwest China suggest a complex evolutionary history for East Asians // PLoS ONE, 2012, V. 7, № 3, pp. e31918.
Curnoe D., Ji X., Liu W., Bao Zh., Taçon P. S. C. et Ren L. A hominin femur with archaic affinities from the Late Pleistocene of Southwest China // PLoS ONE, 2015, V. 10, № 12, p. e0143332.
D'Anastasio R., Wroe S., Tuniz C., Mancini L., Cesana D. T., Dreossi D., Ravichandiran M., Attard M., Parr W. C. H., Agur A. et Capasso L. Micro-biomechanics of the Kebara 2 hyoid and its implications for speech in Neanderthals // PLoS ONE, 2013, V. 8, № 12, p. e82261.
De Bast E., Sige B. et Smith Th. Diversity of the adapisoriculid mammals from the early Palaeocene of Hainin, Belgium // Acta Palaeontologica Polonica, 2012, V. 57, № 1, pp. 35–52.
Deane A. S., Nargolwalla M. C., Kordos L. et Begun D. R. New evidence for diet and niche partitioning in Rudapithecus and Anapithecus from Rudabánya, Hungary // JHE, 2013, V. 65, № 6, pp. 704–714.
Defleur A., Dutour O., Valladas H. et Vandermeersch B. Cannibals among the Neanderthals? // Nature, 1993, V. 362, № 6417, p. 214.
Defleur A., White T., Valensi P., Slimak L. et Cregut-Bonnoures E. Neanderthal cannibalism at Moula-Guercy, Ardeche, France // Science, 1999, V. 286, № 5437, pp. 128–131.
Delson E., Harvati K., Reddy D., Marcus L. F., Mowbray K., Sawyer G. J., Teuku J. et Marquez S. Sambungmacan 3 Homo erectus calvaria: a comparative morphometric and morphological analysis // Anatomical Record, 2001, V. 262, № 4, pp. 380–397.
DeMiguel D., Alba D. M. et Moyà-Solà S. European pliopithecid diets revised in the light of dental microwear in Pliopithecus canmatensis and Barberapithecus huerzeleri // AJPhA, 2013, V. 151, № 4, pp. 573–582.
D'Errico F. et Goni M. F. S. Neandertal extinction and the millennial scale climatic variability of OIS 3 // Quaternary Science Reviews, 2003, V. 22, pp. 769–788.
D'Errico F. et Villa P. Holes and grooves: the contribution of microscopy and taphonomy to the problem of art origins // JHE, 1997, V. 33, № 1, pp. 1–31.
Deshpande D. A., Wang W. C. H., McIlmoyle E. L., Robinett K. S., Schillinger R. M., An S. S., Sham J. S. K. et Liggett S. B. Bitter taste receptors on airway smooth muscle bronchodilate by localized calcium signaling and reverse obstruction // Nature Medicine, 2010, V. 16, № 11, pp. 1299–1304.
Diedrich C. G. 'Neanderthal bone flutes': simply products of Ice Age spotted hyena scavenging activities on cave bear cubs in European cave bear dens // Royal Society open science, 2015, V. 2, pp. 1–16.
Dulai K. S., Dornum von M., Mollon J. D. et Hunt D. M. The evolution of trichromatic color vision by opsin gene duplication in New World and Old World primates // Genome Research, 1999, V. 9, № 7, pp. 629–638.
Durband A. C. The view from down under: a test of the multiregional hypothesis of modern human origins using the basicranial evidence from Australasia // Collegium Antropologicum, 2007, V. 31, № 3, pp. 651–659.
Durband A. C. Mandibular fossa morphology in the Ngandong and Sambungmacan fossil hominids // The Anatomical Record, 2008, V. 291, № 10, pp. 1212–1220.
Efstratiou N., Biagi P., Angelucci D. E. et Nisbet R. Middle Palaeolithic chert exploitation in the Pindus Mountains of western Macedonia, Greece // Antiquity, 2011, V. 85, № 328.
Engel M. S., Grimaldi D. A. et Krishna K. Termites (Isoptera): their phylogeny, classification, and rise to ecological dominance // American Museum Novitates, 2009, № 3650, pp. 1–27.
Etler D. A., Crummett T. L. et Wolpoff M. H. Longgupo: early Homo colonizer or late pliocene Lufengpithecus survivor in south China? // Human Evolution, 2001, V. 16, № 1, pp. 1–12.
Ferraro J. V., Plummer Th. W., Pobiner B. L., Oliver J. S., Bishop L. C., Braun D. R., Ditchfield P. W., Seaman III J. W., Binetti K. M., Seaman J. W., Hertel F. et Potts R. Earliest archaeological evidence of persistent hominin carnivory // PLoS ONE, 2013, V. 8, № 4, p. e62174.
Fiacconi M. et Hunt Ch. O. Pollen taphonomy at Shanidar Cave (Kurdish Iraq): an initial evaluation // Review of Palaeobotany and Palynology, 2015, V. 223, pp. 87–93.
Fleagle J. G. Primate adaptation and evolution. New York, Academic Press, 1999.
Fleischer J., Breer H. et Strotmann J. Mammalian olfactory receptors // Frontiers in Cellular Neuroscience, 2009, V. 3, № 9, pp. 1–10.
Forth P. Disappearing wildmen: capture, extirpation, and exinction as regular components of representations of putative hairy, hominoids // The Аnthгоро1оgу of Extinction. Essays on culture and species death. Ed. G. M. Sodikoff. Bloomington, 2012.
Gauthier J. A., Kearney M., Maisano J. A., Rieppel O. et Behlke A. D. B. Assembling the squamate tree of life: perspectives from the phenotype and the fossil record // Bulletin of the Peabody Museum of Natural History, 2012, V. 53, № 1, pp. 3–308.
Gebo D. L., Dagosto M., Beard K. Ch., Qi T. et Wang J. The oldest known anthropoid postcranial fossils and the early evolution of higher primates // Nature, 2000, V. 404, № 6775, pp. 276–278.
Gebo D. L., Dagosto M., Beard K. Ch. et Qi T. Middle Eocene primate tarsals from China: implications for haplorhine evolution // AJPhA, 2001, V. 116, № 2, pp. 83–107.
Gebo D. L., Gunnell G. F., Ciochon R. L., Takai M., Tsubamoto T. et Egi N. New eosimiid primate from Myanmar // JHE, 2002, V. 43, № 4, pp. 549–553.
Gebo D. L., Dagosto M., Beard K. Ch., Ni X. et Qi T. A haplorhine first metatarsal from the Middle Eocene of China // Elwyn Simons: A Search for Origins. Eds. J. G. Fleagle et C. C. Gilbert. Springer, 2008, pp. 229–242.
Gerrienne P., Meyer-Berthaud B., Fairon-Demaret M., Streel M. et Steemans P. Runcaria, a Middle Devonian seed plant precursor // Science, 2004, V. 306, № 5697, pp. 856–858.
Gheerbrant E. Paleocene emergence of elephant relatives and the rapid radiation of African ungulates // PNAS, 2009, V. 106, № 26, pp. 10717–10721.
Gheerbrant E., Sudre J. et Cappetta H. A Palaeocene proboscidean from Morocco // Nature, 1996, V. 383, № 6595, pp. 68–71.
Gilbert Ch. C. Dietary ecospace and the diversity of euprimates during the Early and Middle Eocene // AJPhA, 2005, V. 126, № 3, pp. 237–249.
Gingerich P. D. Cranial anatomy and evolution of early Tertiary Plesiadapidae (Mammalia, Primates) // Contributions from the Museum of Paleontology, The University of Michigan, 1976, V. 15, pp. 1–140.
Gingerich Ph. D. Cranial morphology and adaptations in Eocene Adapidae. I. Sexual dimorphism in Adapis magnus and Adapis parisiensis // AJPhA, 1981, V. 56, № 3, pp. 217–234.
Gingerich P. D. Primate evolution // Mammals. Notes for a short course. Eds. P. D. Gingerich et C. E. Badgley. Univ. Tennessee, Studies Geol., 1984, V. 8, pp. 167–181.
Gingerich P. Early Eocene bats (Mammalia: Chiroptera) and other vertebrates in freshwater limestones of the Willywood formation, Clark's Fork Basin, Wyoming // Contributions from the Museum of Paleontology, The University of Michigan, 1987, V. 27, pp. 275–320.
Gingerich Ph. D. et Martin R. D. Cranial morphology and adaptations in Eocene Adapidae. II. The Cambridge skull of Adapis parisiensis // AJPhA, 1981, V. 56, № 3, pp. 235–257.
Gladman J. T., Boyer D. M., Simons E. L. et Seiffert E. R. Calcaneus attributable to the primitive Late Eocene anthropoid Proteopithecus sylviae: phenetic affinities and phylogenetic implications // AJPhA, 2013, V. 151, № 3, pp. 372–397.
Godinot M. Lemuriform origins as viewed from the fossil record // Folia Primatologica, 2006, V. 77, № 6, pp. 446–464.
Gommery D., Ramanivosoa B., Faure M., Guérin C., Kerloc'h P., Sénégas F. et Randrianantenaina H. Les plus anciennes traces d'activités anthropiques de Madagascar sur des ossements d'hippopotames subfossiles d'Anjohibe (Province de Mahajanga) // Comptes Rendus Palevol, 2011, V. 10, № 4, pp. 271–278.
Gonzales L. A., Benefit B. R., McCrossin M. L. et Spoor F. Cerebral complexity preceded enlarged brain size and reduced olfactory bulbs in Old World monkeys // Nature Communications, 2015, V. 6, № 7580, pp. 1–9.
Goodman M., Porter C. A., Czelusniak J., Page S. L., Schneider H., Shoshani J., Gunnell G. et Groves C. P. Toward a phylogenetic classification of Primates based on DNA evidence complemented by fossil evidence // Molecular Phylogenetics and Evolution, 1998, V. 9, № 3, pp. 585–598.
Goswami A., Prasad G. V. R., Upchurch P., Boyer D. M., Seiffert E. R., Verma O., Gheerbrant E. et Flynn J. J. A radiation of arboreal basal eutherian mammals beginning in the Late Cretaceous of India // PNAS, 2011, V. 108, № 39, pp. 16333–16338.
Gowlett J., Gamble C. et Dunbar R. Human evolution and the archaeology of the social brain // Current Anthropology, 2012, V. 53, № 6, pp. 693–722.
Groves C. et Shekelle M. The genera and species of Tarsiidae // International Journal of Primatology, 2010, V. 31, № 6, pp. 1071–1082.
Gunnell G. F. et Ciochon R. L. Revisiting primate postcrania from the Pondaung Formation of Myanmar. The purported anthropoid astragalus // Elwyn Simons: А Search for Origins. Eds. J. G. Fleagle et C. C. Gilbert. Springer, 2008, pp. 211–228.
Haile-Selassie Y., Saylor B. Z., Deino A., Levin N. E., Alene M. et Latimer B. M. A new hominin foot from Ethiopia shows multiple Pliocene bipedal adaptations // Nature, 2012, V. 483, № 7391, pp. 565–570.
Halenar L. B. Reconstructing the locomotor repertoire of Protopithecus brasiliensis. I. Body size // The Anatomical Record, 2011, V. 294, № 12, pp. 2024–2047.
Hammer M. F., Woerner A. E., Mendez F. L., Watkins J. C. et Wall J. D. Genetic evidence for archaic admixture in Africa // PNAS, 2011, V. 108, № 37, pp. 15123–15128.
Hamrick M. W., Rosenma B. A. et Brush J. A. Phalangeal morphology of the Paromomyidae (?Primates, Plesiadapiformes): the evidence for gliding behavior reconsidered // AJPhA, 1999, V. 109, № 3, pp. 397–413.
Hand S. J., Novacek M., Godthelp H. et Archer M. First Eocene bat from Australia // Journal of Vertebrate Paleontology, 1994, V. 14, № 3, pp. 375–381.
Hardus M. E., Lameira A. R., Zulfa A., Atmoko S. S. U., Vries de H. et Wich S. A. Behavioral, ecological, and evolutionary aspects of meat-eating by Sumatran orangutans (Pongo abelii) // International Journal of Primatology, 2012, V. 33, № 2, pp. 287–304.
Hardy K., Buckley S., Collins M. J., Estalrrich A., Brothwell D., Copeland L., García-Tabernero A., García-Vargas S., Rasilla de la M., Lalueza-Fox C., Huguet R., Bastir M., Santamaría D., Madella M., Wilson J., Fernández Cortés Á. et Rosas A. Neanderthal medics? Evidence for food, cooking, and medicinal plants entrapped in dental calculus // Naturwissenschaften, 2012, V. 99, pp. 617–626.
Harrison T. New fossil anthropoids from the middle Miocene of East Africa and their bearing on the origin of the Oreopithecidae // AJPhA, 1986, V. 71, № 3, pp. 265–284.
Harrison T. et Yumin G. Taxonomy and phylogenetic relationships of early Miocene catarrhines from Sihong, China // JHE, 1999, V. 37, № 2, pp. 225–277.
Hartenberger J.-L. Hypothèse paléontologique sur l'origine des Macroscelidea (Mammalia) // CRAS, ser. II, 1986, V. 302, pp. 247–249.
Harvati K., Stringer Ch., Grün R., Aubert M., Allsworth-Jones Ph. et Folorunso C. A. The Later Stone Age calvaria from Iwo Eleru, Nigeria: morphology and chronology // PLoS ONE, 2011, V. 6, № 9, e24024, pp. 1–8.
Heizmann E. P. J. et Begun D. R. The oldest Eurasian hominoid // JHE, 2001, V. 41, № 5, pp. 463–481.
Henneberg M., Eckhardt R. B., Chavanaves S. et Hsü K. J. Evolved developmental homeostasis disturbed in LB1 from Flores, Indonesia, denotes Down syndrome and not diagnostic traits of the invalid species Homo floresiensis // PNAS, 2014, V. 111, № 33, pp. 11967–11972.
Henry A. G., Brooks A. S. et Piperno D. R. Microfossils in calculus demonstrate consumption of plants and cooked foods in Neanderthal diets (Shanidar III, Iraq; Spy I and II, Belgium) // PNAS, 2011, V. 108, № 2, pp. 486–491.
Hershkovitz I., Kornreich L. et Laron Z. Comparative skeletal features between Homo floresiensis and patients with primary growth hormone insensitivity (Laron syndrome) // AJPhA, 2007, V. 134, № 2, pp. 198–208.
Hochuli P. A. et Feist-Burkhardt S. Angiosperm-like pollen and Afropollis from the Middle Triassic (Anisian) of the Germanic Basin (Northern Switzerland) // Frontiers Plant Science, 2013, V. 4, p. 344.
Holland L. Z. Evolution of basal deuterostome nervous systems // The Journal of Experimental Biology, 2015, V. 218, № 4, pp. 637–645.
Holloway R. L., Brown P., Schoenemann P. T. et Monge J. The brain endocast of Homo floresiensis: microcephaly and other issues… // AJPhA, 2006, V. 129, Supplement 42, p. 105.
Hooker J. J. A primitive emballonurid bat (Chiroptera, Mammalia) from the earliest Eocene of England // Palaeovertebrata, 1996, V. 25, pp. 287–300.
Hooker J. J., Russell D. E. et Phélizon A. A new family of Plesiadapiformes (Mammalia) from the Old World Lower Paleogene // Palaeontology, 1999, V. 42, № 3, pp. 377–407.
Horovitz I. et MacPhee R. D. E. The quaternary Cuban platyrrhine Paralouatta varonai and the origin of Antillean monkeys // JHE, 1999, V. 36, № 1, pp. 33–68.
Hu Y., Meng J., Wang Y. et Li Ch. Large Mesozoic mammals fed on young dinosaurs // Nature, 2005, V. 433, № 7022, pp. 149–152.
Hublin J. J., Spoor F., Braun M., Zonneveld F. et Condemi S. A late Neanderthal associated with Upper Palaeolithic artefacts // Nature, 1996, V. 381, № 6579, pp. 224–226.
Hublin J.-J., Weston D., Gunz Ph., Richards M., Roebroeks W., Glimmerveen J. et Anthonis L. Out of the North Sea: the Zeeland Ridges neandertal // JHE, 2009, V. 57, № 6, pp. 777–785.
Hutcheon J. M., Kirsch J. A. et Pettigrew J. D. Base-compositional biases and the bat problem. III. The questions of microchiropteran monophyly // Philosophical Transactions of the Royal Society of London, Series B, Biological Sciences, 1998, V. 353, № 1368, pp. 607–617.
Hyodo M., Nakaya H., Urabe A., Saegusa H., Shunrong X., Jiyun Y. et Xuepin J. Paleomagnetic dates of hominid remains from Yuanmou, China, and other Asian sites // JHE, 2002, V. 43, № 1, pp. 27–41.
Jacob T. Some Problems Pertaining to the Racial History of the Indonesian Region. Utrecht, Drukkerij Neerlandia, 1967.
Jacob T., Indriati E., Soejono R. P., Hsu K., Frayer D. W., Eckhardt R. B., Kuperavage A. J., Thorne A. et Henneberg M. Pygmoid Australomelanesian Homo sapiens skeletal remains from Liang Bua, Flores: population affinities and pathological abnormalities // PNAS, 2006, V. 103, № 36, pp. 13421–13426.
Jaeger J.-J., Beard K. Ch., Chaimanee Y., Salem M., Benammi M., Hlal O., Coster P., Bilal A. A., Duringer Ph., Schuster M., Valentin X., Marandat B., Marivaux L., Metais E., Hammuda O. et Brunet M. Late middle Eocene epoch of Libya yields earliest known radiation of African anthropoids // Nature, 2010, V. 467, № 7319, pp. 1095–1099.
Jayatunga P. A. Nittaewo, the Hobbits of Sri Lanka: An Analysis of the Legend. Neptune Publications, 2010, 88 p.
Ji Q., Luo Zh.-X., Yuan Ch.-X., Wible J. R., Zhang J.-P. et Georgi J. A. The earliest known eutherian mammal // Nature, 2002, V. 416, № 6883, pp. 816–822.
Ji Q., Luo Zh.-X., Yuan Ch.-X. et Tabrum A. R. A swimming mammaliaform from the Middle Jurassic and ecomorphological diversification of early mammals // Science, 2006, V. 311, № 5764, pp. 1123–1127.
Ji X. P., Jablonski N. G., Su D. F., Deng Ch. L., Flynn L. J., You Y. Sh. et Kelley J. Juvenile hominoid cranium from the terminal Miocene of Yunnan, China // Chinese Science Bulletin, 2013, V. 58, № 31, pp. 3771–3779.
Johnson A. E. Skeletal estimates of Gigantopithecus based on a Gorilla analogy // JHE, 1979, V. 8, № 6, pp. 585–587.
Kay R. F. “Giant” tamarin from the Miocene of Colombia // AJPhA, 1994, V. 95, № 3, pp. 333–353.
Kay R. F. et Cartmill M. Cranial morphology and adaptations of Palaechthon nacimienti and other Paromomyidae (Plesiadapoidea,? Primates), with a description of a new genus and species // JHE, 1977, V. 6, № 1, pp. 19–53.
Kay R. F. et Covert H. H. Anatomy and behaviour of extinct primates // Food Acquisition and Processing in Primates. Eds. D. J. Chivers, B. A. Wood et A. Bilsborough. Plenum Press, New York, 1984, pp. 467–508.
Kay R. N. B. et Davies A. G. Digestive physiology // Colobine Monkeys: Their ecology, Behavior and Evolution. Eds. A. G. Davies et J. F. Oates. Cambridge, Cambridge University Press, 1994, pp. 229–249.
Kelley J. et Gao F. Juvenile hominoid cranium from the late Miocene of southern China and hominoid diversity in Asia // PNAS, 2012, V. 109, № 18, pp. 6882–6885.
Kelley J. et Smith T. M. Age at first molar emergence in early Miocene Afropithecus turkanensis and life-history evolution in the Hominoidea // JHE, 2003, V. 44, № 3, pp. 307–329.
Kirk E. Ch. et Simons E. L. Diets of fossil primates from the Fayum Depression of Egypt: a quantitative analysis of molar shearing // JHE, 2001, V. 40, № 3, pp. 203–229.
Kishida T. Pattern of the divergence of olfactory receptor genes during tetrapod evolution // PLoS ONE, 2008, V. 3, № 6, p. e2385.
Kjeldbjerg A. L., Villesen P., Aagaard L. et Pedersen F. S. Gene conversion and purifying selection of a placenta-specific ERV–V envelope gene during simian evolution // BMC Evolutionary Biology, 2008, V. 8, p. 266.
Knüsel Ch. J., Roberts Ch. A. et Boylston A. Brief communication: when Adam delved… an activity-related lesion in three human skeletal populations // AJPhA, 1996, V. 100, № 3, pp. 427–434.
Koenigswald von G. H. R. A possible ancestral form of Gigantopithecus (Mammalia, Hominoidea) from the Chinji layers of Pakistan // JHE, 1981, V. 10, № 6, pp. 511–515.
Koenigswald von W. et Schierning H.-P. The ecological niche of an extinct group of mammals, the early Tertiary apatemyids // Nature, 1987, V. 326, № 6113, pp. 595–597.
Köhler M. et Moyà-Solà S. Ape-like or hominid-like? The positional behavior of Oreopithecus bambolii reconsidered // PNAS, 1997, V. 94, № 21, pp. 11747–11750.
Köhler M., Alba D. M., Moyà-Solà S. et MacLatchy L. Taxonomic affinities of the Eppelsheim femur // AJPhA, 2002, V. 119, № 4, pp. 297–304.
Kopp G. H., Roos Ch., Butynski Th. M., Wildman D. E., Alagaili A. N., Groeneveld L. F. et Zinner D. Out of Africa, but how and when? The case of hamadryas baboons (Papio hamadryas) // JHE, 2014, 76, pp. 154–164.
Kordos L. et Begun D. R. Primates from Rudabanya: allocation of specimens to individuals, sex and age categories // JHE, 2001, V. 40, № 1, pp. 17–39.
Krause D. W. Were paromomyids gliders? Maybe, maybe not // JHE, 1991, V. 21, № 3, pp. 177–188.
Krause J., Fu Q., Good J. M., Viola B., Shunkov M. V., Derevianko A. P. et Pääbo S. The complete mitochondrial DNA genome of an unknown hominin from southern Siberia // Nature, 2010, V. 464, № 8976, pp. 894–897.
Kunimatsu Y., Nakatsukasa M., Sawada Y., Sakai T., Hyodo M., Hyodo H., Itaya T., Nakaya H., Saegusa H., Mazurier A., Saneyoshi M., Tsujikawa H., Yamamoto A. et Mbua E. A new Late Miocene great ape from Kenya and its implications for the origins of African great apes and humans // PNAS, 2007, V. 104, № 49, 19220–19225.
Lachance J., Vernot B., Elbers C. C., Ferwerda B., Froment A., Bodo J.-M., Lema G., Fu W., Nyambo Th. B., Rebbeck T. R., Zhang K., Akey J. M. et Tishkoff S. A. Evolutionary history and adaptation from high-coverage whole-genome sequences of diverse African hunter-gatherers // Cell, 2012, V. 150, № 3, pp. 1–13.
Ladevèze S., Muizon de Ch., Beck R. M. D., Germain D. et Cespedes-Paz R. Earliest evidence of mammalian social behaviour in the basal Tertiary of Bolivia // Nature, 2011, V. 474, № 7349, pp. 83–86.
Lalueza-Fox C., Römpler H., Caramelli D., Stäubert C., Catalano G., Hughes D., Rohland N., Pilli E., Longo L., Condemi S., Rasilla de la M., Fortea J., Rosas A., Stoneking M., Schöneberg T., Bertranpetit J. et Hofreiter M. A melanocortin 1 receptor allele suggests varying pigmentation among Neanderthals // Science, 2007, V. 318, № 5855, pp. 1453–1455.
Lalueza-Fox C., Rosas A., Estalrrich A., Gigli E., Campos P. F., García-Tabernero A., García-Vargas S., Sánchez-Quinto F., Ramírez O., Civit S., Bastir M., Huguet R., Santamaría D., Gilbert M. Th. P., Willerslev E. et Rasilla de la M. Genetic evidence for patrilocal mating behavior among Neandertal groups // PNAS, 2011, V. 108, № 1, pp. 250–253.
Langdon J. H. Umbrella hypotheses and parsimony in human evolution: a critique of the Aquatic Ape Hypothesis // JHE, 1997, V. 33, № 4, pp. 479–494.
Larick R., Ciochon R. L., Zaim Y., Sudijono, Suminto, Rizal Y., Aziz F., Reagan M. et Heizler M. Early Pleistocene 40Ar/39Ar ages for Bapang Formation hominins, Central Jawa, Indonesia // PNAS, 2001, V. 98, № 9, pp. 4866–4871.
Lauri A., Brunet Th., Handberg-Thorsager M., Fischer A. H. L., Simakov O., Steinmetz P. R. H., Tomer R., Keller Ph. J. et Arendt D. Development of the annelid axochord: insights into notochord evolution // Science, 2014, V. 345, № 6202, pp. 1365–1368.
Leakey M. D. Artefacts from Kabua, Kenya // The South African Archaeological Bulletin, 1966, V. 21, p. 57.
Leroi-Gurhan A. The flowers found with Shanidar IV, a neanderthal burial in Iraq // Science, 1975, V. 190, № 4214, pp. 562–564.
Lewis O. J. The evolution of the hallucial tarsometatarsal joint in the anthropoidea // AJPhA, 1972, V. 37, № 1, pp. 13–33.
Lietava J. Medicinal plants in a Middle Paleolithic grave Shanidar IV? // Journal of Ethnopharmacology, 1992, V. 35, № 3, pp. 263–266.
Lilly J. C. The cetacean brain // Oceans, 1977, V. 10, pp. 4–7.
Locke D. P., Hillier L. D. W., Warren W. C., Worley K. C., Nazareth L. V., Muzny D. M., Yang Sh.-P., Wang Zh., Chinwalla A. T., Minx P., Mitreva M., Cook L., Delehaunty K. D., Fronick C., Schmidt H., Fulton L. A., Fulton R. S., Nelson J. O., Magrini V., Pohl C., Graves T. A., Markovic Ch., Cree A., Dinh H. H., Hume J., Kovar Ch. L., Fowler G. R., Lunter G., Meader S., Heger A., Ponting Ch. P., Marques-Bonet T., Alkan C., Chen L., Cheng Z., Kidd J. M., Eichler E. E., White S., Searle S., Vilella A. J., Chen Y., Flicek P., Ma J., Raney B., Suh B., Burhans R., Herrero J., Haussler D., Faria R., Fernando O., Darre F., Farre D., Gazave E., Oliva M., Navarro A., Roberto R., Capozzi O., Archidiacono N., Valle G. D., Purgato S., Rocchi M., Konkel M. K., Walker J. A., Ullmer B., Batzer M. A., Smit A. F. A., Hubley R., Casola C., Schrider D. R., Hahn M. W., Quesada V., Puente X. S., Ordonez G. R., Lopez-Otin C., Vinar T., Brejova B., Ratan A., Harris R. S., Miller W., Kosiol C., Lawson H. A., Taliwal V., Martins A. L., Siepel A., RoyChoudhury A., XinMa, Degenhardt J., Bustamante C. D., Gutenkunst R. N., Mailund Th., Dutheil J. Y., Hobolth A., Schierup M. H., Ryder O. A., Yoshinaga Y., Jong de P. J., Weinstock G. M., Rogers J., Mardis E. R., Gibbs R. A. et Wilson R. K. Comparative and demographic analysis of orang-utan genomes // Nature, 2011, V. 469, № 7331, pp. 529–533.
Lofgren D. L. The Bug Creek problem and the Cretaceous-Tertiary transition at McGuire Creek, Montana // University of California publications in geological sciences, 1995, V. 140, pp. 1–185.
Lovejoy C. O. Reexamining human origins in light of Ardipithecus ramidus // Science, 2009, V. 326, № 5949, pp. 74e1–74e8.
Lovejoy C. O., Latimer B., Suwa G., Asfaw B. et White T. D. Combining prehension and propulsion: the foot of Ardipithecus ramidus // Science, 2009, V. 326, № 5949, pp. 72e1–72e8.
Luo Zh.-X. et Wible J. R. A Late Jurassic digging mammal and early mammal diversification // Science, 2005, V. 308, № 5718, pp. 103–107.
Luo Zh.-X., Crompton A. W. et Sun A.-L. A new mammaliaform from the Early Jurassic and evolution of mammalian characteristics // Science, 2001, V. 292, № 5521, pp. 1535–1540.
Luo Z.-X., Yuan Ch.-X., Meng Q.-J. et Ji Q. A Jurassic eutherian mammal and divergence of marsupials and placentals // Nature, 2011, V. 476, № 7361, pp. 442–445.
Luo Zh.-X., Meng Q.-J., Ji Q., Liu D., Zhang Y.-G. et Neander A. I. Evolutionary development in basal mammaliaforms as revealed by a docodontan // Science, 2015, V. 347, № 6223, pp. 760–764.
MacPhee R. D. E., Cartmill M. et Rose K. D. Craniodental morphology and relationships of the supposed Eocene dermopteran Plagiomene (Mammalia) // Journal of Vertebrate Paleontology, 1989, V. 9, № 3, pp. 329–349.
Marivaux L., Beard K. Ch., Chaimanee Y., Jaeger J.-J., Marandat B., Soe A. N., Tun S. Th., Aung H. H. et Htoon W. Anatomy of the bony pelvis of a relatively large-bodied strepsirrhine primate from the late middle Eocene Pondaung Formation (central Myanmar) // JHE, 2008, V. 54, № 3, pp. 391–404.
Marivaux L., Essid E. M., Marzougui W., Ammar H. Kh., Adnet S., Marandat B., Merzeraud G., Ramdarshan A., Tabuce R., Vianey-Liaud M. et Yans J. A morphological intermediate between eosimiiform and simiiform primates from the Late Middle Eocene of Tunisia: macroevolutionary and paleobiogeographic implications of early anthropoids // AJPhA, 2014, V. 154, № 3, pp. 387–401.
Marquer P. Note sur deux empreintes de pieds humains trouvées dans la République Centre-Africaine // Journal de la Société des Africanistes, 1960, T. 30, № 1, pp. 7–14.
Marshack A. Implications of the palaeolithic symbolic evidence for the origin of language // American Scientist, 1976, V. 64, № 2, p. 139.
Marshack A. On palaeolithic ochre and the early uses of color and symbol // Current Anthropology, 1981, V. 22, № 2, p. 188.
Marshack A. Evolution of the human capacity: the symbolic evidence // Yearbook of Physical Anthropology, 1989, V. 32, pp. 1–34.
Marshall L. G. et Muizon de C. The dawn of the age of mammals in South America // National Geographic Research, 1988, V. 4, № 1, pp. 23–55.
Martin Th. Postcranial anatomy of Haldanodon exspectatus (Mammalia, Docodonta) from the Late Jurassic (Kimmeridgian) of Portugal and its bearing for mammalian evolution // Zoological Journal of the Linnean Society, 2005, V. 145, pp. 219–248.
Martin J. E., Case J. A., Jagt J. W. M., Schulp A. S. et Mulder E. W. A. A New European marsupial indicates a Late Cretaceous high-latitude transatlantic dispersal route // Journal of Mammalian Evolution, 2005, V. 12, № 3/4, pp. 495–511.
Martínez I., Rosa M., Arsuaga J.-L., Jarabo P., Quam R., Lorenzo C., Gracia A., Carretero J.-M., Bermúdez de Castro J.-M. et Carbonell E. Auditory capacities in Middle Pleistocene humans from the Sierra de Atapuerca in Spain // PNAS, 2004, V. 101, № 27, pp. 9976–9981.
Marzke M. W. et Shrewsbury M. M. The Oreopithecus thumb: pitfalls in reconstructing muscle and ligament attachments from fossil bones // JHE, 2006, V. 51, № 2, pp. 213–215.
McBrearty S. et Jablonski N. G. First fossil chimpanzee // Nature, 2005, V. 437, № 7055, pp. 105–108.
McCrossin M. L. et Benefit B. R. Comparative assessment of the ischial morphology of Victoriapithecus macinnesi // AJPhA, 1992, V. 87, № 3, pp. 277–290.
McLean C. Y., Reno Ph. L., Pollen A. A., Bassan A. I., Capellini T. D., Guenther C., Indjeian V. B., Lim X., Menke D. B., Schaar B. T., Wenger A. M., Bejerano G. et Kingsley D. M. Human-specific loss of regulatory DNA and the evolution of human-specific traits // Nature, 2011, V. 471, № 7337, pp. 216–219.
McNulty K. P., Begun D. R., Kelley J., Manthi F. K. et Mbua E. N. A systematic revision of Proconsul with the description of a new genus of early Miocene hominoid // JHE, 2015, V. 86, pp. 42–61.
Mednikova M. B. A proximal pedal phalanx of a Paleolithic hominin from Denisova Cave, Altai // Archaeology, Ethnology and Anthropology of Eurasia, 2011, V. 39, № 1, pp. 129–138.
Mednikova M. B. Distal phalanx of the hand of Homo from Denisova cave stratum 12: a tentative description // Archaeology, Ethnology and Anthropology of Eurasia, 2013, V. 41, № 2, pp. 146–155.
Mednikova M. B., Dobrovolskaya M. V., Viola B., Lavrenyuk A. V., Kazansky P. R., Shklover V. Y., Shunkov M. V. et Derevianko A. P. A micro computerized tomography (X-ray microscopy) of the hand phalanx of the Denisova girl // Archaeology, Ethnology and Anthropology of Eurasia, 2013, V. 41, № 3, pp. 120–125.
Meng J., Hu Y., Wang Y., Wang X. et Li Ch. A Mesozoic gliding mammal from northeastern China // Nature, 2006, V. 444, № 7121, pp. 889–893.
Meng Q.-J., Ji Q., Zhang Y.-G., Liu D., Grossnickle D. M. et Luo Zh.-X. An arboreal docodont from the Jurassic and mammaliaform ecological diversification // Science, 2015, V. 347, № 6223, pp. 760–764.
Meredith M. Human vomeronasal organ function: a critical review of best and worst cases // Chemical senses and flavor, 2001, V. 26, № 4, pp. 433–445.
Meredith R. W., Janecka J. E., Gatesy J., Ryder O. A., Fisher C. A., Teeling E. C., Goodbla A., Eizirik E., Simão T. L. L., Stadler T., Rabosky D. L., Honeycutt R. L., Flynn J. J., Ingram C. M., Steiner C., Williams T. L., Robinson T. J., Burk-Herrick A., Westerman M., Ayoub N. A., Springer M. S. et Murphy W. J. Impacts of the Cretaceous Terrestrial Revolution and KPg extinction on mammal diversification // Science, 2011, V. 334, № 6055, pp. 521–524.
Meyer M., Kircher M., Gansauge M.-Th., Li H., Racimo F., Mallick S., Schraiber J. G., Jay F., Prüfer K., Filippo de C., Sudmant P. H., Alkan C., Fu Q., Do R., Rohland N., Tandon A., Siebauer M., Green R. E., Bryc K., Briggs A. W., Stenzel U., Dabney J., Shendure J., Kitzman J., Hammer M. F., Shunkov M. V., Derevianko A. P., Patterson N., Andrés A. M., Eichler E. E., Slatkin M., Reich D., Kelso J. et Pääbo S. A high-coverage genome sequence from an archaic Denisovan individual // Science, 2012, V. 338, № 6104, pp. 222–226.
Meyer M., Fu Q., Aximu-Petri A., Glocke I., Nickel B., Arsuaga J. L., Martínez I., Gracia A., Bermudez de Castro J. M., Carbonell E. et Pääbo S. A mitochondrial genome sequence of a hominin from Sima de los Huesos // Nature, 2013, V. 505, № 7483, pp. 403–406.
Meyer M., Arsuaga J.-L., Filippo de C., Nagel S., Aximu-Petri A., Nickel B., Martínez I., Gracia A., Bermúdez de Castro J. M., Carbonell E., Viola B., Kelso J., Prüfer K. et Pääbo S. Nuclear DNA sequences from the Middle Pleistocene Sima de los Huesos hominins // Nature, 2016, V. 531, № 7595, pp. 504–507.
Mindell D. P., Dick Ch. W. et Baker R. J. Phylogenetic relationships among megabats, microbats, and primates // PNAS, 1991, V. 88, № 22, pp. 10322–10326.
Moffat A. S. New fossils and a glimpse of evolution // Science, 2002, V. 295, № 5555, pp. 613–615.
Monti-Bloch L., Jennings-White C. et Berliner D. L. The human vomeronasal system: a review // Annals of the New York Academy of Sciences, 1998, V. 855, Olfaction and taste, pp. 373–389.
Morgan M. E., Lewton K. L., Kelley J., Otárola-Castillo E., Barry J. C., Flynn L. J. et Pilbeam D. A partial hominoid innominate from the Miocene of Pakistan: description and preliminary analyses // PNAS, 2015, V. 112, № 1, pp. 82–87.
Morin E. et Laroulandie V. Presumed symbolic use of diurnal raptors by Neanderthals // PLoS ONE, 2012, V. 7, № 3, p. e32856.
Morwood M. J. et Jungers W. L. Conclusions: implications of the Liang Bua excavations for hominin evolution and biogeography // JHE, 2009, V. 57, № 5, pp. 640–648.
Morwood M. et Van Oosterzee P. The Discovery of the Hobbit. The Scientific Breakthrough That Changed the Face of Human History. New York, Random House, 2007, 326 p.
Morwood M. J., Brown P., Jatmiko, Sutikna T., Saptomo W. E., Westaway K. E., Due R. A., Roberts R. G., Maeda T., Wasisto S. et Djubiantono T. Further evidence for small-bodied hominins from the Late Pleistocene of Flores, Indonesia // Nature, 2005, V. 437, № 7061, pp. 1012–1017.
Moyà-Solà S., Köhler M. et Rook L. Evidence of hominid-like precision grip capability in the hand of the Miocene ape Oreopithecus // PNAS, 1999, V. 96, № 1, pp. 313–317.
Moyà-Solà S., Köhler M. et Rook L. The Oreopithecus thumb: a strange case in hominoid evolution // JHE, 2005, V. 49, № 3, pp. 395–404.
Muizon de C. et McDonald H. G. An aquatic sloth from the Pliocene of Peru // Nature, 1995, V. 375, № 6528, pp. 224–227.
Mustoe G. E., Tucker D. S. et Kemplin K. L. Giant Eocene bird footprints from northwest Washington, USA // Palaeontology, 2012, V. 55, № 6, pp. 1293–1305.
Nakatsukasa M. Acquisition of bipedalism: the Miocene hominoid record and modern analogues for bipedal protohominids // Journal of Anatomy, 2004, V. 204, № 5, pp. 385–402.
Nakatsukasa M., Tsujikawa H., Shimizu D., Takano T., Kunimatsu Y., Nakano Y. et Ishida H. Definitive evidence for tail loss in Nacholapithecus, an East African Miocene hominoid // JHE, 2003, V. 45, № 2, pp. 179–186.
Nakatsukasa M., Ward C. V., Walker A., Teaford M. F., Kunimatsu Y. et Ogihara N. Tail loss in Proconsul heseloni // JHE, 2004, V. 46, № 6, pp. 777–784.
Nargolwalla M. C., Begun D. R., Dean M. C., Reid D. J. et Kordos L. Dental development and life history in Anapithecus hernyaki // JHE, 2005, V. 49, № 1, pp. 99–121.
Nekaris K. A.-I., Moore R. S., Rode E. J. et Fry B. G. Mad, bad and dangerous to know: the biochemistry, ecology and evolution of slow loris venom // Journal of Venomous Animals and Toxins including Tropical Diseases, 2013, V. 19, p. 21.
Newman T. K., Jolly C. J. et Rogers J. Mitochondrial phylogeny and systematics of baboons (Papio) // AJPhA, 2004, V. 124, № 1, pp. 17–27.
Ni X., Gebo D. L., Dagosto M., Meng J., Tafforeau P., Flynn J. J. et Beard K. Ch. The oldest known primate skeleton and early haplorhine evolution // Nature, 2013, V. 498, № 7452, pp. 60–64.
Nishikimi M., Kawai T. et Yagi K. Guinea pigs possess a highly mutated gene for L-gulono-gamma-lactone oxidase, the key enzyme for L-ascorbic acid biosynthesis missing in the species // The Journal of Biological Chemistry, 1992, V. 267, № 30, pp. 21967–21972.
Nowell A. et Chase Ph. G. Taphonomy of a purported Mousterian bone flute from Divje Babe I, Slovenia // JHE, 1998, V. 34, № 3, p. A16.
Obendorf P. J., Oxnard C. E. et Kefford B. J. Are the small human-like fossils found on Flores human endemic cretins? // PRS, 2008, V. 275, № 1640, pp. 1287–1296.
O'Donnell S., Bulova S. J., DeLeon S., Khodak P., Miller S. et Sulger E. Distributed cognition and social brains: reductions in mushroom body investment accompanied the origins of sociality in wasps (Hymenoptera: Vespidae) // PRS, 2015, V. 282, № 20150791, pp. 1–6.
Ohta Y. et Nishikimi M. Random nucleotide substitutions in primate nonfunctional gene for L-gulono-gamma-lactone oxidase, the missing enzyme in L-ascorbic acid biosynthesis // Biochimica et Biophysica Acta, 1999, V. 1472, № 1–2, pp. 408–411.
Orban R., Semal P. et Twiesselmann F. Sur la biométrie des mandibules et des dents humaines d'Ishango (LSA, République démocratique du Congo) // Bulletins et Mémoires de la Société d'anthropologie de Paris, 2001, T. 13, № 1–2, pp. 1–13.
Orkin J. D. et Pontzer H. The narrow niche hypothesis: gray squirrels shed new light on primate origins // AJPhA, 2011, V. 144, № 4, pp. 617–624.
Orr C. M., Tocheri M. W., Burnett S. E., Due R. A., Saptomo E. W., Sutikna Th., Jatmiko, Wasisto S., Morwood M. J. et Jungers W. L. New wrist bones of Homo floresiensis from Liang Bua (Flores, Indonesia) // JHE, 2013, V. 64, № 2, pp. 109–129.
Patel B. A., Susman R. L., Rossie J. B. et Hill A. Terrestrial adaptations in the hands of Equatorius africanus revisited // JHE, 2009, V. 57, № 6, pp. 763–772.
Pearce E., Stringer Ch. et Dunbar R. I. M. New insights into differences in brain organization between Neanderthals and anatomically modern humans // PRS, 2013, V. 280, № 20130168, pp. 1–7.
Penkrot T. A., Zack Sh. P., Rose K. D. et Bloch J. I. Postcranial morphology of Apheliscus and Haplomylus (Condylarthra, Apheliscidae): evidence for a Paleocene Holarctic origin of Macroscelidea // Mammalian Evolutionary Morphology: A Tribute to Frederick S. Szalay. Eds. E. J. Sargis et M. Dagosto. 2008, pp. 73–106.
Peresani M., Fiore I., Gala M., Romandini M. et Tagliacozzo A. Late Neandertals and the intentional removal of feathers as evidenced from bird bone taphonomy at Fumane Cave 44 ky B. P., Italy // PNAS, 2011, V. 108, № 10, pp. 3888–3893.
Perry G. H., Foll M., Grenier J.-Ch., Patin E., Nédélec Y., Pacis A., Barakatt M., Gravel S., Zhou X., Nsobya S. L., Excoffier L., Quintana-Murci L., Dominy N. J. et Barreiro L. B. Adaptive, convergent origins of the pygmy phenotype in African rainforest hunter-gatherers // PNAS, 2014, V. 111, № 35, pp. E3596 – E3603.
Pettigrew J. D. Flying primates? Megabats have the advanced pathway from eye to midbrain // Science, 1986, V. 231, № 4743, pp. 1304–1346.
Pettigrew J. D., Jamieson B. G., Robson S. K., Hall L. S., McAnally K. I. et Cooper H. M. Phylogenetic relations between microbats, megabats and primates (Mammalia: Chiroptera and Primates) // Philosophical Transactions of the Royal Society of London, Series B, Biological Sciences, 1989, V. 325, № 1229, pp. 489–559.
Pettigrew J. D., Maseko B. C. et Manger P. R. Primate-like retinotectal decussation in an echolocating megabat, Rousettus aegyptiacus // Neuroscience, 2008, V. 153, № 1, pp. 226–231.
Pfenning A. R., Hara E., Whitney O., Rivas M. V., Wang R., Roulhac P. L., Howard J. T., Wirthlin M., Lovell P. V., Ganapathy G., Mouncastle J., Moseley M. A., Thompson J. W., Soderblom E. J., Iriki A., Kato M., Gilbert M. Th. P., Zhang G., Bakken T., Bongaarts A., Bernard A., Lein E., Mello C. V., Hartemink A. J. et Jarvis E. D. Convergent transcriptional specializations in the brains of humans and song-learning birds // Science, 2014, V. 346, № 6215, pp. 1256846–1–13.
Pickford M., Senut B., Gommery D. et Musiime E. Distinctiveness of Ugandapithecus from Proconsul. La distinción entre Ugandapithecus y Proconsul // Estudios Geológicos, 2009, V. 65, № 2, pp. 183–241.
Prado-Martinez J., Sudmant P. H., Kidd J. M., Li H., Kelley J. L., Lorente-Galdos B., Veeramah K. R., Woerner A. E., O'Connor T. D., Santpere G., Cagan A., Theunert Ch., Casals F., Laayouni H., Munch K., Hobolth A., Halager A. E., Malig M., Hernandez-Rodriguez J., Hernando-Herraez I., Prüfer K., Pybus M., Johnstone L., Lachmann M., Alkan C., Twigg D., Petit N., Baker C., Hormozdiari F., Fernandez-Callejo M., Dabad M., Wilson M. L., Stevison L., Camprubi C., Carvalho T., Ruiz-Herrera A., Vives L., Mele M., Abello T., Kondova I., Bontrop R. E., Pusey A., Lankester F., Kiyang J. A., Bergl R. A., Lonsdorf E., Myers S., Ventura M., Gagneux P., Comas D., Siegismund H., Blanc J., Agueda-Calpena L., Gut M., Fulton L., Tishkoff S. A., Mullikin J. C., Wilson R. K., Gut I. G., Gonder M. K., Ryder O. A., Hahn B. H., Navarro A., Akey J. M., Bertranpetit J., Reich D., Mailund Th., Schierup M. H., Hvilsom Ch., Andres A. M., Wall J. D., Bustamante C. D., Hammer M. F., Eichler E. E. et Marques-Bonet T. Great ape genetic diversity and population history // Nature, 2013, V. 499, № 7459, pp. 471–475.
Prasad G. V. R., Verma O., Sahni A., Parmar V. et Khosla A. A Cretaceous hoofed mammal from India // Science, 2007, V. 318, № 5852, p. 937.
Putnam N. H., Butts Th., Ferrier D. E. K., Furlong R. F., Hellsten U., Kawashima T., Robinson-Rechavi M., Shoguchi E., Terry A., Yu J.-K., Benito-Gutiérrez E., Dubchak I., Garcia-Fernàndez J., Gibson-Brown J. J., Grigoriev I. V., Horton A. C., Jong de P. J., Jurka J., Kapitonov V. V., Kohara Y., Kuroki Y., Lindquist E., Lucas S., Osoegawa K., Pennacchio L. A., Salamov A. A., Satou Y., Sauka-Spengler T., Schmutz J., Shin-I T., Toyoda A., Bronner-Fraser M., Fujiyama A., Holland L. Z., Holland P. W. H., Satoh N., et Rokhsar D. S. The Amphioxus genome and the evolution of the chordate karyotype // Nature, 2008, V. 453, № 7198, pp. 1064–1071.
Radinsky L. Aegyptopithecus endocasts: oldest record of a pongid brain // AJPhA, 1973, V. 39, № 2, pp. 239–247.
Radovčić D., Sršen A. O., Radovčić J. et Frayer D. W. Evidence for Neandertal jewelry: modified white-tailed eagle claws at Krapina // PLoS ONE, 2015, V. 10, № 3, p. e0119802, 14 p.
Ramdarshan A., Merceron G., Tafforeau P. et Marivaux L. Dietary reconstruction of the Amphipithecidae (Primates, Anthropoidea) from the Paleogene of South Asia and paleoecological implications // JHE, 2010, V. 59, № 1, pp. 96–108.
Reich D., Green R. E., Kircher M., Krause J., Patterson N., Durand E. Y., Viola B., Briggs A. W., Stenzel U., Johnson Ph. L. F., Maricic T., Good J. M., Marques-Bonet T., Alkan C., Fu Q., Mallick S., Li H., Meyer M., Eichler E. E., Stoneking M., Richards M., Talamo S., Shunkov M. V., Derevianko A. P., Hublin J.-J., Kelso J., Slatkin M. et Pääbo S. Genetic history of an archaic hominin group from Denisova Cave in Siberia // Nature, 2010, V. 468, № 7327, pp. 1053–1060.
Reich D., Patterson N., Kircher M., Delfin F., Nandineni M. R., Pugach I., Ko A. M.-Sh., Ko Y.-Ch., Jinam T. A., Phipps M. E., Saitou N., Wollstein A., Kayser M., Pääbo S. et Stoneking M. Denisova admixture and the first modern human dispersals into Southeast Asia and Oceania // The American Journal of Human Genetics, 2011, V. 89, № 4, pp. 516–528.
Rendu W., Beauval C., Crevecoeur I., Bayle P., Balzeau A., Bismuth Th., Bourguignon L., Delfour G., Faivre J.-Ph., Lacrampe-Cuyaubère F., Tavormina C., Todisco D., Turq A. et Maureille B. Evidence supporting an intentional Neandertal burial at La Chapelle-aux-Saints // PNAS, 2014, V. 111, № 1, pp. 81–86.
Rinderknecht A. et Blanco R. E. The largest fossil rodent // PRS, 2008, V. 275, № 1637, pp. 923–928.
Rodríguez-Vidal J., d'Errico F., Pacheco F. G., Blasco R., Rosell J., Jennings R. P., Queffelec A., Finlayson G., Fa D. A., López J. M. G., Carrión J. S., Negro J. J., Finlayson S., Cáceres L. M., Bernal M. A., Jiménez S. F. et Finlayson C. A rock engraving made by Neanderthals in Gibraltar // PNAS, 2014, V. 111, № 37, pp. 13301–13306.
Roebroeks W., Sier M. J., Nielsen T. K., De Loecker D., Parés J. M., Arps Ch. E. S. et Mücher H. J. Use of red ochre by early Neandertals // PNAS, 2012, V. 109, № 6, pp. 1889–1894.
Rook L., Bondioli L., Köhler M., Moyà-Solà S. et Macchiarelli R. Oreopithecus was a bipedal ape after all: evidence from the iliac cancellous architecture // PNAS, 1999, V. 96, № 15, pp. 8795–8799.
Rook L., Renne P., Benvenuti. M et Papini M. Geochronology of Oreopithecus-bearing succession at Baccinello (Italy) and the extinction pattern of European Miocene hominoids // JHE, 2000, V. 39, № 6, pp. 577–582.
Rook L., Bondioli L., Casali F., Rossi M., Köhler M., Moyà-Solà S. et Macchiarelli R. The bony labyrinth of Oreopithecus bambolii // JHE, 2004, V. 46, № 3, pp. 347–354.
Rook L., Oms O., Benvenuti M. G. et Papini M. Magnetostratigraphy of the Late Miocene Baccinello – Cinigiano basin (Tuscany, Italy) and the age of Oreopithecus bambolii faunal assemblages // Palaeogeography, Palaeoclimatology, Palaeoecology, 2011, V. 305, № 1–4, pp. 286–294.
Rose M. D. Further hominoid postcranial specimens from the Late Miocene Nagri Formation of Pakistan // JHE, 1986, V. 15, № 5, pp. 333–367.
Rose M. D., Leakey M. G., Leakey R. E. F. et Walker A. C.Postcranial specimens of Simiolus enjiessi and other primitive catarrhines from the early Miocene of Lake Turkana, Kenya // JHE, 1992, V. 22, № 3, pp. 171–237.
Rosenberger A. L. et Hogg R. On Bahinia pondaungensis, an alleged early anthropoid // PaleoAnthropology, 2007, pp. 26–30.
Rossie J. B. Anatomy of the nasal cavity and paranasal sinuses in Aegyptopithecus and Early Miocene African catarrhines // AJPhA, 2005, V. 126, № 3, pp. 250–267.
Rossie J. B. et MacLatchy L. Dentognathic remains of an Afropithecus individual from Kalodirr, Kenya // JHE, 2013, V. 65, № 2, pp. 199–208.
Russell D. A. et Séguin R. Reconstruction of the small Cretaceous theropod Stenonychosaurus inequalis and a hypothetical dinosauroid // Syllogeus, 1982, V. 37, pp.1–43.
Russo G. A. et Shapiro L. J. Reevaluation of the lumbosacral region of Oreopithecus bambolii // JHE, 2013, V. 65, № 3, pp. 253–265.
Russon A. E., Compost A., Kuncoro P. et Ferisa A. Orangutan fish eating, primate aquatic fauna eating, and their implications for the origins of ancestral hominin fish eating // JHE, 2014, V. 77, pp. 50–63.
Rydell J. et Speakman J. R. Evolution of nocturnality in bats – potential competitors and predators in their early history // Biological Journal of the Linnaean Society, 1995, V. 54, pp. 183–191.
Sagan C. The Dragons of Eden: Speculations on the Evolution of Human Intelligence. Random House, 1977, 263 p.
Samson D. R. et Nunn Ch. L. Sleep intensity and the evolution of human cognition // Evolutionary Anthropology: Issues, News, and Reviews, 2015, V. 24, № 6, pp. 225–237.
Sánchez-Villagra M. R., Aguilera O. et Horovitz I. The anatomy of the world's largest extinct rodent // Science, 2003, V. 301, № 5640, pp. 1708–1710.
Sankhyan A. R. Fossil clavicle of a Middle Pleistocene hominid from the Central Narmada Valley, India // JHE, 1997, V. 32, № 1, pp. 3–16.
Schaik van C. P. Fragility of traditions: the disturbance hypothesis for the loss of local traditions in orangutans // International Journal of Primatology, 2002, V. 23, № 3, pp. 527–538.
Schwartz J. H. et Tattersall I. Whose teeth? // Nature, 1996, V. 381, № 6579, pp. 201–202.
Scott R. S., Teaford M. F. et Ungar P. S. Dental microwear texture and anthropoid diets // AJPhA, 2012, V. 147, № 4, pp. 551–579.
Senut B., Pickford M., Braga J., Marais D. et Coppens Y. Découverte d'un Homo sapiens archaïque à Oranjemund, Namibie // CRAS, 2000, sér. IIa, V. 330, № 11, pp. 813–819.
Seiffert E. R. The oldest and youngest records of afrosoricid placentals from the Fayum Depression of northern Egypt // Acta Palaeontologica Polonica, 2010, V. 55, № 4, pp. 599–616.
Seiffert E. R. et Simons E. L. Last of the oligopithecids? A dwarf species from the youngest primate-bearing level of the Jebel Qatrani Formation, northern Egypt // JHE, 2013, V. 64, № 3, pp. 211–215.
Silcox M. T. New discoveries on the middle ear anatomy of Ignacius graybullianus (Paromomyidae, Primates) from ultra high resolution X-ray computed tomography // JHE, 2003, V. 44, № 1, pp. 73–86.
Simmons N. B., Seymour K. L., Habersetzer J. et Gunnell G. F. Primitive Early Eocene bat from Wyoming and the evolution of flight and echolocation // Nature, 2008, V. 451, № 7180, pp. 818–822.
Simons E. L. New faces of Aegyptopithecus from the Oligocene of Egypt // JHE, 1987, V. 16, № 3, pp. 273–289.
Simons E. L., Holroyd P. A. et Bown Th. M. Early tertiary elephant-shrews from Egypt and the origin of the Macroscelidea // PNAS, 1991, V. 88, № 21, pp. 9734–9737.
Simons E. L., Plavcan J. M. et Fleagle J. G. Canine sexual dimorphism in Egyptian Eocene anthropoid primates: Catopithecus and Proteopithecus // PNAS, 1999, V. 96, № 5, pp. 2559–2562.
Simons E. L., Seiffert E. R., Ryan T. M. et Attia Y. A remarkable female cranium of the early Oligocene anthropoid Aegyptopithecus zeuxis (Catarrhini, Propliopithecidae) // PNAS, 2007, V. 104, № 21, pp. 8731–8736.
Simpson G. G. The Tiffany fauna, Upper Paleocene. I. – Multituberculata, Marsupialia, Insectivora and?Chiroptera // American Museum Novitates, 1935, № 795, pp. 1–19.
Simpson G. G. The Tertiary lorisiform primates of Africa // Bulletin of the Museum of Comparative Zoology, 1967, V. 136, pp. 39–62.
Smith Th., De Bast E. et Sigé B. Euarchontan affinity of Paleocene Afro-European adapisoriculid mammals and their origin in the late Cretaceous Deccan Traps of India // Naturwissenschaften, 2010, V. 97, pp. 417–422.
Solecki R. S. Shanidar. The First Flower People. New York, Knopf, 1971, 290 p.
Solecki R. S. Shanidar IV, a neanderthal flower burial in Northern Iraq // Science, 1975, V. 190, № 4217, pp. 880–881.
Sommer J. D. The Shanidar IV 'Flower Burial': a re-evaluation of Neanderthal burial ritual // Cambridge Archaeological Journal, 1999, V. 9, № 1, pp. 127–129.
Spassov N., Geraads D., Hristova L., Markov G. N., Merceron G., Tzankov T., Stoyanov K., Böhme M. et Dimitrova A. A hominid tooth from Bulgaria: the last pre-human hominid of continental Europe // JHE, 2012, V. 62, № 1, pp. 138–145.
Speakman J. R. The evolution of flight and echolocation in bats: another leap in the dark // Mammal Review, 2001, V. 31, № 2, pp. 111–130.
Sponheimer M., Alemseged Z., Cerling Th. E., Grine F. E., Kimbel W. H., Leakey M. G., Lee-Thorp J. A., Manthi F. K., Reed K. E., Wood B. A. et Wynn J. G. Isotopic evidence of early hominin diets // PNAS, 2013, V. 110, № 26, pp. 10513–10518.
Stein W. E., Mannolini F., Hernick L. V. A., Landing E. et Berry Ch. M. Giant cladoxylopsid trees resolve the enigma of the Earth's earliest forest stumps at Gilboa // Nature, 2007, V. 446, № 7138, pp. 904–907.
Stein W. E., Berry Ch. M., Hernick L. V. A. et Mannolini F. Surprisingly complex community discovered in the mid-Devonian fossil forest at Gilboa // Nature, 2012, V. 483, № 7387, pp. 78–81.
Stevens N. J., Seiffert E. R., O'Connor P. M., Roberts E. M., Schmitz M. D., Krause C., Gorscak E., Ngasala S., Hieronymus T. L. et Temu J. Palaeontological evidence for an Oligocene divergence between Old World monkeys and apes // Nature, 2013, V. 497, № 7451, pp. 611–614.
Stojanowski Ch. M. Iwo Eleru's place among Late Pleistocene and Early Holocene populations of North and East Africa // JHE, 2014, V. 75, pp. 80–89.
Susman R. L. Oreopithecus bambolii: an unlikely case of hominidlike grip capability in a Miocene ape // JHE, 2004, V. 46, № 1, pp. 105–117.
Susman R. L. Oreopithecus: still apelike after all these years // JHE, 2005, V. 49, № 3, pp. 405–411.
Sussman R. W. Primate origins and the evolution of Angiosperms // American Journal of Primatology, 1991, V. 23, № 4, pp. 209–223.
Sutikna Th., Tocheri M. W., Morwood M. J., Saptomo E. W., Jatmiko, Awe R. D., Wasisto S., Westaway K. E., Aubert M., Li B., Zhao J.-x., Storey M., Alloway B. V., Morley M. W., Meijer H. J. M., Bergh van den G. D., Grün R., Dosseto A., Brumm A., Jungers W. L. et Roberts R. G. Revised stratigraphy and chronology for Homo floresiensis at Liang Bua in Indonesia // Nature, 2016, V. 532, № 7599, pp. 366–369.
Suwa G., Kono R. T., Katoh Sh., Asfaw B. et Beyene Y. A new species of great ape from the late Miocene epoch in Ethiopia // Nature, 2007, V. 448, № 7156, pp. 921–924.
Szalay F. S. Mixodectidae, Microsyopidae, and the insectivore-primate transition // Bulletin of the American Museum of Natural History, New York, 1969, V. 140, article 4, pp. 193–330.
Szalay F. S. et Delson E. Evolutionary history of the Primates. New York, Academic Press, 1979.
Tabuce R., Coiffait B., Coiffait Ph.-E., Mahboubi M. et Jaeger J.-J. A new genus of Macroscelidea (Mammalia) from the Eocene of Algeria: a possible origin for elephant-shrews // Journal of Vertebrate Paleontology, 2001, V. 21, № 3, pp. 535–546.
Tabuce R., Marivaux L., Lebrun R., Adaci M., Bensalah M., Fabre P.-H., Fara E., Rodrigues H. G., Hautier L., Jaeger J.-J., Lazzari V., Mebrouk F., Peigné S., Sudre J., Tafforeau P., Valentin X. et Mahboubi M. Anthropoid versus strepsirhine status of the African Eocene primates Algeripithecus and Azibius: craniodental evidence // PRS, 2009, V. 276, № 1676, pp. 4087–4094.
The Minatogawa Man. The Upper Pleistocene Man From the Island of Okinawa. Eds. H. Suzuki et K. Hanihara. Tokyo, University of Tokyo Press, 1982.
Thoen H. H., How M. J., Chiou T.-H. et Marshall J. A different form of color vision in mantis shrimp // Science, 2014, V. 343, № 6169, pp. 411–413.
Thomas H., Şen Ş., Roger J. et Al-Sulaimani Z. The discovery of Moeripithecus markgrafi Schlosser (Propliopithecidae, Anthropoidea, Primates), in the Ashawq Formation (Early Oligocene of Dhofar Province, Sultanate of Oman) // JHE, 1991, V. 20, № 1, pp. 33–49.
Tocheri M. W., Orr C. M., Larson S. G., Sutikna T., Jatmiko, Saptomo E. W., Due R. A., Djubiantono T., Morwood M. J. et Jungers W. L. The primitive wrist of Homo floresiensis and its implications for hominin evolution // Science, 2007, V. 317, № 5845, pp. 1743–1745.
Trinkaus E. The Shanidar Neandertals. New York, Academic Press, London et Academic, 1983, 502 p.
Tuttle R. H. et Rogers Ch. M. Genetic and selective factors in reduction of the hallux in Pongo pygmaeus // AJPhA, 1966, V. 24, № 2, pp. 191–198.
Utrilla P., Mazo C., Sopena M. C., Martinez-Bea M. et Domingo R. A palaeolithic map from 13,660 calBP: engraved stone blocks from the Late Magdalenian in Abauntz Cave (Navarra, Spain) // JHE, 2009, 57, № 2, pp. 99–111.
Van Valen L. New Paleocene insectivores and insectivore classification // Bulletin of the American Museum of Natral History, New York, 1967, V. 135, article 5, pp. 217–284.
Varki A. et Gagneux P. Human-specific evolution of sialic acid targets: explaining the malignant malaria mystery? // PNAS, 2009, V. 106, № 35, pp. 14739–14740.
Vendramini D. Them and Us: Neanderthal Predation and the Bottleneck Speciation of Modern Humans. Armindale, 2009, 51 p.
Venkataraman V. V., Kraft Th. S. et Dominy N. J. Tree climbing and human evolution // PNAS, 2013, V. 110, № 4, pp. 1237–1242.
Vernet J. L. Les fragments ligneux wurmiens de la grotte de Shanidar (Iraq) // Paléorient, 1981, V. 7, № 1, pp. 141–144.
Verrelli B. C. et Tishkoff S. A. Signatures of selection and gene conversion associated with human color vision variation // The American Journal of Human Genetics, 2004, V. 75, № 3, pp. 363–375.
Veselka N., McErlain D. D., Holdsworth D. W., Eger J. L., Chhem R. K., Mason M. J., Brain K. L., Faure P. A. et Fenton M. B. A bony connection signals laryngeal echolocation in bats // Nature, 2010, V. 463, № 7283, pp. 939–942.
Walker A. C. True affinities of Propotto leakeyi Simpson, 1967 // Nature, 1969, V. 223, № 5206, pp. 647–648.
Wanpo H., Ciochon R., Yumin G., Larick R., Qiren F., Schwarcz H., Yonge C., Vos de J. et Rink W. Early Homo and associated artifacts from Asia // Nature, 1995, V. 378, № 6554, pp. 275–278.
Ward C. V., Walker A. et Teaford M. F. Proconsul did not have a tail // JHE, 1991, V. 21, № 3, pp. 215–220.
Ward C. V., Tocheri M. W., Plavcan J. M., Brown F. H. et Manthi F. K. Early Pleistocene third metacarpal from Kenya and the evolution of modern human-like hand morphology // PNAS, 2014, V. 111, № 1, pp. 121–124.
Wells N. A. et Gingerich P. D. Review of Eocene Anthracobunidae (Mammalia, Proboscidea) with a new genus and species, Jozaria palustris, from the Kuldana Formation of Kohat (Pakistan) // Contributions from the Museum of Paleontology, The University of Michigan, 1983, V. 26, № 7, pp. 117–139.
West R. M. et Dawson M. R. Vertebrale paleontology and the Cenozoic history of the North Atlantic region // Polarforschung, 1978, V. 48, № 1/2, pp. 103–119.
Westaway K. E. Reconstructing the Quaternary landscape evolution and climate history of western Flores: an environmental and chronological context for an archaeological site. GeoQUeST Research Center, School of Earth an Environmental Sciences, 2006, 415 p.
Weston E. M. et Lister A. M. Insular dwarfism in hippos and a model for brain size reduction in Homo floresiensis // Nature, 2009, V. 459, № 7243, pp. 85–88.
Whitworth R. T. A fossil hominid from Rudolf // The South African Archaeological Bulletin, 1966, V. 21, № 83, pp. 138–150.
Wible J. R., Rougier G. W., Novacek M. J. et Asher R. J. Cretaceous eutherians and Laurasian origin for placental mammals near the K/T boundary // Nature, 2007, V. 447, № 7147, pp. 1003–1006.
Wiens F., Zitzmann A., Lachance M.-A., Yegles M., Pragst F., Wurst F. M., Holst von D., Guan S. L. et Spanagel R. Chronic intake of fermented floral nectar by wild treeshrews // PNAS, 2008, V. 105, № 30, pp. 10426–10431.
Williams F. L'E. Enamel microwear texture properties of IGF 11778 (Oreopithecus bambolii) from the late Miocene of Baccinello, Italy // Journal of Anthropological Sciences, 2013, V. 91, pp. 201–217.
Zalmout I. S., Sanders W. J., MacLatchy L. M., Gunnell G. F., Al-Mufarreh Y. A., Ali M. A., Nasser A.-A. H., Al-Masari A. M., Al-Sobhi S. A., Nadhra A. O., Matari A. H., Wilson J. A. et Gingerich Ph. D. New Oligocene primate from Saudi Arabia and thedivergence of apes and Old World monkeys // Nature, 2010, V. 466, № 7304, pp. 360–364.
Zapfe H. Die primatenfunde aus der miozanen Spaltenfullung von Neudorf an der March (Devinska Nova Ves), Tschechoslovakei. Mit anhang: der Primaten fund aus dem Miozan von Klein Hadersdorf in Niederosterreich // Abhandlungen der schweizerische palaontologischen Gesellschaft, 1960, V. 78, pp. 1–293.
Zhang X. Y. et Li C. Fossil hominid discovered at Longlin, Guangxi // Acta Anthropologica Sinica, 1982, V. 1, p. 199.
Zhang X. Y., Zheng L., Yang L. et Bao L. Human fossil and cultural remains from Mengzi, Yunnan // Yunnan Soc., 1990, V. 2, pp. 60–64.
Zhang Y., Kono R. T., Jin Ch., Wang W. et Harrison T. Possible change in dental morphology in Gigantopithecus blacki just prior to its extinction: evidence from the upper premolar enamel-dentine junction // JHE, 2014, V. 75, pp. 166–171.
Список иллюстраций.
Рисунки во вкладке – Роман Евсеев;
Рис. 1, 2, 30 – Давид Хайдаров;
Рис. 3, 4, 7, 8, 10–14, 16–19, 21–25, 29, 31–33, 37, 38 – Илья Мурашев;
Рис. 5, 6, 9, 15, 20, 27, 28, 34, 35, 36, 39, 40 – Ольга Федорчук;
Рис. 26 – Елена Мартыненко.
Сноски.
1.
Перевод И. Рачинского.
2.
Перевод Л. Жданова.
Люди.
Посвящается Инге, Володе и Маше – Моей любимой семье. …а также муравьеду и руконожке.Рассказ о цепях коротких и длинных, непрерывных и оборванных, магистральных и параллельных, прямых и извилистых, о том, из каких звеньев они составлены, и о том, все ли звенья достают, как люди достают эти звенья и как звенья достают людей, о звеньях прочных и не очень, о звеньях главных и второстепенных, о звеньях между звеньями и рядом со звеньями, неотвратимости и случайности, о наследии и следах, много о прошлом, в меру о настоящем и немножко о будущем…
Люди. Часть десятая, последняя, из которой Читатель узнает всю правду о своем происхождении, двуногой родне – дальней и ближней, пращурах, похожих на обезьян и на людей, предках прямых, двоюродных и троюродных, пра1000-дедушках и пра1000-бабушках, их подвигах и неудачах, стремлениях и успехах.
Пролог.
Внепрерывной череде эволюционных событий нет знаков препинания. Родители и потомки почти не отличаются друг от друга, нужны миллионы лет, чтобы количество перешло в качество, и лишь на огромных временных отрезках мы замечаем появление чего-то совсем нового. Поэтому невозможно сказать, в какой конкретно момент начинается “совсем-совсем” наша линия эволюции, когда “совсем” обезьяны становятся “совсем” людьми. Процесс занял сотни тысяч поколений. Изменения климата и колебания уровня океанов, конкуренты и хищники, соседи и унаследованные от предков свойства – причудливая смесь причин и побуждений двигала эволюцию. По пути возникали причудливые существа, многие из них имели неплохие шансы стать истинно разумными, а некоторые даже и стали. Итог известен – мы остались единственным светочем интеллекта на планете. А что привело нас к этому?..
Гоминиды Hominidae включают австралопитековых Australopithecinae и собственно людей Homininae – и пусть кладисты проклянут меня за то, что я отделяю их от шимпанзе и горилл!
Границы подсемейств австралопитековых и людей, как обычно, не слишком четкие. И проблема здесь не в нашей неосведомленности, а как раз в избытке знаний: в последовательном ряду плавно меняющихся форм трудно провести четкую границу: досюда – обезьяны, тут они кончаются, а здесь вот начинаются люди.
Уголок занудства. Для того чтобы избежать опасной конкретики, иногда применяются стадиальные названия. Австралопитеков изредка называют протантропами. Около 2 млн лет назад их потомки потеряли практически все специфические черты сходства с обезьянами и могут называться первыми настоящими людьми, или гомининами; иногда, чтобы подчеркнуть их “истинность”, пользуются термином “эугоминины” – это все люди от хабилисов до нас. Эугоминины, в свою очередь, разделяются на последовательные стадии. Homo habilis и близких гоминид часто называют “ранними Homo” или, реже, эогомининами (“эу” – настоящий, а “эо” – ранний). Из них возникли архантропы (ранних – Homo ergaster и подобных им – можно называть преархантропами, а поздних – Homo heidelbergensis – препалеоантропами). За ними следуют палеоантропы, а венчают процесс неоантропы. До середины XX века считалось, что стадии в процессе накопления эволюции трансформировались и плавно или же скачкообразно сменяли одна другую. В каждый момент времени на Земле существовали представители лишь одной стадии. Такая концепция получила название стадиальной теории. Она подкреплялась также представлениями о последовательной смене археологических культур: олдувайской на ашельскую (нижний палеолит), последней – на мустьерскую (средний палеолит), которую заместил верхний палеолит. Носителями каждой культуры была соответствующая стадия гоминин. В настоящее время практически все ученые склоняются к мысли о более сложном характере эволюции. Дело даже не в том, что некоторые популяции обгоняли остальных по уровню своего развития, а в том, что они эволюционировали по-разному. Кроме того, миграции или же изоляция играли значительную роль в неравномерности распространения признаков по планете. Отдельные особенности могли возникать в разных группах независимо, объединяясь потом вследствие смешений. Такой вариант эволюции называется сетевидной эволюцией. Стадиальные термины до сих пор применяются в научной литературе, но только для удобства разделения материала. В реальности слова “архантропы”, “палеоантропы” и “неоантропы” объединяют подчас весьма отличающиеся группы гоминин. Преимуществом их использования является уход от запутанной систематической номенклатуры, понимаемой разными исследователями по-разному.Обычно древнейшей границей гоминид считают момент отделения ветви шимпанзе. Проблема в том, что ископаемых шимпанзе-то как раз у нас и нет. Вообще палеонтологическая летопись в Африке между 14 и 6 млн лет до обидного неполна – это большей частью изолированные зубы (в Азии, напротив, из этого интервала полно сивапитеков, но они мало что могут рассказать о нашей эволюции). Пока не найдены богатые окаменелостями отложения этого немаленького интервала, остается довольствоваться останками самбуропитека, отавипитека, неназванных гоминоидов Туген-Хиллс и Накали, хорорапитека и накалипитека. Как-никак, а все же они заполняют таинственный промежуток.
Отсутствие богатых находок тем досаднее, что это время было одним из самых важных для нашего появления: гоминоиды выходили в саванны и становились прямоходящими. Пионеры открытых пространств еще не слишком отличались от своих предков, да и не выскочили они сразу на равнину. Долгие и долгие миллионы лет человекообразные жили в редколесьях – леса не высохли в один момент, замещение экосистем происходило достаточно долго, чтобы приматы смогли адаптироваться к новым условиям.

Рис. 1. Схема эволюции гоминид.
Поэтому первые почти-прямоходящие и прямоходящие в строении зубов и черепа имеют намного больше обезьяньего, чем человеческого, и потому выделяются в самостоятельное подсемейство австралопитековых Australopithecinae. Правда, самые ранние из них, открытые сравнительно недавно, отличаются от тех, которых находили на протяжении XX века, отчего многие антропологи остерегаются называть их австралопитеками, предпочитая термин “преавстралопитеки”. Все же удобнее разделять австралопитековых на три группы: ранних, грацильных и массивных.
Австралопитеки – ключевая группа эволюции гоминид. Насколько известно, они никогда не покидали пределов Африки. Находки вне Черного континента, в прошлом приписывавшиеся австралопитекам (Убедийя из Израиля, Мегантроп 1941 года и Моджокерто с Явы), либо крайне фрагментарны и, следовательно, спорны, либо при ближайшем рассмотрении оказались эректусами. Также в Агригенте на Сицилии была найдена загадочная верхняя челюсть, датированная 3,5–5,0 млн лет назад и описанная в 1985 году Дж. Бианчини как Australopithecus sicilianus, но она, судя по всему, принадлежала какой-то обезьяне.
Внутри Африки местонахождения австралопитеков концентрируются в двух основных районах: Восточной Африке (Танзания, Кения и Эфиопия) и Южной Африке. Отдельные находки были сделаны также в Северной Африке; думается, их малое количество связано больше с условиями захоронения и малой изученностью региона, а не с реальным расселением австралопитеков. Ясно, что в столь широких временных и географических рамках природные условия не раз менялись, что приводило к появлению новых видов и родов.
Одновременное сосуществование разных “хороших” видов австралопитеков на одной территории не было твердо доказано ни для одного местонахождения, хотя предположений на этот счет выдвигалось много. Однако сосуществование поздних австралопитеков с “ранними Homo” не вызывает сомнения.
Образ жизни австралопитеков и “ранних Homo”, видимо, был не похож на известный у современных приматов. Они жили в широком диапазоне условий, но чаще в той или иной степени облесенных саваннах. Вообще, реконструированные африканские ландшафты времен первых гоминид чаще всего чрезвычайно мозаичны и часто на небольшой территории включают в себя элементы от открытых сухих саванн до влажных тропических лесов. Возможно, разнообразие ландшафтных зон препятствовало крайней специализации австралопитеков; истоки высокой экологической пластичности современного человека, видимо, можно искать уже в том времени. Австралопитеки питались преимущественно растениями, но гоминиды с самого появления были так или иначе всеядны; мы точно знаем, что поздние австралопитеки и первые Homo охотились на антилоп или отнимали добычу у крупных хищников – львов и гиен.
Некоторые линии австралопитеков зашли в эволюционный тупик. Но они были той единственной уникальной группой, которая смогла перешагнуть грань животного состояния и ступить на путь очеловечивания. И сейчас, благодаря усердному труду антропологов, мы знаем основные этапы и даже многие детали этого пути. А “недостающее звено” превратилось в длинную череду “достающих”.
Глава 1. Обезьянолюди: ранние австралопитеки.
Ранние австралопитеки населяли Африку между 7 и 3,9 млн лет назад. В конце миоцена леса исчезали, саванны наступали, и вот под барабанную дробь, звонкие литавры и голосистые фанфары на сцену выходит…
Сахелянтроп Sahelanthropus tchadensis! И не беда, что у него голова с кулак, ничего, что больше всего он похож на карликовую гориллу, – это действительно он, Великий Предок!
Череп и нижняя челюсть сахелянтропа были найдены французскими исследователями в Северной Африке, в Республике Чад, в Торос-Меналла, и описаны в 2002 году (Brunet et al., 2002); позже добавились еще две нижние челюсти и новый зуб (Brunet et al., 2005). Это древнейший и примитивнейший представитель нашей родной эволюционной линии. По фауне отложения с останками сахелянтропа датированы 6–7 млн лет назад; к сожалению, фауна не меняется быстро, а вулканов, по пеплу коих можно было сделать точную датировку, поблизости не оказалось, так что поначалу приходилось довольствоваться погрешностью в миллион лет. Однако прогресс идет, и уже скоро по соотношению изотопов бериллия в костях антракотериев была получена на полмиллиона лет более точная дата – 6,8–7,2 млн лет назад (Lebatard et al., 2008).

Рис. 2. Череп Sahelanthropus tchadensis.
Череп получил коллекционный номер TM 266-01-60-1, но этот скучный паровозный код, конечно, не мог в должной мере отразить ликование антропологов, которые по сложившейся традиции окрестили его личным именем Тумай. Нам безмерно повезло, что от древнейшего гоминида сохранился целый череп, хотя бы и сильно перекошенный; деформацию же выправили трудолюбивые реставраторы (Zollikofer et al., 2005).
Кстати, об именах… Антропологи тоже любят украшать себе жизнь. Так среди австралопитеков и “ранних Homo” появились “Беби из Таунга”, “Люси”, “Сын Люси”, целых два “ребенка Люси” (одна из них – “Дочка Люси”, или “Селам”), “Первое семейство”, “Миссис Плез” и “Мистер Плез”, “Тумай” и “Арди”, “Миллениум Мен”, или “Человек Тысячелетия”, “Кадануумуу”, или “Большой Человек”, “Загадочный череп” и “Черный череп” (он же “череп Дарта Вейдера”), “Абель”, “Джордж” и “малыш Джонни”, “Твигги”, “Синди”, “Орфей” и “Эвридика”, “Щелкунчик” и даже такие почти индейские имена, как “Колено Джохансона” и “Маленькая Стопа” (он же “Синдерелла”).Череп Тумая совсем маленький, с объемом мозга всего 360–370 см³ – меньше, чем в среднем у обыкновенного шимпанзе, но чуть больше, чем у бонобо. Лоб невероятно плоский, череп сверху почти совсем ровный: по этому признаку сахелянтроп выглядит примитивнее любой человекообразной обезьяны. Получается так потому, что лицо сахелянтропа расположено впереди от мозговой коробки, а не под ней, как это обычно для человекообразных. Рельеф черепа не по размеру мощный: надбровье выступает хотя и не столь резко, как у шимпанзе, но фактически рекордно для австралопитековых; височные линии ближе к затылку сливаются в сагиттальный гребень; выйный гребень так вообще выглядит как широкая пластина, идущая от височных костей поперек затылка, заостренная по краю и загнутая вниз. Рельефом сахелянтроп однозначно превосходит шимпанзе, что загадочно. Возможно несколько объяснений. Во-первых, сахелянтроп мог питаться гораздо более жесткой пищей. Во-вторых, переход к прямохождению мог сопровождаться усилением шейной мускулатуры, так как голова держалась на позвоночнике наискосок, ее надо было уравновешивать сзади, рычагом для чего и служил выдающийся затылочный гребень.
Одно из самых замечательных свойств сахелянтропа – положение большого затылочного отверстия. Как уже говорилось, у четвероногих обезьян оно расположено сзади и ориентировано назад, а у человека – сдвинуто на середину основания черепа и смотрит вниз. У сахелянтропа же его положение и ориентация строго промежуточны. Видимо, это существо проводило на двух ногах гораздо больше времени, чем шимпанзе, но и совсем прямоходящим его назвать трудно. Вообще, основание черепа – самое продвинутое место сахелянтропа.
Лицо Тумая относительно мозгового отдела заметно уменьшено. При взгляде на него в душе истинного антрополога распускаются ромашки. Ведь именно таким положено быть лицу настоящего Великого Предка: в меру крупное, не уплощенное в горизонтальной плоскости и выступающее вперед в вертикальной, но без крайностей, характеризующих горилл и шимпанзе. Анфас Тумай весьма напоминает некоторых самок бонобо: глазницы квадратные, нос широкий, альвеолярный отросток умеренно высокий. Однако по ряду признаков сахелянтроп отличается от шимпанзе: так, у него очень широкое межглазничное расстояние. В профиль же он ни на кого не похож, разве что на ардипитека: верхняя половина лица вертикальна, а челюсти равномерно выдвинуты вперед. Даже от грацильных австралопитеков отличия достаточно очевидны: у Тумая намного слабее развит альвеолярный прогнатизм (Guy et al., 2005). Правда, нижняя челюсть выглядит весьма тяжелой, даром что она невелика.
Зубы сахелянтропа довольно крупные, но их относительные пропорции замечательны: тогда как моляры больше, чем у шимпанзе, клыки – намного меньше. И это притом, что Тумай – самец! Тут может быть два объяснения: первым делом так и подмывает сказать, что клыки сахелянтропа редуцировались и это весьма прогрессивно; однако, учитывая данные по проконсулам, приходится признать, что скорее уж правильнее говорить, что это у шимпанзе клыки увеличились. Если взять по модулю уменьшение от проконсула к сахелянтропу и увеличение от него же к шимпанзе, то шимпанзе оказывается самым прогрессивным, коли уж прогрессом мы считаем отличие от исходника.
Судя по составу фауны, местность, где жил сахелянтроп, включала и водоемы, и саванны, и леса (Le Fur et al., 2014), так что у него был широкий выбор, где жить и чего есть.
Конечно, наука на то и наука, что дело не могло обойтись без скептиков, подбросивших ложку дегтя в праздничное варенье первооткрывателей Тумая (Wolpoff et al., 2006). Они указали на целый ворох примитивностей сахелянтропа, роднящих его с миоценовыми человекообразными типа кениапитека, уранопитека и даже гигантопитека. По ряду параметров основания черепа Тумай больше схож с некоторыми самками горилл, нежели австралопитеками, не говоря уж о людях. Однако чего и ждать от Великого Предка? На то он и предок, чтобы быть похожим на других родственников.
В итоге многие ученые склонны отводить сахелянтропу почетную роль “двоюродного прапрапрадедушки”, но не считают его одним из наших непосредственных предков. Для окончательного прояснения вопроса нужны новые находки. Пока их явно недостаточно, но богатство местонахождения Торос-Меналла оставляет надежду на скорые открытия.
К великому сожалению, от сахелянтропа не сохранились кости посткраниального скелета. Зато они найдены в Кении. Из ее земли на эволюционную арену на почти прямых ногах ковыляет…
Оррорин Orrorin tugenensis. Его останки фрагментарнее, но одновременно многочисленнее. Их обнаружили также французские антропологи в местности Туген-Хиллс на исходе 2000 года, отчего новооткрытый Великий Предок получил по-голливудски броское прозвище Миллениум Мен – Человек Тысячелетия. Официальное описание состоялось в 2001 году. (Senut et al., 2001). Кости были найдены в области Баринго, в местности Капчеберек, в формации Лукейно, и были датированы 5,72–5,88 млн лет назад (Deino et al., 2002).
Дюжина окаменелостей включала два куска нижней челюсти, зубы, фрагменты плечевой, фаланги кисти, правой и двух левых бедренных костей. В этом суповом наборе поместилось аж пять индивидов, как самцов, так и самок. Следы зубов кошачьего на бедренной кости повествуют печальную историю о нелегкой судьбе пионеров прямохождения…
Кстати, о дежавю и пользе статистики… На самом деле, останки орроринов были известны и раньше, только тогда никто не знал, что это и с чем его надо есть. Еще в 1974 г. в Кении, в Лукейно, в местонахождении Чебойт, был найден фрагмент челюсти с нижним моляром KNM LU 335, но долгие годы – почти тридцать лет – он оставался “вещью в себе”, непонятным добавлением к существовавшей тогда картине эволюции австралопитеков, так как его было не с чем сравнить. Было ясно, что он очень древний (5,72–5,88 млн лет назад), похожий и на шимпанзе, и на человека, сравнительно небольшой, но лишь после описания более представительных материалов он обрел смысл.Зубы орроринов размером примерно как у шимпанзе, более поздних ардипитеков и афарских австралопитеков, но клыки сравнительно небольшие, особенно в сравнении с шимпанзе.
Гораздо больше информации можно извлечь из длинных костей оррорина. Обломок плечевой кости очень мощный, очевидно, руки у оррорина были могучие, судя по специфике прикрепления мышц – отлично приспособленные к лазанию по деревьям. О том же свидетельствует сильный изгиб фаланги кисти.
Главный интерес вызвали бедренные кости. Одной из важнейших особенностей оррорина оказался хорошо выраженный комплекс прямохождения. Сравнение их с костями современных человекообразных обезьян и людей позволило утверждать, что уже почти 6 млн лет назад в Восточной Африке жили практически полностью прямоходящие существа. Самое поразительное – по некоторым признакам оррорины выглядят даже более прогрессивными, чем гораздо более поздние афарские австралопитеки (Pickford et al., 2002). Некоторые журналисты даже переврали это в обычно-сенсационном ключе, объявив о “перевороте в представлениях о человеческой родословной”: дескать, вовсе не известные доныне австралопитеки были нашими действительными предками, а новооткрытые оррорины. Особо обращает на себя внимание прямизна бедренной кости, передне-задняя уплощенность, длина и наклон ее шейки, а также сферичность головки и другие тонкости морфологии. Впрочем, другие исследователи более осторожно подходят к вопросу (Richmond et Jungers, 2008).
Оррорины были совсем некрупными созданиями – около 1,1–1,2 м (максимум 1,44) ростом и 35–50 кг весом (Nakatsukasa et al., 2007). Видимо, это был средний размер для всех ранних и большинства грацильных австралопитеков.
Скачут ножки по дорожке: такие ли уж прыткие были оррорины? Многое в жизни зависит от точки зрения. В палеоантропологии дело часто обстоит так же. Потому-то одни и те же находки разные исследователи склонны расценивать совершенно по-разному. Кости не меняются, а их интерпретации разнятся до противоположностей. Не избежал этой чехарды мнений и Orrorin tugenensis – один из древнейших известных гоминид. Находка была разрекламирована как сенсация века и даже тысячелетия. Шутка ли – получалось, что именно Человек Тысячелетия был нашим прямым предком, а ставшие уже привычными афарские австралопитеки – просто тупиковая ветвь. Однако в первых описаниях бедренные кости орроринов сравнивались только с современными видами. А ведь нынешние человекообразные обезьяны – вовсе не те звери, что скакали по ветвям миоценовых лесов миллионы лет назад. И гориллы, и шимпанзе прошли собственный долгий путь эволюции, особенности их бедренных костей, хоть частенько и считаются примитивными, в действительности сформировались едва ли не позже нашего прямохождения и имеют специфику, в немалой степени обусловленную адаптацией к полуназемному образу жизни. Исправить этот пробел сравнительной палеоантропологии взялась международная испано-американо-итальянская команда антропологов (Almecija et al., 2013). Они сравнили бедренные кости орроринов не только с современными обезьянами и людьми, но и миоценовыми испанопитеком, дриопитеком, экваториусом и проконсулом. Из этой плеяды только проконсул является вероятным предком орроринов, но эволюционный уровень у них всех заведомо примитивный. Результат сопоставления оказался полностью закономерным, хотя для кого-то, может быть, и неожиданным. Во-первых, современные орангутаны, гориллы и шимпанзе отличаются от миоценовых гоминоидов, причем по некоторым чертам в ту же сторону, что и современный человек; гиббон, что характерно, сохранил древнее строение. Во-вторых, по тем же признакам оррорин оказывается примитивным, схожим с приматами, жившими 15–20 млн лет назад, но в целом промежуточным между миоценовыми обезьянами и более поздними австралопитеками, от которых те же признаки плавно видоизменяются до состояния “ранних Homo” и далее до современного человека. Самой показательной чертой оказалось расположение ягодичной бугристости: у миоценовых гоминоидов, современных гиббонов и оррорина она смещена на боковую поверхность кости, а у современных крупных человекообразных обезьян, древних гоминид и людей расположена на задней стороне бедра. А ведь на эту бугристость крепится ягодичная мышца, которая у разных существ может выполнять удивительно разнообразные функции. У человека она выпрямляет ногу, тогда как у обезьян скорее отводит ее в сторону. У орроринов она, получается, была совсем дремучей, а нога не могла полностью распрямляться в тазобедренном суставе. Столь же архаично выглядят и другие признаки Человека Тысячелетия: морфология головки бедра, угол шейки к диафизу, выступание вбок основания большого вертела и завернутость внутрь малого вертела. Таким образом, миф о необычайной продвинутости прямохождения оррорина не подтвердился. Конечно, это не отменяет наличия у оррорина действительно очень прогрессивных черт, например очень длинной шейки бедра, уплощенной спереди назад, а также сферической формы головки. Получается, что Orrorin tugenensis закономерно занимает промежуточное положение между древнейшими человекообразными и современными людьми, тогда как нынешние крупные человекообразные вовсе не копии своих ископаемых предков. Только гиббоны, чьи пращуры никогда не спускались с деревьев, сохранили примитивное состояние бедренной кости. Зато как поменялись их руки! В очередной раз можно убедиться, что все течет, все меняется, эволюция – постоянный процесс и никакие биологические объекты не замирают в морфологическом трансе (ну, разве кроме щитней Triops cancriformis, у которых День сурка начался 230 млн лет назад да так и не закончился, но это совсем-совсем другая история…).Таким образом, оррорины, видимо, вставали на две ноги, но четвероного-древесное прошлое еще явно сквозило в их облике. Время меж тем шло, прогресс тоже не стоял на месте. Появлялись новые виды…
Ардипитек кадабба Ardipithecus kadabba – пока недостаточно изученное, но очень важное звено эволюции человека (Haile-Selassie, 2001). Его разрушенные временем останки были найдены в Эфиопии, в долине реки Средний Аваш, в местонахождениях Алайла и Аса-Кома 3; они имеют возраст 5,2–5,8 млн лет назад. Первые находки были сделаны еще в 1997 году, но продолжались и позже: в 2002 году там же (Haile-Selassie et al., 2004), а после похожие зубы были найдены в Гоне (Simpson et al., 2007).
От кадабб сохранились в основном зубы, но есть обломки нижней челюсти, ключицы, двух плечевых и локтевой, две фаланги кисти и одна – стопы. Не будучи Ж. Кювье, не так легко представить облик и образ жизни существ по столь скудным останкам. Все же ясно, что кадаббы были мелкими созданиями: нижняя челюсть меньше, чем у афарских австралопитеков, хотя и массивнее, чем у них. Клыки кадабб сопоставимы с клыками мелких самок шимпанзе: круглые в сечении, конические по форме, они превосходят клыки орроринов и более поздних гоминид. Первые нижние премоляры, найденные в Среднем Аваше, секториальные: это значит, что их коронка асимметрично скошена, чтобы большому верхнему клыку было куда поместиться. Любопытно, что в Гоне этот же зуб не секториальный – видимо, некоторые популяции были прогрессивнее.
Ключица, плечевые и локтевая имеют весьма небольшие размеры, но выраженный рельеф, свидетельствующий о неплохих способностях к лазанию по деревьям. Фаланги кисти принципиально не отличаются от таковых афарских австралопитеков, то есть сочетают обезьяньи и человеческие признаки примерно поровну.
Особенно интересна проксимальная фаланга стопы: с одной стороны, она сильно изогнута, как у человекообразных обезьян, с другой – суставная поверхность ее основания ориентирована вверх, как то характерно для афаренсисов и современных людей, что косвенно свидетельствует о прямохождении.
Кстати, опять о статистике… Еще в 1967 г. в Лотагаме в Кении был найден фрагмент нижней челюсти с одним моляром KNM – LT 329, имеющий древность 5,0–5,5 млн лет назад. Он долго оставался “бедным родственником” – безымянным и не находящим себе места в общей родословной, а ныне отнесен к ардипитекам.Все вышеназванные находки интересны и замечательны, но меркнут на фоне Великого Предка – ардипитека рамидуса.
Ардипитек Рамидус Ardipithecus ramidus – образцовый обезьяночеловек, то самое достающее звено, которое гипотетически реконструировали еще в XIX веке, потом так долго искали и так жаждали увидеть воочию. В нем воплотились все научные предсказания, сделанные антропологами за полторы сотни лет. Более того – он превзошел все ожидания и возложенные на него надежды!
Кстати, еще разок о статистике… Надо сказать, что останки ардипитеков были известны задолго до описания в качестве самостоятельного вида. Еще в 1980-х годах в кенийском местонахождении Табарин, в формации Чемерон, были найдены обломок нижней челюсти с двумя молярами KNM-TH 13150 (4,43 млн лет назад) и кусок плечевой кости KNM-BC 1745 (5,1 млн лет назад). К кому их только не относили! И только с открытием многочисленных находок ардипитеков мы теперь можем уверенно говорить, что в Табарине жили представители этого вида.В 1993 году в эфиопской местности Арамис в долине реки Средний Аваш антропологи нашли россыпь обломков. В 1994 году по ним был описан вид Australopithecus ramidus (White et al., 1994), а спустя год он был переименован в Ardipithecus ramidus (White et al., 1995). Их возраст – 4,4 млн лет. После фрагменты челюстей, зубы и фаланги этого же вида обнаружились в эфиопском местонахождении Аз-Дума в местности Гона (4,32–4,51 млн лет назад). Показательно, что там же в более древних слоях встречены останки A. kadabba – наглядная преемственность, напрашивающаяся в учебники.
История изучения скелета ардипитека – ярчайший пример научной добросовестности. Ведь между его обнаружением – 29 декабря 1993 года – и полноценной публикацией – 2 октября 2009 года – прошло почти 16 лет! Об уникальной находке было заявлено сразу же, но подробности все это время оставались неизвестны, так что у некоторых исследователей даже зародилось сомнение: “а был ли мальчик”? Все эти долгие годы международная группа исследователей, в том числе первооткрыватель – Иоганнес Хайле-Селассие, трудились над сохранением рассыпающихся костей, реконструкцией раздавленного в бесформенный комок черепа, описанием морфологических особенностей и поиском функциональной интерпретации мельчайших подробностей строения костей. Ученые не пошли по пути предъявления миру очередной скороспелой сенсации, но действительно глубоко и тщательно исследовали самые разные аспекты находки. Для этого пришлось изучить такие тонкости сравнительной анатомии современных человекообразных обезьян и человека, которые до сих пор оставались неизвестными. Естественно, к сравнению были привлечены и данные по множеству ископаемых приматов и австралопитеков. Мало того, детальнейшим образом были рассмотрены геологические условия захоронения ископаемых останков, древняя флора и фауна, что позволило реконструировать среду обитания ардипитеков достовернее, нежели для многих более поздних австралопитеков.
В итоге все части скелета ардипитека были подробнейшим образом описаны в серии статей: череп (Suwa et al., 2009a), зубы (Suwa et al., 2009b), рука и кисть (Lovejoy et al., 2009b), таз и нога (Lovejoy et al., 2009d), стопа (Lovejoy et al., 2009a), на основании чего были сделаны выводы о его способе передвижения (Lovejoy et al., 2009с) и путях возникновения бипедии в целом (Lovejoy, 2009).
Новоописанный скелет ардипитека являет собой замечательный пример подтверждения научной гипотезы. В своем облике он идеально сочетает признаки обезьяны и человека. Фактически тот образ, который полтора столетия будоражил воображение антропологов и всех, кому небезразлично наше происхождение, стал наконец реальностью. И все равно, сколь тщательно антропологи ни вымысливали и ни высчитывали стати Великого Предка, ардипитек удивил всех.
Находки в Арамисе многочисленны – останки принадлежат не менее чем 21 особи, но наиболее важен скелет взрослой самки ARA-VP-6/500, от которого осталось около 45 % костей (больше, чем от знаменитой Люси – самки афарского австралопитека из Хадара с древностью 3,2 млн лет назад!), в том числе почти весь череп, хотя и в крайне деформированном состоянии. “Арди” – так нежно прозвали Великую Прародительницу – имела рост около 1,2 м и могла весить до 50 кг. Существенно, что половой диморфизм ардипитеков был выражен гораздо слабее, чем у шимпанзе и даже более поздних австралопитеков, то есть самцы были ненамного крупнее самок; это мы знаем благодаря сравнению клыков разных особей. Объем мозга Арди достигал 300–350 см³ – столько же, как у сахелянтропа, но меньше, чем обычно у шимпанзе.

Рис. 3. Череп, скелет и реконструкция Ardipithecus ramidus.
Строение черепа ардипитека довольно примитивно, фактически обезьянье. Арди была бы мало отлична от мелкой самки шимпанзе, если бы не маленькие лицо и клыки и не сдвинутое вперед затылочное отверстие. Череп очень мал, со сравнительно слабым рельефом, без сагиттального гребня. Лоб более выпуклый, чем у сахелянтропа, маленькое слуховое отверстие и нижнечелюстная ямка височной кости – важные диагностические признаки – напрочь обезьяньи. Глазницы большие, межглазничное пространство не слишком широкое, нос можно даже назвать узким. Лицо относительно мозгового отдела довольно маленькое, но челюсти сильно выступают вперед, скуловые дуги широко расставлены, а между верхним вторым резцом и клыком имеется небольшая диастема – промежуток для нижнего клыка. Нижние челюсти ардипитеков не слишком велики, в целом как у шимпанзе и австралопитеков. Зубы имеют строение, промежуточное между шимпанзе и афарскими австралопитеками, причем по некоторым чертам ближе именно к шимпанзе. Уникальной особенностью рамидусов оказалась преимущественная редукция верхних, а не нижних клыков, так что последние оказались крупнее и обезьяноподобнее первых, больше выступающими за ряд прочих зубов.
Кстати, череп Арди весьма похож на Тумая, их различия в принципе можно бы отнести на счет полового диморфизма и индивидуальную изменчивость. Правда, разница в два с половиной миллиона лет – все же не шутка, так что антропологи не торопятся объединять эти виды.
Замечательно, что у ардипитеков лицо и зубная система не имеют специализированных черт, присущих австралопитекам и современным обезьянам; в частности, лицо Арди не было уплощено. На основе этой особенности даже выдвигалось предположение, что ардипитеки могли быть общими предками человека и шимпанзе либо даже только предками шимпанзе, но предками прямоходящими! То есть шимпанзе могли иметь двуногих прародителей. Впрочем, более тщательное исследование показало, что такая вероятность все же минимальна.
Посткраниальный скелет ардипитека – это просто праздник какой-то! В нем чудесным образом соединились черты четвероногих, древолазящих и прямоходящих существ. Обезьянья сущность Арди очевидна: мощные руки до колен, изогнутые фаланги пальцев рук, далеко отставленный в сторону и сохранивший хватательную способность большой палец стопы. Очевидно, немало времени эти существа могли проводить на деревьях и бегать по земле с опорой на ладонь, а не на фаланги согнутых пальцев. Однако большой палец руки намного длиннее, чем у человекообразных обезьян, хотя и короче, чем у человека. Таз Арди по пропорциям оказывается идеально средний между узким и высоким тазом обезьян и широким и низким – людей. У ардипитека он расширен, но и в высоту немало вытянут.
Сколь ни выражены четвероногие и древесные черты ардипитека, прямохождение его тоже достаточно очевидно – по строению таза, бедренной и берцовых костей. А больше всего удивляет стопа Арди: при оттопыренном хватательном большом пальце, шимпанзоидной таранной кости и изогнутых плюсневых имеются прилично развитые продольный и поперечный своды стопы – очевидные признаки прямохождения.
Минутка фантазии. Спуск с деревьев на землю был подготовлен целой серией преадаптаций. Увеличение размеров тела у первых человекообразных привело к уменьшению попрыгучести, утрате хвоста и четвероногому хождению по горизонтальным ветвям; дальнейший рост размеров сделал обезьян вертикально лазающими животными. Вертикальное лазание – отличная преадаптация к спуску на землю и прямохождению. Но вот уже на земле могли случиться неожиданные вещи. Скажем, при двуногости далеко не очевидно – надо ли сохранять руки? Нелетающие птицы запросто избавляются от лишних придатков. Мадагаскарские эпиорнисы и новозеландские моа утеряли крылья до полного отсутствия. Кенгуру и тушканчики находятся на пути к тому же и сохраняют лапки только потому, что иногда все же опираются на них. За несколько миллионов лет привыкания к земле ранние австралопитеки могли распрощаться с уже не столь актуальными руками; ими, конечно, можно балансировать при ходьбе, можно придерживаться за нависающие ветки, но это все не принципиально. Будь руки до спуска на землю чуть более специализированы – хотя бы как у гиббонов, не говоря уж о колобусах, – и по африканским саваннам побежали бы истинно двуногие, но безрукие обезьянки. Нас спасли три вещи. Во-первых, заточенные под ветки стопы были кривенькими шлепалками, на которых быстро не поскачешь. Необходимость обороняться в саванне возросла, ведь к привычным хищникам добавилось много новых, например гиены и шакалы. Руками же можно швырять всякие разности, отгоняя врагов. Во-вторых, перевесила жадность: очень уж хотелось что-то запихивать в рот обеими руками. Вся предыдущая история приматов сделала руки необходимыми манипуляторами, без которых обезьянам крайне трудно управиться с пищей. В-третьих, K-стратегия подразумевает, что детишки должны быть прицеплены к матери, а без ловких лапок это сделать, конечно, можно (летучие мышата, скажем, держатся молочными зубками, которые по этому поводу имеют вид крючочков; еще можно таскать деток зубами за шкирку, как кошки), но все же затруднительно. Были у ардипитеков и другие потенциальные возможности: они могли остаться четвероногими или, наскучив мимолетным увлечением наземной жизни, вернуться в родные кроны. Однако миллионы лет вертикального лазания приспособили их организм к вертикальному положению тела. Даже шимпанзе и гориллы в природе регулярно ходят на двух ногах не потому, что им это позарез нужно, а потому что просто хочется. Так что переход к двуногости был хотя и не предопределенным, но логичным следствием всей предыдущей истории. Обратный же путь на деревья мы еще успеем реализовать, когда кончатся нефть и газ.Особенно важно, что ардипитеки жили в достаточно закрытых местообитаниях, с большим количеством деревьев и зарослей. По мнению некоторых антропологов, такие биотопы исключают классическую теорию о становлении прямохождения в условиях похолодания климата и сокращения тропических лесов. О. Лавджой на основании слабого полового диморфизма ардипитеков усовершенствовал свою старую гипотезу о развитии двуногости на основе социальных и половых взаимоотношений, вне прямой связи с климато-географическими условиями.
Однако ситуацию можно рассматривать и иначе, ведь для Арамиса первоначально было реконструировано покрытие кронами деревьев примерно в 65 % – ненамного больше половины, а после – вообще менее 60 %, скорее 20–40 %. Местообитание представляло собой подобие парка с достаточно просторно стоящими деревьями. Это значит, что с дерева на дерево далеко не всегда можно было перепрыгнуть, не спускаясь на землю. А ведь как раз примерно такие условия предполагаются сторонниками гипотезы происхождения бипедии в условиях вытеснения лесов саваннами. Ясно, что тропические леса не могли исчезнуть мгновенно, а обезьяны не могли освоить саванну в течение одного-двух поколений. Замечательно, что именно этот этап так подробно изучен теперь на примере ардипитеков из Арамиса. Эти существа прекрасно чувствовали себя на деревьях, но от одного к другому им надо было добираться по земле, поэтому они одинаково ловко лазали по ветвям и ходили на двух ногах, а иногда, видимо, и на четвереньках.
Питались ардипитеки, судя по строению зубов, самыми разными растениями, как побегами с листьями, так и плодами, избегая какой-либо специализации, что стало залогом будущей человеческой всеядности. Все же, по данным изотопного анализа зубов, они потребляли меньше растений открытых местностей, чем более поздние австралопитеки.
Понятно, что о социальной структуре ардипитеков нам ничего не известно, но малые размеры клыков и слабый половой диморфизм свидетельствуют о невысоком уровне агрессии, слабой межсамцовой конкуренции и, видимо, меньшей возбудимости, что вылилось через миллионы лет в способность современного человека сосредотачиваться, обучаться, тщательно, аккуратно и слаженно выполнять трудовую деятельность, кооперироваться, координировать и согласовывать свои поступки с прочими членами группы. Именно эти параметры отличают человека от обезьяны. Приятно, что они сформировались мало того что раньше человеческой морфологии, но и стали в немалой степени причиной этой морфологии.
Важный вывод, сделанный на основе сравнительного изучения ардипитеков, шимпанзе, горилл и современных людей, состоит в том, что многие черты человекообразных обезьян возникли независимо. Лишний раз подтвердилась давняя гипотеза параллельного появления такой специализированной особенности, как передвижение на согнутых фалангах пальцев рук у шимпанзе и горилл. Раньше считалось, что от линии гоминид сначала отделилась единая линия человекообразных обезьян, а потом она разделилась на горилл и шимпанзе; генетики посеяли основательные сомнения в таком раскладе, но палеонтологических подтверждений до открытия ардипитека не хватало. Теперь мы знаем, что шимпанзе по ряду признаков больше похожи на ардипитеков, чем на горилл, так что отделение линии горилл должно было произойти до того момента, когда появилась специализация к передвижению на фалангах пальцах, ведь у ардипитеков ее нет и, судя по всему, никогда не было (правда, эта гипотеза имеет свои слабые стороны, дело при желании можно представить и иначе, но в совокупности с генетическими данными картина вырисовывается именно такая).
Сравнение ардипитеков с сахелянтропом и более поздними австралопитеками лишний раз показало, что эволюция человеческих предков шла некими рывками. Общий уровень развития у сахелянтропа 6–7 млн лет назад и ардипитека 4,4 млн лет назад практически одинаков, тогда как спустя “всего” 200 тыс. лет (4,2 млн лет назад) у анамских австралопитеков появилось множество новых особенностей, которые, в свою очередь, мало менялись вплоть до времени появления “ранних Homo” 2,3–2,6 млн лет назад. Такие “скачки” или “повороты” эволюции были известны и до описания ардипитека, но теперь мы имеем возможность определить точное время еще одного из них; можно и попробовать объяснить их, увязав, например, с климатическими изменениями.
Одно из удивительнейших заключений, которые можно сделать из изучения ардипитеков, – это то, что человек по множеству признаков отличается от общего с шимпанзе предка меньше, чем шимпанзе или горилла. Причем это касается прежде всего размеров челюстей и строения кисти и стопы – частей тела, на особенность строения которых у человека чаще всего обращают внимание. По сути, многие детали у человека примитивнее, чем у современных обезьян, если за прогресс считать уровень отличия от общего предка. Ясно, что такой вывод может сильно не понравиться многим и многим людям (в первую очередь тем, кто склонен мыслить религиозными категориями или вообще идеализировать человечество). Но в том и состоит сила науки, что она оперирует фактами, а не эмоциями.
Рамидусы положили основание новому роду австралопитековых – собственно австралопитекам Australopithecus. Замечательно, что у нас есть достающее звено между этими звеньями: в эфиопском местонахождении Аса-Исие (расположенном все в той же долине Среднего Аваша) с датировкой 4,1–4,2 млн лет назад обнаружены челюсти, зубы и кости, промежуточные между Ardipithecus ramidus и Australopithecus anamensis (White et al., 2006). Челюсть из Аса-Исие отличается большими клыками, выступающими за ряд прочих зубов. Позвонки и фаланга кисти крупнее, чем у афарских австралопитеков. Фаланга, кроме прочего, имеет следы мощных сухожилий мышц-сгибателей – свидетельство лазания по деревьям. Бедренная кость выпрямленная, на ней черты прямохождения (в частности, след прикрепления большой ягодичной мышцы, хотя и слабо выраженный, расположенный к тому же не сзади, а несколько сбоку) сочетаются с признаками четвероногости (шероховатая линия почти отсутствует).
Австралопитек анамский Australopithecus anamensis – самый древний и примитивный в своем роде (сразу же отметим, что частенько в интернете его по неграмотности называют “аннамским”; напомним, что Аннам – старое название Вьетнама). Строго говоря, его бы можно относить уже к грацильным австралопитекам, но в морфологии анаменсисов сохранялось много архаики, а переходы между видами слишком незаметны, чтобы спорить о границах групп.
Вид был описан в 1995 году на основе многочисленных находок в кенийских местонахождениях Канапои и Аллия Бей (Leakey et al., 1995; Ward et al., 2001). Анамские австралопитеки жили 3,9–4,2 млн лет назад.
Кстати, снова о дежавю и статистике… О существовании неких очень ранних австралопитеков, условно названных Preaustralopithecus, было известно давно, но их останки долгое время оставались слишком редкими и фрагментарными, чтобы по ним можно было сказать нечто определенное. Так, еще в 1939 г. Л. Коль-Ларсен в местонахождении Гаруси в Танзании отыскал небольшой фрагмент верхней челюсти с двумя зубами, который получил много названий (например, Praeanthropus africanus или Meganthropus africanus), в 1965 г. в Канапои в Кении был обнаружен конец плечевой кости, в 1987 г. в Белохдили в Эфиопии – кусок лобной кости австралопитека, жившего 3,8–3,9 млн лет назад, а в 1989 г. в местонахождении Фиджиж FJ4 в Южной Эфиопии – семь зубов с датировкой 4–4,18 млн лет назад. Все эти обломки не находили прочного места в схеме эволюции гоминид вплоть до описания анамского австралопитека, к коему и причисляются ныне.От анамских австралопитеков сохранилось довольно много частей, хотя большей частью довольно фрагментарных. Целых черепов пока нет, но ясно, что височная кость примитивна: слуховое отверстие маленькое, а вот суставная ямка немножко продвинутее, чем у рамидуса, – у анаменсисов появился суставной бугорок, хотя бы и маленький и уплощенный. Челюстей найдено достаточно, чтобы сказать, что у анамских австралопитеков морда и зубы в среднем были чуть больше, чем у афаренсисов. Форма альвеолярной дуги, как и у предшествующих гоминид, типично обезьянья – вытянутая, с параллельно расположенными рядами заклыковых зубов. Мало отличается от понгидного варианта и нижняя челюсть, имеющая к тому же некоторые намеки на специализацию. Примитивность выражалась в асимметрии первого нижнего премоляра – для удобства расположения верхнего клыка, который, кстати, имел очень мощные корни. Моляры, хотя абсолютно и велики, нельзя назвать мегадонтными. А ведь мегадонтия – когда зубы относительно размеров челюсти сильно увеличены – была типична для грацильных австралопитеков, не говоря уж о парантропах. Очевидно, во времена анаменсисов мегадонтия еще не была в тренде.
Плечевая и кости кисти сочетают черты человекообразных обезьян и людей примерно в равных пропорциях. Судя по большой берцовой кости, анамские австралопитеки были вполне прямоходящими и по способу передвижения уже не отличались от афаренсисов, да и от нас тоже. А вот лучевая кость свидетельствует о другом: изгиб ее нижней части и ориентация лучезапястной суставной поверхности (умно это звучит так: “сильный медиальный изгиб дистального конца и дистальное выступание дорзального края дистального конца” – да, именно на таком странном языке общаются антропологи!) говорят о блокировании разгибания запястья. А ведь аналогичное строение лучевой кости характерно для крупных человекообразных, ходящих с опорой на фаланги согнутых пальцев. Напомним, что у ардипитека такой специализации не было. Выходит, по крайней мере некоторые популяции анаменсисов могли возвращаться на четвереньки? Впрочем, индивидуальную изменчивость никуда не денешь, и пока у нас не будет больше материалов, утверждать что-то уверенно ни один антрополог не станет.

Рис. 4. Череп Australopithecus anamensis.
Кстати, лучевая кость очень длинная, соответствующая росту современного человека в 1,75 м, притом что по другим костям рост получается около полутора метров. Очевидно, пропорции рук анаменсисов были еще не совсем человеческими.
Некоторые специализации анаменсисов выглядят своеобразно, так что не все ученые видят этот вид в числе наших предков. Однако в целом они представляют собой хорошее звено между рамидусами и афаренсисами.
Достающее звено между самими анаменсисами и афаренсисами найдено не так давно в эфиопском местонахождении Ворансо-Милле, в слоях с датировками 3,57–3,8 млн лет назад (Haile-Selassie et al., 2010b). Челюсти и зубы, обнаруженные тут, настолько промежуточны, что их нельзя однозначно отнести ни к Australopithecus anamensis, ни к A. afarensis. Несколько зубов и бедренная кость из Галили также хронологически и морфологически зависают между двумя этими видами.
Пока мы крайне мало знаем про образ жизни ранних австралопитеков, однако с каждым годом количество находок растет, а знания об окружающей среде того далекого времени ширятся. Обитали ранние австралопитеки в лесистых, иногда даже болотистых местах, а также в лесостепях. Именно в это время – у ранних австралопитеков – появилась главная отличительная черта гоминид – прямохождение. Оно сочеталось у них с древолазанием и – по крайней мере, у самых ранних – четвероногостью. Не исключено, например, что они проводили на деревьях полные опасности ночи. Признаки таких древних способов передвижения сохранялись и много позже – вплоть до “ранних Homo”, у коих они больше являются генетическим воспоминанием о древесных пращурах. Вообще, в сумме обезьяньих и человеческих признаков в скелете ранних австралопитеков оказывается примерно поровну, что дает возможность говорить о них как о том самом пресловутом “недостающем звене”, отсутствие которого столь часто ставят в упрек ученым креационисты и разнообразные пара– и псевдоученые. Учитывая, что ранние австралопитеки уже больше двадцати лет как найдены и продолжают изучаться – это самое что ни на есть “достающее” звено.
Обобщенно ранних австралопитеков можно описать как существ ростом чуть выше метра, с головой, почти неотличимой от обезьяньей, имеющих к тому же размеры мозга, как у шимпанзе, однако с довольно маленькими клыками, с руками до колен, приспособленными для хватания предметов, но с несколько изогнутыми пальцами, с почти прямыми ногами, широким, почти человеческим тазом, с примитивной, но имеющей своды стопой.
Некоторые детали строения ранних австралопитеков позволяют предположить, что не все они выстраиваются в одну прямую линию. В разное время разные исследователи предполагали, что, возможно, сахелянтропы были родственниками горилл, ардипитеки – непосредственными предками современных шимпанзе, а анамские австралопитеки вымерли, не оставив потомков. С другой стороны, не так уж запредельно они различаются, а основные черты свидетельствуют о более-менее прямой преемственности. Но как сравнивать двух австралопитеков, если от одного сохранился череп, а от другого – лучевая кость? Кроме того, играет роль и “человеческий фактор”: каждый исследователь любит свою находку, и зачастую в появлении нового названия немалую роль играет желание прославить если не себя, то новонайденную окаменелость. С этим же связано появление в печати сенсационных заголовков, как правило провозглашающих с открытием очередного черепа “полный переворот в воззрениях на происхождение человека”. Профессиональные антропологи относятся к таким “революциям в науке” тоже с большим энтузиазмом, но спокойно, поскольку они не столько “переворачивают” наши представления, сколько дополняют все еще далеко не полную картину.
Пока ученые не пришли к общепризнанному взгляду на родство разных видов этих существ, что вполне понятно, учитывая фрагментарность большинства находок. Кто из них ближе к нам, а кого эволюционные вихри стерли с лика Земли без следа? Пока этот вопрос остается открытым. Из описанных видов вроде бы оррорины и ардипитеки наиболее подходят на роль наших предков, но споры среди антропологов не утихают. Может, некоторые известные виды ранних австралопитеков не имеют к нам прямого отношения, а в африканской земле еще нетронутыми покоятся останки наших пращуров? Вполне возможно, учитывая, что все виды ранних австралопитеков описаны в последние пятнадцать – двадцать лет и знаем мы о них крайне недостаточно.
Древний гоминоид Ливии – ископаемый шимпанзе или ранний австралопитек? (поучительная история). В 1979 г. в журнале Nature вышла статья, посвященная исследованию миоценовой фауны местонахождения Сахаби в Ливии (Boaz et al., 1979). В ней упоминалась ключица гоминоида, найденная в слоях с датировкой 4–7 млн лет назад. В следующем, 1980 г. в American Journal of Physical Anthropology было опубликовано уже подробное описание этой ключицы, с уточнением датировки до 5–7 млн лет назад (Boaz, 1980). Автор – антрополог Н. Боаз – подробнейшим образом описал места прикрепления мышц, форму, степень сагиттального и коронального изгиба, размеры и пропорции кости. Интерпретации мешала лишь острая нехватка сравнительного материала по ископаемым гоминидам: на тот момент была известна всего одна древняя ключица – OH 48 из Олдувая, одна, на тот момент не описанная, – из Лаэтоли, да еще три гораздо более древних, принадлежавших плиопитекам. Большой размер ключицы, превосходящий самые крупные величины мандрилов, свидетельствовал о том, что кость, скорее всего, не принадлежит мартышковому примату. Сильный грудной изгиб – гоминидный признак – говорил о том, что кость, скорее всего, принадлежит не шимпанзе (у детенышей, самок и мелких самцов изгиб может быть большим, но он расположен в другой плоскости); с другой стороны, сильный изгиб в вертикальной плоскости как раз типичен для шимпанзе. Смещение на середину кости места прикрепления дельтовидной мышцы и мощная выраженность этого прикрепления оказались нетипичны ни для шимпанзе, ни для человека. Тип локомоции должен был отличаться и от обезьян, и от человека, и, скорее всего, от дриопитеков, хотя по ключице об этом судить трудно. Н. Боаз сделал вывод, что кость принадлежит гоминоиду, но уточнить его принадлежность помогут лишь новые находки. Напомним, это был 1980 год. В свете находок 1990-х и 2000-х годов кость из Сахаби могла бы оказаться ключицей некоего самого северного раннего австралопитека… Могла бы оказаться останками самого древнего и северного шимпанзе… Могла бы… Но! Она оказалась ребром дельфина (White et al., 1983). В Сахаби, наряду с останками наземной фауны (включая, кстати, и древних мартышкообразных приматов), были найдены зубы акул и фрагменты костей китообразных. Судя по всему, именно в этот водоплавающий ряд попадает и “ключица гоминида”. Такой вот неожиданный финал несостоявшейся сенсации. Занятно, что Н. Боаз в статье упомянул несколько случаев неверной идентификации “гоминидных ключиц”: MLD 20 и MLD 36 из Макапансгата в Южной Африке оказались при перепроверке боковыми метакарпалиями древней лошади-гиппариона, одна с острова Русинга и одна из Мабоко в Кении – бедренными костями рептилий. Однако ни знание этих прецедентов, ни знание анатомии самых разнообразных животных не спасло Н. Боаза от такой же ошибки. Попробуйте пересмотреть больше трех тысяч фрагментов костей десятков видов животных (а именно столько было найдено в Сахаби) и ни разу не ошибиться! Слишком уж много костей, и удивительно сильно иногда похожи даже неодинаковые части неодинаковых животных. Некоторые несознательные личности на этом месте воскликнут: “Ну вот! Бестолковые ученые! Опять все перепутали! То зуб свиньи посчитают предком человека, то ногу лошади, то ребро дельфина! Как можно им верить!” Однако ж стоит напомнить, что именно ученые разобрались, чем зуб свиньи отличается от человеческого, а метакарпалия гиппариона и ребро дельфина – от ключицы гоминида. Ошибки были найдены и распознаны. Без грандиозного багажа знаний это было бы невозможно, и именно такой багаж, несмотря на случающиеся недоразумения, служит надежным фундаментом для целостной и непротиворечивой картины мира. А ошибки… Что ж, на то и ошибки, чтобы на них учиться.Глава 2. Человекообезьяны: грацильные австралопитеки.
Когда весной 1924 года южноафриканский преподаватель Раймонд Дарт вскрывал присланные ему ящики с окаменелостями, он уже ждал чего-то необычного. Уже два года он собирал древние кости, которые шахтеры иногда случайно находили в разных рудниках Южной Африки. Но вряд ли Р. Дарт рассчитывал на то открытие, которое он сделал, вскрыв второй ящик. Везение палеонтолога – особого рода, оно связано с долгим трудом и тщательными поисками, часто растягивающимися на долгие годы. Эжен Дюбуа искал своего питекантропа тоже два года, Луис Лики работал в Олдувайском ущелье до первых важных находок 28 лет, а сколько археологов и антропологов так и не находят “свою” сенсацию! Так что череп, который обнаружил Р. Дарт поверх остальных окаменелостей, можно считать поистине подарком судьбы и наградой за неустанные изыскания. Находка эта тем более удивительна, что за все последующие годы в руднике Таунг, откуда были присланы ящики, не было найдено ни одной новой кости австралопитека. Впрочем, когда Р. Дарт осматривал удивительный череп, слова “австралопитек” еще не существовало, его придумал и ввел в научный оборот сам Р. Дарт, опубликовав пятистраничную статью в журнале Nature в следующем году (Dart, 1925). Многие ученые отнеслись тогда к открытию, мягко говоря, осторожно, такова уж особенность научного мышления. Следующие десять лет не принесли подтверждений значимости новооткрытого вида древних приматов. Но потом за поиски австралопитеков в других южноафриканских рудниках взялся зоолог Роберт Брум, и с тех пор окаменелости посыпались как из рога изобилия. Сокровищница разверзлась, и сенсационные находки с той поры и по сей день не прекращают радовать антропологов. Сейчас известно много сотен окаменевших останков австралопитеков из разных частей Африки, и мы знаем о них гораздо больше, чем о большинстве других древних животных.

Рис. 5. Таунг.
Животных или людей? Австралопитеки – кто они, эти странные существа с телом человека и головой обезьяны? “Южные обезьяны”, как гласит их название (которое, кстати, никак не связано с Австралией, где никогда не было обезьян), или обезьянолюди, то самое пресловутое “недостающее звено”? Были ли они нашими предками или исчезли, не оставив потомков? А может, у разных австралопитеков была разная судьба?
Кстати, о переводах… Мелкие виды австралопитеков, известные лучше всего – прежде всего Australopithecus afarensis и Australopithecus africanus, – суммарно называются грацильными. Такое название дано им за небольшие размеры сравнительно с массивными австралопитеками – парантропами. Эти термины – “грацильный” и “массивный” – глубоко укоренились в антропологической литературе. Тем более забавно, когда журналисты пытаются их перевести: так появились “изящные”, “стройные”, “субтильные”, “деликатные”, “хрупкие”, а также “мощные” и “могучие” австралопитеки. По таким лингвистическим мелочам, как и в любой специфической деятельности, легко распознать профессионала и дилетанта.Южноафриканские австралопитеки стали первыми известными науке, но они не были древнейшими из открытых на данный момент. Грацильные австралопитеки Восточной Африки имеют более солидный возраст. И конечно, самые известные и изученные из них…
Афарские австралопитеки Australopithecus afarensis – от них сохранились десятки отличных окаменелостей, а если считать изолированные зубы – то и сотни. Подавляющая часть находок сделана в Эфиопии, в пустыне Афар, в местности Хадар, но наиболее древние обнаружены в Ворансо-Милле, другие – в Лаэтоли в Танзании, Южном Таквиле в Кении. и самые молодые – в Омо в Эфиопии. Есть и другие местонахождения: Лотагам, Мака, Дикика, Кантис. Приблизительно с 4 млн лет назад палеонтологическая летопись становится достаточно полной и последовательной. Суммарно вид афарских австралопитеков существовал примерно с 3,6–3,8 до 2,9 млн лет назад, а возможно – даже до 2,3 млн лет назад.

Рис. 6. Череп и скелет Australopithecus afarensis.
Одно из древнейших местонахождений афарских австралопитеков – танзанийское Лаэтоли. Более того, нижняя челюсть LH 4, найденная тут в 1974 году, послужила голотипом – образцом для описания – всего вида (Johanson et al., 1978). Однако самой необычной и доселе непревзойденной находкой стала цепочка следов. 3,66 млн лет назад в Лаэтоли извергся вулкан. Пепел завалил все вокруг, после чего прошел дождь и равнина покрылась слоем грязи. Пробегавшие по ней зверюшки – от зайцев до саблезубых тигров и слонов – оставили пересекающиеся следовые дорожки. Оставили свое наследие и двуногие – рядом с ним нет никаких отпечатков рук. Грязь высохла, а вулкан после этого извергся еще разок, засыпав все сверху новым шлаком. И так следы ждали своего часа прямо под почвой танзанийской саванны вплоть до XX века, чтобы в 1978 году предстать перед изумленными взорами своих далеких потомков.
Сохранилось три цепочки следов австралопитеков. Первая – A – совсем короткая и редко вспоминаемая, к тому же ее следы странно широки, так что есть подозрение, что ее оставил вообще медведь (Tuttle, 2008). Неясно, правда, зачем ему было идти по саванне на двух ногах, да и костей медведей в Лаэтоли не найдено, но в принципе Agriotherium обитал в Эфиопии и Южной Африке.
Две главные цепочки – G – идут рядышком, при этом линия крупных следов – это на самом деле две дорожки, просто второй австралопитек ступал след в след первому. Отпечатки ног мелкого расположены слева от крупного. Поэтому часто упоминается, что это была семья – папа, мама и ребенок. Однако, судя по сохранности и различиям в четкости, следы, скорее всего, были оставлены в разное время, мелкий прошел тогда, когда грязь уже подсыхала, отчего его отпечатки оказались намного четче.
Вокруг следов с тех пор идет дискуссия: одни исследователи считают, что их оставили австралопитеки, другие указывают на обезьян или предполагают неведомых зверей, аки в Лукоморье. Дескать, известные кости стоп афарских австралопитеков неидеально соответствуют следам. Тут надо уточнить, что кости стоп найдены в Хадаре – в Эфиопии, а не в Кении – и они на полторы-две сотни тысяч лет моложе. Все же несомненно, что у существ, прошлепавших по вулканической грязи Лаэтоли, были развиты своды стопы, а большой палец был почти полностью прижат к остальным. На самом деле немножко он все же от прочих отстоял, но и у современных людей, всю жизнь ходящих босиком, большой палец может быть отведен довольно далеко, даже больше, чем у ходоков Лаэтоли. У шимпанзе следы совсем иные, скорее похожие на отпечатки нашей руки. Другое дело, что пальцы лаэтольцев были заметно завернуты внутрь, чего у современных людей практически никогда не бывает, то есть ноги были слегка “косопалые”, хотя и не косолапые.
Следы мелкие, рост существ был всего 1, 1,2 и 1,4 м – в самый раз австралопитечий. Несмотря на апокалиптическое извержение, разразившееся у них над головой, скорость существ была вполне прогулочной, около пяти километров в час. Основные показатели ходьбы в принципе не отличаются от современных, только шаг был слегка семенящий. С другой стороны, когда неподалеку из горы пышет пламя и валит дым, еще неизвестно, какими бы шагами пошли современные люди…
Кадануумуу – австралопитек, не похожий на человека. Ворансо-Милле – замечательная местность в Эфиопии, в которой нашли уже много интереснейших находок. Самой сенсационной из них стал скелет австралопитека KSD – VP-1/1 возрастом 3,58–3,6 млн лет назад, обнаруженный в 2005 г. в локальном местонахождении Корси-Дора (Haile-Selassie et al., 2010a). Скелет был отнесен к виду Australopithecus afarensis, хотя находки зубов из соседних местонахождений с такими же датировками имеют еще много черт предыдущего вида – A. anamensis. К сожалению, череп не сохранился, зато скелет уникален сразу по трем причинам: во-первых, он зело древний, во-вторых, весьма сохранный, в-третьих, большой. Не зря его назвали Кадануумуу – Большой Человек. И было за что – рост гиганта достигал аж 1,52–1,68 м! На фоне метровой Люси он выглядел просто каланчой. Патриархи афарских австралопитеков могли бы говаривать своей малышне, поглаживая седые бакенбарды: “Дааа… Были австралопитеки в былые времена! Богатыри, не мы…” Впрочем, они еще не умели говаривать… С другой стороны, скелет KSD – VP-1/1 по размерам вполне вписывается в масштабы изменчивости афаренсисов, судя по многочисленным известным находкам из Хадара: например, известны останки крупной особи AL 438–1. Люси, кстати, была очень мала даже для австралопитеков. В изменчивости вида, существовавшего более миллиона лет, нет ничего удивительного. Если взять, например, пигмеев, эскимосов и масаев – у них тоже рост и пропорции будут весьма различаться, притом что они относятся к одному виду и существуют одновременно, а между Большим Человеком и Люси – несколько сотен тысяч лет. Кроме исполинского роста, Кадануумуу удивил исследователей прогрессивностью своих конечностей. В строении ключицы, лопатки, таза, костей рук и ног они отметили многочисленные продвинутые черты, сближающие древнейшего грацильного австралопитека с людьми и отличающие от африканских человекообразных обезьян. Посему некоторые журналисты, а вслед за ними креационисты, как обычно не вникнув в суть происходящего, растиражировали байку про скелет “совсем современного человека невиданной древности”. Тут стоит сделать несколько ученых замечаний. Отличия австралопитеков от Homo в посткраниальном скелете довольно многочисленны и ярко выражены у KSD – VP-1/1. Ребра Большого Человека имеют скорее человеческий, нежели обезьяний изгиб, однако второе ребро KSD – VP-1/1 намного массивнее, чем у человека, хотя размер тела у австралопитека меньше. Ключица KSD – VP-1/1 крайне массивная (выходит за рамки изменчивости человека) и, вероятно, была относительно очень длинной (в верхних пределах изменчивости человека). Примечательно, что по массивности шимпанзе и даже гориллы больше похожи на человека, чем KSD – VP-1/1. Соотношение надостной и подостной ямок лопатки у KSD – VP-1/1, по всей вероятности, было больше похоже на шимпанзе и гориллу, чем на человека, хотя сохранность лопатки KSD – VP-1/1 очень плохая. Наклон суставной впадины лопатки относительно латерального края (если линия проходит через центр суставной впадины) находится в нижних пределах человеческой изменчивости и в верхних – гориллы, хотя и выходит за рамки изменчивости шимпанзе (у Люси входит в рамки шимпанзе и выходит за рамки человека). Другие черты Кадануумуу более гоминидны: наклон оси лопатки относительно латерального края (если линия проходит через низ суставной впадины) вполне вписывается в изменчивость человека и далеко выходит за рамки изменчивости шимпанзе и гориллы. На плечевой кости мыщелок ориентирован крайне горизонтально, медиальный надмыщелок очень велик, блок слабо выступает вниз, головка мыщелка относительно очень большая – все эти признаки отличаются от человеческого варианта. На локтевой кости крайне нетипично для человека мощное развитие локтевого отростка в ширину. Угол локтевой вырезки (линия проходит через вершины локтевого и венечного отростков) к задней стороне локтевой кости намного ниже индивидуального минимума человека, Люси и даже ардипитека (хотя у Люси и ардипитека тоже ниже человеческого минимума). Показательно, что шимпанзе почти не отличается от человека, а горилла имеет в среднем больший угол, но значения тоже вполовину пересекаются с человеком. Ряд показателей локтевой и плечевой кости, учтенных относительно длины большой берцовой кости, вписывается в верхние пределы изменчивости человека, но почти совпадает с Люси и уклоняется в сторону шимпанзе и гориллы. Крыло подвздошной кости у афарских австралопитеков было заметно сильнее наклонено, чем у человека. Этот признак – увеличенная передне-задняя длина и сильная развернутость подвздошного гребня – хорошо выражен на скелете KSD – VP-1/1, хотя его таз и фрагментарен (более фрагментарен, чем хорошо известный таз Люси). Связанный с предыдущим признак – крайне широкие боковые части крестца; он выражен у других австралопитеков и у KSD – VP-1/1, причем последний выходит за рамки изменчивости современных людей, хотя и оказывается “самым очеловеченным” из австралопитеков и даже “более человечным”, чем человек из Гоны (правда, шимпанзе трансгрессируют с человеком, а австралопитеки – нет!). Классический признак таза австралопитеков (известного, к слову сказать, не только по Люси, но и по ряду других находок, в частности Sts 14 и Stw 431 в Южной Африке) – увеличенное расстояние между вертлужной впадиной и седалищным бугром (лучше определять относительный размер, так как австралопитеки были мелкие): у KSD – VP-1/1 оно даже больше, чем у других австралопитеков, далеко побивает индивидуальный рекорд человека и занимает промежуточное положение между человеком и группой ардипитек – шимпанзе – горилла. Другой австралопитековый признак – большое расстояние между задними верхней и нижней подвздошными остями – у KSD – VP-1/1 выражен очень типично, совсем непохоже на человека. Гребень подвздошной кости у KSD – VP-1/1 и других австралопитеков имеет менее выраженный сигмовидный изгиб, чем у человека. Передняя ягодичная линия подвздошной кости у KSD – VP-1/1 смещена заметно дальше вперед, чем у человека. У KSD – VP-1/1 узкие и вытянутые ушковидные поверхности подвздошной кости (у человека намного более короткие и широкие), умеренные размеры вертлужной впадины (у человека намного больше) – в общем, отличий от человека хватает. Форма мыщелков бедренной кости при взгляде сбоку у KSD – VP-1/1 хотя и эллиптическая, но по показателям формы занимает промежуточное положение между человеком и шимпанзе, как и у прочих австралопитеков. У человека межмыщелковая впадина гораздо крупнее (и длиннее, и шире), а мыщелки намного длиннее и относительно намного уже и вытянутее. Даже в индивидуальных случаях такой формы, как у KSD – VP-1/1, у людей не бывает. Нижний конец большой берцовой кости у KSD – VP-1/1 сильно поврежден, но видно, что он больше похож на человеческий, чем на шимпанзиный. Однако у людей такой формы суставной поверхности и такого расширения нижнего эпифиза большой берцовой не бывает. Кроме того, диафиз большой берцовой KSD – VP-1/1 хотя и уплощен с боков, но скруглен сильнее, чем обычно у людей. В итоге утверждать сапиентность скелета KSD – VP-1/1 может только человек, совсем незнакомый с эволюционной морфологией скелета и, кроме того, намеренно искажающий факты. Вообще, если бы кто нашел скелет сапиенса с датировкой под 3 млн лет – это была бы такая сенсация, что ни один антрополог не удержался бы от пафосной публикации во всех ведущих журналах! Антропологи тоже любят славу. Глупо думать, что антропологи способны намеренно скрывать факт “слишком раннего” существования сапиенсов. Наоборот, стремятся всеми силами запихать в сапиенсы находки с датировками уже под 200 тыс. лет и даже больше! Ндуту, Нгалоба, Омо, Херто – тому лучшие примеры. Про Схул и Кафзех я уж молчу. Со скрипом получается, а пихают…Наиболее известны австралопитеки Хадара, особенно скелет самки, получивший прозвище Люси. В горячий полдень 30 ноября 1974 года участники американо-французской экспедиции антрополог Дональд Джохансон и палеонтолог Том Грей уже собирались заканчивать поиски окаменелостей, но решили все же пройтись по одному из местных оврагов, который уже дважды тщательно осматривали другие исследователи, и… До настоящего времени этот скелет остается самым полным по сохранности из всех австралопитековых. Его датировка – 3,18 млн лет назад. Счастливые первооткрыватели всю ночь веселились, а над Хадаром разносились звуки битловской песни “Люси в небе с брильянтами” – так и возникло имя Люси. Другой скелет из Хадара, гораздо хуже сохранившийся, – AL 438–1.
Не менее удивительна находка так называемого “Первого семейства” AL 333 – две с половиной сотни костей от семнадцати австралопитеков, лежавших на небольшом участке склона, на которые буквально села жена французского кинооператора, приехавшая в Хадар без малейшего представления об ископаемых приматах. Девять взрослых, три подростка и пять детенышей, похоже, сидели себе спокойно в каком-то овраге, когда их нежданно-негаданно накрыло наводнение от прошедшего дождя. Зря они собрались тут – не к добру это было! Для них. А для нас их беззаботность предоставила уникальный шанс изучить группу афарских австралопитеков. Правда, потом над останками поработали падальщики, так что до нас, к сожалению, дошли не семнадцать скелетов, а мешок огрызков, но лучшей коллекции все равно нигде больше нет.
В Хадаре найдены три почти целых черепа – самца AL 444–2, самки AL 822–1 и детеныша AL 333–105. Хватает и фрагментов, так что мы можем оценивать возрастную, половую и хронологическую изменчивость афаренсисов.
В 2006 году из эфиопского местонахождения Дикика с датировкой 3,3 млн лет назад описан почти целый череп и скелет маленькой трехлетней самочки (или уже девочки?) афарского австралопитека, названной дочкой Люси, или Селам. Теперь мы гораздо больше знаем о детях австралопитеков, особенностях их роста, а также пропорциях тела.
Природа австралопитеков двойственна: практически во всех костях сочетаются человеческие и обезьяньи признаки (отличные обзоры современных данных: Kimbel et Delezene, 2009; Ward et al., 2012). Череп афарских австралопитеков внешне похож на шимпанзиный: мозговая коробка вытянутая, с резко покатым лбом, не слишком большим надбровьем, зато со здоровенными гребнями для прикрепления жевательной мускулатуры, в том числе сагиттальным гребнем у самцов, с мощными, развернутыми в стороны скуловыми дугами; лицевой отдел большой, сильно уплощенный, а при взгляде сбоку даже вдавленный; верхняя челюсть выступает вперед, нижняя челюсть массивная, с огромной восходящей ветвью. Для афарских австралопитеков типична не слишком сильно, но все же развитая заклыковая мегадонтия – увеличение размеров моляров относительно челюсти. Пройдет еще миллион лет, и эта особенность выльется в появление парантропов с огромными челюстями и зубами. Слава изменчивости – не все австралопитеки ступили на этот заманчивый, но тупиковый путь; самые мелкозубые, не поддавшиеся на сладкую приманку вегетарианства, стали людьми.
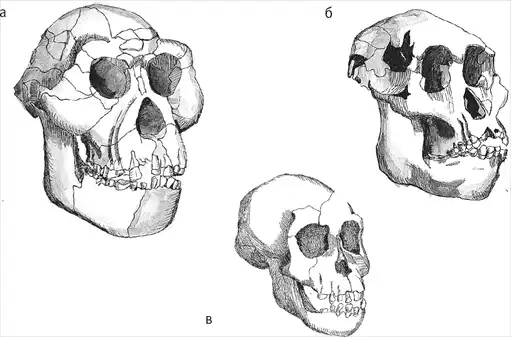
Рис. 7. Черепа самца AL 444–2 (а), самки AL 822–1 (б) и детеныша Дикика (в).
При всей обезьяноподобности афарские австралопитеки имели два ключевых человеческих признака черепа: большое затылочное отверстие у них было явно смещено ближе к середине основания черепа, чем у обезьян, а клыки хотя и намного крупнее человеческих, все же не слишком выступали за линию прочих зубов. Диастема между клыком и премоляром на нижней челюсти обычно либо была маленькой, либо вообще отсутствовала, а первый нижний премоляр был уже почти симметричен, в отличие от ранних австралопитеков.
Очевидно, у австралопитеков с их маленькими клыками взаимоотношения в группах строились не на демонстрационной агрессии, а защищались они от хищников с помощью чего-то еще, вероятно используя необработанные палки и камни. По всей видимости, здесь лежат истоки богатых возможностей человеческого общения – жестикуляции, выразительной мимики и, конечно же, речи. Вместе с тем и способность к использованию орудий труда стала следствием сочетания незащищенности и двуногости австралопитеков. Учитывая, что руки австралопитеков были “развязаны” прямохождением, способности к использованию орудий у них наверняка были развиты гораздо лучше, чем у современных шимпанзе. Впрочем, изготавливать каменные орудия они еще точно не умели, да и руки их не были к этому приспособлены, а посему нам остается только строить предположения на этот счет.
Кстати, об умелых ручках… Как узнать о трудовой деятельности, если она предполагает не изготовление орудий труда, а лишь использование подходящих природных объектов – палок, костей и камней? Конечно, по следам этой деятельности! Именно этим путем пошли исследователи эфиопского местонахождения Дикика. Пересмотрев несметное количество обломков костей, они таки нашли, что искали: в слое с датировкой 3,4 млн лет назад обнаружились фрагменты правого ребра животного размером с корову и бедренной кости животного размером с козу со следами каменных орудий (McPherron et al., 2010). Царапины были тщательно исследованы – это не следы зубов хищников и не природные повреждения. Выходит, афарские австралопитеки могли периодически пользоваться подходящими острыми камнями, чтобы срезать мясо с костей? Неужели у нас в руках следы первой трудовой деятельности – настолько дремучей, что для нее и орудий-то еще не было? Конечно, не могли не найтись критики, показавшие, что царапины на костях из Дикики с наибольшей вероятностью имеют-таки естественное происхождение (Domínguez-Rodrigo et al, 2010). Дискуссия пока продолжается. Однако с чем согласны все археологи: афарские австралопитеки не умели намеренно обрабатывать камни и делать из них орудия. Тысячи тонн просмотренной породы за многие годы исследований – лучшее тому доказательство.Объем мозга афарских австралопитеков не очень сильно отличался от типичного для шимпанзе – примерно 350–550 см³. Но все же в пересчете на массу тела австралопитеки оказываются более мозговитыми. Впрочем, форма австралопитекового мозга крайне мало отличается от обезьяньего.
Особенности посткраниального скелета позволяют без всякого сомнения говорить, что афарские австралопитеки были уже полностью прямоходящими. Это очевидно следует из особенностей строения таза, коленного и голеностопного суставов, стопы. То есть ниже головы это были уже почти совсем люди. Впрочем, почти – не значит совсем. Строго говоря, человечность в скелете афаренсисов, да и любых австралопитеков убывает снизу вверх: тогда как стопа, ноги и таз почти людские, руки и особенно голова – почти обезьяньи. Другими же словами – мы очеловечивались от ног к голове, можно сказать – от матушки-земли (какой простор открывается тут для псевдофилософских измышлений!).
Удивительно много понгидных черт сохранялось в строении позвоночника (хотя крестец весьма продвинут – прямохождение обязывает). Руки же больше прочих частей тела отставали в своем прогрессе. Так, лопатка Люси весьма понгидна, а у детеныша из Дикики больше всего напоминает лопатку гориллы, хотя и уклоняется в человеческую сторону. Руки афарских австралопитеков были заметно удлинены, хотя и не в такой степени, как у ардипитеков. Хотя плечевая, локтевая и лучевая кости имеют и прогрессивные черты, в их строении едва ли не больше признаков человекообразных обезьян, они были мощными и хорошо приспособленными для лазания по деревьям. В развитии дорзального гребня нижнего конца лучевой кости Люси многие антропологи усматривают след приспособления к костяшкохождению; впрочем, это скорее наследие анамских предков или специализация, вообще не связанная с локомоцией. Кисть афаренсисов больше похожа на человеческую общими пропорциями и многими частностями, но обезьяна кроется в деталях ее строения – укороченности большого пальца, сильном изгибе пястных и фаланг, суженности конечных фаланг. Хватает и специфических черт вроде увеличенных головки головчатой и крючка крючковидной костей. Чего не было, да и не могло быть у афарских австралопитеков, так это трудового комплекса кисти – и в этом она очевидно примитивна.
Вот что удалось афаренсисам на славу – так это таз. Он очень широкий и очень низкий; у Люси его пропорции оказываются даже более человеческими, чем у человека, за счет аллометрических закономерностей. Кости ног однозначно похожи на наши. Особенно знаменито “колено Джохансона” – фрагменты коленного сустава AL 129–1. По нему впервые было однозначно установлено прямохождение афарских гоминид. Но с тех пор появились десятки новых костей, в том числе, например, почти целая бедренная кость AL 827–1.
Стопа афарских австралопитеков известна по массе изолированных костей, судя по которым на ней были вполне развиты продольный и поперечный своды, а плюсневые кости соединены практически неподвижно (в частности, имелся контакт между основанием третьей плюсневой и промежуточной клиновидной костью). Большой палец стопы вряд ли был сильно оттопырен, уж точно не как у шимпанзе или ардипитека.
Рост афарских австралопитеков колебался от метра до полутора – практически универсальный размер вплоть до появления Homo ergaster. Интересно, что некоторые особи – видимо, самцы – были едва ли не в полтора раза крупнее других – очевидно, самок. Это предполагает резкий половой диморфизм по общим размерам тела – чуть ли не как у горилл, что явно противоречит ослабленному по размерам клыков. Как это понимать – непонятно. Не исключено, что мы несколько преувеличиваем уровень полового диморфизма, слишком много внимания уделяя крайним вариантам и недооценивая средние (Reno et al., 2003). Дискуссия на сей счет продолжается.
Образ жизни афарских австралопитеков, видимо, был непохож на известный у современных приматов. Жили австралопитеки маленькими группами, судя по “Первому семейству” – от десятка до двух особей. Днем австралопитеки кочевали по просторам Африки – саваннам и лесам, берегам рек и озер в поисках пропитания, а вечером забирались на деревья, как это делают современные шимпанзе. Питались они в основном растительной пищей.
По всей видимости, австралопитеки были способны перемещаться на довольно большие расстояния. Эта способность явилась одной из важнейших для дальнейшего расселения и эволюции человека, поскольку при миграциях гоминиды попадали в самые разнообразные экологические ниши. Это стало залогом пластичности современного человека и будущего завоевания мира.
Афарский австралопитек замечателен тем, что это ключевой вид для всего последующего разнообразия: поздние грацильные австралопитеки и локальные географические варианты, парантропы и варианты “ранних Homo” – все они произошли от A. afarensis. Да и сам этот вид нельзя расценивать как единый и на миллион лет застывший во времени: особи из Ворансо-Милле и Мака были очень крупными, в Хадаре от ранних к поздним, видимо, увеличивался размер мозга, хотя и очень медленно, менялись и зубы.
Родство афарских австралопитеков с южноафриканскими грацильными расценивается по-разному. Некоторые антропологи аргументируют значительную самостоятельность восточноафриканских афаренсисов и необходимость выделения их в самостоятельный род Praeanthropus и вид Praeanthropus africanus (Strait et al., 1997). Название взято из старого описания челюсти Гаруси, которая в последующее время считалась принадлежащей афарским австралопитекам. Однако на современном уровне знаний вероятнее ее принадлежность анамским австралопитекам, которые тогда должны бы называться Praeanthropus africanus, тогда как афарские – Praeanthropus afarensis. Впрочем, большая часть антропологов не разделяет этих воззрений и не считает необходимым и обоснованным возведение афаренсисов в ранг выше вида.
Сравнение морфологических черт позволяет ученым судить о том, какие грацильные австралопитеки имеют к нам отношение, а какие – нет. Из описанных видов наиболее подходит на роль предка именно афарский австралопитек. Хотя некоторые его черты не вписываются в образ прогрессивного предка – обезьянья форма позвонков и лопаток, костные гребни для мощных жевательных мышц и некоторые другие специализации, – антропологи не видят в этом угрозы для эволюционной теории; никто ведь не утверждает, что нашими предками были все без исключения представители афарских австралопитеков. Новые виды всегда возникают только из некоторых, уклоняющихся популяций старых видов. Афарские австралопитеки были очень изменчивы. Восточная Африка – немалый регион. В какой его области жили те самые австралопитеки, что были нашими непосредственными предками? Можно ли вообще найти ту самую группу? А может, они обитали в Северной или Центральной Африке? Если в Северной Африке найдены хотя бы несколько фрагментов костей австралопитеков, то огромная область в центре континента, несомненно кем-то густо заселенная в эпоху Великих Предков, в настоящее время – terra incognita для палеоантропологии. Тропический лес почти никогда не оставляет от животных ископаемых следов, слишком активна там жизнь. Кроме того, вечная политическая нестабильность государств Центральной Африки не способствует научным изысканиям. Но кто знает? Пятьдесят лет назад никто не ведал и о восточноафриканских австралопитеках.
Никто не ведал и о североафриканских австралопитеках. Пока в 1995 году французские палеонтологи не нашли в Республике Чад, в местности Коро-Торо, в долине реки Бахр-эль-Газал, нижнюю челюсть KT 12/H1 (Абель), к которой потом добавились еще одна нижняя KT 40 и верхняя KT 13–96-H1, а также изолированный зуб KT 12 P3/H2. Находка была описана как новый вид…
Австралопитек бахрэльгазальский Australopithecus bahrelghazali (Brunet et al., 1995, 1996). Первоначально он был датирован по фауне 3,0–3,5 млн лет назад, но после цифру уточнили и удревнили до 3,58 млн лет назад Строго говоря, отличия новоявленного североафриканского вида от афарского австралопитека не так уж велики – передняя сторона симфиза вертикальна у KT 12/H1 и округла у KT 40, но у обоих не скошена назад; на задней стороне симфиза рельеф очень слабый. Нижний клык выступает выше соседних зубов, но не запредельно – в рамках приличного афаренсисам.
Экологические условия в Коро-Торо в те времена отличались от восточноафриканских широким распространением саванн. Вот уж кто был настоящим покорителем просторов! Это отразилось и на диете бахрэльгазальцев: они ели гораздо больше саванных растений, чем все грацильные австралопитеки; по этому показателю их превзошли только восточноафриканские парантропы (Lee-Thorp et al., 2012).
В итоге бахрэльгазальский австралопитек выглядит как крайний вариант афарского; оно и логично – ведь хронологически эти виды совпадают, а географически разнесены примерно как анубис и гамадрил среди павианов. Расстояние имеет значение даже в африканской саванне. Фауна Коро-Торо вообще достаточно специфична – отсюда известно много эндемичных видов млекопитающих, близких к восточноафриканским, но отличающихся в мелочах. Видимо, и гоминиды менялись вдоль Сахеля, а это значит, что в Западной Африке нам стоит искать своего “гвинейского павиана” среди австралопитеков.
Но пока антропологи не добрались до гвинейских австралопитеков, им есть много работы и на востоке Африки. В 2015 году ряд эфиопских окаменелостей был описан как…
Австралопитек дейремеда Australopithecus deyiremeda (Haile-Selassie et al., 2015). Местность Ворансо-Милле, расположенная немного севернее Хадара, прославилась великолепными находками австралопитеков. Тут были найдены зубы, промежуточные между анамскими и афарскими австралопитеками, тут был откопан Большой Человек Кадануумуу, тут была открыта таинственная нога неведомой гоминидины. Сенсации так и прут из эфиопской земли. 2015 год не мог стать исключением. Строго говоря, удивительные находки были сделаны между 2006 и 2013 годами, но опубликованы в журнале Nature в 2015 году (Haile-Selassie et al., 2015).
В местонахождениях Бартеле (том самом, откуда происходит странная стопа) и Вайталейта в слоях с датировками 3,5–3,3 млн лет назад были обнаружены фрагмент лобной кости, два обломка верхних и два – нижних челюстей, а также восемь зубов. Не сказать, чтобы останки были чересчур представительны, но их признаков хватило, чтобы описать новый вид Australopithecus deyiremeda. Коллектив исследователей из США, Испании, Эфиопии и Германии представил доказательства особого статуса австралопитеков из Бартеле и Вайталейта. Особые признаки дейремеды – маленькие премоляры и моляры в сочетании с немаленькими резцами и клыками, крайне массивной нижней челюстью, а также не слишком выступающей вперед верхней челюстью. То есть, кратко говоря, – имеем странную смесь признаков грацильных и массивных австралопитеков.
Особую интригу привносит тот факт, что Бартеле расположен всего в тридцати пяти километрах севернее Хадара, откуда известны десятки классических находок афарских австралопитеков – с такими же в точности датировками. Так что – получается, в Эфиопии сосуществовали как минимум два вида грацильных австралопитеков? А если вспомнить еще и кениантропа – так и три? Чрезвычайно загадочно – как они могли жить одновременно? Что-то же должно было их разделять – скорее всего, некие особенности экологии. Но высшие приматы знамениты своей экологической пластичностью. Странно все это!
Не исключено также, что часть ранее известных костей, причислявшихся доныне к афарским австралопитекам, на самом деле принадлежит дейремеде. Может, именно этим объясняется слишком сильный половой диморфизм, высчитанный для афаренсисов некоторыми антропологами?
Но!
Действительно ли отличия челюстей из Бартеле достаточны для описания нового вида? Может быть, просто в очередной раз вернулась мода на дробительство? Пара челюстей, без сомнения, выделяется на общем афарском фоне, но лишь по паре признаков выходит за пределы известной изменчивости вида A. afarensis. А может, мы просто плохо знали популяционную вариабельность афаренсисов? Отличия дейремеды и афаренсисов не факт что превосходят различия, скажем, австралийских аборигенов и бушменов – что же, и современное человечество разделять на виды? Может, стоит вспомнить заветы Оккама?
Как обычно, только новые находки – а они обязательно последуют! – решат спор. А пока придется привыкать к странному слову – дейремеда.
Статус дейремеды находится под большим вопросом, но еще спорнее описанный в 2001 году не только вид, но и особый род…
Кениантроп плосколицый Kenyanthropus platyops (Leakey et al., 2001). От него известно не так много останков, зато каких! В Ломекви на севере Кении найден практически целый череп KNM-WT 40000, оттуда же происходят височная кость, верхние и нижние челюсти, а также целая россыпь зубов. Они имеют возраст 3,2–3,5 млн лет.
KNM-WT 40000 в целом похож на афарских австралопитеков, но отличается несколькими особенностями. Самая яркая его черта – плоское широкое лицо и вытянутый назад и вверх свод. Однако череп найден в крайне деформированном состоянии, так что оценивать его общую форму без тщательной реконструкции – дело безнадежное. Более существенными особенностями представляются очень высокие скуловые кости, уплощенный альвеолярный отросток верхней челюсти, короткое и широкое небо, чрезвычайно маленькое слуховое отверстие. Объем мозга из-за перекошенности черепа посчитать сложно, но он был примерно таким же, как у прочих грацильных австралопитеков. Нижние челюсти кениантропов массивные, с горизонтальной поверхностью за резцами. Зубная система кениантропа несколько специфична: резцы низкие, премоляры похожи на моляры, первый и второй моляры сравнительно с прочими грацильными австралопитеками заметно уменьшены, а вот третьи, напротив, очень крупные.
Как расценивать такой комплекс – большой вопрос. Авторы открытия считают его достойным возведения в самостоятельный род. Более того, высокое уплощенное лицо и пропорции зубов позволили предположить, что кениантроп – предок “человека рудольфского”, то есть с большой вероятностью и наш тоже. Или напротив, это тупиковая линия, зашедшая в могилу, а не устремившаяся к прогрессу?
Реконструкция черепа и более полные описания находок из Ломекви позволят уточнить статус кениантропа. Пока же его самостоятельность под большим сомнением, ведь по большинству черт он слабо отличается от давно и хорошо известного вида Australopithecus afarensis, а по крайней мере часть отличий запросто может быть следствием деформации (White, 2003). Даже если уплощенность лица, высоту скул, форму неба и пропорции зубов не списывать на тафономические искажения, все равно они вряд ли тянут на родовой статус, иначе расы современного человека тоже придется разносить по разным родам. Никто не отменял и индивидуальную изменчивость. А посему большинство антропологов используют термин “кениантроп” скорее как удобное личное имя черепа KNM-WT 40000, тем более что он, на удивление, до сих пор не обрел никакого эффектного прозвища.

Рис. 8. Череп Kenyanthropus platyops.
В 2015 году в слоях Ломекви с датировкой 3,3 млн лет назад были найдены обломки, определенные как орудия особой ломеквийской культуры (Harmand et al., 2015). Кроме крайней примитивности, их отличают крупные размеры. А ведь именно величина – одна из основных характеристик орудий, используемых шимпанзе, капуцинами и макаками-крабоедами, в противоположность сравнительно небольшим олдувайским чопперам.
Значит ли это, что кениантропы обскакали всех прочих австралопитеков и действительно были предками Homo? Или же это был удивительный всплеск разума, обогнавший свое время и быстро затухший? Может, кениантропы были просто особо умными обезьянами? Ведь между орудиями из Ломекви и из Гоны сотни тысяч лет пустоты – преемственности между ними нет. Пока эти вопросы далеки от решения…
До сих пор речь шла о Восточной и Северной Африке, но примерно половина находок сделана на другой оконечности континента – в Южной Африке. Более того, тут австралопитеки были впервые открыты и обрели свое имя…
Австралопитек африканский Australopithecus africanus. Этот вид известен из ряда местонахождений – Таунг, Стеркфонтейн, Макапансгат, Глэдисваль. Название “африканский” не подразумевает, что были еще и какие-то неафриканские австралопитеки. Просто для Р. Дарта, давшего имя “южным обезьянам” в 1925 году, они были первыми ископаемыми человекообразными Африки. Сейчас их во избежание путаницы обычно называют либо южноафриканскими грацильными австралопитеками, либо африканусами.
Южноафриканские грацильные австралопитеки жили с 3,1 до 2,6 млн лет назад или, возможно, в большем интервале – вероятно, с 3,3 или даже 4,17 до 1,5 млн лет назад. Проблема в том, что в Южной Африке нет вулканов, а кости австралопитеков найдены в брекчиях известняковых пещер, практически напрочь лишенных стратиграфии. Посему датировать приходится по фауне, а она, во-первых, быстро не меняется, а во-вторых, не совсем идентична датированной восточноафриканской. В последнее время сделаны попытки датировать брекчию палеомагнитным методом и по соотношению космогенного алюминия-26 и бериллия-10. К сожалению, часто эти методы дают противоречивые результаты.
От южноафриканских грацильных австралопитеков известны все части скелета от множества особей, поэтому реконструкции их внешнего облика и образа жизни весьма достоверны.
Череп африканусов небольшой, с объемом мозга 428–515 см³ или даже 370–540 см³ (что зависит от реконструкции фрагментарных черепов), с умеренным надбровьем, у крупных самцов иногда, возможно, с сагиттальным гребнем (что, впрочем, только реконструируется из сильного сближения височных линий). Лицевой отдел крупный, выступающий вперед, хотя далеко не в такой степени, как у афаренсисов. Глазницы маленькие, нос в среднем шире, чем у Australopithecus afarensis, передняя сторона альвеолярного отростка верхней челюсти сильно уплощена, небо в передней части глубокое. Характернейшая черта африканусов – передние лицевые валики, утолщения верхней челюсти, идущие вертикально по бокам от носового отверстия; это не то же самое, что клыковые возвышения, типичные для существ с увеличенными корнями клыков. Замечательно, что передние лицевые валики типичны и для южноафриканских парантропов, что рассматривается как явное доказательство преемственности этих видов.
По некоторым признакам черепа африканусов выглядят прогрессивнее, чем у афаренсисов, что логично, учитывая их хронологию. Например, у A. africanus выше и округлее свод, слабее рельеф, сагиттальные гребни если и были, то низкие, а настоящих затылочных неизвестно вовсе. Однако большинство антропологов не считают африканусов нашими прямыми предками, так как в строении их конечностей хватает примитивностей и специализаций. К тому же древнейшие Homo Восточной Африки явным образом отличаются от африканусов. Правда, недавнее описание Australopithecus sediba из Южной Африки позволяет взглянуть на картину иначе, но об этом позже.
Посткраниальный скелет, как уже говорилось, имеет некоторые особенные черты. Например, африканусы имели шесть поясничных позвонков. Как и афаренсисы, южноафриканские грацильные австралопитеки обладали весьма архаичными костями рук, причем от лопаток до кистей степень примитивности падает. Лучевая кость Stw 46, с одной стороны, имеет сильно изогнутый нижний конец, с другой же – не имеет характерного для костяшкоходящих понгид костного гребня – ограничителя разгибания кисти. Кисть A. africanus находится на том замечательном уровне, когда и явного трудового комплекса вроде бы нет, но и задатки его вроде бы есть. Вероятно, они могли использовать орудия труда, но не изготовлять их.

Рис. 9. Череп и скелет Australopithecus africanus.
В отличие от рук, таз и ноги африканусов очень продвинуты. Прямохождение этих существ несомненно. Имеются, конечно, и примитивные или специализированные черты – куда без них, – но в целом ноги отличались от наших несущественно. Одной из особенностей африканусов является большая ширина, на которую были разнесены вертлужные впадины таза и, соответственно, тазобедренные суставы. Думается, походка из-за этого должна была быть несколько замедленной, возможно – вразвалочку, но это, в сущности, мелочи. Интерес представляет большая берцовая кость Stw 514, в строении которой больше шимпанзоидных особенностей, чем на костях афарских австралопитеков. Впрочем, другие берцовые кости из Стеркфонтейна далеко не столь понгидны.
Рост африканусов был все тот же – от метра до полутора, вес – от 20 до 40 кг. Руки африканусов относительно тела и ног сильно удлинены, даже в большей степени, чем у более древних афаренсисов. Обращает на себя внимание, что кости рук A. africanus крупнее, чем у A. afarensis, а кости ног обоих видов либо равны, либо у A. africanus грацильнее.
Кстати, о поколениях… В 1978 г. в уютном отнорке Стеркфонтейна под названием грот Сильберберг, представляющем собой кривую, сырую и холодную шахту четырнадцатиметровой глубины, была найдена лодыжка и четыре сочлененных кости левой стопы. Они были определены как останки мартышки и мирно пролежали в ящиках с костями млекопитающих до 1994 г., когда Р. Кларк и П. Тобайас извлекли их из забвения и обнаружили, что кости на самом деле австралопитечьи (Clarke et Tobias, 1995). Останки получили номер Stw 573 и сразу два имени – Маленькая Стопа и Синдерелла. Прошло еще несколько лет, и в 1998 г. в пещере нашлось эффектное продолжение – череп с нижней челюстью и, вероятно, целый скелет. Была только одна проблема – кости Синдереллы оказались намертво вмурованы в скалу, так что снаружи они выглядели как нарисованные. С тех пор и по сию пору палеонтологи продолжают упорно выцарапывать бесценные мощи из каменного плена. Дело это невероятно изматывающее, ведь работать приходится в узкой каменной щели, хитро изогнувшись наискосок, маленькими иголками, чтобы не повредить уникальную находку. К 2014 г. череп почистили настолько, что он оставался прикрепленным к стене только правой щекой, а в начале 2015-го наконец-то отковыряли! Но в стене поныне остаются многие другие кости. Особый интерес Синдерелла представляет по двум причинам. Во-первых, это первый целый скелет южноафриканских австралопитеков и потенциально самый целый среди вообще всех австралопитеков. Во-вторых, отложения грота, согласно анализу космогенного алюминия и бериллия, могут иметь возраст 3,3, 3,67 или даже 4,17 млн лет назад – существенно больший, чем в других местонахождениях Южной Африки; впрочем, это не доказано окончательно: по фауне, магнитостратиграфии и результатам урано-свинцового анализа получается лишь 2,2 млн лет назад – тогда Синдерелла, напротив, оказывается одним из самых молодых австралопитеков. Маленькая Стопа – сенсация, длящаяся уже целое поколение, может растянуться еще на много лет. В другом месте Стеркфонтейна – Яковец-Каверн – с аналогичной и опять неясной датировкой (возможно, 4 млн лет, но, быть может, вдвое меньшей) найдены части другого скелета с черепом (Partridge et al., 2003). Эти фрагменты похожи на прочих австралопитеков, но имеют некоторые необычные черты: лоб чрезвычайно узкий и крайне покатый, ключица резко уплощена, шейка бедренной кости очень длинная и сильно опущенная. По некоторым признакам австралопитек из Яковец-Каверн вполне годится на роль предка парантропов.Не так много мы знаем о жизни южноафриканских австралопитеков, как хотелось бы. Особенности строения стремечка Stw 151 позволили заключить, что слух грацильных австралопитеков был более чувствительным в области высокочастотных звуков по сравнению с современным человеком, то есть как бы более обезьяньим (Moggi-Cecchi et Collard, 2002). Диета разных особей, судя по микроизношенности эмали и изотопному анализу, была весьма разнородной: у большинства индивидов больше половины рациона составляли древесные плоды и листья, некоторые же столовались преимущественно в саванне (Ungar et Sponheimer, 2011). Этим африканусы, кстати, сильно отличались от анаменсисов и афаренсисов, кои питались существенно однообразнее. Вероятно, это связано с умеренностью климата Южной Африки и более выраженной там сезонностью. Более того, у африканусов выражена “внутризубная” изменчивость соотношений Sr/Ca и Ba/Ca: судя по всему, они периодически переходили с трав на мясо и обратно (Balter et al., 2012). Пластичностью они, кстати, превосходили даже “ранних Homo” Южной Африки, которым вроде как по статусу наших предков положено быть во всем первыми.
Систематика австралопитеков не так однозначна, как может показаться при чтении учебников. Южноафриканские антропологи, прежде всего Р. Кларк, давно аргументируют существование как минимум двух видов в Стеркфонтейне (например: Clarke, 2008). Один из них – “классический” Australopithecus africanus, тогда как второй – гораздо более крупный и массивный парантропоподобный, который, собственно, был предком массивных южноафриканских австралопитеков.
Уголок занудства. Предполагаемый парантропоподобный вид грацильных австралопитеков Южной Африки отличается целым комплексом черт: надбровье слабо выступает, вдавленность над ним минимальна, надглазничный край сравнительно тонкий; у самцов есть маленький сагиттальный гребень на задней части свода; затылок высокий и слабо выступающий назад; лицо очень высокое и длинное, вдавлено в поперечном направлении, скуловые кости резко выступают и развернуты вперед, при взгляде сбоку закрывают края носового отверстия; из-за этого лобный отросток верхней челюсти расширен вбок и ориентирован фронтально; межглазничное пространство широкое; точка “назион” (место соединения носовых костей с лобной) расположена выше лобно-верхнечелюстного шва, близко к “глабелле” (самой выступающей точке надбровья); нижняя челюсть большая и массивная; резцы и клыки увеличены относительно заклыковых зубов; премоляры и моляры большие, со вздутыми боками и бугорками, приближенными к центру зуба. К этому виду относят черепа и челюсти Stw 252, Sts 71, Stw 505, Stw 183, Stw 498, Stw 384, Sts 1, MLD 2 и некоторые зубы. При этом индивиды Sts 19, Sts 51 и Sts 52a, Stw 183, Stw 252, Stw 255 каждый в отдельности обладают специфическими чертами, иногда уникальными, иногда сближающими своих носителей с парантропами или “ранними Homo”. Одни исследователи относят это на счет индивидуальной изменчивости, другие – эволюционной переходности. Возможно, совершенствование методов датирования позволит прояснить ситуацию.Впрочем, другие исследователи считают, что нет нужды разделять африканусов на два вида, а перечисленные выше различия объясняются половым диморфизмом, возрастной и индивидуальной изменчивостью или, возможно, хронологическими изменениями.
Заметим в скобках, что Р. Брум в 1936 году на основании разрушенного черепа Sts 60 из Стеркфонтейна описал вид Plesianthropus transvaalensis, а Р. Дарт в 1948 году по задней части мозговой коробки MLD 1 из Макапансгата – Australopithecus prometheus. Эти названия использовались некоторое время для обозначения грацильных австралопитеков из соответствующих местонахождений, но ныне обычно признаются полными синонимами Australopithecus africanus. Впрочем, некоторые исследователи считают название Australopithecus prometheus подходящим для обозначения того самого парантропоподобного вида, особенно если признать его бóльшую древность.

Рис. 10. Черепа Sts 5 (а), Sts 71 (б), Stw 505 (в), Stw 573 (г).
Другой важный вопрос – наличие Australopithecus africanus в Восточной Африке. К этому виду были отнесены грацильные австралопитеки из средних слоев Омо с датировками около 2,3 млн лет назад (например: Hunt et Vitzthum, 1986). Некоторые антропологи считают, что к африканусам можно причислить останки из местонахождения Южный Таквил (3,5 млн лет назад) и находки из Боури, описанные как A. garhi, в частности BOU-VP-12/130 (2,5 млн лет назад). С одной стороны, окаменелости из этих местонахождений очень фрагментарны, с другой – имеют отличия от “классических” афаренсисов из Лаэтоли и Хадара, с третьей – похожи на южноафриканских грацильных, но все же не совсем идентичны им. Учитывая, что грацильные австралопитеки Южной Африки в среднем моложе восточноафриканских, можно расценивать их различия как обусловленные временем, тогда находки из Омо и Боури логично вписываются в концепцию “хронологического A. africanus”. Если же считать, что грацильные австралопитеки Южной и Восточной Африки возникли независимо друг от друга, то надо допустить миграции африканусов с юга до Эфиопии около 2,5 млн лет назад, если не раньше.
Большинство современных антропологов считают, что A. africanus не участвовал в сложении нашего вида, но так думали не все и не всегда. В первой половине XX века, до открытий в Восточной Африке, африканусы были единственными известными обезьянолюдьми, и неудивительно, что многие ученые старательно выискивали в них человеческие черты. Так, черные прослои и пятна на костях из Макапансгата были приняты за следы древнейших очагов и обугленности. После выяснилось, что это окислы марганца. Р. Дарт собрал впечатляющую коллекцию костей, рогов и зубов из южноафриканских пещер и описал остеодонтокератическую – костно-зубо-роговую – культуру (Dart, 1957). Сломы на концах костей и рогов он принял за результаты использования, а разрушения на черепах павианов – за следы ударов костями (причем якобы повреждено аж 80 % найденных черепов, а расположение проломов позволило утверждать о праворукости охотников), а также считал, что двойные вмятины на некоторых из этих черепов соответствуют мыщелкам длинных костей копытных, найденных рядом.
Надо отдать Р. Дарту должное, он не был голословен: среди богатых этнографических коллекций, собранных среди бушменов, он обнаружил удивительно точные параллели остеодонтокератическим обломкам. Некоторые изделия, кажется, делал один человек, только вот на бушменских есть орнамент, а на австралопитечьих – нет. Однако исследование некоторых образцов из “остеодонтокератической” коллекции новейшими методами показало, что характерные повреждения их концов – это погрызы гиен, а не рабочая изношенность. Так что, видимо, “культура” австралопитеков на самом деле является объедками падальщиков; впрочем, проверялись далеко не все собранные Р. Дартом кости, так что надежда на реабилитацию южноафриканских австралопитеков еще остается.
Светлым лучиком в беспробудной тьме, окружающей интеллект австралопитеков, является одна уникальная находка: в Макапансгате в брекчии с датировкой 2,5–3 млн лет найден круглый камень красного цвета – размером с кулак без следов обработки. Самое интересное, что ближайшее местонахождение такой породы расположено за 32 км от пещеры. Ясно, что камень не сам прополз эту дистанцию. А ведь это целый дневной переход – немалое расстояние, тем более что нести камень надо было все время в руке, корзин и мешков-то еще никто не изобрел! Более того, естественные выщерблины на камне напоминают глаза и рот, образуя чудную рожицу. Как знать, может, некий первобытный эстет, гуляя по родной степи, усмотрел в этом булыжнике свое отражение и не поленился притащить его домой? Камень из Макапансгата – древнейшее “прикольно” или “хочется чего-то этакого, чтоб душа развернулась, а потом обратно завернулась”. А может, это самый первый смайлик?
Мозговитый Беби из Таунга – несостоявшийся прогресс? Чем больше антропологи смотрят на старые находки, тем больше интересного видят. Ныне взгляд обратился на дартовского Беби из Таунга – классический череп детеныша австралопитека, первый в великолепном ряду последующих открытий. Кажется, за предыдущие без малого 90 лет про Таунга выяснили все что можно, например, что его заклевал злой орел. И вот теперь международная (какая же еще в век глобализации?) группа исследователей заострила свое внимание на наличии следов метопического шва на эндокране – естественном слепке мозга – Таунга. Метопический шов – это шов между двумя половинками лобной кости. То есть лобная кость у ребенка вообще-то изначально парная, но правая и левая части обычно срастаются примерно к двум годам. Однако же следы шва, а то и он весь регулярно остаются незаращенными. Этот факт всегда обращал на себя внимание антропологов, но в палеоантропологическом аспекте им занимались мало, обычно просто констатируя случаи сохранения шва на взрослых черепах. В нынешнем же исследовании ученые сравнили частоту незаращения шва у шимпанзе, ископаемых гоминид и современных людей (Falk et al., 2012). Выяснилось, что у обезьян метопический шов закрывается почти у всех детенышей к моменту прорезывания второго молочного моляра, а ко времени прорезывания третьего постоянного у всех поголовно особей исчезают даже его следы. У современных же людей, хотя между первым и вторым молочными молярами частота наличия шва резко падает, частенько шов или его следы остаются на всю жизнь. У ископаемых гоминид картина тоже весьма показательна. Среди массивных австралопитеков – южно– и восточноафриканских – не известно ни одного случая сохранения хотя бы следов шва. А вот среди грацильных австралопитеков, “ранних Homo”, эректусов и неандертальцев частота шва или его следов весьма высока, видимо, не меньше, чем среди современных людей. Авторы статьи предположили три причины такой ситуации. Во-первых, шов мог сохраняться для облегчения родов большеголовых детенышей прямоходящими самками. Правда, остается неясным, зачем тогда шву быть открытым многие годы после этого радостного события? И почему тогда парантропы остались в стороне от прогресса? Мозгов у них было примерно столько же, что и у грацильных австралопитеков, а челюсти – крупнее. Во-вторых, долгое сохранение шва после родов могло способствовать росту мозга у детеныша. Наконец, в-третьих, оно может отражать прогрессивную перестройку новой коры головного мозга, в особенности лобной доли – самой продвинутой, отвечающей за мышление как таковое. Очевидно, все эти причины взаимосвязаны и, скорее всего, действовали одновременно. В этом свете логично, что шимпанзе и парантропы рано обретают “твердолобость” – жевательные мышцы для них важнее интеллекта. Красиво, хотя моя ехидная память подсказывает одно маленькое но. Помнится, в 1995 г. одна из авторов нынешней статьи – Дин Фальк, известная своими исследованиями ископаемых эндокранов, в составе авторитетного авторского коллектива доказывала, что Беби из Таунга с наибольшей вероятностью – детеныш не африканского австралопитека, а парантропа (Falk et al., 1995). Уникальная закавыка систематики, если учесть, что Беби – голотип Australopithecus africanus! Впрочем, может, среди парантропов были свои прогрессивные представители. С другой стороны, он же погиб ребенком, явно не оставив своих продвинутых генов в потомстве; крючковатые когти орла пресекли прогресс парантропов… Родители-то были еще дремучие, не отмахались от грозной птицы, не уберегли драгоценное чадо! Приятно сознавать, что наши предки, обогащенные позднесрастающимся метопическим швом, оказались смышленее и прогрессивнее. Не то эту статью писал бы этакий клацающий челюстями “щелкунчик”-постпарантроп. Однако повторим великую истину: палеонтология не терпит сослагательного наклонения. Кстати, об ужасах систематики… Как было упомянуто выше, Беби из Таунга запросто может быть детенышем массивного австралопитека (Falk et al., 1995). В пользу этого говорят три основных признака, типичных именно для парантропов: во-первых, увеличенный затылочно-краевой синус – сосуд на задней стороне мозга для оттока венозной крови; во-вторых, наднебное расширение верхнечелюстных синусов – полостей в теле верхней челюсти; в-третьих, сравнительная площадь бугорков на первом нижнем моляре. По всем этим показателям Таунг оказывается парантропом. Но можно ли тогда вообще называть его этим словом? Ведь Таунг – голотип вида Australopithecus africanus, значит, это название по правилу приоритета должно использоваться для обозначения южноафриканских массивных австралопитеков. Тогда южноафриканские грацильные будут носить имя Plesianthropus transvaalensis, восточноафриканские грацильные – Plesianthropus afarensis, нынешние анаменсисы должны бы именоваться Plesianthropus africanus (учитывая название Meganthropus africanus, данное Г. Вейнертом в 1950 г. челюсти из Гаруси), а восточноафриканские массивные – Australopithecus boisei. И это без учета мнений, согласно которым восточноафриканские грацильные достойны собственного родового названия Praeanthropus, а восточноафриканские массивные – Zinjanthropus. Вот к чему приводят случайности! Если бы Р. Дарту первым попался череп взрослого австралопитека, этой ужасной путаницы удалось бы избежать. А теперь систематики вынуждены иногда просыпаться в холодном поту и с липкими руками – когда им снится кошмар, что кто-то особо въедливый и принципиальный поставил-таки вопрос ребром о пересмотре названий. Избежать этого ужаса можно, доказав, что все же Таунг – грацильный австралопитек, или переопределив голотип. Впрочем, антропологи осознают, какие названия и по отношению к кому они используют, друг друга они понимают, а потому живут без лишних формальностей.На исходе века, в 1999 году, научный мир узнал о новом виде австралопитеков…
Австралопитек гари Australopithecus garhi – крайне любопытное существо, фрагменты черепа и конечностей которого найдены в Эфиопии в местонахождениях Боури, Гамеда, Матабайету, а также, возможно, Ндоланья и Кооби-Фора и имеют возраст 2,5 млн лет (Asfaw et al., 1999). Это – самый поздний из грацильных австралопитеков. Здорово, что в Боури обнаружен фрагментарный скелет BOU-VP-12/1, отлично описанный (DeGusta, 2004), только отчего-то непропиаренный и потому малопопулярный.
Череп BOU-VP-12/130 своеобразен: лобная кость с достаточно мощным надбровьем, а височные линии, видимо, еще на лобной кости сходились в сагиттальный гребень, который заканчивался уже на теменной, – такой вариант резко отличается от версии A. afarensis и A. africanus, у которых гребень был смещен далеко назад. Уникальна верхняя челюсть: альвеолярный отросток выпуклый как поперечно, так и продольно, крайне сильно выдается вперед, отчего его передний конец аж поднимается наверх, а резцы оказываются торчащими вперед. Такого прогнатного гоминида планета не видела ни до, ни после. Форма альвеолярной дуги – как верхней, так и нижней – крайне архаичная, U-образная, больше всего похожая на типичную для A. anamensis – гораздо более древнего вида. Другой особенностью A. garhi являются очень большие зубы – как задние, так и передние. Моляры этого вида сопоставимы со значениями не самых крупных парантропов, но вот огромные резцы ставят A. garhi явно особняком.

Рис. 11. Череп Australopithecus garhi.
Крайне интересно, что посткраниальные кости A. garhi больше похожи на таковые “ранних Homo”, чем A. afarensis. Это довольно неожиданно, коли уж гари не был нашим предком. Закономерно же то, что по строению скелета A. garhi родственнее восточноафриканским гоминидам, чем южноафриканским.
Рост A. garhi был стандартнейшим для австралопитеков – от метра до полутора. А вот пропорции конечностей BOU-VP-12/1 уникальны, такие не встречены больше ни у каких гоминид: руки были, видимо, резко удлинены относительно ног, причем в основном за счет увеличенных предплечий.
Получается, что гари был каким-то очень странным австралопитеком – последним грацильным, но очень уж крупнозубым, специализированным по черепу, но продвинутым по скелету. Он явно не входил в число наших предков, иначе пришлось бы допустить быстрое увеличение зубов и челюстей, а после такое же быстрое уменьшение, да и специализации его слишком своеобразны.
Как уже говорилось выше, австралопитеки гари с большой вероятностью изготавливали каменные чопперы и умели разделывать ими антилоп. А ведь к этому времени уже появились “ранние Homo” – наши прямые предки. Выходит, в Восточной Африке существовали как минимум две независимые, хотя и родственные группы, находившиеся на пути очеловечивания. Судя по тому, что Читатель этой книги явно не потомок австралопитеков гари, победили Homo, хотя мы и не знаем почему. Плюс к этому появившиеся тогда же массивные австралопитеки несколько позже тоже, видимо, стали изготавливать каменные орудия, причем восточноафриканские делали это независимо от южноафриканских.
Кстати, о массивных австралопитеках…
Глава 3. Щелкунчики, побежденные мышами: массивные австралопитеки.
Около 2,5 млн лет назад начались новые глобальные изменения климата. Ландшафты Африки стали еще более открытыми, широко распространились саванны. Вместе с ландшафтами изменилась и фауна. Эти преобразования коснулись и австралопитеков. Появились сразу две группы – “ранние Homo” и массивные австралопитеки, или парантропы.
Парантропы не были нашими предками, но их изучение интересно, так как дает возможность взглянуть на историческую альтернативу, параллельную нам эволюционную ветвь. Даже само название говорит о том же: “парантроп” буквально значит “околочеловек”. Это уникальные существа, не имеющие никаких аналогов в современной фауне.
Предками восточноафриканских массивных австралопитеков были, по-видимому, Australopithecus afarensis. В облике первых парантропов очевидным образом прослеживается план строения афаренсисов. Фрагмент свода черепа KNM-ER 2602 с датировкой 3,3 млн лет назад описывался и как Australopithecus afarensis, и как Paranthropus aethiopicus, так что он может считаться достающим звеном между этими видами (впрочем, в нем же подозревали и Kenyanthropus platyops). Фрагменты верхних челюстей Omo L 55-s-33 и EP 1500/1 намного моложе – 2,6–2,7 млн лет назад, они уже явно принадлежали массивным австралопитекам. А челюсть Omo L 18-1967-18 из еще более позднего уровня (2,5 млн лет назад) послужила голотипом для описания рода и вида Paraustralopithecus aethiopicus (Arambourg et Coppens, 1968). В дальнейшем ранг древнейшего вида массивных австралопитеков был понижен, и ныне он называется…
Парантроп эфиопский Paranthropus aethiopicus известен из нескольких восточноафриканских местонахождений – Кооби-Фора, Ндоланья, Омо, Локалеи – с датировками от 2,7 до 2,3 млн лет назад. Особенно знаменит “Черный череп” KNM-WT 17000, уникальный своей сохранностью. Он очень похож на череп афарского австралопитека, но его челюсти гораздо крупнее, а моляры больше, хотя и недотягивают до значений, типичных для поздних парантропов. От последних “Черный череп” отличается сильнейшим прогнатизмом: выступанием челюстей вперед он превосходит даже горилл! Тяжелые челюсти приводились в действие мощными жевательными мышцами, крепившимися на сагиттальном гребне. Крупная морда уравновешивалась шейными мышцами, тянувшими за выйный гребень. Лицо эфиопского парантропа широкое, резко уплощенное, даже вдавленное, с огромными скуловыми дугами, не достигавшими, впрочем, степени развития Paranthropus boisei. Объем мозга KNM-WT 17000 – 410 см³, а форма мозга типична для парантропов; в частности, височная доля выступает очень слабо. В отличие от позднейших парантропов, Paranthropus aethiopicus имел крупные клыки и не слишком маленькие резцы.
Про этот вид известно не так уж много. Другие находки намного фрагментарнее. Кстати, выдвигалось предположение, что череп BOU-VP-12/130 принадлежал самке P. aethiopicus, но его специфика все же слишком велика, а сходство объясняется, видимо, происхождением от одного предка – афарского австралопитека.
Сами же парантропы быстро эволюционировали и уже спустя несколько сотен тысяч лет превратились в новый вид…
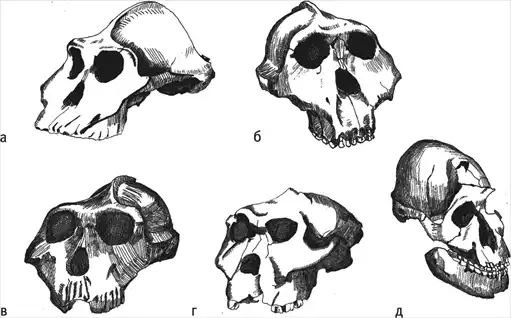
Рис. 12. Череп Paranthropus aethiopicus KNM-WT 17000 (а), черепа Paranthropus boisei OH 5 (б) и KNM-ER 406 (в), черепа Paranthropus robustus SK 48 (г) и DNH 7 (д).
Парантроп Бойса Paranthropus boisei обитал в Восточной Африке, на территории нынешних Танзании, Кении и Эфиопии в интервале примерно от 2,5 до 1,1 млн лет назад. Самые ранние P. boisei трудноотличимы от P. aethiopicus, так что многие находки имеют двойное определение. Около 2–1,5 млн лет назад это был едва ли не самый массовый вид австралопитеков, о чем говорит и обилие местонахождений – Омо, Каитио, Кангатукесео III, Нату, Чесованжа, Консо, Кооби-Фора, Олдувай, Малема, Пенинж. Сами находки тоже радуют, ведь в нашем распоряжении целый ряд почти целых черепов – OH 5, KGA10–525, KNM-ER 406, KNM-ER 732, KNM-ER 13750, KNM-ER 23000, Omo L 323-1976-896, KNM-WT 17400, KNM – CH 1, не говоря об отдельных челюстях, зубах и посткраниальных костях (Wood et Constantino, 2007).
Массивные австралопитеки неспроста получили свое название. И неспроста первый описанный восточноафриканский череп – OH 5 – получил прозвище Щелкунчик (Leakey, 1959). Черепа бойсовских парантропов очень мощные, крупные, с развитыми гребнями для жевательной и шейной мускулатуры – сагиттальным и затылочным (даже у самок и подростков!), очень узким и плоским лбом, которого как бы даже и нет, довольно слабым надбровьем (выступающим, впрочем, сильнее, чем у грацильных австралопитеков), а также широко развернутыми толстыми скуловыми дугами. Дуги эти винтообразно изогнуты, за счет чего лишний раз укреплены. При взгляде сверху череп P. boisei ни с чем невозможно спутать, он похож на экзотический древнегреческий кувшин: надбровье выполняет роль венчика, экстремально выраженное позадиглазничное сужение – горлышка, скуловые дуги – ручек, мозговая коробка – тулова сосуда, а поперечный затылочный гребень – донца. От своих предков бойсовцы унаследовали уплощенность лица и развернутость скул вперед. Судя по всему, существовали высоко– и низколицые варианты, хотя пока неясно, привязаны ли они ко времени или географии. Челюсти парантропов просто огромные, но при этом ортогнатные, то есть не выступают вперед – так нагрузка на челюсти получается большей. Самая главная особенность парантропов – специализированная зубная система: резцы и клыки у них были очень маленькими, а вот премоляры и моляры – чудовищных размеров, причем морфологически премоляры очень похожи на моляры.
Очевидно, бойсовцы были специализированы по типу питания. Огромные зубы и челюсти явно были даны им неспроста. Как говаривал Винни-Пух: такой пастью, да медку бы! Но нет, изотопные анализы и микростертость эмали свидетельствуют о какой-то жесткой травянистой прибрежной растительности типа осоки. Надо сказать, до поры до времени такая экологическая ниша себя отлично оправдывала, неспроста останки парантропов встречаются в отложениях в разы чаще, чем “ранних Homo” (есть, правда, вероятность, что такое распределение обусловлено не численностью, а образом жизни и тафономией: парантропы могли жить на берегах и чаще попадать в воду после смерти, а “ранние Homo” – на удалении от водоемов и, соответственно, будущих геологических слоев). Впрочем, специализация специализацией, но экологическая пластичность приматов проявлялась и в парантропах: в местонахождении Пенинж, где найдена челюсть P. boisei, условия были самыми сухими из всех известных в Африке, а ландшафт представлял открытую травяную саванну.
Да и с интеллектом у них могло быть не все так печально, как может представиться из образа меланхоличного осокопожирателя. Мозг P. boisei был крупнее, чем у грацильных австралопитеков, – в среднем около 490 см³ с размахом от 390 до 545 см³. Его строение, правда, очень примитивное – с маленькой и резко суженной лобной долей, слабо выступающей височной, но все же чуть продвинутее современных шимпанзе. Такой уровень, весьма вероятно, позволял им изготовлять орудия труда, в том числе каменные. Другое дело, что при их образе жизни эти орудия были, надо думать, не очень-то и нужны: травы мало не бывает, рвать ее можно и руками, а от хищников удобно прятаться на деревьях.
Судя по посткраниальным костям, строением тела парантропы не слишком отличались от своих грацильных предков, с поправкой на массивность и размеры. P. boisei были крупными по австралопитековым меркам: до 1,24–1,56 м ростом и 34–49, возможно, даже до 70 кг весом. Половой диморфизм парантропов был выражен довольно сильно; по размеру самки были в полтора раза меньше самцов, а на их черепах височные линии могли не сливаться в сагиттальный гребень.
Древесный парантроп? Группа массивных австралопитеков – парантропов – известна уже давно, почти сто лет. В Южной и Восточной Африке за это время найдены едва ли не тысячи зубов и многие сотни обломков черепов и прочих костей от нескольких сотен индивидов. Но вот что удивительно: до сих пор ни одного даже фрагментарного скелета не было найдено! Это может показаться загадочным, тем более что парантропы были даже более многочисленными, чем, например, “ранние Homo”. Однако факт остается фактом – скелетов нет. Объясняется сия странность главным образом обстоятельствами смерти парантропов. Слишком часто они попадали на ужин местным хищникам. А ведь только в дешевых комиксах, на карикатурах и неудачных реконструкциях рядом с логовом ужасных хищников-людоедов лежат аккуратные скелетики. В действительности львы и леопарды разрывают добычу на мелкие клочки, а гиены и шакалы обычно не оставляют после себя ни одной целой кости. Одна и есть надежда у палеонтологов – неаккуратные крокодилы, щедро раскидывающие куски тела жертвы, да еще в воде, где их не могут достать падальщики и где идеальны условия захоронения. К сожалению, древние гоминиды нечасто лезли плавать в пруды с родичами динозавров. А потому чрезвычайно интересна находка, сделанная недавно в Олдувае, – фрагментарный, но все же скелет OH 80, имеющий датировку 1,34 млн лет назад и принадлежащий виду Paranthropus boisei (Dominguez-Rodrigo et al., 2013). Конечно, слово “скелет” многих может ввести в заблуждение. Те огрызки, что получили общий номер OH 80, не выглядят скелетом с точки зрения обычного человека. Но как они радуют сердце антрополога! Парантроп OH 80 тоже был съеден какими-то хищниками, а его останки разбросаны на довольно большой площади, но ныне заботливо собраны палеонтологами. Это девять зубов, обломок нижней части плечевой, верхние части лучевой и бедренной костей, а также осколок диафиза большой берцовой кости. “И это все?” – слышится разочарованный голос Читателя. Да, пока все, но доселе и этого у нас не было, а по этим обмылкам антропологи тоже могут сказать довольно много интересного. По крайней мере, решилась одна из великих проблем, мучивших доселе исследователей ранних гоминид Африки: костей удалось найти уже довольно много, но систематика построена на зубах и черепах, а принадлежность, скажем, бедренной кости, найденной в гордом одиночестве, всегда будет вызывать споры и сомнения. А ведь в интервале времени от 2,5 до 1 млн лет в Африке жили разные виды парантропов и “ранних Homo”. Конечно, предполагали, что те кости, что пограцильнее и больше похожи на человеческие, относятся к нашим предкам, а те, что потолще и постраннее, – парантропам. Однако четких доказательств тому не было. Парочка разбитых скелетов Homo habilis свидетельствовала, что и у наших предков сохранялась масса примитивнейших черт. Парантропы же и вовсе оставались “белым пятном” в плане строения ниже головы. Собственно, не было даже известно, действительно ли массивные австралопитеки были такими уж массивными помимо своих мощных челюстей. И вот оно счастье – OH 80! Да будет благословен 2013 год! Лучшим образом сохранилась лучевая кость, во вторую очередь – бедренная. На лучевой поражает развитие лучевой бугристости, что означает мощнейшее развитие бицепса. Также обращает на себя внимание рельефность и толщина межкостного края, на коей крепится межкостная перепонка, соединяющая локтевую кость с лучевой и препятствующая их расползанию друг от друга. Нелишне вспомнить и локтевую кость OH 36, найденную в Олдувае еще в 1970 г.: ее межкостный край развит довольно слабо, но кость толста и крива, а локтевая бугристость и гребень пронатора (мышцы, поворачивающей кисть назад) развиты очень сильно. В совокупности это означает мощнейшие нагрузки на руки. Вряд ли парантропы ковали молотом в кузнице, таскали из магазина тяжелые сумки, набитые продуктами, или участвовали в соревнованиях бодибилдеров. Такие особенности костей предплечья парантропов можно объяснить по-разному: либо они регулярно поднимали камни с бревнами в поисках, скажем, личинок, либо управлялись с мощной растительностью, либо ковыряли термитники, либо просто имели много соответствующих гормонов вследствие причуд полового отбора, либо регулярно лазали по деревьям, подтягивая свое мощное тело на ветвях. В пользу первых двух вариантов свидетельствуют данные разных палеодиетологических анализов, второго – археология, третьего – оценки полового диморфизма, четвертого – асимметрия ямки головки той же лучевой кости. Такая асимметрия имеется у современных шимпанзе и горилл, тогда как у человека ямка более-менее симметрична. Выходит, парантропы часто держали руки ладонями назад в несколько полусогнутом положении и редко поворачивали ладонями вперед. Кисть восточноафриканских парантропов совершенно неизвестна, но у южноафриканских она была довольно продвинутой, в принципе приспособленной для изготовления каменных орудий труда. Если бойсовские парантропы имели кисть как у своих южноафриканских родственников, то их руки получаются совсем необычными: обезьяньими в большей части, но с прогрессивной кистью. Бедренная кость OH 80 отличается крайне толстыми стенками – вне пределов изменчивости архантропов. Вообще, по этому показателю OH 80 является абсолютным рекордсменом среди гоминид, живших ранее миллиона лет назад. Резко выраженный рельеф для прикрепления мышц свидетельствует о мускулистости филейных частей парантропа. Само расположение прикрепления мышц вполне человеческое, а ягодичная бугристость сдвинута даже дальше внутрь, чем у большинства Homo erectus (смещение внутрь – более прогрессивный вариант, чем расположение бугристости сбоку; в первом случае большая ягодичная мышца распрямляет ногу, а во втором – отводит в сторону). Есть и иные продвинутые черты OH 80, например передне-задняя уплощенность верхней части диафиза и резко выраженная шероховатая линия. Бедренная кость парантропа очень прямая, но трудно сказать, как это сказывалось на ее функциях. Длину тела OH 80 по таким обломкам установить проблематично, но оценки на основе бедренной кости дают минимальный рост около 1,56 м. Таким образом, массивные австралопитеки действительно были очень даже массивными не только в челюстях, но и всем телом. Это были необычные существа: совершенно своеобразная голова, обезьяньи руки, продвинутая кисть и достаточно человеческие ноги. Не слишком большой рост компенсировался мощью мускулов. Впрочем, сила не спасала парантропов от хищников, а мелкие, но более сообразительные родственники ковали свое будущее, уходя все дальше в саванну, отращивая мозги и изобретая культуру. Закат парантропов приближался. А нам остались их кости. Пожелаем же исследователям Олдувая успехов в новых сезонах!Массивный парантроп Paranthropus robustus – южноафриканский вид (чтобы не писать каждый раз латынь или длинное словосочетание “южноафриканский массивный австралопитек”, часто пользуются вульгаризмом “робустус”). Сотни фрагментов его костей и более тысячи зубов от полутора сотен индивидов найдено в целом ряде местонахождений: Сварткранс, Кромдраай, Дримолен-Кейв, Гондолин, Куперс, Стеркфонтейн – все это классика палеоантропологии. Временные рамки существования вида – от 2 до 1,5 млн лет назад – определены не вполне точно в силу особенностей южноафриканской стратиграфии; весьма вероятно, что робустус появился на сотню-другую тысячелетий раньше указанного тут срока и исчез около миллиона лет назад.
Между прочим, P. robustus был вторым описанным видом австралопитеков. Первый череп – TM 1517 – 8 июня 1938 года нашел школьник Г. Тербланч – и успел вышибить ему несколько зубов булыжником. Слава прогрессу, к месту экзекуции вовремя подоспел Р. Брум, выменявший бесценное сокровище за пять шоколадок. В том же году он описал новый вид (Broom, 1938). Вслед за этим находки пошли косяками – можно вспомнить более-менее целые черепа SK 46, SK 47, SK 48, SK 79, DNH 7, TM 1517, SK 11, но есть и другие.
Череп робустусов не так массивен, как у бойсовцев (по справедливости робустусами – “мощными” – надо было бы назвать именно восточноафриканских парантропов, но история открытий сложилась так, как сложилась), но тоже немаленький. Сагиттальный и затылочный гребни вполне выражены, надбровье умеренное. Лоб резко скошен и сужен до маленького треугольника между сходящимися височными линиями. Лицевой отдел P. robustus выступает вперед больше, чем у P. boisei, но все же намного слабее, чем у грацильных предков. Лицо уплощено сильнее, нежели у восточноафриканских родственников, скулы резко развернуты вперед; небо глубже, чем у P. boisei. Скуловые дуги развернуты не так размашисто, как у P. boisei, по бокам они спрямлены и параллельны мозговой коробке, а не выпуклы вбок. Характернейшая черта робустусов – “передние лицевые валики”, такие же, как у африканусов, но широкие и иногда раздвоенные; ими же южноафриканские парантропы отличаются от восточноафриканских (среди коих подобным украшением – и то очень слабо развитым – может похвалиться лишь KNM-ER 732).
Резцы и клыки робустусов очень маленькие, а премоляры и моляры заметно увеличены, хотя и не достигают рекордов бойсовцев. Специфично для южноафриканских парантропов удвоение корней на всех премолярах, а на вторых верхних – даже утроение.
Посткраниальный скелет робустусов известен лучше, чем для восточноафриканских парантропов. На удивление, он не слишком отличается от типичного для “ранних Homo”, в большинстве случаев их останки почти неразличимы. Впрочем, это не значит, что кости парантропов аналогичны современным человеческим, в них хватает обезьяньих черт, хотя выраженных в меньшей степени, чем у грацильных австралопитеков. В частности, нижний конец лучевой кости был сильно изогнут, но не имел специализаций к “костяшкохождению”. Кисть робустусов была чрезвычайно прогрессивной – с седловидным первым запястно-пястным суставом, расширенными головками концевых фаланг, приостренными выростами-остеофитами на этих головках. Все эти черты входят в комплекс трудовой кисти (хотя и необязательно говорят об изготовлении орудий, так как остеофиты, например, встречаются иногда и у павианов).
Интересен таз робустусов, так как он сочетает явные черты прямохождения со специфическими особенностями. В частности, он был очень широким, седалищный бугор – маленьким и узким, далеко отстоящим от вертлужной впадины. Длинные кости ног и стопа парантропов в целом скорее человеческие.
Несмотря на гордое название “мощные”, робустусы имели не такие уж гигантские размеры – рост 1,1–1,3 м и вес 30–43, максимум 53 кг. Самцы превосходили самок, как это водится у приматов, но не чрезмерно.
Систематика южноафриканских парантропов не так проста. Первый череп из Кромдраая, как уже было сказано, был описан под названием Paranthropus robustus, но позже в Сварткрансе обнаружилось намного больше останков, кои показались крупнее и массивнее кромдраайских. Посему Р. Брум и Дж. Робинсон описали новый вид – парантроп крупнозубый Paranthropus crassidens. Голотипом послужила нижняя челюсть SK 6 действительно впечатляющих размеров (Broom, 1949). Отличием от робустуса были названы бóльшие размеры зубов. В последующем самостоятельность двух видов южноафриканских парантропов долго и с чувством обсуждалась. Все же различия выборок из Кромдраая и Сварткранса слишком незначительны для признания валидности двух видов, так что ныне термин Paranthropus crassidens вспоминают только при изложении истории антропологии.
Гораздо актуальнее проблема единства или независимости происхождения (говоря по-умному, монофилии или полифилии) восточно– и южноафриканских массивных австралопитеков. С одной стороны, условно-синхронное появление двух специализированных по зубо-челюстной системе, схожих по строению неба и альвеолярной дуги видов в двух не слишком изолированных регионах Африки вроде бы подразумевает общего предка, а различия могут быть списаны на географическую удаленность (в очередной раз уместно вспомнить павианов). С другой стороны, по морфологии вырисовываются две довольно четкие и независимые линии: одна от A. afarensis через P. aethiopicus к P. boisei, а другая – от A. africanus через массивных A. africanus к P. robustus. В пользу самостоятельного возникновения южноафриканских парантропов можно привести целый ряд аргументов: общую конфигурацию лица, глазниц, межглазничного пространства, скуловых дуг, “передние лицевые валики”, форму верхнего края чешуи височной кости, рисунок швов на черепе, строение лучевой кости – по всем этим и некоторым другим особенностям робустусы похожи на африканусов и отличаются от восточноафриканских австралопитеков. Кроме прочего, новейшие изыскания показали, что робустусы и бойсовцы придерживались совершенно различных диет и вели, вероятно, весьма несхожий образ жизни. Но если парантропы Восточной и Южной Африки появились из разных грацильных видов, можно ли относить их к одному роду? Это вопрос вопросов систематики! Хорошо “объединителям” – они валят и грацильных, и массивных австралопитеков в один род Australopithecus, а то и Homo, и горя не знают. Но тяжка доля “дробителя”. Благо великие антропологи прошлого снабдили нас избытком альтернативных названий, из которых можно выбрать любое удобное сочетание. Например, первый восточноафриканский массивный австралопитек OH-5 был первоначально описан Л. Лики как Zinjanthropus boisei – зинджантроп, так отчего же не пользоваться столь звучным именем? Тогда парантроп эфиопский должен зваться вовсе не парантропом, а Zinjanthropus aethiopicus.
Но стоит укрепиться позициям “дробителей”, как обязательно находится знаток с хитрым статистическим методом, который как дважды два показывает, что P. robustus и P. boisei различаются вообще только на уровне подвидов, а не видов, не говоря уж о родах, а их отличия сопоставимы с разницей подвидов шимпанзе Pan troglodytes troglodytes и Pan troglodytes schweinfurthii, но недотягивают до масштаба Pan troglodytes – Pan paniscus (например: Thackeray et Prat, 2009). Так и колеблются таксономические весы; будущим поколениям антропологов еще явно есть чем заняться.
Кстати, о попугайчиках… В южноафриканском местонахождении Кромдраай найдена плечевая кость попугая-неразлучника. В этих же слоях обнаружены и кости парантропов. А большинство неразлучников живут в довольно лесистой местности, где гнездятся в дуплах. Из этого был сделан вывод, что экосистемы плейстоценового Кромдраая представляли собой сильно облесенные или даже покрытые настоящим лесом долины (Stidham, 2009). Однако не все так просто (Perrin, 2011). Кость из Кромдраая очень мала, а самые короткокрылые виды неразлучников живут как раз в самых открытых местообитаниях, тогда как лесные длиннокрылы. К тому же современные неразлучники той же области – самые зерноядные или даже траво-семеноядные из всех, но не фруктоядные (что было бы логично, будь их предки лесными), а гнездятся хоть и в дуплах, но не лесных деревьев. Такие вот вещи приходится знать и учитывать антропологам! И пусть после этого кто-нибудь скажет, что антропология скучна, потому что зациклена на одном виде.В еще более глобальной перспективе неочевидно решение проблемы родового единства австралопитеков и парантропов. В первой половине XX века антропологи были склонны выделять все новые и новые роды, во второй – объединять их воедино, а ныне одновременно существуют два подхода: склонные к морфологическому анализу исследователи признают валидность Paranthropus, а сторонники коннексии палеонтологических и генетических данных указывают, что коли неочевидна даже родовая самостоятельность шимпанзе и человека, то что уж говорить об австралопитеках с парантропами. Надежды на сохранность ископаемой ДНК австралопитеков нет – слишком много времени прошло, так что решение за разработкой новых методик, в том числе за пониманием принципов формирования фенотипа на основе генотипа и отсюда – реконструкции генов австралопитеков по ископаемым костям. Пока это фантастика, но вся биология последних 150 лет – беспрерывный прорыв в неведомые области, дающий все новые и новые возможности. Так не будем же пессимистами!
Невозвращение блудных дочерей. Хороший пример торжества научного прогресса – исследование соотношения изотопов стронция 87Sr/86Sr в эмали восьми зубов африканусов и одиннадцати робустусов из Стеркфонтейна и Сварткранса (Copeland et al., 2011). Дело в том, что стронций накапливается в эмали только во время роста зуба, то есть в детстве, а соотношение изотопов резко меняется от местности к местности. Сравнивая стронций в зубе с типичным для места обнаружения, можно понять, какой индивид родился тут, а какой пришел сюда издалека. Так как для обоих видов характерен довольно существенный половой диморфизм, то по размерам зубов возможно прикинуть, кто самец, а кто самка. Выявилось весьма показательное распределение: среди A. africanus три самца местные, а неместных вовсе нет, три самки местные и две неместные; среди P. robustus пять самцов местных и лишь один неместный, две самки местные и три неместные. Иначе говоря, половина самок пришли извне, но лишь один самец оказался приблудным (кстати, очень большой), тогда как все прочие всю жизнь прожили там же, где родились. Такое поведение называется самцовой филопатрией (а это даже круче, чем патриотизм!), оно типично для шимпанзе и многих групп людей. Гориллы же кочуют или остаются на родине независимо от пола. Такие вот возможности открывает перед нами прогресс.В промежутке между полутора и одним миллионом лет назад парантропы вымерли. Выше уже говорилось, что мы, честно говоря, не в курсе, что их сгубило. Вообще-то, часто мы не знаем причин вымирания даже современных видов, что уж говорить о делах давно минувших дней. Но логичным кажется предположение, что массивных австралопитеков сгубили климатические изменения вкупе с конкуренцией. Климат становился суше, а местообитания – более открытыми, это мы знаем. Но разве можно сгубить экологически пластичных приматов банальной засухой? Другое дело – конкуренты. Ими могли быть первые представители нашего рода Homo, как раз доэволюционировавшие в это время до нового вида H. erectus. В этот же интервал набирает обороты ашельская культура; ясно, что люди становились все интеллектуальнее и интеллектуальнее. Могли ли они истребить парантропов? Вопрос… Ведь предыдущий миллион лет парантропы и люди только расходились экологически и морфологически, удалялись друг от друга и при этом благополучно сосуществовали.
Не исключено, что парантропы были побеждены другого рода противниками, например грызунами. Гораздо более многочисленные, бурно плодящиеся и быстро приспосабливающиеся к новым условиям, они могли исподволь подрывать кормовую базу неторопливых приматов. Совокупность всех факторов подкосила парантропов, и они исчезли, антропологам на удивление и человечеству в поучение.
Парантропы – последняя группа австралопитеков, с их вымиранием исчезло и все подсемейство. Однако одновременно с парантропами в Африке появились новые гоминиды – “ранние Homo”, – беспокойные и прогрессивные, сделавшие ставку на разум.
Хомо сцапиенс. Хомо-сцапиенс зеленый под кустом сидит зеленым и какого-либо хому ожидает на обед. Руки-штуки напружинил, ноги-лапы приготовил, сабли-зубы растопырил, ухти-когти заголил… Человек – великий охотник. Он победил всех зверей на планете. Многие виды пали жертвой охотничьих талантов двуногого ловца, многие держатся из последних сил. В их числе и сами хищники – львы и леопарды, тигры и медведи. Но всегда ли было так? Давно ли на планете воцарился рукастый ужас, вооруженный не клыками и когтями, а умом и палкой? Кем были наши далекие предки, какое место занимали в иерархии животного мира? Палеоантропологические данные показывают нелестную для древнейших пращуров картину. Кости почти всех ранних австралопитеков – в том числе орроринов и ардипитеков – несут на себе следы зубов хищников. Хотя далеко не всегда можно понять, был ли австралопитек пойман леопардом, или он достался гиенам после естественной смерти, в некоторых случаях это можно установить надежно. Самым экзотическим случаем, наверное, является пример с Таунгом. Примерно от 3 до 2,5 млн лет назад австралопитеки Южной Африки жили в окружении массы хищников. Мы практически не имеем сведений о том, что австралопитеки могли на кого-то охотиться, скорее сами австралопитеки были добычей. Не избежал печальной участи и детеныш, известный ныне как Беби из Таунга. Ему было от трех до шести лет. Мы, конечно, не знаем деталей происшедшего, но следы на лобной кости свидетельствуют, что гибель бедняжки была насильственной. Можно предположить несколько вариантов событий. Во-первых, раны могли быть нанесены другими гоминидами, но против этого говорит их малый размер и слишком компактная форма. Во-вторых, Таунг мог оказаться жертвой леопарда. Но размер пасти и зубов леопарда таков, что он скорее проглотил бы Беби целиком или разгрыз его на мелкие части. Наконец, было выдвинуто третье, самое интересное предположение: характерные повреждения – поклевы орла. В поддержку такой гипотезы говорит сравнение с черепами бабуинов из гнезд современных орлов (Berger et Clarke, 1995): они примерно того же размера, у них тоже часто сохраняется лицевой скелет вместе с нижней челюстью и часть мозгового, совпадают следы поклевов. Да и в самом Таунге имеются черепа мелких обезьянок с аналогичными повреждениями и типом сохранности, в том числе с прикрепленной нижней челюстью. Как водится, не все исследователи согласны с таким сценарием. Отмечено, что в Таунге с охотой орлов связаны другие слои, тогда как череп Беби захоронен в водных отложениях (McKee, 2002). Однако останки могли быть перезахоронены и позже, а совокупность данных позволяет склониться к “орлиной” версии. “Орлуша, орлуша, большая ты стерва…”. Судьба Беби печальна. Зато в 1924 г. его череп с причлененной нижней челюстью и естественным слепком мозга оказался в руках Раймонда Дарта, который описал находку как “южную обезьяну” – Australopithecus africanus. Вообще, роль хищных птиц в эволюции приматов в целом и человека в частности может быть не такой уж малой. Ведь для мелких обезьян орлы – едва ли не главные враги. Крупному хищнику типа леопарда нет смысла гоняться за верткими мартышками, норовящими улизнуть на недоступные верхушки деревьев: больше сил потратишь на ловлю, чем получишь от тщедушной добычи. Обезьяны же еще кричат – нервы треплют, здорово соображают, их трудно обмануть, слишком ловкие и подвижные, а если сами мало-мальски крупные, то могут и сдачи дать. Орлу несколько легче – скогтил сверху, и вся недолга. Зато какой фактор отбора для обезьяньего интеллекта: кто побестолковее, не заметил опасности, прохлопал ушами – отправился в гнездо к голодным птенцам, остаются же самые внимательные. Да умного с большой тяжелой головой не особо и утащишь… Большая часть известных нам южноафриканских австралопитеков стали жертвами леопардов. Благодаря пятнистым бестиям мы и имеем останки наших древнейших предков. Леопарды имеют обыкновение затаскивать добычу на деревья, чтобы уберечь от назойливых посягательств вечно голодных гиен. А деревья растут там, где больше воды, что особенно актуально в засушливом южноафриканском климате. А вода скапливается в карстовых трещинах. Поэтому объедки кошачьих пиршеств падают с “обеденной ветви” прямо в пещерные бездны, где потом их замывает песком. В перемешанном с камнями прессованном виде образуется брекчия – подобие бетона, нашпигованное огрызками. Наиболее показательным примером такой цепочки событий является фрагментарный череп детеныша Paranthropus robustus SK 54. На его теменных костях зияют два отверстия, в которые идеально входят клыки леопарда (Brain, 1970). Подобная участь была характерна не только для массивных австралопитеков, но и более древних грацильных, что подробно показано для Australopithecus africanus из четвертого уровня Стеркфонтейна (Brain, 1981, 1993; Pickering et al., 2004). В Восточной Африке парантропы тоже были типичной добычей, хорошим образцом чего может служить скелет Paranthropus boisei OH 80. Только первые представители рода Homo осмелились сказать твердое “Доколе!” и попытались повернуть колесо фортуны в свою сторону. Начиная примерно с 2 млн лет назад первые люди сами стали хищниками, причем составляли неслабую конкуренцию гиенам и леопардам. Об этом свидетельствуют исследования в Канжере Южной (Ferraro et al., 2013). В чуть более позднее время схожую картину можно наблюдать в Дманиси (1,77 млн лет назад): следы каменных орудий на костях животных достаточно многочисленны и перекрываются отпечатками зубов падальщиков, так что можно уверенно говорить, что люди первыми получали доступ к мясу (Lordkipanidze et al., 2007). Захоронение костей дманисцев в расщелинах скал навело некоторых знатоков на мысль, что эти люди стали жертвами саблезубых тигров, затаскивавших троглодитов в свои мрачные логовища, благо тут обнаружены останки как минимум трех видов крупных кошачьих. Также как следы зубов хищника иногда интерпретируются два отверстия на основании черепа D2280. Однако подробное рассмотрение вопроса показало, что на человеческих останках нет погрызов, а сами кости удивительно целые, сохранились такие части скелета, которые всегда уничтожаются хищниками и падальщиками (Lordkipanidze et al., 2007). Впрочем, не всем так везло. Тогда как суровые предшественники грузин в горах Кавказа держали прочную оборону против усатых-полосатых, в других местах люди нет-нет да и попадались кому-нибудь на зубок. Один из самых кровавых примеров известен по находке в Олдувайском ущелье в Танзании. В слое с датировкой около 1,75 млн лет назад были обнаружены останки человека, ставшего голотипом при описании вида “человек умелый” Homo habilis. Череп с кистью OH 7 и ключица со стопой OH 8, а также большая и малая берцовые кости OH 35 найдены разбросанными по довольно большому участку. Нельзя быть абсолютно уверенным, принадлежали ли все эти останки одному индивиду, с большой вероятностью – нет. Но на таранной и обеих берцовых костях обнаружены недвусмысленные отпечатки крокодильих зубов (Brochu et al., 2010; Davidson et Solomon, 1990). Между делом обратим внимание, что кости относятся к двум разным левым ногам – не везло хабилисам на эту сторону. Более того, новооткрытый вид крокодила из тех же отложений получил кровожадное название Crocodylus anthropophagus. Как будто подчеркивая демоническую сущность чудовища, голову его украшали пусть небольшие, но все же рога. Да уж, классик не соврал: “…в Африке большие злые крокодилы, будут вас кусать, бить и обижать, не ходите, дети, в Африку гулять…” Одному из этих людей не повезло дважды: на теменных костях и нижней челюсти OH 7 есть следы зубов леопарда, такие же имеются и на большой берцовой кости вдобавок к крокодильим. Выходит, бедолагу сцапал усатый хищник, а после он достался водной гадине – за ногу его тянула злобная рептилия, а за голову пятнистая кошка; хоть кровавый ужастик “на основе реальных событий” снимай, даже придумывать ничего не надо! В Южной Африке во времена Homo habilis тоже продолжался террор кошачьих. Как и в эпоху Australopithecus africanus, кости в пятый уровень Стеркфонтейна (1,5–2 млн лет назад) попали в основном благодаря леопардам и гиенам (Pickering, 1999). Иногда им помогали сами гоминиды: на основании скулового отростка верхней челюсти индивида Stw 53 обнаружены надрезки, сделанные каменным орудием (Pickering et al., 2000). Все же прогресс шел. Те, кто покинул Африку, уже не были беспомощным мясом – кормом для любого встречного острозубого монстра. Останки архантропов и более поздних гоминид обычно не несут на себе явных следов убийства хищниками. Впрочем, и сейчас рецидивы случаются, что уж говорить о тех далеких временах. Нелегко жилось, например, обитателям Явы около миллиона лет назад и позже. Бедренная кость из Триниля (та самая, что послужила вместе с черепной крышкой голотипом для описания вида “человек прямоходящий” Homo erectus) несет на себе отпечатки зубов крокодила (Dubois, 1927). На ней же имеется мощная патология – бесформенное разрастание костной ткани в верхней части. Очевидно, что питекантроп хромал и вряд ли мог быстро двигаться. Вероятно, это и послужило причиной его кончины. Естественный отбор в действии… Кстати, опять же речь идет о левой ноге; видимо, злой рок преследовал несчастных гоминид – не с той ноги они ступали в реки. Отсюда мораль: если будете в Африке или на Яве, не повторяйте ошибок предков, не лезьте левой ногой в воду с крокодилами! Про правую наука пока молчит, можете поставить эксперимент… В Сангиране, также на Яве, следы зубов большого крокодила были опознаны на обломке нижней челюсти “мегантропа” 6B (Koenigswald, 1968). Впрочем, в данном случае между специалистами есть разногласия: новейший пересмотр находки показал, что отметины, вероятнее, являются посмертными повреждениями и не имеют отношения к злобным рептилиям (Baba et Aziz, 2001). В последующие времена люди окончательно вырвались из-под гнета хищников. Практически во всех случаях, когда человеческие кости повреждены чьими-то зубами, это зубы гиен. Отсутствие погребальной практики до некоторого момента способствовало тому, что трупы шли в желудки падальщиков. Это в полной мере относится ко многим костям синантропов из Чжоукоудяня: бедренных III, V, VI, VII, черепа V (Boaz et al., 2000). Бедренная V, кроме прочего, имеет следы переваривания гиеной. Судя по сопровождающим костям, людоедами были гигантские Pachycrocuta brevirostris. Однако нет доказательств, что синантропы доставались падальщикам при жизни, скорее те наведывались в пещеры в отсутствие двуногих хозяев. Поздние Homo erectus, Homo heidelbergensis и Homo neanderthalensis сами были опаснейшими хищниками своего времени. Об этом красноречиво говорят завалы костей в местах их стоянок. Неандертальцы любили, например, охотиться на пещерных медведей, которые хоть и были преимущественно растительноядными, но все же – громаднейшими медведями. Берцовая кость из Боксгроуф, череп Монте-Чирчео и скелет ребенка из Тешик-Таш, как бывало нередко и раньше, погрызены гиенами, но тут падальщикам приходилось раскапывать уже погребения. Неандертальца из Кова Негра, вероятно, поборол медведь или лев – на его правой теменной кости имеются очень уж характерные следы клыков (Camarós et al., 2015), – но это редкостное исключение, в целом люди и хищники к тому времени поменялись местами. Неандертальцы и их сменщики – кроманьонцы – стали наиболее вероятной причиной вымирания в Европе пещерных медведей, гиен и львов. В труднодоступных местах львы продержались в Европе, вероятно, до железного века, но судьба их была предопределена: конкуренция со стороны людей была слишком мощной. Более того, человек стал конкурентом не только крупным хищникам, но вообще всем живым существам, кроме разве тех, кто примкнул к нему в виде домашних животных и культурных растений. Мир еще никогда за все четыре миллиарда лет существования жизни не знал такого суперконкурента. Поэтому человек стал врагом не только всем прочим организмам, но и себе, ибо не может существовать в отрыве от биосферы. Неандертальцы вряд ли задумывались о последствиях этого экологического поворота. Оправдает ли современный человек присвоенное звание “разумного”? Обуздает ли свою разрушительную силу? Выйдет ли из завихрения эволюции? Будущее покажет…Глава 4. Звено между звеньями: “ранние Homo”, или Загадочный миллион: заря и первая половина истории Homo.
Около 2,5 млн лет назад, одновременно с парантропами, появились и более прогрессивные существа – так называемые “ранние Homo”. Они отличались от австралопитеков многими чертами, главная из которых – крупный мозг. В промежутке от 2 до 1 млн лет назад заметно изменились пропорции тела – от коренастых типично австралопитековых у хабилисов до вытянутых человеческих у эргастеров, что было связано с окончательным выходом в саванны и повышением мобильности, что, в свою очередь, стало одним из важнейших условий последующего расселения гоминид по планете и их приспособления к самым разнообразным условиям. Впрочем, не стоит преувеличивать прогрессивность “ранних Homo”; самые ранние их представители с трудом отличимы от грацильных австралопитеков, а некоторые ученые и вовсе считают их позднейшей разновидностью австралопитеков. К тому же “ранние Homo”, судя по всему, вовсе не были однородной группой, и далеко не все они – наша прямая родня.
Одна из основных особенностей “ранних Homo” – уменьшенный жевательный аппарат. Челюсти и зубы становились все меньше, жевательные мышцы ослаблялись, рельеф на черепе понижался. Навсегда исчез сагиттальный гребень – даже у самых крупных самцов его не было.
Кстати, о пользе височной мышцы… У человека есть четыре пары жевательных мышц; из них самая обширная – височная, она имеет веерообразную форму, так как начинается широкой дугой вдоль височной линии лобной и теменной костей, а кончается узким хвостом на венечном отростке нижней челюсти. Плоское брюшко височной мышцы закрывает мозговую коробку сбоку. У крупных приматов правая и левая мышцы сходятся на макушке на сагиттальном гребне, так что весь череп оказывается покрыт ей. Так как мышца по умолчанию толстая и мощная, она обеспечивает дополнительную защиту головы. От этого боковые стенки черепа оказываются тонкими, особенно район птериона – места соединения лобной, теменной, височной и большого крыла клиновидной кости, а чешуйчатый шов между височной и теменной костями сделан внахлест, довольно-таки непрочно. У человека же жевательная мускулатура особенно ослаблена, да и весь череп истончен в сравнении с обезьянами. Посему боковая часть черепа – висок – оказывается самой уязвимой. Поэтому и стреляться надо в висок: кость тут тонка, да к тому же расположена почти вертикально – не срикошетит.История человеческого рода насчитывает более двух миллионов лет. Но первая половина этого срока покрыта завесой не то чтобы полной неизвестности, но таинственности и загадочности. Что происходило до и позже – более-менее ясно, но в промежутке от примерно 2,5 до приблизительно 1,5 млн лет назад становление рода Homo сопровождалось бурными и неясными событиями. Часто эволюция человека представляется как последовательность стадий, но людям “загадочного миллиона” не повезло. Австралопитеки, парантропы, архантропы, палеоантропы, неоантропы – все получили свои законные обобщающие названия несмотря на то, что неоантропы, например, появились всего лишь – и это при самой оптимистичной оценке – 200 тыс. лет назад. А люди, жившие целый миллион лет, удостоились только невнятного обозначения “ранние Homo”, причем спорно и отнесение их к Homo, и то, можно ли называть ранними тех, кто жил, скажем, 1,5 млн лет назад – почти в середине общего родового срока. Хорошими названиями могут быть “эогоминины” или “преархантропы”, они уже использовались в литературе, хотя применяются редко.
Границы “загадочного миллиона”, как обычно в палеоантропологии и вообще палеонтологии, могут быть определены лишь приблизительно; конечно, палеонтология не равняется на круглые цифры. Резкой границы не было ни между австралопитеками и преархантропами, ни между последними и собственно архантропами. В целом, “загадочный миллион” укладывается в промежуток 2,5–2,2–1,5–1,2 млн лет назад.
“Самый загадочный миллион”: жизнь до Homo.
На самом деле “загадочных миллионов” было два. Первый из них лежит между 3 и 2 млн лет назад. Это самое интересное время, когда в Африке закончили свое существование грацильные австралопитеки и начали – парантропы и люди. В это же время появляются первые каменные орудия труда. Но этот промежуток времени минимально освещен палеоантропологически.
Во времена древнее 3 млн лет Африку населяли образцовые австралопитеки нескольких видов. В частности, в Хадаре большинство афарских австралопитеков имеют датировки от 3,9 до 2,9 млн лет назад. Например, классический череп AL 444–2 датирован 3 млн лет; AL 822–1 и AL 438–1, вероятно, чуть древнее – 3,1 млн лет назад; похожий возраст у находок AL 437, 439 и 440 (например: Kimbel et al., 1997, 2003).
В Омо в слоях формации Усно с датировками 3,0–3,3 млн лет назад обнаруживаются только кости австралопитеков, аналогичных хадарским и лаэтольским, то есть Australopithecus afarensis; останки из слоев B, C, D, E и F были описаны как Australopithecus africanus, что странно для Восточной Африки, но это в любом случае австралопитеки. В более поздней – 2,3 млн лет назад – формации Шунгура от слоя B до нижнего G по-прежнему следуют кости Australopithecus africanus, а вот в верхней части слоя G – уже Homo habilis, хотя фрагментарность находок не позволяет утверждать это с полной уверенностью.
В Западной Туркане, в Локалеи, правая бедренная кость KNM-WT 16002 была описана как Australopithecus sp. indet. (Brown et al., 2001); ее возраст 2,7±0,3 млн лет назад. В близких отложениях обнаружен “Черный череп” KNM-WT 17000 древнейшего парантропа – Paranthropus aethiopicus.
Кости из эфиопских местонахождений Боури, Матабайету и Гамеда с древностью 2,5 млн лет назад были описаны как Australopithecus garhi (Asfaw et al., 1999; Heinzelin et al., 1999). Это самые поздние достоверные грацильные австралопитеки, ряд специализаций которых свидетельствует, что они не были предками преархантропов. На австралопитеках гари род грацильных австралопитеков прекратил свое существование. Но небесследно; были как минимум две линии потомков: массивные австралопитеки (или парантропы) и преархантропы. О парантропах уже говорилось выше, они тоже оказались тупиком, а вот Homo стали новой цепочкой звеньев.
Самое интересное – момент происхождения рода Homo. Интервалом 2,7–2,3 млн лет назад (а это, между прочим, полмиллиона – немалый срок!) датируется до обидного немного находок. Имеющиеся же фрагментарны (что печально) и обладают противоречивым сочетанием признаков (что логично для переходных форм). Важно, что до 3 млн лет назад включительно обнаруживаются только и исключительно австралопитеки, а после 2,5 млн лет назад достоверных грацильных австралопитеков нет. Очевидно, в этом промежутке и надо искать основание нашего родового побега на древе гоминид.
Леди из Леди-Герару: первая леди среди людей? Истоки нашего рода кроются во мраке времен. До сих пор в нашем распоряжении были афарские австралопитеки, жившие более 3 млн лет назад, и уже более-менее настоящие Homo с возрастом чуть более 2 млн. Внутри же “самого загадочного миллиона” – в интервале от 3 до 2 млн лет назад – мы знали африканских австралопитеков и австралопитеков гари, которые с наибольшей вероятностью являются тупиковыми ветвями эволюции. Останков же наших предков известно крайне мало – каждый зуб на счету! Теперь же досадный пробел хоть немного, да заполнился! На местонахождение Леди-Герару в Эфиопии неспроста возлагалось много надежд. Тут сохранились слои как раз искомой древности. Исследователи ныне знают толк в поисках: они организуют экспедиции именно в те места, где с наибольшей вероятностью могут найти то, что им надо. Впервые область Леди-Герару была отмечена как перспективная еще в 1970-х годах, но исследовалась недостаточно, так как ученых мало, а Африка большая; все силы уходили на изучение Хадара и других, более богатых местонахождений. Тем не менее палеоантропологический проект в Леди-Герару тоже был запущен, и уже много лет доблестные охотники за первым человеком целенаправленно выслеживают тут свою добычу. И потому великой и одновременно ожидаемой сенсацией стал их законный трофей – фрагмент нижней челюсти LD 350–1 с древностью 2,75–2,8 млн лет назад (Villmoare et al., 2015). Челюсть LD 350–1 замечательна своим комплексом черт. Если рассматривать отдельные признаки (подробнейше разобранные в приложении к статье), то можно даже разочароваться: вроде ничего особенного и нету, просто мелкий афарский австралопитек. В принципе, таких в Хадаре найдено уже немало. Но если поставить LD 350–1 в соответствующее место хронологического ряда афаренсисов, африканусов, седиб, рудольфенсисов и хабилисов, то картинка наполняется глубоким смыслом. Гоминид из Леди-Герару оказывается, во-первых, промежуточным между афаренсисами и “ранними Homo”, а во-вторых, весьма грацильным. Первое вполне ожидаемо из датировки, но всегда приятно, когда теоретическое предсказание оправдывается и подтверждается реальностью. Важно, что LD 350–1 отличается от афарских австралопитеков даже не размерами, а тонкой морфологией челюсти – всяческими бугорками и вмятинками; также первый премоляр у LD 350–1 симметричный, что предполагает малые размеры верхнего клыка. Грацильность же интерпретирована авторами открытия как свидетельство того, что LD 350–1 представляет собой некую особо продвинутую версию предков человека, тогда как многие последующие “ранние Homo” оказываются специализированными тупиками. Авторы описания подробно и добросовестно разобрали параллели гоминиду Леди-Герару: KNM-ER 5431 из Кооби-Фора, зубы из Шунгуры в Омо и AL 666–1 из Хадара. Все они обладают схожим комплексом и могут быть включены в одну переходную группу от австралопитеков к Homo. Одновременно сопоставление LD 350–1 с A. africanus, A. garhi и A. sediba показывает специализированность последних и их неучастие в становлении рода Homo. Авторы считают, что Леди-Герару имеет более примитивную форму альвеолярной дуги, чем Homo habilis и Homo rudolfensis, так что его невозможно отнести ни к одному из этих видов. Как итог, авторы открытия склонны классифицировать LD 350–1 как древнейшего Homo и, более того, как очень особенного Homo, нашего Великого Предка. Ура, товарищи! И тут мой критиканский разум выдает два но. Во-первых, едва ли не основным отличием Леди-Герару от афарских австралопитеков назван рельеф челюсти: отсутствие понижения в месте подбородочного отверстия, наличие понижения между вертикальным валиком передней поверхности симфиза и клыковыми ямками. Но ведь в этом смысле нижняя челюсть – кость вообще весьма изменчивая! Открываем шкаф, достаем оттуда несколько челюстей (у каждого приличного антрополога есть шкаф с черепами) и элементарно убеждаемся в этом! Симметричность первого нижнего премоляра – особенность не только Леди-Герару, она встречается даже у Ardipithecus kadabba из Гоны, не говоря уж о афаренсисах. Еще два отличия от афаренсисов – отсутствие базального выступания гипоконида на M1 и M2 (у A. afarensis оно выражено), а также наличие седьмого бугорка на M1 (у A. afarensis он ни разу не отмечен) – в действительности могут варьировать индивидуально или популяционно, чему свидетельством современный человек. То есть отличия-то действительно есть и они действительно отличают LD 350–1 от австралопитеков в человеческом направлении, челюсть из Леди-Герару вправду промежуточна. Но можно ли придавать этим отличиям таксономический статус? Достаточно ли их, чтобы ввести Леди-Герару в элитный клуб Homo? Какой процент выступания гипоконида, какая площадь моляров и какой индекс массивности челюсти еще австралопитечьи, а какие – уже человечьи? Это вопрос вопросов! А Леди-Герару по многим показателям упорно попадает хотя и между австралопитеками и людьми, но скорее уж в пределы размаха австралопитеков, но остается за пределами изменчивости “ранних Homo”. Так не логичнее ли классифицировать его как очень прогрессивного австралопитека? Во-вторых, продвинутость LD 350–1 во многом следует из малых размеров. Но в статье отчего-то не рассматривается возможность, что пол этого индивида может быть женским, – этот вопрос обойден стороной. Ясно, что определение пола по половине челюсти – дело ненадежное, но и небезнадежное, ведь палеоприматологи делают это даже по изолированным клыкам. Корень клыка в LD 350–1 сохранился, и он небольшой, скорее всего, гоминид из Леди-Герару был-таки действительно леди, так что предположение о малых размерах как следствии женского пола, а не прогрессивности – вполне законно. В некотором роде это замечание позволяет иначе взглянуть и на морфологические особенности – ослабленность рельефа, сравнительную грацильность кости и симметрию премоляра. Сии критические замечания, конечно, не стоит воспринимать как попытку принизить величие открытия – оно действительно замечательно! Их смысл – немножко снизить градус пафоса, дабы избежать крайних суждений, которые потом будут с таким же накалом опровергаться.8 изолированных зубов KNM-ER 5431 с площадки 203 в Кооби-Фора имеют возраст 2,7–3,0 млн лет. Они диагностировались как Australopithecus afarensis, Australopithecus garhi или, честнее всего, Australopithecus/Homo gen. et sp. indet. В частности, морфология бугорков премоляров у KNM-ER 5431 австралопитечья, а седьмой бугорок на молярах – человечий. Но неопределенность морфологии и отсутствие специализаций позволяют предположить, что это зубы непосредственных предков Homo (Brown et al., 2001).
В Лаэтоли, в верхней части слоя Ндоланья с датировкой 2,5–2,7 млн лет назад, проксимальная часть большой берцовой кости была определена как Australopithecus garhi или Homo sp. (Harrison, 2002), но скорее по дате, чем по морфологии. Кость маленькая, сопоставимая с таким же элементом у Люси. Впрочем, тут же найдена верхняя челюсть EP 1500/1, имеющая все признаки Paranthropus aethiopicus, так что не исключено, что и нога принадлежала древнейшему парантропу, хотя бы и мелкому.
Таким образом, 3 млн лет назад человечьим родом еще даже не пахло, да и 2,7, и даже 2,5 млн лет назад существование Homo никак не может считаться доказанным.
Отсутствие находок приличной сохранности тем более обидно, что обитатели “самого загадочного миллиона” первыми начали изготавливать каменные орудия труда. Самые древние галечные орудия найдены в кенийских местонахождениях Ломекви – 3,3 млн лет назад – и Канжера – 2,2 млн лет назад, эфиопских Гона – 2,5–2,7 млн лет назад, Омо (Шунгура) – 2,4–2,5 млн лет назад, Хадар – 2,5 млн лет назад, Олдувай в Танзании – 1,5–2 млн лет назад, Сенга и Семлики (Ишанго) в Заире – 2 млн лет назад Первые орудия крайне примитивны: это булыжники всего с несколькими кривыми сколами. Однако эти орудия могут быть классифицированы на повторяющиеся типы. Это значит, что создатель, приступая к работе, имел в голове план своего творения, он знал, что хочет получить, и знал, что может получить разный результат. Есть и более специфические, чисто технические признаки, отличающие случайно расколовшийся камень и орудие: ударный бугорок, образующийся в месте сильного целенаправленного удара, оббивка с одного или двух краев при отсутствии ее на большей части камня, концентрация орудий в местах, где такие артефакты не могли образоваться и скопиться естественным путем. Кто автор сих творений – не совсем ясно; потенциально их могли делать австралопитеки гари, парантропы и “ранние Homo”. Родственная солидарность вызывает желание верить, что это были именно последние, но с большой вероятностью мастерами в разных случаях были разные гоминиды.
Заря Homo: древнейшие свидетельства.
На звание древнейшего человека рода Homo претендуют несколько находок. Самой полной, без сомнения, является знаменитый череп KNM-ER 1470 – по совместительству голотип вида Homo rudolfensis. Его передатировали множество раз – то удревняли, то омолаживали, но по последним расчетам владелец черепа жил 2,03 млн лет назад (McDougall et al., 2012). Череп по совокупности признаков смело может быть опознан как “неавстралопитековый”. Главные его человеческие особенности – большой объем мозга и отсутствие сагиттального гребня.
Достоверный рекорд объема мозга грацильных австралопитеков принадлежит крупному самцу A. afarensis AL 444–2 – 550 см³. Но 500 кубических сантиметров грацильные австралопитеки достигали очень редко. У парантропов мозг был побольше: у TM 1517 из Кромдраая, возможно, 650 см³, а у большинства прочих – около 500 кубических сантиметров. Иногда приводимые бóльшие цифры основаны на реконструкциях объема мозга по размерам зубов или посткраниальных костей, а стало быть – крайне недостоверны. Для KNM-ER 1470 же минимальный реконструированный объем мозга – 752 см³, а максимальный – 775 см³. Крайне важно, что столь существенный прирост размеров мозга сопровождается полным отсутствием сагиттального гребня, служащего у его обладателей для прикрепления жевательных височных мышц. Все взрослые самцы крупных человекообразных обезьян и всех австралопитеков и парантропов имели развитый сагиттальный гребень. Судя по всему, он был одним из главных тормозов развития головного мозга, ибо формирование гребня в обязательном порядке означает срастание сагиттального шва – продольного между двумя теменными костями, а стало быть прекращение роста черепа и мозга.
Конечно, KNM-ER 1470 обладает и иными отличиями от австралопитеков. В частности, при всей уплощенности лица и его расширенности в нижней части, пропорции заметно отличаются от австралопитековых стандартов. Переносье KNM-ER 1470 хоть и уплощено, но далеко не в такой степени, как у австралопитеков; лицо даже в самой прогнатной реконструкции близко не соответствует варианту, скажем, AL 444–2; лоб несравненно выше и выпуклее, заглазничное сужение не такое резкое, затылок – круглее, а лобный и затылочный рельеф – слабее. Небо KNM-ER 1470 короткое и почти квадратное, со спрямленной передней стороной, тогда как задние зубы увеличены – мегадонтны, хотя и не в такой степени, как у парантропов. Конечно, не стоит идеализировать KNM-ER 1470: даже в сравнении с архантропами он крайне архаичен. Но в рамках концепции существования двух родов – Australopithecus и Homo – KNM-ER 1470 все же вполне достоин называться человеком.
Вопрос в том, к какому виду относится KNM-ER 1470. Вроде бы он заметно крупнее и массивнее “типичных” и при этом более поздних Homo habilis, с другой стороны, он выглядит заметно отличным и от “образцовых” архантропов. Посему В. П. Алексеев в 1978 году описал его как Pithecanthropus rudolfensis (Алексеев, 1978). С этого момента началась череда подтверждений и опровержений самостоятельности этого вида. “Человечность” KNM-ER 1470 очевидна при сравнении его с грацильными австралопитеками, но вовсе не столь явна на фоне современного человека. Посему он является отличным примером “достающего звена”. Впрочем, в немалой степени дело в количестве находок: мы имеем много австралопитеков и поздних Homo, а потому расцениваем KNM-ER 1470 как связку между ними. Если бы у нас было много ардипитеков и рудольфенсисов, но мало афарских австралопитеков, мы говорили бы о последних как о связующем звене между первыми двумя группами. Количество же находок в большой степени определяется сохранностью и доступностью слоев, а в немалой – везением палеонтологов и даже политической обстановкой в конкретных странах, определяющей возможности научных изысканий.
От других претендентов на звание древнейшего человека осталось не так много.
В Южной Африке, в верхней части четвертого уровня Стеркфонтейна, обнаружены обломки черепа с нижней челюстью и набор зубов детеныша примерно пяти лет Stw 151. Находка имеет датировку между 2,0 и 2,6 млн лет назад. Поэтому не странно, что Stw 151 обладает своеобразными особенностями: на общем фоне признаков Australopithecus africanus выражены явные черты Homo habilis (Moggi-Cecchi et al., 1998). В частности, размеры молочных и постоянных зубов в целом промежуточны между этими видами, хотя существенно отличаются от параметров Paranthropus robustus. Характеристики черепа определимы с трудом. Все же стоит отметить смесь австралопитековых и эогомининных черт височной кости, округлость верхней и нижней альвеолярных дуг, а также сравнительно мощное развитие скуловых дуг. Как уже говорилось, некоторые антропологи подчеркивают неоднородность выборки, обычно определяемой как Australopithecus africanus: часть находок проявляет повышенную массивность и крупнозубость и может представлять пращуров Paranthropus robustus. Stw 151 относится ко второй группе, предположительно предковой для “ранних Homo”.
В кенийском местонахождении Туген-Хиллс на берегу озера Баринго, в формации Чемерон, найден обломок правой височной кости KNM-BC 1, имеющий возраст 2,393–2,456 млн лет назад (Deino et Hill, 2002). Совокупность морфологических признаков позволяет диагностировать сей фрагмент как Homo, поскольку все они укладываются в пределы изменчивости этого рода (Sherwood et al., 2002). Отдельные черты совпадают с вариациями парантропов и грацильных австралопитеков, но полный комплекс кости из Чемерона отличается от характерного для них. Впрочем, по ряду признаков KNM-BC 1 отличается от “образцовых” Homo habilis: например, его нижнечелюстная ямка слишком длинная, широкая и глубокая, “австралопитековая”. Однако та же ямка смещена к центру черепа, прямо противоположно варианту парантропов, у которых височно-нижнечелюстные суставы были широко разнесены в стороны; различаются и многие частные особенности морфологии типа формы гребней и бугорков, а также расположения барабанной пластинки. Крайне любопытно, что число совпадений признаков KNM-BC 1 с вариантом парантропов больше, чем с вариантом грацильных австралопитеков. К великому сожалению, трудно напрямую сравнить KNM-BC 1 с KNM-ER 1470 из-за фрагментарности височной кости у последнего, но стоит обратить внимание на схожесть размеров их нижнечелюстных ямок, равно как, кстати, и у KNM-ER 1805. Неспроста целый ряд антропологов относили KNM-BC 1 к виду Homo rudolfensis. Правда, есть еще мнение, что кость из Чемерон принадлежит Australopithecus garhi (Asfaw et al., 1999), но у известных находок этого вида височная кость не сохранилась, отчего это предположение остается сугубо гипотетическим.
На 300 тыс. лет древнее KNM-ER 1470 верхняя челюсть AL 666–1 из Макаамиталу в Хадаре – 2,33 млн лет назад (Kimbel et al., 1996). Замечательно, что челюсть найдена в сопровождении фауны, которая указывает на более открытый, чем в более ранний период, ландшафт. Будучи на 700 тыс. лет моложе самых молодых Australopithecus afarensis и на 400 тыс. лет древнее “ранних Homo” из Олдувая, AL 666–1 является связующим звеном между этими группами. Приятно, что тут же обнаружены грубые галечные орудия, хотя справедливости ради надо напомнить, что древнейшие каменные орудия из Ломекви и Гоны имеют гораздо больший возраст – до 3,3 и 2,7 млн лет. Принадлежность AL 666–1 к людям, а не австралопитекам доказывается целым рядом сравнений, большей частью весьма специфических, типа формы дна носовой полости или верхнечелюстных пазух. Из внешних же признаков обращает на себя внимание ослабление альвеолярного прогнатизма и уплощенность альвеолярного отростка, отсутствие “передних лицевых валиков”, расхождение кзади линий заклыковых зубов, то есть параболоидность альвеолярной дуги, увеличение ширины и глубины неба. При этом небо крупнее и мельче, чем у более поздних хабилисов и эргастеров. Размеры зубов, что здорово, меньше, чем у австралопитеков, но больше, чем у Homo habilis, а морфология зубов вполне “хабилисская”. На основании столь скудных остатков трудно сказать, можно ли определять AL 666–1 как “образцового” Homo habilis. Некоторые его особенности могут объясняться мужским полом, некоторые – эволюционным уровнем.
Примерно такой же, если не больший возраст имеет нижняя челюсть UR 501 из Ураха на севере Малави – 2,3–2,5 млн лет назад (Betzler et Ring, 1995; Bromage et al., 1995a,b; Ring et Betzler, 1995). Здесь также найдены каменные орудия труда. Челюсть очень крупная, массивная и неоднозначно диагностируемая. В оригинальном описании она была определена как Homo rudolfensis с многочисленными чертами Paranthropus aethiopicus и даже Australopithecus afarensis. Такую мозаичность черт авторы объясняют тем, что Australopithecus afarensis был общим предком для Paranthropus aethiopicus и Homo rudolfensis, а около 2,5 млн лет назад их признаки еще не разошлись окончательно. Собственно, примерно с той же обоснованностью можно определить UR 501 как Paranthropus aethiopicus с некоторыми чертами Homo rudolfensis. Масса признаков UR 501 выходит за рамки изменчивости Homo habilis, а потому невозможно причислить челюсть к этому виду. Отнесение UR 501 к Homo rudolfensis тоже может вызывать сомнение вследствие малочисленности других материалов, относящихся к этому виду.
Авторы первоописания UR 501, основываясь на мозаичности признаков этой челюсти и схожих с ней KNM-ER 1482 и KNM-ER 1802, а также на связи их с фаунами и распределении других находок во времени и пространстве, предполагают, что Homo rudolfensis был эндемичным восточноафриканским видом, возникшим параллельно с Paranthropus aethiopicus и, несколько позже, Paranthropus boisei во время сравнительно холодного и сухого периода (Bromage et al., 1995b). Все эти виды объединяет повышенная массивность челюстей и зубов. Замечательно, что мегадонтия и усиление жевательного аппарата характерны и для других животных – не приматов – времени 2,5 млн лет назад (Turner et Wood, 1993). Около 2 млн лет назад условия вновь стали более влажными и теплыми, что вызвало миграции животных, в том числе расселение массивных австралопитеков в Южную Африку между 2 и 1,5 млн лет назад и появление Paranthropus robustus. Согласно этой концепции, Homo habilis представляют собой отдельный вид, возникший первоначально также в Восточной Африке, а затем – между 1,8 и 1,5 млн лет назад – мигрировавший в Южную.
Также на севере Малави, в местности Мвенирондо, в слоях Чивондо, был найден обломок правого нижнего моляра HCRP-MR-1106. Датировка слоев точно неизвестна, она лежит в широких пределах 1,8–2,7 млн лет назад, но с некоторой вероятностью ее можно конкретизировать до 2,33–2,52 млн лет назад (Kullmer et al., 2011). Таким образом, моляр из Мвенирондо также может быть древнейшим известным фрагментом Homo. Зуб был сильно стерт при жизни и обломан, обкатан, растрескан после смерти, так что видовая диагностика была проведена почти исключительно по микростроению эмали и форме поперечного сечения корней. Как и у схожего UR 501, у HCRP-MR-1106 имеются черты как Homo rudolfensis, так и Paranthropus, но первые преобладают.
Еще один “древнейший Homo” найден в Западной Туркане, в местонахождении LA1a формации Начукуи. Это нижний первый моляр KNM-WT 42718 с датировкой 2,34 млн лет назад (Prat et al., 2005). Опять же в ста метрах от моляра обнаружены каменные орудия. Молодость индивида способствовала сохранению всех деталей строения эмали, так что отличия от австралопитеков и парантропов определимы достаточно надежно; в частности, обращают на себя внимание относительно небольшие размеры зуба; одновременно размеры вполне вписываются в рамки изменчивости Homo rudolfensis. Конечно, одного зуба недостаточно для уверенного суждения о видовой принадлежности, но, по крайней мере, мы знаем, что около 2,3 млн лет назад в Восточной Африке существовали сравнительно мелкозубые гоминиды.
Фрагмент черепа KNM-WT 15001 из пачки Нату формации Начукуи в Западной Туркане имеет датировку 2,09 млн лет назад. Он определен как Homo habilis, но морфологические основания этого неочевидны.
Отличными находками недавно порадовала антропологов местность Колом-Одиет в Кооби-Фора с датировками 2,02–2,03 млн лет назад (Jungers et al., 2015). Тут был найден почти полный набор нижних зубов KNM-ER 64060, ключица, лопатка и кости рук KNM-ER 64061. Полное их исследование еще не опубликовано, но в анонсе отмечается, что длинные кости относительно тонки, а стенки их – толсты.
В Омо древнейшей находкой, обозначаемой как Homo habilis, является премоляр Omo L 33–3282 из основания слоя F формации Шунгура, чей возраст 2,36 млн лет назад (Suwa, 1990). Как и в других подобных случаях, фрагментарность находки позволяет только констатировать наличие “кого-то очень похожего на человека”, но лишает возможности проводить широкие сравнения.
Находки в Омо весьма многочисленны, но крайне фрагментарны. Здесь найдены практически только изолированные зубы, потому их видовая диагностика весьма спорна. Из более комплексных находок стоит отметить фрагменты очень древнего – 1,84 или даже 2,3 млн лет назад – черепа Omo L 894–1 из слоя G формации Шунгура. Он был определен как Homo habilis (Boaz et Howell, 1977), однако его скуловые дуги массивны, что свидетельствует о значительном развитии челюстей, а размеры зубов больше, чем у олдувайских хабилисов, но более-менее схожи со значениями Homo rudolfensis из Кооби-Фора. Интересно, что на одном из моляров обнаружен желобок, образовавшийся из-за использования палочки-зубочистки (Puech et Cianfarani, 1988), такая же привычка привела к серьезным проблемам со здоровьем у одного из дманисцев. Ковыряние в зубах было обычным делом у эогоминин?
Древность 2,0–2,02 млн лет назад имеет обломок нижней челюсти Omo L 75–14. Иногда он обозначается как Homo habilis, но хорошо выраженная мегадонтия заклыковых зубов позволяет определить его как Homo rudolfensis. Зубы все же заметно меньше, чем у парантропов, да и морфология нижних премоляров не похожа на таковую у Paranthropus boisei, хотя строение моляров близко к этому виду. Любопытно, что с правой стороны Omo L 75–14 врожденно отсутствовал третий моляр: сия вариация обычна у современных людей, но крайне редка у гоминид такой древности.
Находки Homo с древностью более 2 млн лет редки, фрагментарны и потому трудно поддаются сравнениям и интерпретациям. Не так много можно сказать по изолированным зубам и кускам челюстей. Парадокс в том, что более древние грацильные австралопитеки изучены намного подробнее. Именно поэтому сей временной этап – один из самых интересных для палеоантропологов. Многие вопросы могут быть решены только с новыми находками. Но важно, что задача поставлена, группы искателей бороздят африканские просторы, выведывая окаменелости, которые смогут пролить свет на наши родовые корни.
Очень древние Homo: Homo rudolfensis.
После 2 млн лет остатки Homo становятся более частыми. Правда, ясности от этого не прибавляется, число вопросов, как обычно в таких случаях, только растет. Бóльшая часть находок сделана в Восточной Африке.
Особенно много окаменелостей обнаружено в Кооби-Фора – одной из главных палеонтологических сокровищниц Кении. Преархантропы датируются здесь временем примерно от 2 до 1,6 млн лет назад. Вместе с тем здесь же мы наблюдаем и самое большое разнообразие, с трудом поддающееся интерпретации. Практически все находки в разное время и разными авторами диагностировались и как Homo rudolfensis, и как Homo habilis, и как Homo ergaster, и как специфические виды. Иногда разница взглядов объясняется исследованием разных частей находок. Классический пример – KNM-ER 1590a-q, находка, включающая фрагменты свода черепа, верхнюю челюсть и набор зубов детеныша предположительно мужского пола 5,2–5,3 лет. Ее датировка – одна из самых больших в Кооби-Фора, порядка 1,85 млн лет назад. Округлость и грацильность свода, а также отсутствие мегадонтии позволили определить KNM-ER 1590 как Homo habilis, тогда как абсолютные и относительные размеры бугорков моляров – как Homo rudolfensis (например: Grine et al., 2009). Предполагаемый объем черепа – 870 см³ – тоже великоват для хабилисов.
Ряд других находок в Кооби-Фора часто идентифицируется как Homo rudolfensis. Некоторые из них близки по возрасту к KNM-ER 1470: 1,91–1,95 млн лет назад для верхней челюсти KNM-ER 62000 и фрагмента нижней челюсти KNM-ER 62003. Другие имеют датировки около 1,89 млн лет назад, но с уточнением возраста туфа KBS, под которым они залегают, их возраст может быть пересмотрен в сторону удревнения. Это, например, нижние челюсти KNM-ER 1482, KNM-ER 1801, KNM-ER 1802. Все они характеризуются схожим комплексом черт: большей грацильностью в сравнении с парантропами, но массивностью – с Homo habilis и H. erectus, суженностью альвеолярной дуги спереди, но широким расхождением назад, широкой и очень высокой восходящей ветвью, относительно большими молярами, не достигающими, впрочем, значений массивных австралопитеков, смесью признаков микроанатомии зубов Paranthropus и Homo.
Гораздо полнее черепная крышка с частью лица KNM-ER 3732 (все те же 1,88–1,90 млн лет назад). Промежуточные между Homo rudolfensis и Homo habilis размеры позволяют предположить, что это либо самка первого вида, либо самец второго. Другие же исследователи считают, что KNM-ER 3732 является древнейшим представителем вида Homo ergaster, поскольку он достаточно похож на KNM-ER 3883 (Schwartz et Tattersall, 2000b). Все же отличия от эргастеров показательны: KNM-ER 3732 меньше и грацильнее их, с менее развитым надбровным торусом, с объемом мозга около 700 см³, тогда как у эргастеров – около 800 см³.
Некоторые характерные черты Homo ergaster, возможно, формировались в недрах популяций эогоминин довольно рано. Хороший тому пример – затылочная кость KNM-ER 2598, чья датировка, возможно, приближается к 1,9 млн лет назад: значительные толщина, преломленность и развитие рельефа позволили диагностировать ее как принадлежащую Homo ergaster. Впрочем, учитывая данные из Дманиси, мы можем убедиться, что первые эогоминины вовсе не обязаны отличаться какой-то особенной грацильностью свода, так что нет особых оснований не включать KNM-ER 2598 в Homo rudolfensis. В челюсти KNM-ER 3734 с близкой датировкой разные исследователи также усматривают черты Homo rudolfensis или Homo ergaster.
Гораздо фрагментарнее череп KNM-ER 3891, несколько более молодой – около 1,8 млн лет назад. Он тоже был определен как Homo rudolfensis, в пользу чего свидетельствуют сильное развитие височной линии и сильный альвеолярный прогнатизм. Однако скуловой отросток верхней челюсти KNM-ER 3891 не слишком высок, альвеолярная дуга широкая и округлая спереди, а зубы не мегадонтны. Таким образом, можно видеть усиление черт, приписываемых обычно Homo habilis в более позднее время.
Рудольфенсис возвращается! Рудольфенсис возвращается? Проблема изменчивости и разнообразия “ранних Homo”, видимо, еще долгие годы будет терзать умы палеоантропологов. Две противоборствующие концепции никак не могут одолеть друг друга. Согласно первой, среди первых представителей рода Homo имелась довольно большая половая или же межпопуляционная вариабельность. Согласно второй, наблюдаемые различия слишком велики и отражают существование как минимум двух видов: более мелкого Homo habilis и более крупного Homo rudolfensis. Установлению истины посвящены многие статьи и главы в умных книгах, мудрыми учеными применялись заковыристые математические анализы, оценки полового диморфизма и сравнения с изменчивостью обезьян и гоминид от австралопитеков до современных людей. Ничего не помогает. Как обычно, в конце таких работ звучит вечное упование на грядущие находки, которые таки прольют свет на темную загадку антропогенеза. И вот они, эти новые находки! В 2007, 2008 и 2009 годах в Кооби-Фора в Эфиопии были обнаружены три фрагмента черепов. Добрые антропологи подобрали им круглые номера – все любят красивые циферки с нуликами, которые и запоминаются легко. Наиболее полный и важный обломок – KNM-ER 62000 – почти полная верхняя челюсть. KNM-ER 60000 – практически целая нижняя челюсть. Наконец, KNM-ER 62003 – небольшой, но информативный кусок нижней челюсти. Датировки фрагментов – 1,91–1,95, моложе 1,87 и 1,90–1,95 млн лет назад соответственно. Сравнение этих находок с наличными коллекциями показало, что наилучшим образом они вписываются в рамки проблематичного вида Homo rudolfensis. Еще в 1972 г. Б. Нгенео нашел череп KNM-ER 1470. Сочетание крупных почти ортогнатных челюстей, заметно приплюснутых спереди, довольно большого мозга (большого сравнительно с австралопитеками и известными тогда Homo habilis, а не сапиенсами, как иногда в запале невежества пишут креационисты) и приличной датировки (которая сама по себе долгое время была предметом ожесточенных дебатов, а ныне устаканилась на 2,03 млн лет назад) сделало проблематичным отнесение KNM-ER 1470 к какому-либо из известных тогда видов гоминид. Подвешенное состояние порешил В. П. Алексеев в 1978 г., когда в своей великой книге описал вид Pithecanthropus rudolfensis (Алексеев, 1978). Правда, он сделал это не в полном соответствии с канонами и правилами международной номенклатуры, за что до сих пор подвергается нападкам критиков. Кроме того, книга была написана на русском языке, неведомом мировой общественности. В 1986 г., однако ж, вышел английский вариант книги В. П. Алексеева, а потому несклонные вникать в исторические детали зарубежные антропологи всегда пишут Homo rudolfensis Alexeev, 1986, чем раздражают и веселят наших антропологов. Но мы-то знаем правду: Homo rudolfensis Alexeev, 1978! Проблема, впрочем, не в бюрократических мелочах. Главной сложностью оказалось то, что долгое время Homo rudolfensis оставался видом, известным по одному-единственному черепу. Конечно, были попытки приписать туда же и другие находки, но все они были крайне фрагментарны, а потому образ не очень клеился. Челюсть KNM-ER 62000 замечательным образом напоминает лицо черепа KNM-ER 1470. Она столь же ортогнатна и уплощена, передняя сторона ее альвеолярной дуги так же ровна, отчего дуга становится, собственно, не дугой, а буквой “П”. Замечательно, что носовое отверстие KNM-ER 62000 узкое и почти треугольное, что является типичной чертой “ранних Homo” в целом и черепа KNM-ER 1470 в частности. Зубы KNM-ER 62000 вопреки крупным размерам самой челюсти не слишком велики в сравнении с прочими “ранними Homo”; кроме того, они относительно вытянуты продольно (мезиодистально на одонтологическом диалекте). Нижняя челюсть KNM-ER 60000 уникальна среди челюстей “ранних Homo” своей сохранностью. Удивительно, что полностью сохранились восходящие ветви – огромные, совершенно вертикальные, с эффектно развернутыми углами. Впечатляет и высота симфиза, на котором при некоторой фантазии можно даже углядеть зачаток подбородочного выступа. Как и на верхней челюсти KNM-ER 62000, альвеолярная дуга – не дуга, а прямоугольник. Собственно, именно эта черта позволила исследователям объединить KNM-ER 60000 и KNM-ER 62000. Зубы же их различаются, поскольку на KNM-ER 60000 они относительно укорочены, а не удлинены. Примечательно, что форма альвеолярной дуги отличает KNM-ER 60000 от канонических Homo habilis. Другое дело, что бы это значило? Действительно ли отличия пропорций зубов и альвеолярных дуг свидетельствуют о видовом статусе отличий? Имеющиеся цифровые данные, строго говоря, указывают скорее на уклонение более крупных форм от мелкого большинства. Можно обратить внимание и на более широкий набор находок. Вообще-то, форма нижней челюсти KNM-ER 60000 весьма напоминает таковую челюсти из Дманиси D2600, которая была не так уж давно описана в качестве самостоятельного вида Homo georgicus. Огромная величина восходящих ветвей и симфиза D2600 назывались в качестве эксклюзивных признаков эндемичного вида. Однако ж другие челюсти из Дманиси представляют спектр широкой изменчивости, сравнимый с размахом вариаций челюстей из Кооби-Фора. Весьма различается и форма лица дманисцев – опять же не в большей степени, чем восточноафриканские хабилисы и рудольфенсисы. Равным образом среди людей современных рас можно найти гораздо больший спектр вариаций. Правда, для этого придется сравнивать людей из разных экологических зон, зато на стороне ископаемых находок – интервалы в сотни тысяч лет. Помнится, долгий и нудный подсчет размеров и форм челюстей и прочих обломков из Восточной Африки, проведенный в масштабе изменчивости всех гоминид, привел меня некогда к выводу, что хабилисы и рудольфенсисы расходятся лишь на расстояние подвидов (текст диссертации можно найти на сайте www.antropogenez.ru). Именно так выглядят и графики, отражающие размеры зубов новых находок в Кооби-Фора. Любопытнее, что часть восточноафриканских находок – KNM-ER 1801, KNM-ER 1802, KNM-ER 1805, UR 501 – я тогда посчитал принадлежащими новому виду массивных австралопитеков, конвергентному с “ранними Homo”. Одним из ключевых признаков этого потенциального вида была повышенная массивность в сочетании с прямоугольной формой альвеолярной дуги. Знакомое сочетание! Не его ли мы видим на KNM-ER 60000? Замечательно, что размеры зубов этих индивидов – KNM-ER 1801, KNM-ER 1802, UR 501 – занимают промежуточное положение между Paranthropus boisei и “ранними Homo”, а KNM-ER 1805 почти совпадает с KNM-ER 60000 и KNM-ER 62000. Чехарда таксономических определений продолжается…Датировка 1,9 млн лет назад позволяет предположить, что к виду Homo rudolfensis относятся тазовая и бедренная кости KNM-ER 5881 из Кооби-Фора. Они описаны как специфические и отличающиеся от восточноафриканских Homo erectus. Собственно, отчего бы им быть похожими на эректусов, если эректусы имеют гораздо меньший возраст? По измерительным же характеристикам кости KNM-ER 5881 закономерно занимают промежуточное положение между австралопитеками и более поздними “ранними Homo”, а из последних ближе всего к хабилису OH 62.
К виду Homo rudolfensis с некоторой вероятностью относятся обломки длинных костей левой ноги KNM-ER 1481a-d, найденные также под туфом KBS и имеющие датировку около 1,89 млн лет назад. Эти кости определяли и как “раннего Homo sp.”, и как Homo habilis, и как Homo ergaster, и как Homo erectus. Бедренная очень похожа на бедренную современного человека, маленькая и грацильная. Вероятно, у многих исследователей срабатывает стереотип: раз рудольфенсисы имеют бóльшие размеры челюстей и зубов в сравнении с хабилисами, то и их посткраниальный скелет должен быть крупнее. На самом деле такого закона в природе нет; например, синхронные рудольфенсисам дманисцы имели столь же крупные зубы, но очень низкий рост и маленькие кости. Замечательно, что коленный сустав KNM-ER 1481b выглядит прогрессивнее, чем у афарских австралопитеков AL 333-x26 и AL 333–4, но практически не отличается от варианта современного человека.
Ту же датировку имеет крайне фрагментарный скелет KNM-ER 3735. Его обычно определяют как Homo habilis, но основания этому крайне зыбки. От скелета осталось довольно много обломков, но каждый из них очень невелик. Малые размеры тела, как и в случае с KNM-ER 1481, вряд ли могут сами по себе служить диагностическим признаком. KNM-ER 3735, вероятно, обладал шимпанзеподобным соотношением длин лучевой и плечевой костей – даже более примитивным, чем у Люси, – и, возможно, увеличенной длиной рук относительно ног (Haeusler et McHenry, 2007). Пропорции KNM-ER 3735 могли быть примитивнее, чем у более позднего, но менее крупного олдувайского хабилиса OH 62 (Haeusler et McHenry, 2004). Вместе с тем на височной кости KNM-ER 3735 имеется шиловидный отросток – прогрессивный гоминидный элемент, который, впрочем, изредка встречается и у австралопитеков.
Еще хуже сохранность скелета KNM-ER 1500a-p, имеющего все ту же датировку 1,89 млн лет назад. Несмотря на наличие фрагмента нижней челюсти, видовая принадлежность остается спорной – Paranthropus boisei, Australopithecus sp., Homo rudolfensis или Homo habilis. Множество примитивных признаков сочетается на этих фрагментах с более-менее прогрессивными. Рост, как и в предыдущих случаях, был небольшим.
Обычно как Homo ergaster или даже Homo erectus определяется правая тазовая кость мужчины KNM-ER 3228. Однако ее стратиграфическое положение – ниже туфа KBS – определяет датировку более 1,87 млн лет назад, возможно 1,95 млн лет назад. Учитывая, что в этих же слоях встречены черепа и зубы только Homo rudolfensis, гораздо логичнее предположить, что и таз принадлежал особи этого вида. Замечательно, что пропорции таза и места прикрепления мышц на нем существенно отличаются от типичных для австралопитеков и приближаются к современному варианту. Кость крупная, так что рост мог достигать даже 1,8 м.
Одна из самых молодых находок, определяемая как Homo rudolfensis, – нижняя челюсть KNM-ER 60000, имеющая датировку 1,78–1,87 млн лет назад (Leakey et al., 2012). Она же является и самой целой из относимых к этому виду. Невозможно не отметить ее крайнего сходства с челюстью D2600 из Дманиси, что особенно впечатляет, учитывая их синхронность. Кстати, и размеры неба более древней находки KNM-ER 62000 в наибольшей степени совпадают с дманисскими D2282 и D2700, по ширине – и с D4500.
Впрочем, небольшой фрагмент тела нижней челюсти KNM-ER 819 тоже очень массивен, а потому иногда также определяется как Homo rudolfensis. Между тем его новейшая датировка – всего 1,5 млн лет назад (McDougall et al., 2012). Таким образом, либо вид Homo rudolfensis продержался дольше, чем обычно считается, либо есть какая-то погрешность в датировке, либо челюсть относится на самом деле к Paranthropus boisei, либо вся концепция самостоятельности Homo rudolfensis неверна, либо, что вероятнее всего, KNM-ER 819 отражает начало увеличения массивности челюстей у нового вида Homo erectus.
Несколько сотен тысяч лет существования вида Homo rudolfensis – длинный и недостаточно изученный этап нашей эволюции. Эти люди жили не там, где их кости могли успешно сохраняться, они еще не хоронили умерших и совершенно не заботились о потребностях будущих антропологов. Парантропы, обитавшие ближе к воде, известны намного лучше. Только упорные усилия современных исследователей могут пролить свет на эти “серые тысячелетия” нашей предыстории.
Не самые древние Homo: Homo habilis.
В слоях выше туфа KBS в Кооби-Фора размеры костей эогоминин уменьшаются, а потому практически всегда их определяют как Homo habilis. В частности, к ним относятся фрагменты нижних челюстей KNM-ER 1501 и KNM-ER 1502, чья датировка порядка 1,6 млн лет назад. Более полные находки из поздних слоев Кооби-Фора – KNM-ER 1805 и KNM-ER 1813 – специфичны, а потому будут рассмотрены позже.
Классические Homo habilis найдены в Олдувае. Они не синхронны и достаточно разнородны, но, к сожалению, крайне фрагментарны: не обнаружено ни одного целого черепа. Находки гоминид сопровождаются примитивными галечными орудиями, отчего вся культура получила название олдувайской. К древнейшим эогомининам Олдувая относится маленький фрагмент нижней челюсти OH 4 с датировкой 1,9 млн лет назад. Сохранившийся второй или третий моляр большой, но все же меньше, чем у Homo rudolfensis из Малави и Кооби-Фора.
Строение эогоминин Олдувая времени порядка 1,79–1,86 млн лет назад известно по черепу OH 24, или Твигги, предположительно женскому. Обычно он считается образцовым представителем вида Homo habilis, но малые размеры и некоторые черты строения позволили ряду авторов отождествить его с Australopithecus africanus, другие же видят сходство с Homo rudolfensis. Все же ряд параметров позволяет отличить OH 24 от австралопитеков: это умеренное заглазничное сужение, поднятие затылочного отдела, вертикальное расположение барабанной пластинки, другие детали строения височной кости и основания черепа. Вместе с тем отсутствие шиловидного отростка – выраженно примитивный признак, лицо крайне уплощено и даже вдавлено, резко выступает вперед, носовые кости очень узкие, а по передней стороне лица идут вертикальные “передние лицевые валики”, аналогичные тем, что характеризуют южноафриканских австралопитеков и Stw 53. Все же скулы выдаются не так сильно, как у австралопитеков. Характерно строение верхней челюсти OH 24: небо очень короткое и почти квадратное, линии передних и заклыковых зубов ровные, сходящиеся под прямым углом. При этом нет никаких признаков заклыковой мегадонтии, а передние зубы относительно задних крупны. Объем мозга 560–590 см³, то есть больше, чем у австралопитеков. Строго говоря, чисто морфологически OH 24 вполне может быть расценен как австралопитек, но очень и очень продвинутый, фактически это очередное “достающее звено” между Australopithecus и Homo. Кстати, очень похожи на Australopithecus africanus и другие олдувайские гоминиды близкого возраста, например OH 68 и OH 70.

Рис. 13. Череп KNM-ER 1470 (а), черепа OH 13 (б) и OH 24 (в).
Довольно сильно от OH 24 отличается верхняя челюсть OH 65, имеющая аналогичную датировку. Ширина и высота OH 65 несколько меньше, тогда как размеры неба, альвеолярной дуги и зубов – заметно больше, чем у OH 24. Посему ряд антропологов склонны сближать OH 65 с эогомининами типа KNM-ER 1470, а OH 24 – с мелкими вроде KNM-ER 1813 (например: Clarke, 2012).
Голотип вида Homo habilis – обломки двух теменных костей, нижняя челюсть и кости кисти OH 7 – имеют датировку 1,74–1,82 млн лет назад (в 2006 году еще один зуб из той же челюсти был найден в вышележащем слое, так что ранее определявшийся возраст мог быть завышен; Leakey et al., 1964). Не исключено, что кости принадлежат разным индивидам. Забавно, что длина реконструированной теменной кости довольно велика, несмотря на предположительно подростковый возраст, почему некоторые авторы склонны сближать OH 7 с KNM-ER 1470 в противовес мелким индивидам, предположительно представляющим другой вид (Rightmire, 1993); в этом случае смысл термина Homo rudolfensis теряется, а часть хабилисов перестают быть хабилисами. Казалось бы, в пользу этой точки зрения говорит и большая датировка OH 7, однако теменная кость мелкого KNM-ER 1813 в реальности длиннее, чем у большого KNM-ER 1470, а OH 7 занимает между ними промежуточное положение, тем более что реконструкция OH 7 довольно условна. Предполагаемый объем мозга был 657–680 см³. Нижняя челюсть OH 7 не может быть названа массивной, так что ее отождествление с Homo rudolfensis Кооби-Фора и Малави спорно, но подростковый возраст не позволяет делать четких выводов.
Человек ли человек умелый? Что и говорить, вопросов относительно первых Homo немало. Антропологи неустанно ведут жаркие споры о статусе как целых видов, так и отдельных находок. Примером такой битвы за истину может служить очередная статья, опубликованная недавно в журнале Nature (Spoor et al., 2015). В ней авторы явили на суд ученой аудитории новые реконструкции теменных костей и нижней челюсти OH 7 – голотипа вида Homo habilis. Проблема в том, что нижняя челюсть хабилиса сломана и сплющена, а теменные кости разбиты и почти не смыкаются друг с другом. Вновь реконструированная нижняя челюсть получилась весьма примитивной, с вытянутой альвеолярной дугой. Авторы считают, что она оказывается примитивнее, чем даже на полмиллиона лет более древний Homo AL 666–1 из Хадара (это, правда, верхняя челюсть, но, имея одну, можно понять форму и противоположной). Авторы также аргументируют, что Homo habilis резко отличается от Homo rudolfensis, так что они не могут представлять один вид. Теменные кости OH 7 реконструировались неоднократно, но отчего бы не сделать это еще разок, благо в лаборатории простаивают томограф да ядреный компьютер? И вот очередное цифровое колдовство свершилось, и на глаза удивленной публики выплывают цифры 729–824 см³! А ведь это в полтора раза больше, чем считалось доселе! Как же это объяснить? Авторы реконструкции считают, что все логично: просто большой мозг эволюционировал раньше и активнее, чем форма челюстей. Если суммировать итоги реконструкции челюсти и черепа, получаются интересные выводы: Homo habilis – это не предковый для современного человека вид, а тупик эволюции, настоящим же предком был эфиопский AL 666–1. Эволюция мозговой коробки была более стандартной и ранней, тогда как челюсти менялись замысловатее; Homo habilis сохранял примитивный вариант долго после появления гораздо более продвинутых людей. Впрочем, и Homo rudolfensis – хоть и ближе к нам, чем Homo habilis, но тоже тупик. Вот такие пироги! Как обычно, есть пара-тройка но. Во-первых, форма альвеолярной дуги – штука до крайности изменчивая. Хотелось бы узнать – каких современных людей авторы брали за образец? А ведь среди особо прогнатных восточных экваториалов – австралийских аборигенов и меланезийцев – частенько встречаются индивиды с прямоугольной зубной дугой, резко вытянутой, с клыками в выраженных углах между спрямленной передней линией резцов и прямыми параллельными линиями заклыковых зубов. Что, их тоже теперь относить к австралопитекам? Политкорректность не треснет? Во-вторых, реконструкция объема мозга по раздолбанным теменным костям – дело неблагодарное. Доселе для OH 7 публиковался разброс вероятных размеров мозга от 560 до 724 см³. В. И. Кочеткова реконструировала целые эндокраны OH 7 в трех вариантах, и ведь самый крупный из них оказался как раз самым неправдоподобным! “Австралопитековый” имел размер всего 560 см³, а “умеренный” – 650 см³. Другие авторы предполагали величину около 687 см³. Но 800 см³ – не многовато ли? Томография и компьютеры – это, конечно, здорово, но классику ведь тоже забывать не стоит. Да и есть ли смысл убиваться по поводу размеров именно этого черепа – они всегда останутся спорными, – если есть несколько почти целых черепов: OH 24, KNM-ER 1470, KNM-ER 1805 и KNM-ER 1813. В-третьих, спор о принадлежности “ранних Homo” к одному или нескольким видам ведется уже полвека, и никому пока не удалось победить. Еще одна реконструкция старой находки вряд ли способна поставить окончательную точку в этой грандиозной битве мозгов. В-четвертых, если H. habilis – тупик, H. rudolfensis – тупик, то кто же тогда предок? (На этом месте должны появиться креационисты и радостно закричать: “АГА!!!”) Авторы статьи считают, что H. erectus, но относят к этому виду дманисцев, так что выходит, что эректусы совершенно синхронны и хабилисам, и рудольфенсисам. Точка зрения до крайности спорная. Кажется, путаницу и противоречия можно успешно разрешить, если больше внимания уделять хронологии и не смешивать группы, отстоящие друг от друга на сотни тысяч лет. Тогда будет видно, что H. rudolfensis – более древний и массивный вид, включающий в себя в том числе дманисцев, H. habilis – более молодой и грацильный, а H. ergaster и тем более H. erectus – это уже совсем другая история. Такая схема не избавляет от необходимости выискивать тупики эволюции, но в ней наблюдаемая изменчивость приобретает эволюционный смысл, а количество непонятных ветвей резко сокращается. Так что интрига сохраняется, битва за первого человека в самом разгаре, впереди еще много интересного! Как говаривала Алиса: чем дальше, тем любопытственнее и любопытственнее…Особый интерес представляет кисть OH 7. По ряду признаков она может быть определена как специализированная – в частности, своеобразную форму и очень маленькие размеры имеет ладьевидная кость. Существенно, что сустав между костью-трапецией и первой пястной костью был седловидный – “трудовой”, хотя и сильнее уплощенный, чем у современного человека. Примитивное строение имеет IV запястно-пястный сустав. Основание II пястной кости по некоторым параметрам ближе к горилльему варианту, чем человеческому, а сама кость довольно грацильна. Соотношение широтных размеров пястных костей OH 7 больше напоминает обезьяний вариант и очень редко встречается у современного человека. На фалангах продольные борозды головок и борозды для сгибателей пальца на телах очень глубокие, а валики по бокам фаланг бугристые, так что тела фаланг расширены в средней части; все эти признаки скорее как у человекообразных обезьян, нежели человека. Вместе с тем головки концевых фаланг расширены, что является одним из важнейших признаков трудовой кисти. Особенно велика концевая фаланга I пальца кисти, хотя она может относиться к стопе, другому индивиду или даже другому виду. Совокупность признаков кисти свидетельствует, что 1,7–1,8 млн лет назад кисть еще не обрела всех человеческих свойств; вместе с тем это самая человеческая кисть из древнейших, намного более человеческая, чем была у австралопитеков.
Такая же мозаика примитивных и прогрессивных черт обнаружена на стопе OH 8, найденной тут же; не исключено, что ей обладал тот же индивид. С одной стороны, стопа принадлежала, очевидно, полностью прямоходящему существу и имела хорошо выраженные продольный и поперечный своды, с другой – своеобразна, а по ряду черт равно отличается от понгид и современного человека (Kidd et al., 1996). В частности, очень оригинальны таранная, пяточная, ладьевидная и кубовидная кости, большой палец, вероятно, был сильнее отведен, чем обычно у современного человека, но при этом первая плюсневая крайне массивна, да и другие длинные и мощные и, вероятно, чуть более подвижные, чем у человека. Таким образом, стопа хабилисов еще могла сохранять адаптацию к жизни на деревьях, но в силу ли эволюционной инерции или действительно использования по этому назначению – неясно. Справедливости ради надо сказать, что ярлычок с большого пальца стопы, если он и был, не сохранился, так что видовая принадлежность OH 8 вообще-то точно неизвестна. Некоторые антропологи считают, что это стопа бойсовского парантропа. Вопрос может быть окончательно решен только обнаружением более-менее целого скелета парантропа или хабилиса.
В слоях с датировками 1,7–1,8 млн лет назад или чуть больше вместе с останками Paranthropus boisei были найдены мелкие фрагменты черепа с большой и малой берцовыми костями OH 6, а также большая и малая берцовая кости OH 35. Судя по всем указанным посткраниальным костям, рост олдувайских эогоминин был невелик, порядка 1,6 м.
Не только размеры, но и пропорции можно установить по остаткам скелета взрослого индивида OH 62, известным также как Дик Дик Хилл или Ребенок Люси и имеющим датировку порядка 1,8 млн лет назад. Скелет состоит из 302 фрагментов, но в данном случае, к сожалению, “много” не значит “хорошо”. Все же можно понять, что по большей части признаков OH 62 соответствует другим мелким Homo habilis Олдувая и Кооби-Фора. Впрочем, и тут не обошлось без альтернативных мнений: отдельные исследователи склонны считать, что OH 62 больше похож на Australopithecus afarensis, чем на Homo habilis (Berillon et Marchal, 2002). В отличие от OH 24, этот гоминид не имел “передних лицевых валиков”, так что нет оснований предполагать его родство с южноафриканскими австралопитеками. Гораздо интереснее все же его посткраниальные особенности. Размеры костей небольшие, так что рост достигал всего 1–1,25 м. Существенно, что руки относительно ног были очень длинными, даже длиннее, чем у Australopithecus afarensis (Richmond et al., 2002). OH 62 и KNM-ER 3735 представляют два самых изученных скелета “ранних Homo”, и в обоих случаях пропорции конечностей выглядят весьма архаичными; судя по ним, эволюция от четвероногих приматов к людям не была совсем прямой, имела место специализация пропорций в первой половине “загадочного миллиона”.
В скором будущем мы узнаем о строении хабилисов намного больше, так как в Кооби-Фора найден скелет KNM-ER 64062 с датировкой 1,82–1,86 млн лет назад (Jungers et al., 2015). От него сохранились кости рук и ног. В предварительной публикации анонсирована смесь примитивных и прогрессивных черт в их строении, кажется с преобладанием именно прогрессивных.
Из несколько более поздних слоев Олдувая – 1,7 млн лет назад – происходит фрагментарный череп подростка OH 16, или Джорджа. Таксономически он определялся как Homo rudolfensis, Homo habilis, Homo ergaster, Homo sp. nov. или ранний Homo erectus, а первоначально даже как Zinjanthropus boisei. В принципе, OH 16 может считаться образцовым хабилисом; он мало отличается от OH 24. Размеры этого черепа оказываются самыми усредненными из известных для гоминид “загадочного миллиона”, в частности, объем мозга составляет 638 см³, типичны для хабилисов и детали строения височной кости. Надбровные дуги выступают несколько сильнее, чем у большинства хабилисов и рудольфенсисов, но слабее, чем у эргастеров и тем более эректусов. Примитивными чертами являются близкое схождение височных линий и очень большие размеры зубов, такие же, как у австралопитеков; особенно велики клыки.
Примерно то же можно сказать о находке OH 13 (Синди, или Синдерелла): как и OH 16, она определялась всеми возможными способами – Homo habilis, Homo sp. nov., Homo ergaster, Homo erectus. Ее возраст колеблется от 1,65 до 1,78 млн лет назад (Spoor et al., 2007). В действительности фрагменты свода черепа с наибольшей вероятностью принадлежат взрослой особи, а верхняя и нижняя челюсти – подростку. Размеры черепа, челюстей и зубов вполне соответствуют типичным для Homo habilis. Впрочем, сообразно поздней датировке, OH 13 обладает и прогрессивными чертами, например скругленностью альвеолярной дуги спереди и расхождением ее ветвей назад. Вместе с черепом и челюстями были найдены фрагменты плечевой и лучевой костей, свидетельствующие о малых размерах тела OH 13.
С большой натяжкой можно назвать скелетом фрагменты костей KNM-ER 164 с датировкой около 1,6 млн лет назад, впрочем столь незначительные, что даже видовая их принадлежность находится под большим сомнением. Это могут быть останки как Paranthropus boisei, так и Homo habilis, и Homo erectus.
Одни из позднейших находок в Кооби-Фора представляют очередной показательный пример смешанности признаков гоминид “загадочного миллиона” – правая верхняя челюсть KNM-ER 42703 с датировкой 1,44 млн лет назад и черепная коробка KNM-ER 42700 возрастом 1,55 млн лет назад. Первая была описана как Homo habilis, вторая – Homo erectus (Spoor et al., 2007). Из этого был сделан вывод, что два указанных вида сосуществовали в Восточной Африке на протяжении как минимум полумиллиона лет. Однако, как справедливо заметили другие антропологи, слишком большое количество признаков отличает KNM-ER 42700 от “типичных” Homo erectus, так что его с бóльшим основанием можно было бы определить как все того же Homo habilis или, более осторожно, Homo sp. (например: Baab, 2008). В частности, слишком маленькие общие размеры, малая толщина костей свода, округлость затылка, минимальное развитие надбровного рельефа никак не вписываются в стереотип архантропов, зато почти идеально соответствуют хабилисам. Размеры KNM-ER 42700, действительно, оказываются минимальными для архантропов, но одновременно максимальными для хабилисов. Объем его мозга был 691 см³, что больше индивидуального максимума хабилисов, но меньше, чем у всех классических архантропов, кроме дманисцев, кои, собственно, и не являются классическими. В некоторой степени двоякое истолкование положения этого черепа в филогении гоминид объясняется промежуточностью его строения, в некоторой – молодым возрастом и, с большой вероятностью, женским полом. Таким образом, время около 1,44–1,55 млн лет назад можно считать последним рубежом сохранения черт Homo habilis в Восточной Африке.

Рис. 14. Галечные орудия.
Кстати, о высоком… За рассуждениями о зубах и барабанных пластинках не стоит забывать и о духовном. Хабилисы не зря называются “умелыми”: их время – это расцвет галечной, или олдувайской, культуры. Галечные орудия были, очевидно, универсальными, но тем не менее среди них есть несколько типов: чоппер – большое орудие из гальки с оббивкой с одной стороны, чоппинг – большое орудие из гальки с оббивкой с двух сторон. Кроме орудий, выделяются: нуклеус – не орудие, но заготовка, из которой изготавливалось орудие, отщеп – кусок камня, отколовшийся от нуклеуса при изготовлении орудия, чаще выбрасывался за ненадобностью, но иногда мог использоваться без дальнейшей обработки. У первых орудий есть четыре принципиальных отличия от более совершенных: во-первых, из одного камня изготавливалось одно орудие, во-вторых, орудие изготавливалось исключительно деструктивно – путем отсекания лишнего от заготовки (все по О. Родену!), но без комбинации отдельных элементов, в-третьих, обработка края имела целью его заострение (в более совершенных индустриях иногда, напротив, некоторое притупление), в-четвертых, орудие использовалось, видимо, только как прямое продолжение руки, метательных орудий достоверно неизвестно, хотя наверняка и австралопитеки, и “ранние Homo” умели бросать разные предметы (часто находимые сфероиды интерпретируют как метательные камни). Древнейшие примеры использования кости известны из южноафриканских пещер Сварткранс и Дримолен-Кейв с датировками около 1,2–1,8 млн лет назад; они выглядят как костяные обломки, использовавшиеся для расковыривания термитников, что было доказано экспериментально по характерной изношенности их концов. Иногда орудия изготавливались из обломков крупных костей по той же технологии, что и каменные орудия. Несмотря на простоту галечных орудий, их выделка требует определенных навыков и интеллектуальных способностей, точности взгляда и верности руки. Не стоит недооценивать древних творцов; примитивность примитивностью, а сложность сложностью. Читатель может найти в ближайшем овраге кремневый желвак и попробовать сделать хотя бы самый простецкий галечный чоппер. Лучше не надо – шуму будет много, а пользы, скорее всего, никакой; да и пальцы отшибить можно, колоть-то придется камень. Делать такие орудия надо уметь и надо учиться. Трудно сказать, перенимали ли детишки искусство чоппероделания простым наблюдением, или родители целенаправленно обучали своих чад. Думается, группы, где уроки камнеобработки были поставлены более целенаправленно, получали преимущества и в целом выигрывали. Разгильдяи же и лодыри оказывались на обочине прогресса и были обречены на прозябание и в конце концов вымирание. Чопперы достаточно эффективны как ножи для разрезания. Для проверки этого положения проводился опыт: в Африке археологи наделали чопперов, взяли лишнего, никому не нужного слона (уже “готового”, ни одно животное не пострадало!) и экспериментально разделали его тушу за пару часов. Если уж совершенно неподготовленные люди, никогда в жизни не свежевавшие слонов чопперами, смогли управиться за столь малое время, то что уж говорить об умудренных богатым опытом хабилисах! Между 2 и 1,5 млн лет назад появляются новые, более совершенные инструменты – ручные рубила. Это большие заостренные на конце орудия с более-менее ровной обработкой двух сходящихся краев; ручные рубила бывают в виде бифаса – обработанные с двух сторон – или унифаса – обработанные с одной стороны. Древнейшие рубила известны из кенийского местонахождения Кокиселеи 4 с датировкой 1,76 млн лет назад (Lepre et al., 2011), едва моложе – из эфиопского Консо (Beyene et al., 2013). Ручные рубила, найденные в танзанийском местонахождении Пенинж, были сделаны заметно позже – 1,4–1,7 млн лет назад, зато про них известно, что они использовались для обработки дерева (Dominguez-Rodrigo et al., 2001). По наличию типов орудий и их форме выделяют два периода галечной культуры: олдован A – ранний, 2–1,7 млн лет назад, в котором нет бифасов, и олдован B – поздний, 1,6–1,7 млн лет назад, в котором бифасы есть. Кстати, в поисках древнейших индустрий археологи описали довольно много “первых культур”. Например, в Европе выделялась “культура эолитов”, а в Южной Африке – “культура галек Кафу”, но сейчас они не признаются за реальные. Древнейшие стоянки расположены всегда в открытой местности недалеко от воды. По костям животных можно определить, в какой сезон люди жили в том или ином месте. Поэтому мы знаем, что “ранние Homo” совершали сезонные миграции (например: Peters et Blumenschine, 1995). Особенно интересны стоянки в Олдувае. В локальном местонахождении FLK North 6 найден почти полный скелет слона Река, погруженный в глину. Люди не могли вытащить слона из болота (ох, нелегкая это работа!), а потому съели ровно половину, торчавшую на поверхности. Непосредственно рядом с ним найдено 123 артефакта. Аналогичная картина рисуется в местонахождении FLK North II: расчлененный скелет Deinotherium, тоже застрявший в глине, и 39 орудий и манупортов около него. Слона Река съели и обитатели Барогали в Джибути, есть и другие подобные находки. Другое важное местонахождение Олдувая – DK1. Тут был обнаружено скопление базальтовых обломков в виде круга диаметром 3,7–4,3 м (Leakey, 1989). Интерпретация его может быть разной. Кое-кто предполагал, что это просто скопление лавы вокруг дерева, но когда такие же сооружения находят в голоценовых слоях, никто особо не сомневается, что это остатки примитивного жилища в виде шалаша из веток, основания стен которого были придавлены камнями. Но датировка олдувайского жилища – более 1,75 млн лет назад! Научно-техническая революция: прорыв в будущее по-ашельски. Многие люди при словосочетании “научно-техническая революция” представляют себе космические ракеты, компьютеры, дымящие трубы заводов, паровоз с велосипедом, на худой конец. Однако ж не всегда НТР была синонимом пара и электричества, стекла и бетона. 1,75 млн лет назад наши предки совершили глобальный интеллектуальный прорыв, выйдя за тесные рамки галечной индустрии и на сотни тысяч лет обеспечив своим потомкам благоденствие в уютном совершенстве ашельской культуры. От галечной (или олдувайской – по месту первого описания) ашельская индустрия отличается целым рядом нововведений. Довольно бесформенные олдувайские орудия – чопперы и чоппинги – дополнились четко унифицированными и гораздо более качественно сделанными. Появились и быстро вошли в моду ручные рубила – тяжелые широкие орудия с двумя режущими краями и острым концом. Спрямленным рабочим краем вместо острия отличались кливеры, похожие на нынешние долота. Аморфнее острия, чья конфигурация, видимо, в большей степени зависела от фантазии, лени и надобности. Судя по повторяемости основных типов, каждый из них имел более-менее определенную функцию. Галечные орудия, конечно, тоже удовлетворяли немудрящим потребностям первых людей, но с ашельскими, безусловно, жить стало лучше, жить стало веселее. Статья, написанная, как водится, международным коллективом археологов и посвященная описанию очередного древнейшего ашельского местонахождения, была опубликована в “Известиях Американской академии наук” в 2013 г. (Beyene et al., 2013). Надо сказать, что за два года до этого древнейший ашель уже был обнаружен в местонахождении Кокиселеи 4, расположенном в Кении (Lepre et al., 2011), где слои с орудиями залегали на 4,5 м выше уровня, датированного 1,78 млн лет назад, так что имеют возраст около 1,76 млн лет. Новые датировки получены для местонахождения Консо (конкретнее – в KGA6-A1), расположенного на юге Эфиопии. Они практически совпадают с кенийскими – 1,75 млн лет назад. Из этого следует уже тот замечательный вывод, что либо истоки ашельской традиции лежат в еще более глубоком прошлом, либо технические инновации распространялись практически мгновенно по просторам африканских саванн. Видимо, как для современного человека очевидны преимущества компьютера перед печатной машинкой или гусиным пером, поезда и самолета – перед телегой, а ксерокса – перед монахом-переписчиком, так и перед первыми людьми не вставали вопросы: что лучше – чоппер или кливер, чоппинг или рубило? Сделать, конечно, сложнее, но пользоваться – несравненно приятнее. Ортодоксы и консерваторы проигрывали и угрюмо отсиживались по углам Ойкумены, а новаторы торжествующе разносили свет прогресса по долам и лесам. Важнее другой аспект открытия – преемственность технологий. До сих пор многие “наидревнейшие” индустрии частенько зависали как бы в хронологическом вакууме, а их развитие обнаруживалось в более-менее отдаленном будущем. Обычно проблема банально в том, что геологические слои не накапливаются в одном месте непрерывно, иногда они не формируются или даже разрушаются. Другое дело – материалы в Консо. Длительная последовательность отложений позволила проследить последовательность археологического развития от 1,9 до менее чем 1 млн лет назад. В ранних слоях лежат галечные орудия, индустрия в KGA6-A1 была определена как прото-ашель, а в KGA4-A2 с датировками 1,6 млн лет назад найден уже типичный ранний ашель. Разница заключается в качестве обработки орудий: у более поздних она тщательнее, форма вывереннее, симметричнее, режущий край тоньше, увеличивается число ударов, совершенных во время изготовления, уменьшается размер сбитых отщепов. Развитие прослеживается и дальше примерно в том же направлении. Примечательно, что ручные рубила совершенствовались интенсивнее, чем острия. Для последних, в частности, не обнаруживается изменения числа ударов, нанесенных при выделке. Нельзя не заметить – и авторы статьи заметили это, – что с новейшими датировками ашеля практически уравнивается время появления этой культуры и вида Homo ergaster. Ведь давно было обнаружено, что культура совсем уж тесно не привязана к биологическим видам, но в целом соответствие все же есть. Границы же Homo habilis – Homo ergaster и олдувай – ашель расходились примерно на 250 тысяч лет. Теперь же они совпадают почти идеально: 1,65–1,7 млн лет назад для KNM-ER 3733 и 1,75 млн лет назад для Кокиселеи 4 и Консо. С учетом того, что морфология KNM-ER 3733 уже резко отличается от Homo habilis, а камни сохраняются лучше черепов, – совпадение совсем точное. Конечно, это не исключает того, что ретрогады-хабилисы еще долго могли бродить по африканским закоулкам и клепать свои устаревшие чопперы. Но прогресс не остановишь! Мозги и рубила проторили дорогу эргастерам и их потомкам в светлое будущее, к следующей революции, вперед – к “среднему каменному веку”. Но это уже совсем другая история…Статус вида “человек умелый” весьма зыбок. С одной стороны, его трудно отличить от предшествовавших “людей рудольфских”, с другой – от “людей работающих” и даже “прямоходящих”. Даже таксономическая принадлежность видового голотипа – OH 7 – ставится под сомнение. Homo habilis, несомненно, прогрессивны строением своего жевательного аппарата, но по ряду признаков посткраниального скелета выглядят “откатившимися назад” в эволюции в сравнении даже с афарскими австралопитеками, а по размерам мозга хотя и превосходят австралопитеков, но “отстают” от рудольфенсисов. Следствие ли это прихотливых загогулин эволюционного процесса, или свидетельство происхождения хабилисов от каких-то еще неведомых австралопитеков? А чтоб антропологам не показалось, что загадок маловато, из африканских недр на свет божий появляются совсем уж невразумительные находки.
Странные Homo Восточной Африки: Homo microcranous.
Африканские саванны и пустыни хранят еще много откровений. Намеками на то, что не все так просто, являются некоторые окаменелости, не вписывающиеся в стройные стандартные схемы учебников. Некоторые находки из Восточной Африки стоят особняком среди всех эогоминин, даром что они одни из самых сохранных. Это прежде всего два черепа: KNM-ER 1805 и KNM-ER 1813.

Рис. 15. Черепа KNM-ER 1805 (а) и KNM-ER 1813 (б).
KNM-ER 1805, известный также как “Загадочный череп”, согласно новейшим датировкам, жил 1,75 млн лет назад (McDougall et al., 2012). Мозговая коробка и челюсти разломаны так, что не стыкуются между собой, так что ориентация и даже размеры лицевого скелета точно неизвестны. Все же основные признаки вполне определимы. Признаки эти противоречивы, отчего находка диагностировалась крайне разнообразно: как Homo habilis, Homo rudolfensis, Homo ergaster, Homo sp., Paranthropus boisei. Строго говоря, положение KNM-ER 1805 среди прочих гоминид “загадочного миллиона” совершенно уникально. Череп довольно велик для австралопитеков, но вполне соответствует норме хабилисов: его объем 582 см³. Линейные размеры черепа даже больше, чем у хабилисов, поскольку затылочный рельеф выражен очень сильно (развитие надбровья неизвестно). При этом височные линии в задней части сходятся практически вплотную, образуя хотя и слабый, невыраженный и слегка недоделанный, но все же сагиттальный гребень. На затылке же выйный гребень сливается с височным в единое образование, чего не бывает у эогоминин и даже у Australopithecus africanus. Височная кость, как часто бывает, несет мозаику признаков. Особенно удивителен лицевой скелет: челюсти очень мощные, тяжелые, резко прогнатные, в продольной плоскости лицо вогнуто, а в поперечной средняя часть лица сильно выступает вперед. Судя по височному рельефу, скуловые дуги были немаленькими, но насколько они выступали в стороны, сказать сложно, согласно некоторым реконструкциям – не так уж и сильно, примерно как у KNM-ER 1813 и Stw 53. Альвеолярный отросток резко выдается вперед, выпукл продольно и поперечно и плавно переходит в дно носовой полости, что является выраженно примитивным вариантом. Нижняя челюсть сохранилась плохо, но она явно была массивной. На удивление, зубы KNM-ER 1805 невелики, намного меньше, чем у Australopithecus boisei и большинства Homo habilis, хотя моляры относительно передних зубов несколько увеличены. Сочетание мощнейшего жевательного аппарата и маленьких зубов очень необычно.
Как расценивать такую чехарду признаков – непонятно. Согласно одному из объяснений, KNM-ER 1805 был патологической особью; в пользу этого приводилось, например, наличие у него метопического шва. Однако каких-то специфических признаков болезней на самом деле нет, а метопический шов – вполне нормальная вариация у самых разных приматов, включая человекообразных обезьян в целом и человека в частности.
С другой стороны, можно обратить внимание, что размеры нижних зубов KNM-ER 1805 непринципиально отличаются от Дманиси D2600, хотя верхние заметно меньше, чем у Дманиси D4500. А ведь по времени “Загадочный череп” и Дманиси почти синхронны! Хотя по некоторым абсолютным размерам черепа KNM-ER 1805 заметно уступает дманисцам, зато по объему мозга и ширине лба даже несколько превосходит D4500. Может, это вариации на одну и ту же тему поздних мелкозубых рудольфенсисов?
Возможно также, KNM-ER 1805 был гибридом парантропа и эогоминина: от первого он унаследовал челюсти, а от второго – мозги и зубы. Конечно, биологические признаки не наследуются готовыми комплексами, но “метисная” гипотеза происхождения KNM-ER 1805 ненамного хуже альтернативных версий. Удивительно, что все авторы отмечали своеобразие KNM-ER 1805, но никто не решился дать ему собственное латинское наименование.
Второй “нестандартный” эогоминин Восточной Африки – KNM-ER 1813. Его датировка такая же, как у KNM-ER 1805 (1,75 млн лет назад), но признаки существенно отличаются. Главная особенность KNM-ER 1813 – очень маленькие размеры. Они были увековечены в названии Homo microcranous, предложенном специально для этой находки (череп послужил голотипом и для вида Homo antiquus, включавшего также афарских австралопитеков, но такое объединение оказалось слишком уж спорным, а название было уже раньше использовано для неандертальцев, а потому не может считаться валидным; Ferguson, 1995). Объем мозга KNM-ER 1813 равен 505–510 см³, то есть в верхних пределах изменчивости афарских австралопитеков и ниже нижних – хабилисов. Однако KNM-ER 1813 очень мало похож на Australopithecus afarensis и не очень – на Homo habilis: у него слишком слабо выступающие, хотя и высокие челюсти (выше, чем, например, у OH 24), слишком округлый затылок, слабое надбровье и довольно-таки выпуклый лоб, височные линии широко отстоят друг от друга, череп гораздо долихокраннее, чем у хабилисов; лицо узкое, а его средняя часть сильно выступает вперед, тогда как скулы заметно скошены; передняя поверхность верхней челюсти плоская, без “передних лицевых валиков”; зубы несколько меньше, чем у большинства Homo habilis, но относительно самого черепа не такие уж и мелкие. Особенности височной кости весьма прогрессивны. Вместе с тем скуловые дуги довольно сильно расходились в стороны, а нижняя челюсть должна была иметь очень высокую и узкую восходящую ветвь.
Представляет ли KNM-ER 1813 крайний вариант индивидуальной изменчивости Homo habilis или самостоятельный вид – большой вопрос. Если принять первый вариант, то вариабельность Homo habilis оказывается очень большой, хотя, собственно, почему бы ей и не быть таковой? Речь ведь не о средних, а о крайних значениях. Если же верна вторая версия, то крайне интересно: чем обеспечивалась изоляция между близкими видами эогоминин, особенно учитывая наличие еще и парантропов? И где останки других представителей этого вида?
Будем надеяться, что новые открытия дополнят наши знания.
Странные Homo Южной Африки: sediba и gautengensis.
Особняком стоят находки из пещеры Малапа в Южной Африке, имеющие возраст 1,977 млн лет назад. Два скелета и остатки еще двух отсюда были описаны как Australopithecus sediba, причем в первоописании подчеркивалось, что малапские гоминиды имеют примерно поровну признаков Australopithecus и Homo (Berger et al., 2010), так что в принципе они могут называться и Homo sediba. Чрезвычайно любопытно, что целый ряд черт A.sediba указывает на их происхождение от южноафриканских A. africanus: это уплощенность передней стороны альвеолярного отростка верхней челюсти, значительная глубина неба, общая форма нижней челюсти, детали строения зубов. Вместе с тем черт эогоминин тоже немало: в числе их отсутствие расширенности лица, развернутости скуловых костей и “передних лицевых валиков”, относительно умеренный прогнатизм, детали височной кости, строение таза и некоторых других посткраниальных костей. Есть и такие признаки, по которым A. sediba больше похож на A. afarensis, чем на кого-либо еще. От кого A. sediba действительно заметно отличается, так это Paranthropus и Homo rudolfensis. Объем мозга малапцев маленький, типично австралопитековый – около 420 см³.

Рис. 16. Череп и скелет Australopithecus sediba.
Мозаика из Малапы. Южноафриканская пещера Малапа прославилась в 2008 г., когда в ней были найдены останки четырех удивительных существ. Два млн лет назад в подземную ловушку угодили взрослая самка, подросток-самец и детеныш. От первых двух сохранились почти целые скелеты, от детеныша – фрагменты конечностей; найдена также изолированная большая берцовая кость взрослого. Изучение уникальных останков вылилось в описание вида Australopithecus sediba, строго промежуточного между австралопитеками и “ранними Homo”, так что некоторые антропологи склонны говорить о Homo sediba. Находки из Малапы позволили говорить о Южной Африке как о возможной прародине человека. Детальные исследования уникальных окаменелостей уточняют и конкретизируют картину столь важного этапа антропогенеза – возникновения собственно человеческого рода. Показательно, что прогрессивные и примитивные признаки разных частей скелета распределены у малапских гоминид крайне неравномерно и мозаично, прогрессивность в одной детали компенсируется архаизмом в другой: часть не отличается от состояния, типичного для современного человека, тогда как другая слабо отличима от обезьян или занимает более или менее промежуточное положение. Сравнение A. sediba с A. africanus и A. afarensis показывает, что крайне трудно по одному из фрагментов предсказать уровень продвинутости какого-либо другого. Замечательно также, что ряд признаков малапских гоминид оказался прогрессивнее, чем у известных и притом более поздних хабилисов! Это является сильным аргументом в пользу южноафриканского происхождения рода Homo. Поэтому снова и снова встает вопрос о принадлежности малапских гоминид к роду Homo. Если уж они прогрессивнее хабилисов, то либо хабилисы – австралопитеки, либо седибы – Homo. Сложность дефиниций усугубляется крайней недостаточностью сведений относительно морфологии хабилисов: их черепа более-менее известны, но о строении посткраниального скелета антропологи доныне знают немного. Известные факты свидетельствуют о значительной изменчивости хабилисов, по некоторым параметрам их можно даже разнести на два-три, а то и четыре вида. Реальная изменчивость H. habilis наверняка была еще больше известной нам, так что седибы вполне могут укладываться в ее рамки, хотя сейчас антропологам трудно это оценить достоверно. Закономерно, что по подавляющему большинству черт A. sediba похож на A. africanus, а не на восточноафриканских австралопитеков. Это, с одной стороны, логично биогеографически, с другой – свидетельствует о параллельной гоминизации на юге и востоке Африки. Шел ли процесс очеловечивания южноафриканских австралопитеков совершенно независимо, или же они “по пути” периодически смешивались с северными кузенами – неясно. Учитывая географию Африки, второй вариант представляется более вероятным. Видимо, с грацильными австралопитеками и “ранними Homo” сложилась примерно такая же ситуация, какая существует с нынешними павианами: крайние формы четко отличаются, но в промежутках есть переходные формы, а все они вполне могут скрещиваться. Морфология малапцев была подробно описана в двух циклах статей в 2011 и 2013 г. в журнале Science. Авторы исследования зубов на основании огромного количества описательных признаков (22 черты) пришли к выводу, что A. sediba, входящий в один кластер с A. africanus, ближе к H. habilis и более поздним гоминидам, чем A. afarensis, объединяющийся с массивными австралопитеками (Irish et al., 2013). Вроде как A. africanus и не слишком родственен A. afarensis'у. Из этого следует логичный вывод, что Восточная Африка как бы стояла в стороне от прогресса, тогда как в Южной он бурлил по полной. Кстати, размеры зубов седибы очень маленькие, уступают любым австралопитекам и “ранним Homo”, что вроде как очень прогрессивно. Хочется, правда, сказать три но. Первое: использованный кластерный анализ – не лучший инструмент для оценки сходств и различий высокоизменчивых групп. Уж очень он округляет и усредняет, упрощает реальность. Второе: одонтологические признаки – далеко не самые надежные для выявления близости в сильнородственных группах. Наглядным тому доказательством является кладограмма, приведенная в электронном приложении к статье: негроиды в ней зависли между A. sediba и H. habilis с H. erectus, тогда как современные “североафриканцы” оказались общими предками всех прочих рассмотренных групп; нельзя отказать авторам, опубликовавшим такую кладограмму, в юморе. Куда-то бы попали монголоиды? Ясно, что, используя иные алгоритмы, можно получить и прочие забавные распределения групп, а та, что вошла в основной текст, просто больше понравилась авторам. Третье: рассмотренные восточноафриканские A. afarensis сильно древнее прочих включенных в анализ видов, так что их сходство с парантропами и отдаленность от “ранних Homo” необязательно отражает реальное родство. Видимо, у парантропов рассмотренные признаки менялись медленно (не зря они считаются более примитивными), а в гомининной линии – быстро. A. africanus же просто несколько моложе геологически, чем A. afarensis, что и отразилось в их “большей прогрессивности”. Исследование нижней челюсти второго индивида из Малапы показало, что он весьма отличается от A. africanus (Ruiter et al., 2013) – вывод прямо противоположный тому, что сделан для зубов! Отличия комплексны, заключаются как в размерах и форме, так и в ростовых процессах. Приятно, что видовой статус этим подтверждается, но неясно, откуда взялась такая специфика. На графиках канонического анализа (вот она – победа разума – не кластерного, не главных компонент, а канонического!!!) малапская челюсть занимает обособленное положение скорее рядом с A. afarensis и H. habilis с H. erectus, чем с кем-то еще. Впрочем, в приложении приведены и иные варианты анализов, в коих A. sediba оказывается едва ли не массивным австралопитеком. Имея некоторый опыт построения и анализа аналогичных графиков, могу ответственно заявить свое но: парой графиков в подобном случае обойтись никак нельзя. Единичное наблюдение может гулять по всем возможным осям довольно вольготно в зависимости от множества случайных моментов. Можно оценить соотношение групп наблюдений, но индивидуальная диагностика таким способом почти невозможна. Вот если бы в статье были приведены индивидуальные значения на графиках, а не точки для абстрактных средних – смысла было бы заметно больше. Мозг гоминида Малапа 1 не очень большой – 420 см³ – и в целом соответствует вариациям грацильных австралопитеков (Carlson et al., 2011). Показательно сильное сужение лобных долей и заметная уплощенность их сверху. Вместе с тем так называемый “лобный клюв” – выступание вниз центральной части лобных долей – несколько меньше, чем у австралопитеков, и гораздо меньше, чем у обезьян. Совсем прогрессивно выглядит глубокая височная ямка между лобной и височной долей, отсутствующая у обезьян и многих австралопитеков. Несмотря на то, что по абсолютным размерам и простейшим пропорциям мозг Малапы 1 уклоняется скорее в сторону шимпанзе, многомерный анализ главных компонент формы надглазничной области лобной доли поместил Малапу 1 на край распределения современных людей. Как особенно прогрессивный признак отмечено смещение назад обонятельных луковиц. Строго говоря, метод главных компонент неприменим при межвидовых сравнениях, но такова уж традиция зарубежной антропологии, и более адекватные методы, например канонический анализ, пока не применялись для анализа эндокрана из Малапы. Серьезным недочетом исследования следует считать отсутствие в анализе эндокранов хабилисов; из австралопитеков для сравнения привлечены лишь южноафриканские грацильные Sts 5 и Sts 60. Таким образом, из опубликованной работы о мозге Малапы 1 нельзя сделать выводов о прогрессивности этого гоминида. Как назло, на всех четырех известных эндокранах хабилисов реконструирована именно та область, которая сохранилась у Малапы 1 (из них OH 7 реконструирован вообще по одним теменным костям). Все же можно отметить, что эндокран KNM-ER 1805 выглядит гораздо более шимпанзеподобно, чем Малапа 1; у KNM-ER 1813, вероятно, была слабее выражена височная ямка, а KNM-ER 1470 весьма и весьма похож на Малапу 1. Последнее обстоятельство особенно важно, учитывая новые датировки KNM-ER 1470 – около 2,03 млн лет назад – “всего” на 50–60 тыс. лет древнее, чем Малапа, а вспоминая о погрешности определения возраста – они вообще современники. Позвоночный столб австралопитеков изучался уже не раз, но почти всегда отдельно от остального скелета. В поясничном отделе седибы с наибольшей вероятностью было пять позвонков – стандарт для современного человека (Williams et al., 2013). Ранее у разных австралопитеков и даже неандертальцев регулярно обнаруживались отхождения от этого правила. Еще важнее, что есть все основания предполагать у A. sediba наличие поясничного лордоза – изгиба вперед. Поясничный лордоз отсутствует у шимпанзе, но формируется у человеческих детей в раннем детстве, когда ребенок начинает сидеть, ползать и ходить; он жестко связан с прямохождением (у горилл поясничный лордоз тоже хорошо выражен, но обусловлен огромным весом тела). Крестец седибы содержит пять позвонков – как у современного человека. Его ушковидная поверхность – место соединения с подвздошной тазовой костью – велика и обширна, что связано с двуногой походкой и соответственно возросшими нагрузками. Отличием от человека можно считать некоторую относительную удлиненность поясницы и ее большую гибкость – черты, вероятно полезные при регулярном лазании по деревьям. В целом позвоночник A. sediba оказывается прогрессивнее, чем у австралопитеков, и примерно столь же развит, как у “мальчика из Нариокотоме”, то есть Homo ergaster'а, жившего на полмиллиона лет позже. Далее – грудная клетка (Schmid et al., 2013). Первым делом стоит отметить, что эта часть скелета сохраняется всегда хуже прочих. Фактически до сих пор не было ни одного примера хорошо изученной грудной клетки австралопитеков или “ранних Homo”. Уникальная сохранность малапских находок позволила установить, что грудная клетка A. sediba больше похожа на шимпанзоидную, нежели человеческую. Она имеет удивительно обезьяньи пропорции в целом: низкая и очень широкая, причем резко расширяется сверху вниз. Очевидно, такое строение тесно связано с обезьяньим планом строения верхней конечности. Суженность верхней части грудной клетки, как предполагается, отражает неспособность ходьбы и бега на более-менее дальние расстояния, а расширенность нижней все же не столь резкая, как у человекообразных обезьян. То есть и по этому признаку мы имеем замечательно переходную форму. Следующая статья посвящена изучению костей верхней конечности (Churchill et al., 2013). Первым делом обращает на себя внимание крайняя архаика лопатки из Малапы. По подавляющему числу параметров она оказывается наиболее схожей с лопатками орангутанов. Плечевые кости тоже крайне примитивны и попадают в компанию с Люси, Нариокотоме, Дманиси и Лианг-Буа 1. Длина предплечья относительно длины плеча у Малапы почти идентична хабилису OH 62 и находится на границе между людьми и шимпанзе, с уклоном к первым. Общая мораль – A. sediba крайне примитивен в строении рук, он запросто мог лазать по деревьям… если бы не кисть. Впрочем, даже продвинутая кисть не мешала малапцам забираться на деревья, ибо и современные люди делают это очень хорошо. Кисть Малапы 2 сохранилась почти полностью, исключая дистальные фаланги всех пальцев, кроме большого (Kivell et al., 2011). В строении ее частей имеются как типично австралопитековые признаки: грацильность тел пястных с увеличенными головками и ориентация их оснований, сильно вогнутая форма основания первой пястной, маленькие головки, большие основания и сильный изгиб фаланг, мощные гребни сгибателей на нижней стороне фаланг, – так и почти совсем человеческие: относительно длинный большой и короткие прочие пальцы, укороченная и расширенная форма дистальной фаланги большого пальца, форма ладьевидной, головчатой и крючковидной костей. Замечательно, что по конфигурации некоторых костей, например ладьевидной и дистальной фаланги большого пальца, Малапа 2 оказывается ближе к человеку, чем хабилис OH 7. Это очевидно даже при внешнем сравнении и полностью подтверждается многомерными анализами ряда измерений: Малапа 2 попадает в область изменчивости современного человека, а OH 7 – шимпанзе и горилл. В целом общие пропорции кисти и кости запястья Малапы 2 почти человеческие, тогда как пястные и фаланги – австралопитековые. Авторами исследования это интерпретируется как следствие переходного статуса гоминид из Малапы, при котором одновременно и сохранялись способности к древолазанию, и появлялись способности к точечному захвату и изготовлению каменных орудий. Вместе с тем есть и специфические черты. Например, полулунная кость, хотя имеет в целом человеческую форму, обладает очень маленькой фасеткой для соединения с головчатой костью; впрочем, измерение фасетки, как это представлено в файле дополнительных материалов к статье, может быть поставлено под некоторое сомнение, вероятно, ее размер несколько занижен, а специфика, стало быть, завышена. Тазовые кости и крестец более-менее полноценно сохранились у Малапы 2; от таза Малапы 1 осталось меньше фрагментов, что не помешало исследователям выполнить реконструкцию целого таза (Kibii et al., 2011). Хотя достоверность некоторых деталей реконструкции может быть поставлена под сомнение, в целом таз гоминид из Малапы оказывается гораздо более похожим на человеческий, чем таз афарского австралопитека Люси. Впрочем, не обошлось и без архаичных особенностей, свойственных всем древним гоминидам от австралопитеков вплоть до неандертальцев: ширина таза очень велика, особенно существенна большая ширина между вертлужными впадинами, ибо именно она задает меньшую эффективность двуногой походки по сравнению с современным человеком. Напрямую связано с большой шириной таза удлинение лобковых ветвей. Примитивным признаком можно считать и малый размер крестцово-подвздошного сустава; впрочем, он может быть следствием аллометрической зависимости от малых размеров тела. Все же больше бросаются в глаза прогрессивные черты, отличающие малапских гоминид от австралопитеков: образование крестца из пяти позвонков, не слишком развернутые, относительно вертикальные, сигмовидно-изогнутые крылья, а также повышенная массивность тел подвздошных костей, форма и направление подвздошных остей, более вертикально ориентированная нижняя лобковая ветвь, укороченная седалищная кость и, соответственно, малое расстояние между седалищным бугром и вертлужной впадиной, ориентация седалищных бугра и ости несколько внутрь, отчего размер верхнего входа в малый таз оказывается относительно крупнее нижнего. В целом признаки таза гоминид из Малапы либо прогрессивны, либо занимают промежуточное положение между австралопитеками и людьми. Жаль, что мы ничего не знаем о строении таза хабилисов, отчего оценка прогрессивности гоминид из Малапы повисает в пропасти между австралопитеками и эректусами. Самая монументальная статья цикла посвящена нижним конечностям (DeSilva et al., 2013). Несть числа морфологическим особенностям, описанным в самой статье и приложении к ней. Можно выделить несколько самых интересных моментов. При прямом положении ноги стопа была очень сильно пронирована, то есть завернута внутрь. Не то чтобы малапец был косолапым, но при ходьбе он опирался на боковую сторону стопы, а не ставил ее прямо, как мы. Видимо, с перераспределением нагрузок при таком странном положении связано чрезмерное развитие нижней передней подвздошной ости на тазовой кости, поскольку туда крепятся соответствующие связки. Существенно, что у шимпанзе и прочих четвероногих этой ости фактически нет вовсе. Бедренная кость удивительно современна. Общая форма и детали пропорций почти не отличаются от человеческих и одновременно непохожи на те, что есть у шимпанзе. Конечно, без архаики и специфики тоже обойтись было никак нельзя. При взгляде сбоку форма мыщелков бедренной кости довольно округлая и укороченная, более схожая с обезьяньим вариантом. Специфичным признаком можно считать крайне низкий наклон шейки бедренной кости. Коленная чашечка из Малапы гораздо сильнее схожа с человеческой, нежели обезьяньей, пропорции малой берцовой кости оказываются строго промежуточными между человеческими и шимпанзиными. Таким образом, малапские A. sediba имеют удивительную мозаику примитивных, прогрессивных и уникальных черт в строении ног. У других же австралопитеков и “ранних Homo” сочетания признаков могут быть иными. Это позволило авторам предположить неоднократное возникновение прямохождения или как минимум независимое развитие нескольких его вариантов. Вывод смелый! Действительно, разнообразие вариаций в деталях строения у австралопитеков велико. Но говорит ли это о независимости путей их эволюции? Не принимаем ли мы индивидуальные особенности за глобальные эволюционные тренды? Не так много нам известно целых находок ног и тазов столь большой древности, чтобы можно было обосновать это статистически. Вариабельность подобных деталей строения у современных людей тоже весьма велика. Имеются варианты, связанные с полом и возрастом, болезнями и даже приобретаемыми привычками. Как различить среди этой чехарды магистраль эволюции? Видимо, еще и еще раз проверять и сравнивать, описывать и измерять, думать и сомневаться. Стопа Малапы 2 сочетает очень примитивные и очень продвинутые черты (Zipfel et al., 2011). Голеностопный сустав имеет более-менее человеческую форму и функции; вероятно, имелись своды стопы; как у человека, осуществлялось прикрепление ахиллова сухожилия на пяточной кости; таранная кость по массе признаков, включая такие важные, как торзион головки, форма блока, размер, выступание и наклон латеральной стороны, форма нижней части шейки, больше похожа на человеческую, чем кости австралопитеков, и напоминает вариант хабилисов. Но массивная медиальная лодыжка и форма заднего края голеностопной суставной поверхности большой берцовой кости, форма и грацильность пяточной кости, вертикальная ориентация и уплощенность передней стороны головки таранной кости, большой относительный размер этой головки, а также размеры, форма и наклон задней части таранной кости выглядят шимпанзеподобно. Многомерный анализ размеров и пропорций большой берцовой кости однозначно помещает Малапу 2 в область изменчивости людей, таранной кости – между людьми и шимпанзе или в стороне от них, а пяточной кости – в область шимпанзе. Предполагается, что это может быть следствием сохранения некоторой степени древесности гоминид из Малапы. Рельеф боковой стороны пяточной кости вообще крайне изменчив у людей и, вероятно, у обезьян, но у Малапы 2 он все же больше напоминает вариант шимпанзе. Удивительно, но гораздо более древние афарские австралопитеки оказываются по строению этого рельефа неотличимы от человека и, таким образом, более продвинутыми, чем Малапа 2. Это может быть использовано как аргумент в пользу специализированности гоминид из Малапы и исключения их из числа наших предков. Таким образом, детальное описание новых находок, как оно часто случается, увеличило число возможных интерпретаций филогении гоминид. С одной стороны, гоминиды из Малапы по ряду признаков прогрессивнее более поздних хабилисов; с другой стороны, в их строении масса типично австралопитековых и даже обезьяньих черт; несколько признаков могут считаться более примитивными, чем у австралопитеков, либо специализированными. Конечно, можно списать их на индивидуальную изменчивость; в этом случае малапские гоминиды должны расцениваться как древнейшие известные представители Homo. Однако можно считать особо примитивные и специализированные черты доказательством особого статуса гоминид из Малапы: по ряду черт они вырвались вперед в эволюционной гонке, но по другим резко отстали и в итоге оказались в эволюционном тупике. Кажется, последний вариант не совсем хорош, потому что репродуктивная изоляция среди приматов никогда не была слишком жесткой. Вряд ли изоляция между южно– и восточноафриканскими популяциями прогрессивных грацильных австралопитеков была особо сильной. Если не было изоляции страусов, носорогов, слонов, львов, леопардов, павианов и множества прочих видов, с какой стати должна была быть изоляция гоминид, активно осваивавших открытые пространства? Таким образом, гоминиды из Малапы, по-видимому, действительно олицетворяют собой еще одно “достающее звено” эволюции – звено между австралопитеками и людьми. Своеобразным дополнением ко всему вышесказанному явилось исследование диеты двух взрослых индивидов Australopithecus sediba (Henry et al., 2012). Микроструктура эмали голосует за твердые продукты в рационе, изотопный анализ – за растения лесов, а фитолиты – за разнообразие на столе. Из прочих ископаемых гоминид седибы по типу питания больше всего похожи на Ardipithecus ramidus. Самое интересное, в некоторые сезоны седибы, похоже, глодали кору и древесину; такого не замечено ни за одним человекообразным приматом. Нелегко, похоже, жилось в Южной Африке два миллиона лет назад!Промежуточность малапцев между всеми возможными австралопитеками и эогомининами создает немалую проблему. Интерпретаций может быть множество. Авторы первоописания вида склонны считать, что A. sediba является потомком A. africanus и предком Homo habilis (Berger et al., 2010). Если воспринимать древнейших восточноафриканских Homo rudolfensis как специализированную тупиковую ветвь, родственную Kenyanthropus или Paranthropus, то южноафриканские A. sediba могли быть источником Homo habilis, расселившихся в более позднее время к северу. Вместе с тем седибы примерно с теми же основаниями могут быть потомками A. afarensis, мигрировавшими на юг. В обоих случаях A. sediba может быть и тупиковой ветвью, и предком самостоятельной ветви южноафриканских эогоминин. По времени малапцы попадают примерно в момент конца вида H. rudolfensis и начала H. habilis, но похожи на последних. Не исключено, что A. sediba – это своеобразные “параллельные хабилисы” Южной Африки; учитывая слабую репродуктивную изоляцию приматов и отсутствие принципиальных географических барьеров между восточной и южной частями континента, можно предположить возможность обособления гоминид на уровне скорее подвидов с сохранением возможности их смешения в будущем.
Вероятно, именно эти “парахабилисы” представлены более поздними находками, описанными суммарно как Telanthropus capensis или Homo gautengensis. Они обнаружены в основном в отложениях пятого уровня Стеркфонтейна и имеют датировки около 1,5–2 млн лет назад. Замечательно, что в этой же брекчии появляются и оббитые гальки. К сожалению, большинство “ранних Homo” Южной Африки представлено изолированными зубами, но есть и более представительные образцы. Наилучшую сохранность имеет череп Stw 53. Он определялся как позднейший Australopithecus africanus, Homo habilis, неизвестный вид и, наконец, послужил голотипом вида Homo gautengensis (Curnoe, 2010). С одной стороны, череп невелик и по общей форме схож с Australopithecus africanus, с другой – челюсти еще меньше и грацильнее. Череп в целом и затылок в частности округлы, с очень слабым рельефом, однако височные линии сильно сходятся, почти сливаются между собой. В строении височной кости сочетаются черты Australopithecus africanus и Homo habilis, но с преобладанием последних. Центральная часть лица выступает вперед, а скулы раздаются слабо, что сближает Stw 53 с загадочными восточноафриканскими KNM-ER 1805 и KNM-ER 1813. Типична для эогоминин уплощенность передней стороны альвеолярной дуги, но небо с альвеолярной дугой сильно вытянуты в длину. Вместе с тем имеются “передние лицевые валики”, характерные для южноафриканских австралопитеков и парантропов. Объем мозга Stw 53 достоверно неизвестен, поскольку черепная коробка разрушена; реконструкции дают возможный размах от 450 до 680 см³. Зубы чрезвычайно большие, крупнее даже, чем у Homo rudolfensis, достигающие нижних пределов изменчивости южноафриканских парантропов. Таким образом, Stw 53 может быть расценен либо как предок или ранняя форма Paranthropus robustus (чему противоречит слабое развитие скуловых дуг), либо как самка Homo rudolfensis.
Показательно, что на основании правого скулового отростка верхней челюсти Stw 53 имеются следы зарубок от каменных орудий: кто-то отрезал нижнюю челюсть от черепа (Pickering et al., 2000). Таким образом, один из древнейших представителей Homo оказывается и древнейшей жертвой каннибализма: темные стороны человеческой натуры появились раньше самого человека.
Ряд ценных находок сделан в Сварткрансе. В брекчии, отличной от брекчии с парантропами, были обнаружены останки, первоначально описанные как Telanthropus capensis. Их датировка – от 1,63 млн лет назад и позже (Curnoe et al., 2001), вероятно до 1,2 млн лет назад или еще меньше. В Сварткрансе обнаружены костяные орудия, использовавшиеся, судя по всему, для вылавливания термитов (Backwell et d'Errico, 2001); правда, остается вопрос – кто этим занимался?
Из так называемых телантропов наибольшую известность получили нижние челюсти SK 15 (Телантроп I) и SK 45 (Телантроп II), а также череп SK 80/846/847 (Телантроп III). На самом деле они не синхронны: SK 15 моложе двух прочих.
Наибольший интерес представляет, конечно, череп. Сохранился он плохо и собран из массы обломков. Также по размерам подходит к черепу нижняя челюсть SK 74a, но по морфологии она соответствует некрупному парантропу. Поэтому неудивительно, что SK 80/846/847 определяли и как грацильного австралопитека, и как самку мелкого массивного австралопитека, как Telanthropus capensis, Homo habilis, женщину Homo leakeyi и, конечно, Homo erectus. В пользу каждой версии находились свои аргументы. Наконец, вместе с прочими южноафриканскими эогомининами череп послужил основой описания вида Homo gautengensis. Черты действительно своеобразны: лицо массивное и сильно прогнатное, но не очень большое; средняя часть лица выступает вперед в поперечной плоскости, но плоская в вертикальной; скулы высокие и массивные, но не раздаются в стороны; небо и альвеолярная дуга широкие относительно лица и уплощены спереди, но к тому же резко вытянуты в длину, так что небо получается относительно суженным; надбровный рельеф резко выступает вперед, но надбровные валики тонкие при взгляде спереди; лоб очень узкий и плоский, потому что височные линии резко сходятся между собой, хотя, судя по всему, не сливались в сагиттальный гребень. Детали височной кости скорее эогомининные, чем австралопитековые, в частности, имеется шиловидный отросток, да и сосцевидный развит достаточно сильно. Объем мозга предположительно составлял 450 см³, то есть был очень мал, примерно как у Australopithecus; впрочем, возможны и иные реконструкции, поскольку мозговой отдел крайне разрушен. Зубы SK 80/846/847 чрезвычайно крупные, первый верхний премоляр по мезиодистальному диаметру заметно превосходит и парантропов, и всех эогоминин.
Интересные данные получены палеодиетологами: соотношение Sr/Ca у SK 80/846/847 находится вне пределов изменчивости Australopithecus robustus, тогда как соотношение 87Sr/86Sr идентично этому виду; следовательно, различия в соотношении Sr/Ca отражают различия в питании (Sillen et al., 1995).
Нижние челюсти телантропов SK 15 и SK 45 в целом схожи. Обе особенны очень малой высотой тела в задней части. Нижние моляры велики, но все же меньше, чем обычно у H. habilis.
В Сварткрансе найдены и другие кости, относящиеся к тому же виду. В частности, это фрагменты черепа детеныша SK 27, нижние концы маленькой левой плечевой кости SKX 10 924 и большой правой SKX 34 805, верхние части очень современно выглядящих лучевых костей SK 18b и SKX 2045, маленькая IV пястная кость SK 85, проксимальная фаланга большого пальца кисти SKX 27 431, проксимальная фаланга кисти SKX 22 741, фрагмент довольно крупной и прогрессивной правой бедренной кости SK 1896, а также набор изолированных зубов.
Существенно, что по ряду признаков Homo gautengensis выходят за рамки изменчивости H. habilis и H. ergaster, причем отличаются от обоих больше, чем они друг от друга (Curnoe, 2010). В частности, верхние челюсти телантропов сильно вытянуты в длину, нижние челюсти, как уже говорилось, имеют очень низкое в задней части тело, премоляры и моляры отличаются сильно суженной формой. Судя по всему, телантропы отличались сильным схождением височных линий, хотя и в Восточной Африке можно найти сопоставимые примеры.
От прочих эогоминин Южной Африки сохранилось намного меньше. В частности, это фрагменты двух скелетов детей из Дримолен-Кейв с датировкой около 2 млн лет назад, определенные как Homo habilis, но также иногда включаемые в вид Homo gautengensis. Молочные и постоянные нижние зубы KB 5223 из Кромдраая также предполагались останками “раннего Homo” (Braga et Thackeray, 2003), но с большей вероятностью принадлежали Paranthropus robustus (De Ruiter, 2007), в пользу чего свидетельствует редукция передних зубов, мегадонтия моляров и их морфология. Столь же большие сомнения существуют и относительно обломка моляра GDA 1 из Гондолин – он относился как к гипермассивным парантропам, возможно даже родственным бойсовским восточноафриканским (Menter et al., 1999), так и к Homo (Curnoe, 2010).
Южноафриканские гоминиды отличаются от восточноафриканских. Но являются ли эти отличия хронологическими, видовыми или аналогичны расовым? Была ли Южная Африка тупиком, в котором гоминиды специализировались и вымирали, или горнилом эволюции, выдающим на север прогрессивные формы? Возможно, ответы появятся с обнаружением и исследованием большего количества сохранных южноафриканских гоминид с датировками около 3 млн лет и восточноафриканских с древностью от 3 до 2 млн.
Странные Homo Южной Африки: naledi выходит на люди.
Иногда, когда солнышко скроется за тучкой и изжога одолеет, лезут в голову грустные мысли, что миновали, дескать, времена Индиан Джонсов, когда можно было зайти в пещеру и узреть целый скелет неведомого существа, картинно раскинувшийся на полу.
Ан нет, не прошли!
Разве что теперь для этого надо быть тощим.
13 сентября 2013 года два спортсмена-спелеолога – Стивен Такер и Рик Хантер – залезли в пещеру Райзинг Стар в Южной Африке. Она уже была известна узким “шкуродером” “путь Супермена”, по которому могут проползти лишь исключительно субтильные личности. Но Стивену и Рику повезло: в конце изведанного ранее туннеля они обнаружили продолжение, ведущее в манящие недра земли. И они не зря последовали диггерскому зову – в тупике (который теперь зовется Диналеди) их ждала сенсация. На дне небольшой камеры эффектно лежали чьи-то кости. Стивен и Рик оказались не просто спелеологами, а грамотными и образованными людьми. Они сфотографировали неожиданную находку и принесли фотографии Ли Бергеру, известному во всем мире южноафриканскому палеоантропологу. Несколько лет назад он прославился, открыв в пещере Малапа скелеты Australopithecus sediba. Очевидно, звезда удачи продолжает светить над его головой.
Ли Бергер организовал масштабную экспедицию в Райзинг Стар. Тут-то и обнаружилось, что иногда все же полезно есть мало каши: очутиться на месте сенсации дано не каждому. Только самые мелкие исследователи способны протиснуться в каменные тиски и достичь вожделенных костей.
Но это все присказка. Главное, конечно, не история открытия, а сами окаменелости. И тут сенсация окончательно стала сенсацией (Berger et al., 2015; Dirks et al., 2015).
Во-первых, находок оказалось не просто много, а невероятно много: в камере метр на девять обнаружилось более полутора тысяч фрагментов! По итогу тут нашелся почти целый скелет и останки еще четырнадцати особей – взрослых мужчин, женщин, подростков и детей. Часть костей покоилась в собранном положении. Например, на поверхности красовалась совершенно целая кисть, прямо как в малобюджетных фильмах ужасов. Такого еще не бывало. Во всей Африке за век исследований найдено сопоставимое число окаменелостей. Более того, раскопки пока затронули лишь небольшой участок пола. Сколько еще останков хранит пещера? Трудно себе представить…
Во-вторых, кости лежали просто на полу. Они были лишь слегка припорошены каменной шугой, которая тысячи лет оседала на них со стен и потолка. Всего насыпалось пятнадцать сантиметров осадка. Судя по всему, кости не были никем потревожены, разве что некими неведомыми заблудшими спелеологами, которые были не столь сознательны и никому не сообщили о находке, а только пошебуршили окаменелости. Геологические изыскания привели исследователей к мысли, что пещера всегда была темным закутком, в нее всегда вел лишь тот же “шкуродер” – тесный туннель, стены которого к тому же местами покрыты острыми выступами. В пещере нет никаких следов человеческой деятельности и ни одной кости крупных животных. Найдены лишь шесть птичьих костей и несколько грызунячьих резцов. Нет и отпечатков зубов хищников на останках, нет и следов орудий. Нет и следов переноса водой. Как же так? Ничего тут нет, кроме огромной кучи человеческих костей, попавших в пещеру в собранном виде. Как? Откуда? Осторожные исследователи полагают, что раньше в камеру вел какой-то другой ход, через который люди (а также птицы и мыши) проникали сюда. Но как? Провалились случайно, как в Малапе? И так пятнадцать раз? И при этом ни один зверь крупнее мыши не повторил их печальной судьбы? К тому же состояние осадков говорит за то, что накопление костей происходило некоторое время, оно не было одномоментным. Так что вряд ли сразу целая группа древних людей попала в западню.
Но геологи утверждают, что альтернативного пути вообще нет и не было.
И тут открывается великое поле для сенсационных предположений. Как и зачем люди заползали сюда? Конечно, они были мелкими, в этом смысле им было проще, чем нынешним спелеологам и антропологам, но не все же определяется размерами. Они ползли на ощупь? Или – возможно ли такое?! – первобытные диггеры освещали себе путь факелами? Протискивались ли они в смертельный тупик, чтобы умереть тут спокойно? Или – а такое могло ли доселе прийти кому-то в голову?! – затаскивали трупы почивших соплеменников? Чтобы оценить невероятность сих предположений – не просто смелых, а почти на грани фантастики, – стоит ознакомиться с самими посетителями пещеры, обретшими тут вечный покой.
На этом месте во весь рост встает проблема, прямо вытекающая из вышеуказанного отсутствия в Диналеди чего-либо, окромя человеческих костей: нет датировки. Обычно геологический возраст определяется, исходя из стратиграфии (последовательности осадков), состава фауны и флоры, радиометрическими способами – по вулканическим туфам, обожженным костям или хотя бы песку. А тут нет ничего из этого. Даже песка!
Остается “в-третьих”: морфология. Великое изобилие костей для любого антрополога – солнечный праздник с каруселями и мороженым.
Морфология не подвела. В принципе, в Диналеди могли обнаружиться останки хорошо известных австралопитеков или эректусов. Это было бы тоже здорово, но не так пафосно. А тут все оказалось как надо – сенсационнее некуда. По итогу исследования группа антропологов описала новый вид древних людей – Homo naledi.
Чем же он уникален?
Диналедцы имели маленький рост – около полутора метров. Это не выделяет их из массы австралопитеков и “ранних Homo”. Голова была тоже очень небольшой; мозгов было не то чтобы мало, но и не много – 465 см³ для двух маленьких черепов и 560 см³ для двух больших. Для австралопитеков бóльшая цифра – индивидуальный рекорд, для хабилисов меньшая – тоже, только теперь в минимальную сторону. По итогу диналедцы занимают строго промежуточное положение. Это даже круче, чем в случае с седибой, чей объем – 420 см³, то есть скучно-австралопитековый.

Рис. 17. Череп Homo naledi.
Мозг Homo naledi выглядит весьма примитивно. Лобные доли низкие и короткие, хотя область “зоны Брока” – моторного речевого центра – вроде бы достаточно выпуклая. Особенно дремуче устроена височная доля: она фактически австралопитековая и особо не отличается от обезьяньего варианта. Лобная доля сходится с височной под тупым углом, как у шимпанзе.
Череп при этом не сказать чтобы был чересчур примитивным. Мозговая коробка имеет наибольшую ширину в нижней части, а боковые стенки черепа при взгляде сзади несколько сходятся кверху, но не так уж резко. Относительная высота черепа вполне прилична по меркам “ранних Homo”. Особенно интересно мощное развитие надбровных валиков и, соответственно, сильное заглазничное сужение. Такое строение больше подходит для классических эректусов, а не хабилисов. Впрочем, на женском черепе DH3 надбровные валики сравнительно тонкие. Лоб напрочь скошен, особенно на крупных черепах DH1 и DH2 – самцам и положено иметь брутальный вид. При этом на лобной кости прослеживаются лобные бугры: у обезьян и австралопитеков их не найти, а вот для Homo они вполне типичны. Височные линии выглядят даже прогрессивнее, чем у H. rudolfensis и H. habilis: они довольно слабые и следуют скорее по боковой, а не верхней стороне лобной кости. В задней части они не смыкаются с рельефом височной кости; зато имеется угловой торус – специфический элемент рельефа задней части теменной кости, типичный для эректусов и гейдельбергенсисов, но нехарактерный для “ранних Homo”.
Затылок вполне австралопитековой конфигурации – укороченный и почти вертикальный, но с мощным наружным затылочным бугром, больше подходящим для эректусов.
На височной кости слуховые отверстия и сосцевидные отростки маленькие, примитивные. Впрочем, подавляющая часть тонкостей строения височной кости не отличает новый вид от ранее известных “ранних Homo”.
О форме глазниц и носа остается больше догадываться. Возможно, новые материалы “откроют личико”, но пока оно остается скромно завешенным тафономической вуалью. Впрочем, известно, что у наледи не было “передних лицевых валиков” – утолщений по бокам носового отверстия, типичных для южноафриканских австралопитеков.
Челюсти, очевидно, сильно выступали вперед, особенно резко выражен альвеолярный прогнатизм на верхней челюсти. Передняя сторона нижней челюсти при этом не скошена, а почти вертикальна. Небо было мелким, чем Homo naledi больше похож на австралопитеков и H. habilis, нежели на более продвинутых людей, зато оно же было широким, – а это уже продвинутая черта. Альвеолярная дуга нижней челюсти самой что ни на есть умеренной формы: возможно, и не сапиентной, но точно и не австралопитековой. Удивительно прогрессивно выглядит высокое расположение подбородочного отверстия: таковое типично едва ли не только для современного человека.
Зубы Homo naledi – одна из самых продвинутых его частей. Особенно удивительны маленькие размеры моляров. По ним диналедцы сопоставимы разве что с современным человеком. Они уступают не только всем австралопитекам и “ранним Homo”, но вообще всем гоминидам, включая седиб и “хоббитов”. Таких мелкозубых человечков с таким строением черепа никто найти не ожидал.
Столь же противоречиво и строение посткраниального скелета.
Позвоночник в большей степени напоминает вариант плейстоценовых Homo. Особенное внимание обращает на себя большой диаметр позвоночного канала. Грудная клетка широко расходится книзу – эта черта типична для австралопитеков. Столь же примитивны и лопатки. На плечевых костях почти отсутствует скрученность. Они очень грацильны, со слабо развитым мускульным рельефом, а локтевая с лучевой весьма прямы: вряд ли диналедцы лихо скакали по деревьям.
Кисть Homo naledi, с одной стороны, сохраняет удлиненность и примитивную изогнутость фаланг (даже бóльшую, чем у австралопитеков), с другой – имеет прогрессивное строение запястья и продвинутые пропорции пальцев. Например, большой палец действительно большой. Концевые фаланги расширены – это признак трудовой кисти. Одновременно сустав кости-трапеции и первой пястной маленький, а на третьей пястной нет шиловидного отростка – это примитивные, отнюдь не трудовые черты. Есть и странности, скажем, форма первой пястной кости – с узким основанием и широкой головкой.
Тазовые кости сохранились неидеально, но ясно, что крылья подвздошной кости сильно расходились в стороны, как у австралопитеков. Вместе с тем расстояние от седалищного бугра до вертлужной впадины уменьшено, как у A. sediba и Homo. Суммарное сочетание выглядит необычным.
Вдоль шейки бедренной кости тянутся какие-то странные гребни и бороздка – такого доселе не встречали ни у каких гоминид. Что это – локальная популяционная вариация или видовая специфика? Все образцовые признаки прямохождения: форма, длина и наклон шейки, выраженные ягодичная бугристость и шероховатая линия – развиты по полной программе.
На бугристости большой берцовой кости (Читатель может нащупать ее у себя ниже коленной чашечки) имеется отдельный бугорок для сухожилия полусухожильной мышцы. Мышца эта сводит колени. Диналедцы часто держали пенальти?
Стопа Homo naledi – едва ли не самая человечная его часть: на ней отлично развиты продольный и поперечный своды, нет никакого намека на хватательные способности. При этом пяточный бугор выглядит уменьшенным, не вполне стандартны и некоторые частные пропорции вроде суженности основания первой плюсневой.
В целом мы видим беспрецедентный набор странностей. Успокаивает хотя бы то, что разные индивиды минимально отличаются друг от друга, так что мы можем быть уверены, что все они принадлежат к одному виду, а их особенности действительно имеют видовой или популяционный характер, но не индивидуальный.
Как же в сумме объяснить всю эту мозаику?
В отсутствие датировки может быть несколько вариантов.
Во-первых, Homo naledi может быть действительно предком всех прочих людей. Комбинация примитивных и продвинутых черт запросто объясняется промежуточностью его эволюционного положения, а датировка может располагаться в интервале от 3 до 2 млн лет назад. Однако некоторые признаки наледи слишком прогрессивны. Скажем, трудно представить, чтобы крупные зубы австралопитеков превратились в столь маленькие Homo naledi, а после – опять в большие H. habilis и H. erectus (не говоря уж о мегадонтных H. rudolfensis и H. gautengensis), после чего опять стали уменьшаться. Не слишком ли много вывертов? В этом смысле линия австралопитеки – хабилисы – эректусы выглядит куда более последовательной, тогда как наледи и рудольфенсисы оказываются специализированными боковыми ответвлениями от генеральной линии.
Тут мы переходим к “во– вторых”: Homo naledi может быть экзотической тупиковой ветвью эволюции, наряду с седибой, гари и парантропами. Одних уносило в увеличение зубов, других – в уменьшение. В этом случае Южная Африка представляется как место, где эволюция шла своим чередом, но этим людям не повезло: по совокупности признаков они проиграли гонку своим восточноафриканским родственникам.
Логично и “в-третьих”: можно пофантазировать, что Homo naledi в действительности жили довольно поздно, одновременно с гораздо более продвинутыми гоминидами. Тогда они могли представлять реликтовый пережиток ранней стадии эволюции. В этом случае можно объяснить и мозаичное строение, и предполагаемое знакомство с огнем, и даже существование погребального обряда, хотя бы и крайне примитивного: дескать, подсмотрели у продвинутых кузенов, вот и собезьянничали, насколько позволяли австралопитековые мозги.
А может, правы скептики и люди из Диналеди – это просто те же самые хабилисы, только мы наконец-то видим их собранный скелет? Ведь до сих пор такой радости мы были лишены. Даже принадлежность кисти и стопы OH 7 и OH 8 – голотипов вида Homo habilis – к виду Homo habilis, как ни парадоксально, остается недоказанной. А вдруг OH 8 – это стопа бойсовского парантропа? Для подтверждения или опровержения нужны полные скелеты хабилиса и парантропа, а у нас нет ни того ни другого. А в Диналеди мы можем иметь пусть своеобразно-мелкозубого и мелкоголового, но все же просто хабилиса. Или это вариант того же седибы? Ведь он тоже сочетает признаки австралопитеков и хабилисов, пусть и в других комбинациях. Кстати, седиба также знаменит именно своей мозаичностью, он тоже весьма малоголов и мелкозуб, а по разным признакам таза, рук и ног может быть равно отнесен к австралопитекам или людям.
Все же комплекс черт Homo naledi выглядит достаточно уникальным, чтобы признать его самостоятельным видом.
Еще не все кости из Диналеди подняты на поверхность. Еще не все их признаки описаны и осмыслены. Еще многое будет о них сказано. Одно точно: наша генеалогия в очередной раз оказалась интереснее и богаче, а при рассказе о роде “Люди” отныне нельзя не вспоминать о “Человеке наледи”.
Руки, ноги… Главное – наледи! Не прошло и месяца с торжественного вступления Homo naledi в статус официального древнейшего человека, как вышли две большие статьи с подробным описанием их рук и ног. Руки и ноги – очень важные части человека. Строение стопы очевидным образом отражает способности к разным типам передвижения. Строение кисти – к лазанию по деревьям или трудовой деятельности. Неопределенность датировки наледи, отсутствие орудий и загадочность попадания костей в пещеру позволяют богато фантазировать об этих существах. Но на то и наука, чтобы не фантазировать, а устанавливать твердые факты. Первая статья посвящена строению кисти Homo naledi (Kivell et al., 2015). Кисть сохранилась идеально – имеются все косточки, исключая лишь гороховидную, чего еще не бывало для находок мало-мальски приличной древности. Более того – в отложениях она лежала в полностью собранном виде, что избавило исследователей от тягостных раздумий о количестве индивидов. От других индивидов осталось меньше, но тоже не так уж мало – всяко больше, чем от всех хабилисов, известных доселе. Кисть отличается крупным и толстым большим пальцем и широким трудовым запястьем, что позволяет утверждать, что наледцы пользовались руками для изготовления орудий. Одновременно пальцы с указательного по мизинец длинные и изогнуты сильнее, чем у большинства австралопитеков, что явно указывает на отличные способности к древолазанию. Кроме того, кисть наледца очень маленькая: миниатюрнее ее только малапец MH2 и самые мелкие современные люди. Пропорции уникальны: большой палец относительно третьего просто огромный, по этому параметру с наледцем сближаются опять же только особо одаренные современные люди, Кафзех IX (который тоже почти сапиенс), а превосходит лишь все тот же малапец MH2. Кости запястья почти не отличаются от современных. Существенно, что они же заметно разнятся от австралопитековых, “хоббичьих” и даже неандертальских. Фактически если бы в пещере нашли только запястье, то его без долгих сомнений определили бы как человеческое. Крайне необычна форма первой пястной кости: ее основание сужено, а тело и головка расширены. На теле к тому же имеются мощные гребни для мускулатуры. Что такое делали наледцы своими мускулистыми большими пальцами? Рыли вход в Райзинг Стар? Гиппарионов на скаку останавливали? Писали слишком много эсэмэсок по сотовому? Такое строение совершенно не похоже ни на каких человекообразных обезьян, ни на людей. Причем костей в Райзинг Стар найдено немало – аж семь штук, и все они одинаковы. То есть это точно видовой признак, а не индивидуальная особенность. Видимо, связанный признак – утолщенная пятая пястная кость. Можно говорить о латерализации кисти Homo naledi – усилении ее по краям, что имеет смысл, если кисть держит что-то очень тяжелое. Однако на основании третьей пястной кости нет шиловидного отростка. Этот отросток отличает современных людей и горилл от шимпанзе и австралопитеков (включая седибу). Он входит между головчатой и трапециевидной костями запястья и соединяется с похожим выступом на основании второй пястной. За счет этого кисть становится прочнее и может выдерживать большие нагрузки. Для гориллы это актуально, потому что она сама очень тяжелая и надо опираться на кулаки. Человек постоянно что-то сжимает в руках, его средний палец не должен бесконтрольно болтаться в стороны. Древесные же обезьяны и австралопитеки-бездельники могут свободно шевелить пальчиками; на деревьях это даже весьма актуально – при быстром перехвате веток кисть должна легко перекашиваться набок и никакие шиловидные отростки не должны этому мешать. А вот фаланги Homo naledi оказались не то крайне примитивными, не то крайне специализированными. Изгиб первых фаланг такой же, как у австралопитеков, хабилиса OH 7, да, в общем-то, и шимпанзе, а вот средних – вообще как у гиббонов, сильнее, чем даже в среднем у орангутанов, не говоря уж о шимпанзе, гориллах и австралопитеках с людьми. Тут, правда, стоит оговориться, что изгиб посчитать не так легко и сделать это можно по-разному. Но как ни измеряй, странность Homo naledi все равно очевидна. Как объяснить сии сочетания? Насколько они парадоксальны или же логичны? Древесные черты сочетаются у Homo naledi с трудовыми и пересыпаны специализированными. А может, если задуматься, все так и должно быть у первых людей, еще не до конца слезших с деревьев, но уже начавших делать орудия труда? Спасаться от хищников на ветвях все же здорово – для этого пальцы изогнуты, а третья пястная подвижна. Но необходимость крепко держать орудия труда вызывает усиление запястья, первой и пятой пястных костей. Более того, для компенсации слабости третьего луча первый и пятый усилены даже больше, чем у современных людей. Не может не обратить на себя внимание сходство по ряду признаков кисти Homo naledi и Australopithecus sediba. По общим размерам и пропорциям они фактически идентичны. Но вот детали строения запястья у седиб выраженно австралопитековые, а у наледи – человеческие. Учитывая датировку седибы в 2 млн лет и наличие шиловидного отростка на пястной кости KNM-WT 51260 из Каитио с датировкой 1,42 млн лет назад, можно предположить датировку Homo naledi между 2 и 1,5 млн лет назад. Несколько иная картинка вырисовывается при рассмотрении стопы наледцев (Harcourt-Smith et al., 2015). Она сохранилась чуть менее идеально, нежели кисть, но тоже отлично в сравнении с другими ископаемыми предшественниками человека. Всего откопано 107 костей, в том числе одна почти целая стопа. Почти по всем параметрам ножки Homo naledi неотличимы от современных. Общие пропорции, неоттопыренность большого пальца, продольный и поперечный своды – все как у людей. Впрочем, и тут внимательный глаз морфолога найдет специфику: таранная кость при взгляде сбоку все же скорее австралопитеко– и шимпанзеподобная, фаланги пальцев кривоваты, опора таранной кости на пяточной кости ориентирована совершенно не так, как у людей, хотя и не как у шимпанзе, зато идентично австралопитекам и гориллам. В итоге ходить наледцы должны были чуточку не как мы, хотя и совсем отлично от обезьян. Все же от древесного прошлого их отделяло меньше времени, да и сами они при случае запросто могли вскарабкаться по сучьям подальше от зубастых врагов. Руки и ноги составляют два из трех важнейших человеческих комплексов “гоминидной триады” – черт, отличающих человека от обезьяны. Третий комплекс – мозг. Очевидно, вкусное исследователи приберегли на десерт. Судя по первой публикации, мозг наледи очень примитивен. Очевидно, тут стоит ждать еще много любопытных поворотов. Что творилось в Южной Африке два миллиона лет назад? Новые находки в Стеркфонтейне. Происхождение человеческого рода Homo никогда не перестанет волновать умы антропологов. За последние сто лет стало окончательно ясно, что родиной была Африка. Но Африка велика. А стран в ней много. Много и антропологов с самыми разными идеями. С описания первых австралопитеков в Южной Африке появилось мнение, что именно этот регион был горнилом гоминизации – процесса очеловечивания. Открытия в Восточной Африке сместили внимание специалистов туда. Некоторые задумываются и о Центральной Африке, и Северной, и Западной. XXI век принес свои новости. Обнаружение Australopithecus sediba в Малапе с датировкой 2 млн лет и Homo naledi в Райзинг Стар снова нагрузило южноафриканскую чашу весов. Конечно, не могло обойтись без странностей и споров – и седибы, и наледи имеют необычайное сочетание признаков: маленькие мозги совмещаются с маленькими зубами, продвинутые пропорции пальцев – c их чрезвычайной изогнутостью, длиннющие руки – со вполне человеческими стопами. Такую кутерьму можно интерпретировать всяко. Часть антропологов, особенно южноафриканских, склонны считать, что седибы и наледи – прямые предки рода Homo, просто еще не избавившиеся от некоторой дремучести. Другие мнят их весьма специализированной ветвью, сформировавшейся в изоляции на краю Земли, в отрыве от центра прогресса. Как обычно, решение – в новых находках и новых исследованиях. И вот они – новые находки! Во всемирно известной пещере Стеркфонтейн найдены важные окаменелости (Stratford et al., 2016). До сих пор в Стеркфонтейне обнаруживались в основном кости Australopithecus africanus, немного было парантропов и “ранних Homo”. Две новые находки откопаны в Милнер-Холл – центральной части пещеры, в слое, имеющем предположительный возраст около 2,18 млн лет назад, то есть несколько более древний, чем в Малапе. Такая датировка – уже хорошая новость, ведь известно не так много гоминид в интервале от 3 до 2 млн лет. И самое важное – морфология. Зуб Stw 669 – правый верхний первый постоянный моляр – радует глаз своими маленькими размерами, в самых нижних пределах изменчивости Homo habilis и большими, чем у Homo naledi. То же выявляется при анализе площади основных бугорков, если их измерять по отдельности, а совокупность общих размеров и площади паракона и метакона делает Stw 669 форпостом прогресса среди всех “ранних Homo”. Проксимальная фаланга кисти Stw 668, напротив, чрезвычайно велика. Таких огромных фаланг нет среди “ранних Homo”, имевших вообще мелкие ручки. Длина Stw 668 превосходит длину фаланг современных людей и даже некоторых шимпанзе и горилл, толщина – больше, чем у большинства современных людей и шимпанзе, и приближается к горилльим значениям. Замечателен и изгиб: он практически равен шимпанзиному и бонобьему, больше средней горилл, выходит за границы изменчивости всех древних и современных людей, включая седиб и наледи. Даже грацильные австралопитеки имели не столь кривые пальцы. Лишь две фаланги Australopithecus afarensis из Хадара изогнутее. Как же это понимать? Конечно, первое, что приходит в голову, – аналогичное сочетание маленьких зубов и кривых пальцев у седиб и наледи. Более того, морфология строго соответствует хронологии: новые останки из Стеркфонтейна самые древние и самые примитивные, седибы из Малапы чуть моложе и, что логично, чуть продвинутее, а наледи из Райзинг Стар – самые мелкозубые и чуть менее кривопалые. И все это в сравнительно небольшой области Южной Африки. Более наглядную эволюционную линию надо еще поискать! Но! Конечно, есть проблемы. Ведь на фоне других гоминид эта стройная линия выглядит стоящей совсем особняком. Таких мелкозубых и кривопалых гоминид нет ни в Восточной Африке, ни – что совсем интересно – в других частях Южной. Ведь описанные несколько ранее южноафриканские Homo gautengensis имели огромные зубы и куда как более короткие и прямые фаланги. Что любопытно, один из черепов Homo gautengensis найден в том же самом Стеркфонтейне… Таким образом, пока картина рисуется таким образом: в области, прилегающей к нынешнему Йоханнесбургу, со времени как минимум 2,18 млн лет назад шел эндемичный процесс: гоминиды стахановскими темпами теряли размеры зубов, но сохраняли крайне архаичные пальцы. Что ставило их особняком – пока загадка. Может, ответ дадут более тщательные палеоэкологические реконструкции? В других областях параллельно возникали свои варианты людей. Думается, все же именно эти прочие варианты стали нами. Слишком же странные люди Южной Африки сохранились лишь в виде окаменелостей – антропологам на радость, любопытным на удивление и задумчивым в назидание.Выход из Африки: № 1.
Около 2 млн лет назад свершилось великое – люди вышли из своей колыбели и побрели по просторам Евразии.
Иногда при обсуждении этой темы звучит сакральная фраза: “Люди в своей эволюции достигли нового уровня развития, который позволил им покинуть пределы Африки и освоить новые просторы”. Однако представляется, что все было не совсем так и дело обошлось без великих достижений. Естественно, миграция за пределы Африки не была хотя бы минимально осмысленной. Не было пафосного момента, когда бы этакий первобытный Колумб эффектно встал на пороге Евразии, картинно приложил руку к глазам, орлиным взором обозрел открывшиеся бескрайние просторы, залитые золотыми лучами восходящего солнца, и широким жестом указал оробевшим и притихшим сородичам, сбившимся за его спиной тесной кучкой: “В путь, друзья! Откроем же Евразию! Нас ждут великие свершения! Весь мир у наших ног! Мы пройдем его и заселим бесчисленными потомками, мы устремимся за горы и океаны, мы покорим космос, мы будем бороздить…” Нет, такого момента, к сожалению, не было. Не исключено, что люди даже не заметили, что находятся уже на соседнем материке, и уж точно не оценили величия момента. Собственно, событие это было рядовое, и даже не факт, что оно заслуживает описания в отдельной главке, но традиция обязывает.
Из предыдущих глав Читатель уже знает, что многие и многие приматы за миллионы лет до этого благополучно вселялись и выселялись с Черного континента и прекрасно обходились без особо продвинутых уровней развития. Более того, фауна Аравии и Африканского Рога до крайности похожа (в недавние времена в Аравии многие виды животных были истреблены, так что нынешние различия во многом искусственны). Страусы, леопарды, львы, гепарды, павианы, слоны, ослы и прочие звери преодолевали грань между континентами. Человек был частью той же фауны и мигрировал вместе с ней. Леопарды без всякой культуры заселили всю Африку, Азию, Европу и даже переплыли как-то в Америку, заделавшись там ягуарами. Без огня, языка, мифологии и прочих человеческих наворотов. А львы поначалу гораздо успешнее заселили северные части Евразии, чем люди, хотя люди их потом там и извели.
Скорее уж надо удивляться, что выход гоминид из Африки не свершился намного раньше, непонятно, что мешало сделать это австралопитекам.
Африку теоретически можно покинуть тремя путями: через Гибралтар, по Суэцкому перешейку или переплыв Баб-эль-Мандебский пролив. Гибралтар преодолеть нелегко, это самый маловероятный маршрут. Египет, Суэцкий перешеек и Синай большую часть времени были жаркими негостеприимными пустынями, не вполне понятно, как бы там могли жить охотники-собиратели. Однако климат менялся, и в какие-то моменты территория могла быть вполне проходимой. А Баб-эль-Мандебский пролив в периоды понижения уровня моря становился сравнительно узким – в пару километров шириной – и условно мелким, хотя и не настолько, чтобы можно было перебрести его вброд. Но с пляжей Джибути видны горы Йемена, так что африканским жителям было очевидно, что на востоке есть новые земли. А самое главное – экологические условия по обе стороны пролива ничем особо не отличаются. Переправившимся странникам не надо было привыкать и хоть как-то приспосабливаться, они отряхнулись и стали жить прежней жизнью прибрежных собирателей.
Так или иначе, люди переправились в Евразию. Возникает вопрос: когда?
Расселение людей за пределами Африки, к сожалению, в основном известно лишь по археологическим памятникам, не содержащим останков людей. К еще большему сожалению, почти все древнейшие стоянки чем-то, да неидеальны. То стратиграфия спорная, то орудия не факт что орудия, то датировки неточны.
Древнейшим вероятным внеафриканским местопребыванием была, разумеется, Земля обетованная. В Израиле раскопана стоянка Йир'он, слои которой датированы аж 2,4 млн лет назад или даже бóльшим временем (Brunnacker et al., 1989; Ronen, 1991), хотя далеко не все исследователи согласны как с цифрой, так и с определением найденных камней как орудий. Гораздо лучше изучена палестинская многослойная стоянка Эрк-эль-Ахмар, древнейшие фазы заселения которой относятся ко временам около 1,8 млн лет назад (Verosub et Tchernov, 1991; Bar-Yosef, 1995).
С Ближнего Востока путь раздваивался: можно было идти на север или двигаться на восток, навстречу восходу. Первое направление многим может показаться нелогичным: “Как же так, зачем же они шли в холода и полярную ночь?!” – воскликнет иной недоумевающий читатель. Однако те люди ничего не знали о морозах и льдах. Каждая перекочевка – на несколько километров – не изменяла ничего в их окружении. Только спустя сотни и тысячи лет потомки оказывались действительно в новой климатической зоне, но для каждого конкретного поколения изменений вроде бы и не было. А уж около 2 млн лет назад – да и намного позже, вплоть до 400 тыс. лет, – тропические по происхождению люди были еще не настолько оторваны от природы, чтобы освоить зоны даже с умеренным климатом, максимум, куда они совались, – это субтропики.
Северный маршрут упирался в очередные водные преграды – Босфор и пролив, соединявший Черное море с Каспийским, лежавший на месте нынешней Кубани. На краю тогдашней Ойкумены люди оставили свои следы: орудия с датировками 1,6–1,2 млн лет назад найдены на стоянках Богатыри / Синяя Балка и Родники на Тамани (Shchelinsky et al., 2010).
Восточный путь отмечен галечными орудиями на пакистанских стоянках Риват и Пабби Хиллз, датированных временем около 1,9 млн лет назад (Dennell et Hailwood, 1988). Дальше на восток огромные цифры назывались для китайских местонахождений Жензидун (2,25 млн лет назад; Zhang et al., 2000), Лунгупо (1,9 млн лет назад), Сяочанлянь (1,67–1,87 млн лет назад), Сихудю (1,8 млн лет назад), Данау, или Шангнабанг, в Юаньмоу (1,7 млн лет назад) и других. Но во всех этих случаях либо есть сомнения в датировках, либо подозрительны артефакты. Более достоверны находки и даты в Маджуангоу в долине Нихевань: 1,66 млн лет назад для древнейших слоев с орудиями и 1,32 млн лет назад – для самых молодых (Zhu et al., 2004).
Но все эти стоянки мало привлекают антропологов, ведь там нет костей. Другое дело – Дманиси!..
Странные Homo Грузии: Homo georgicus.
Наконец, эогоминины известны и за пределами Африки. Конечно, речь идет о находках в Дманиси. Их датировка постоянно обсуждается, но по последним расчетам первое заселение совершилось около 1,78–1,85 млн лет назад (Ferring et al., 2011), тогда как кости людей могут иметь несколько более поздний возраст. Для человеческих останков наиболее достоверной обычно считается цифра 1,77 млн лет назад, но, поскольку они залегают в трещинах, иногда датируются заметно более поздними временами – до 1,07 млн лет назад (Calvo-Rathert et al., 2008; Pares et Goguitchaichvili, 2001). Состав фауны не противоречит обеим версиям. Кроме того, скелеты разных индивидов могут быть несинхронны: D2700/2735 залегает выше, чем D3444/3900 и D2600/4500. Впрочем, удивительная комплектность скелетов, а также компактное расположение трех из них в одном месте скорее отвечают версии о более-менее одновременном захоронении (конечно, непредумышленном). Найдены останки как минимум пяти индивидов. Замечательно, что в Дманиси мы имеем хороший набор полов и возрастов: череп D2700+D2735 принадлежал подростку, вероятно девушке, D2282+D211 – очень молодой, на грани взрослости, особи, возможно женщине, D2280 – молодому взрослому мужчине, D4500+D2600 – взрослому мужчине в полном расцвете сил, а D3444+D3900 – старику или, быть может, старушке.
Как это обычно бывает с гоминидами “загадочного миллиона”, признаки дманисцев мозаичны. По размерам черепа дманисцы попадают ровно в зазор между хабилисами и эргастерами, в наибольшей степени соответствуя KNM-ER 1470. У этого рудольфенсиса лишь чуть меньше мозговая коробка и чуть больше лицо (что соответствует и большей датировке), но он укладывается в пределы изменчивости дманисцев. Размеры зубов дманисцев тоже находятся в рамках вариаций рудольфенсисов, хотя меньше их средней и, тем более, таких рекордсменов, как UR 501 или, того пуще, парантропов.
Череп D4500 очень похож на прогнатную реконструкцию KNM-ER 1470 и, в ряде аспектов, на KNM-ER 1805, в сумме представляя что-то среднее между ними. Нижняя челюсть D2600 метрически и внешне весьма близка к KNM-ER 1482, KNM-ER 1801, KNM-ER 1802 и KNM-ER 60000, а также, хотя и несколько меньше, к UR 501. Невозможно пройти мимо необычайного внешнего сходства D2700+D2735, KNM-ER 1813 и KNM-ER 62000, которое подтверждается и исследованием многих деталей. Несмотря на то, что дманисцы часто диагностируются как эргастеры, по всем параметрам они примитивнее, чем, например, KNM-ER 3733. От классических же эректусов, к которым относили дманисцев поначалу, отличия уж слишком велики.

Рис. 18. Пять черепов Дманиси.
Особый интерес представляет сочетание самого массивного лица и самого маленького мозга – 546 см³ – у D4500+D2600. Это фактически максимум для афарских австралопитеков и близко к минимуму для эогоминин. Однако разница с самым “мозговитым” дманисцем D2280 (730 см³) составляет 184 см³, то есть аналогично индивидуальному разбросу у орангутанов, примерно вдвое меньше, чем у горилл, едва больше, чем у шимпанзе, на 100 с лишним кубических сантиметров меньше, чем среди мужчин-синантропов, и в два или два с половиной раза меньше, чем у современного человека (даже без учета рекордов). Таким образом, по такому важному показателю дманисцы вполне укладываются в пределы нормальной изменчивости самых разных человекообразных. То же касается их челюстей и прочих признаков.
Разница конкретных находок из Дманиси, конечно, не могла не породить гипотез о существовании тут нескольких видов гоминид, благодаря чему челюсть D2600 получила собственное наименование Homo georgicus. Однако эти же различия можно интерпретировать и иначе – как половозрастные и индивидуальные. Дманисцы очень здорово заполняют промежутки между такими резко различными находками, как KNM-ER 1470, KNM-ER 1805, KNM-ER 1813, OH 24, SK 80/846/847, KNM-WT 15000, KNM-ER 3733 и даже Сангиран 17. Крайняя точка зрения – сведение вообще всех гоминид “загадочного миллиона” и даже некоторых за его пределами в один полиморфный вид с сильнейшим половым диморфизмом и выраженной возрастной вариабельностью, причем эти аспекты изменчивости накладываются на плавную эволюцию во времени (Lordkipanidze et al., 2013). Дманисцы в такой системе являются своего рода эталоном и примером внутрипопуляционного масштаба.
Данные по половому диморфизму дманисцев позволяют по-новому взглянуть на эту проблему в отношении африканских гоминид. Например, спорный череп KNM-ER 42700 в принципе может быть рассмотрен как молодая самка архантропа (Spoor et al., 2008). Правда, половой диморфизм африканских Homo erectus тогда получается очень сильным, почти как у горилл, и, в общем-то, даже бóльшим, чем у дманисцев. Очевидно, все же не стоит забывать и о хронологических преобразованиях.
Грузинские гоминиды задали немало загадок. Сначала они считались эректусами, потом эргастерами, после был описан самостоятельный вид, и, наконец, те же авторы сошлись на том, что дманисское разнообразие позволяет объединить вообще всех “ранних Homo” вместе с архантропами воедино, а их различия полностью объяснимы половыми и возрастными особенностями. Думается, крайности излишни, но где лежит “золотая середина” – вопрос.
Споры о систематике не закончатся, пока на свете не останется меньше двух систематиков. Даже введение молекулярной систематики, казалось бы – супермегаобъективной и математически проверяемой, не избавило научный мир от споров, а разожгло их лишь с новой силой. Что уж говорить о систематике ископаемых гоминид, от которых остались окаменевшие кости. Главной проблемой любой из спорящих сторон является отсутствие универсального критерия выделения вида. Что, собственно, понимается под палеонтологическим видом? Единство морфологии? Способность к скрещиванию? Вечна проблема масштаба. И никто не победит в этом споре. В некоторых же случаях, как кажется, спор разгорается скорее из спортивного интереса, чем из необходимости. И случай с Дманиси, вероятно, именно таков.
На пятачке с небольшую квартиру найдены останки пяти гоминид. Попали они сюда едва позже 2 млн лет назад и являются древнейшими за пределами Африки. В самой Африке в это время достоверно жили лишь два вида гоминид – Paranthropus robustus и какой-то из “ранних Homo”. В зависимости от предпочтений конкретного антрополога можно называть его Homo rudolfensis, Homo habilis, Homo ergaster или даже Homo erectus, однако ж достоверное сосуществование двух хороших, надежных видов Homo в Африке не доказано никем ни для одного местонахождения. Про отнесение дманисцев к парантропам речь не идет. Остается два варианта: либо дманисцы принадлежат к синхронному африканскому виду, либо по пути успели дифференцироваться в свой особенный. Третий же вариант – что в Дманиси мы имеем представителей двух видов – выглядит довольно-таки фантастично. Просто из хронологических и экологических соображений. Нет, он не вовсе невероятен, но ежели даже в благословенной Африке во множестве местонахождений нет доказанных случаев сосуществования двух видов Homo, то появление их в однокомнатной квартире в уединенной Грузии, мягко говоря, странновато…
Вопрос о названии грузинских людей многим может казаться каким-то очень принципиальным, но так ли это? Объективно мы не можем проверить, могли ли дманисцы скрещиваться с африканскими современниками. Учитывая пластичность, типичную для приматов, наверняка могли, но доказать мы не можем ни “да”, ни “нет”. Остается морфологический критерий: насколько сильно дманисцы отличаются от африканцев? А тут все зависит от того, какие признаки мы возьмем, каким анализом обработаем и как результаты проинтерпретируем. То есть, в отсутствие надежной универсальной методики, можно переливать из пустого в порожнее сколько угодно. С этого места начинается спор о словах. Эти размеры совпадают – значит, один вид. Нет, в этом признаке видим расхождение – разные виды. Но кто сказал, что отличие именно по вот этому показателю не давало возможности дманисцам скрещиваться с африканцами? Да никто! А то ведь недолго по пяти черепам описать и шесть видов… А еще ведь есть кости скелетов – уже и десяток видов обеспечен! Здравствуй, типологизм XIX века! Кстати, абсолютно аналогичный спор разгорелся в последнее время по поводу малапских Australopithecus sediba: кое-кто предположил, что челюсти и скелеты относятся к разным видам, даже несмотря на то, что скелеты артикулированные!
Нельзя забывать, что систематика создана людьми и призвана помочь нам в упорядочивании информации о живых организмах, а не создавать сложности. Должно быть удобство, а великой истины в названиях древних организмов в общем-то нет. Систематика – это инструмент, а не цель.
Из всего вышеизложенного кто-то может сделать вывод, что все эти изыскания – сплошная демагогия, лишенная смысла. Но это, как ни странно, не так. Во-первых, такие споры активизируют разработку новых подходов и более детальное изучение окаменелостей. Во-вторых, проблема принципиально все же решаема. Надо только лучше и больше использовать материалы по современным людям и обезьянам. Ведь у нас есть универсальный масштаб внутривидовой, видовой, родовой и семейственной изменчивости человекообразных: два вида шимпанзе, гориллы, орангутаны, десяток гиббонов (все обезьяны – с подвидами), куча рас современных людей. Все карты на руках, надо только ими пользоваться. Карту рас западные антропологи разыграть неспособны в силу политкорректности, но обезьян-то пока никто исследовать не запрещает!
Важно, что находки в Дманиси позволяют с новой стороны взглянуть на становление рода Homo, дают новые уникальные данные, будят научную мысль, провоцируют дальнейшие исследования. Хорошо б еще без фанатизма…
Пятый череп из Дманиси: первые люди – на лицо ужасные, добрые внутри. Грузия – хорошая страна! Высокие горы, прозрачный воздух, гостеприимные люди. И уж особенно мила Грузия сердцу всякого антрополога. Плодородная земля горной страны не только родит виноград и чай, но и бережно хранит в себе древние кости. Что уж за счастливые причины тому виной, но сохранность останков в Дманиси просто поражает: даже хваленая Африка в подметки не годится этому местонахождению по части идеальности находок. Не уверен, знали ли авторы новой статьи и члены редакции Science о существовании портала www.antropogenez.ru, но по факту они сделали хороший подарок к его трехлетию и здорово подгадали к очередному заседанию “Клуба Antropogenez.ru”. Хочется верить, что они вняли страстному призыву нашего редактора, прозвучавшему за пару дней до издания статьи (краткое содержание: “Доколе?!”), и опубликовали-таки пятый череп! Об этом черепе давно ходили смутные слухи. В телевизионных ли новостях мелькнут интригующие кадры доставания чего-то серого из земли, в докладе ли баронессы де Люмлей на слайде появятся загадочные и будоражащие воображение цифры “пять черепов от четырех индивидов”, сорока ли протрещит в кустах… Слухами земля полнится, все знали о пятом черепе. Но никто не видел его. Череп был найден еще в 2005 г., а вот уж кончался 2013-й. Трудно сказать, чем была вызвана такая задержка в публикации: не то секретность (“учОные скрывают?!”), не то авторы открытия решили взять пример с исследователей Арди (тогда могли бы еще годиков пять подождать), не то коробка в хранении затерялась (и не на восемь лет теряли), не то бурная общественно-политическая жизнь Грузии внесла коррективы в ход научного прогресса. Много еще может быть причин. Нам сие неведомо, да оно и не важно, главное, факт остается фактом – открытие состоялось! Под торжественные звуки фанфар и барабанную дробь перед изумленными взглядами заинтригованной публики предстало…??? Да что же это?! Из мглы веков и глубины грузинской земли выглянула, не постесняюсь этого слова, страшная морда невиданной конструкции и несказанной первобытности (Lordkipanidze et al., 2013). Плоский лоб (есть ли он?), огромное надбровье (Брокен-Хилл и Бодо нахмурились пуще, но, что называется, нервно курят в сторонке), гигантские челюсти, торчащие вперед (парантропы угрюмо потупились), махонький мозг 546 см³ (горилла довольно скалит зубы и торжествующе бьет себя в мохнатую грудь). Приплюснутый свод, расширенный снизу, – в лучших традициях австралопитеков и самых дремучих питекантропов. Огромные скулы: рельефные, расставленные в стороны, продолжающиеся в огромные гребни на височной кости, – далеко ли до афарских австралопитеков? Позадиглазничное сужение – просто праздник какой-то! А уж если присоединить нижнюю челюсть – конечно, ту самую, самую огромную и страшную D2600, послужившую голотипом вида Homo georgicus, – то облик дманисца выходит поистине первобытным, какому может позавидовать даже Рон Перлман. Вообще, уже по экзотической форме и гигантским размерам этой челюсти было очевидно, что череп ее владельца должен быть по меньшей мере необычным, но гадать антропологи не любят, а потому мысли на этот счет в головах бродили, но на страницы не выплескивались. Да и дманисская девушка (второй череп D2282/D211) тоже не самая грацильная красавица: каких мужчин ждать в приложение к таким девушкам? И вот ожидания оправдались сверх меры. Как же интерпретировать такое чудо? Черепа из Дманиси благодаря удивительной сохранности и различиям пола и возраста позволяют оценить не только общее положение в эволюционной последовательности, но и разобраться с некоторыми любопытными деталями. Например, незадолго до публикации пятого черепа вышла статья, в которой различия нижних челюстей дманисцев хорошо были интерпретированы как производные возраста, стирания зубов и их смещения вдоль альвеолярной дуги. Можно ли повторить подобное объяснение и по отношению к черепам? Если сделать это, то выводы получаются неожиданными. Изменение морфологических признаков с возрастом у дманисцев происходило по модели, скорее типичной для современных шимпанзе, а не людей. У шимпанзе милый маленький малыш с круглой головенкой и маленьким милым личиком за десяток-другой лет превращается в огромное насупленное чудище с полкой над глазами, здоровенными челюстями, украшенными мощными клыками, у которого мозговой отдел как-то теряется за раздавшимся во все стороны лицом. Доселе считалось, что наша линия как раз тем и прогрессивна, что взрослые люди сохраняют многие детские черты, на этом в свое время была основана даже целая гипотеза неотенического происхождения человека. И вот дманисец правит нам эту благостную картину: оказывается, еще на стадии хабилисов – эргастеров возрастные изменения были скорее обезьяньими. Конечно, некоторые мысли на сей счет неоднократно выдвигались. Есть немало находок детенышей и взрослых австралопитеков разных видов, KNM-WT 15000 и KNM-ER 3733, Моджокерто и Сангиран. Разброс их детских и взрослых вариантов явно превышает современные значения. Но доныне подобные возрастные пары были сборными, то есть происходили из разных мест и имели не вполне одинаковые датировки. А в Дманиси мы имеем пять черепов, наиболее вероятно относящихся к одной синхронной популяции, да еще идеальной сохранности, да еще всех возрастов от подросткового до вполне себе старческого, да еще и разного пола для полноты картины. И взрослый мужчина в самом расцвете сил у дманисцев – это уж настоящий мужчина! Его отличия от подростков едва ли не больше тех, что мы видим у нынешних шимпанзе, и намного превышают сапиентный возрастной разброс. Любопытно, насколько онтогенетическое сходство с шимпанзе отражает поведенческую сторону? Крупные размеры лица – явный признак иерархичности и значительной разницы полов. Однако клыки у дманисцев весьма скромные, и в целом монструозный пятый череп D4500/D2600 по этому признаку совершенно не выделяется из общего гоминидного ряда. Так значит, в душе они были добрые и отзывчивые? Подтверждением этому служит четвертый череп D3444/D3900 – беззубого старичка, требовавшего заботы и пережеванной мягкосердечными сородичами кашки. Да и орудия, в изобилии обнаруженные в Дманиси, делать было непросто. Нужно было учиться и учить, а с нервозностью и непоседливостью шимпанзе такой уровень недостижим. Показательно, что на общем эволюционном фоне – от шимпанзе и австралопитеков до сапиенсов – дманисцы занимают весьма широкое поле. На графике многомерного анализа распределение конкретных черепов прелюбопытнейшее: пятый череп (взрослого мужчины-самца) располагается заметно ближе к загадочному черепу KNM-ER 1805 и южноафриканскому грацильному австралопитеку Sts 5, чем к эргастерам. Дманисская молодежь – черепа D2282 и D2700/D2735 – оказывается идентичной хабилисам (KNM-ER 1813 и, в меньшей степени, OH 24), рудольфенсисам (KNM-ER 1470), эргастерам (KNM-ER 3733 и, в меньшей степени, KNM-WT 15000) и питекантропам (Сангиран 17). Крепкий старик – четвертый череп D3444/D3900, – потерявший при жизни все зубы, а вместе с ними и альвеолярные края обеих челюстей, а потому несколько похожий на Бабу-ягу из мультика про пионера Ивашку, оказывается самым “сапиентным” и заметно ближе к неандертальцам и Брокен-Хиллу. Вот уж воистину – старость облагородила его черты! Такая картинка порождает множество замечательных идей. Во-первых, лишний раз становится ясно, что не стоит чересчур увлекаться конкретными признаками конкретных находок. Широкий взгляд на вещи дает более правдивый образ действительности. А всякие мелочи запросто могут быть преходящими – возрастными, например. Внутригрупповая же изменчивость у древних гоминид была не меньше нашей, а то и больше. Нельзя зацикливаться на тонкостях взаимного расположения точечек на графиках, хоть бы и многомерных анализов. То или иное соотношение этих точек может быть обусловлено сиюминутным состоянием отдельных индивидов, а не глобальным эволюционным процессом. Популяционный подход, давно победивший в расоведении, должен уже занять достойное место и в антропогенезе. Во-вторых, может, мы просто до сих пор мало видели по-настоящему взрослых мужчин эргастеров? Может, они просто редко доживали до самого эффектного возраста? Или были столь на лицо ужасные, что злые леопарды с гиенами далеко обходили их стороной, а потому мы не находим их останков? А рудольфенсисы – в который уж раз – не самцы ли хабилисов? И доселе таинственные черепа KNM-ER 1805 и SK 80/846/847 – необычные как раз сочетанием огромных прогнатных челюстей и даже сагиттальных гребней и более-менее крупного мозга – не самцы ли все тех же хабилисов-эргастеров? Не забыты и пресловутые мегантропы – это ли не настоящие взрослые мужчины эректусов? А некоторые мужчины-самцы эргастеров – вернее, считавшиеся доселе самцами – не взрослые ли женщины-самки? Например, пол черепа KNM-ER 3733 находится под вопросом, но версия о его женской принадлежности озвучивалась не раз, а с учетом дманисских находок она предельно логична. В этом случае дманисцы оказываются не столь уж архаичными, как казалось до сих пор; они занимают закономерное место эргастеров, более прогрессивных, чем хабилисы, но примитивнее эректусов. Особенно близка эта мысль, конечно, исследователям Дманиси. Ведь одно дело, когда изучаешь тупиковую уклонившуюся ветвь малорослых страшненьких недоэргастеров, забредших слишком далеко на север и вымерших от непосильных тягот и невзгод вдали от исторической родины. И совсем другое, когда это гордые представители генерального эволюционного тренда, охватывавшего Ойкумену от мыса Доброй Надежды до самых до окраин, то есть, собственно, до Дманиси. В таком случае не грех и таксономию подправить. И вот уже звучит предложение считать эргастеров хроноподвидом Homo erectus ergaster – не сказать чтобы оригинальное, но обретшее новое звучание и особый переливчатый тон. А чтобы не забывали уникальность именно родных дманисских черепов, не пора ли и на самого Карла нашего Линнея с его принципами биномиальности и триномиальности замахнуться и выдать тетраномиальное название Homo erectus ergaster georgicus (Lordkipanidze et al., 2013)? Что ж, замахнемся и на Линнея! Наконец, и хабилисы не так уж выделяются на фоне грандиозного внутридманисского размаха, а посему отчего бы и их не включить в тот же самый вид на правах молодых самок? Весы таксономистов опять кренятся в сторону “объединителей”… Замечателен пятый череп, что и говорить! Долго еще не утихнут водовороты ученых дискуссий, много еще бумаги и мегабайтов будет изведено на статьи и, чем черт не шутит, книги, посвященные ему. Но неутолима жажда познания. А потому, не желая изменять внутреннему зуду, вновь воззовем к грузинским коллегам: доколе?! В приложении к статье невозможно не заметить интригующую картинку распределения находок в Дманиси, а на ней – два скелета: от того же пятого индивида и подростка, да плюс к ним фрагменты от старика. Это же два с половиной скелета, товарищи! Конечно, часть костей уже была описана в 2007 году, но не пора ли представить миру и прочее? И коли уж так модно стало интерпретировать все возрастной изменчивостью – даешь анализ! Мы бы и сами не прочь им заняться, но кости в Грузии, а мы здесь. Полные скелеты эргастеров не такая банальщина, чтобы годами держать их на полках без описания. Грузинские коллеги, мир ждет вашего слова! Почему Дманиси – не парантроп? Описание пятого черепа из Дманиси вызвало много споров, суждений и вопросов. Некоторые люди, не слишком близко знакомые с древними гоминидами, но все же несколько подкованные в вопросе, задаются вопросом: а действительно ли дманисский человек – человек? Покатый лоб, огромные челюсти, развернутые скуловые дуги, хмурое выражение – чем не австралопитек, чем не парантроп? Что тут, собственно, человеческого? Однако же человеческого в дманисце хватает. Австралопитеки и парантропы тоже выделяются не по наитию антрополога, а по комплексу важных диагностических признаков. От грацильных австралопитеков дманисец разнится катастрофически. Во-первых, австралопитеки существенно мельче. Конечно, дманисец тоже не гигант, но все же… Даже крупный по австралопитековым меркам самец Stw 505 имел мозг 505 см³, тогда как у дманисца все же 546 см³. Одно из разительных отличий дманисца от всех австралопитековых – степень выступания челюстей. Челюсти грацильных австралопитеков несравненно прогнатнее дманисских. От восточноафриканских парантропов дманисец отличается прямо обратным свойством – своей прогнатностью. Парантропы имели огромные челюсти, но эти челюсти у восточноафриканских парантропов никогда не выступали резко вперед. У ранних эфиопских и поздних южноафриканских бывало, но первые далеки от Дманиси хронологически, а вторые – географически. Совершенно различается конфигурация лица: у всех австралопитековых оно резко уплощенное, даже вдавленное внутрь, а у дманисца какая-никакая, но горизонтальная профилировка выражена; говоря человеческим языком – средняя часть лица выступает вперед относительно скул. Относительные размеры лица и мозговой коробки австралопитековых и дманисца несопоставимы: у первых – и грацильных, и массивных – челюсти крупнее относительно мозгового отдела – как в длину, так и в ширину. У парантропов лба при взгляде спереди практически не видно, а дманисец хотя тоже не Сократ, но все же подает надежды. У парантропов лицевой отдел буквально подавляет собой мозговую коробку, а у дманисца последняя все же больше, чем верхняя челюсть. Форма неба и альвеолярной дуги дманисца вполне человеческая – с достаточно плавно закругленной передней частью, в противоположность спрямленной у парантропов. У парантропов передние зубы очень маленькие, особенно в сравнении с огромными молярами. Размеры зубов дманисца далеко не достигают парантропьих значений. Например, у южноафриканских Paranthropus robustus, имевших зубы меньшие, чем восточноафриканские P. boisei, площадь коронки первого верхнего моляра по методике, примененной в статье о Дманиси, составляет 197,4, у Australopithecus afarensis – 163,5, у Australopithecus africanus – 177,5а у Дманиси тот же параметр – 159; второго моляра: у южноафриканских парантропов – 229,1, у Australopithecus afarensis – 191,1, у Australopithecus africanus – 224,4, у Дманиси – 197. Даже у хабилисов для первого моляра размер будет 162,6, для второго – 185,9, то есть первый моляр дманисца меньше не то что зубов парантропов, а даже мелких в целом хабилисов. У австралопитеков и парантропов более плавно закруглен свод, практически нет заваликовой борозды, а также совершенно отличен затылок – он почти вертикальный у грацильных видов, приостренный у южноафриканских парантропов и как бы приплющенный, чуть ли не скошенный у восточноафриканских. У дманисца же затылок крупный, высокий и далеко выступает назад, подчеркнут перегибом на границе с теменной костью и снабжен затылочным валиком. Форма затылочного рельефа совершенно различается у австралопитековых и дманисца. Весьма расходятся вообще все признаки рельефа. У австралопитеков и парантропов надбровье вполне умеренное или даже слабое по древним меркам, а у Дманиси – огромное, в этом отношении наши предки попервоначалу явно перехватили лишку. Прямо обратное соотношение височных линий: у Дманиси они хотя и расположены высоко, но все же не сходятся вместе аж на 4 см. У взрослых самцов грацильных австралопитеков и парантропов они всегда и в обязательном порядке сливались в мощный сагиттальный гребень. Только самки австралопитековых могли себе позволить неслияние височных линий. Этот признак принципиален, ибо соединение височных линий и, соответственно, схождение височных мышц на середине свода автоматически означает прекращение роста головного мозга. Все древнейшие гоминиды имели сагиттальный гребень, а род Homo тем и знаменит, что первым отказался от такого украшения, за счет чего смог позволить себе отращивать мозги намного дольше и, стало быть, больше. Правда, Дманиси не может похвастаться особой мозговитостью, но надо же было с чего-то начинать! Существенное ослабление жевательной мускулатуры дманисца сравнительно с австралопитеками и парантропами очевидно при оценке позадиглазничного сужения: у первого оно хотя и выражено, но не чрезмерно по эректоидным меркам, а вот у вторых сужение было запредельным в гоминидном масштабе. Скуловые дуги различны принципиально: у дманисца они, конечно, велики и широки, но при сопоставлении с парантропами кажутся просто жалкими. Любой уважающий себя парантроп, особенно взрослый самец, имел о-го-го какие скуловые дуги! Горилле такие не снились! Нижняя челюсть дманисца огромна, но по всем возможным параметрам отличается от челюстей австралопитеков и парантропов. Особенно бросается в глаза малая толщина и огромная высота тела дманисской челюсти, тогда как у австралопитековых пропорции диаметрально противоположны. Конечно, новый дманисский череп удивителен и необычен. Но все же это – человеческий череп; древнечеловеческий, если быть точным. Если приглядеться внимательнее, пятый череп из Дманиси отличается от четвертого – старческого – только чуть большими размерами за счет надбровья, большей приплюснутостью свода да прогнатной верхней челюстью. А ведь на четвертом черепе челюсти маленькие только оттого, что все зубы выпали при жизни, а альвеолы – ячейки для зубов – заросли задолго до смерти. Челюсти при этом всегда катастрофически уменьшаются. Второй же череп D2282 вообще по всем главным характеристикам: форме свода, рельефу, размерам и выступанию челюстей – соответствует пятому, даром что он женский. Конечно, Дманиси отличается не только от австралопитековых, но и от современных людей. Строго говоря, он занимает промежуточное положение. С нашей точки зрения он примитивен, австралопитеки бы сочли его чересчур новаторским. Но такова эволюция – в ней нет граней, но есть переходы. Где проводить линию между австралопитековыми и людьми? Находки в Малапе не так давно поставили этот вопрос ребром. Дманисский череп добавил в проблему нового колорита. Все же отсутствие сагиттального гребня и уменьшенные относительно мозгового отдела челюсти и зубы перевешивают все архаизмы и примитивности дманисца. Эти свойства были важнейшими, обеспечившими возможность прогрессивного роста головного мозга, а следственно – и культурного прогресса человечества вплоть до современности. Дманисцы находились у самых истоков этого рывка в цивилизацию. Они были еще примитивны: глядя со стороны Homo, мы видим огромные челюсти, покатый лоб, здоровенные зубы, приплюснутость свода и, самое главное, маленький мозг – переходные черты между австралопитековыми и “истинными” людьми. К тому же грузинским гоминидам не повезло с географией, и решающий рывок осуществили их африканские родственники, но зато дманисцы законно могут числиться в благородных рядах Homo. Таким образом, первые люди, благодаря пятому дманисскому черепу, оказались более первобытными и дремучими, чем казалось доселе, но все же можно радоваться, что они превзошли своих предков – грацильных австралопитеков – и не скатились в столь безвыходную бездну специализации, как парантропы – наши невезучие двоюродные братья по эволюции.Уже не ранние Homo: Homo ergaster.
Далее на африканскую сцену выступают Homo ergaster. Их главное отличие – заметный рост мозга и, соответственно, мозговой коробки с увеличением надбровного и затылочного рельефа, увеличением толщины костей свода, относительное уменьшение челюстей и абсолютное – зубов, округление альвеолярной дуги. Плавность перехода от хабилисов к эргастерам хорошо подтверждает происхождение вторых от первых. По этой же причине значительное количество фрагментарных находок интервала 1,5–1,6 млн лет назад не находит прочного места в систематике. К примеру, нижние челюсти KNM-ER 731, KNM-ER 820 и KNM-ER 1507 определялись и как Homo habilis, и как Homo ergaster, и как Homo erectus.
Голотипом для описания вида послужила нижняя челюсть KNM-ER 992 из Кооби-Фора (Groves et Mazak, 1975). Ее датировка колеблется примерно от 1,4 до 1,5 млн лет назад. Ее главное отличие от предшествовавших эогоминин – сравнительная грацильность. Кстати, по этому признаку KNM-ER 992 отличается даже от многих других эргастеров, но, будучи голотипом, она задает нам образцовый пример “эргастерности”. Другой “классический” Homo ergaster – затылочная кость и нижняя челюсть KNM-ER 730, обладатель коих жил 1,55 млн лет назад.
Ко времени 1,5 млн лет назад морфология черепа поменялась достаточно существенно. В частности, это выразилось в увеличении толщины свода, что отлично видно на примере фрагмента KNM-ER 1466 с датировкой ровно 1,5 млн лет назад. Но, слава палеонтологии, в нашем распоряжении имеется достаточный набор более-менее целых находок. Это, прежде всего, предположительно женский череп KNM-ER 3733, имеющий новейшую датировку 1,65 млн лет назад. Также это мужской череп KNM-ER 3883, обладатель которого жил 1,57 млн лет назад. Между этими гоминидами пролегает без малого сотня тысяч лет, так что не странно, что они отличаются друг от друга на уровне, близком к видовому. Но от хабилисов оба отличаются одним и тем же набором признаков: это заметно бóльший объем мозга – 848 и 804 см³, более мощное надбровье и выступающий затылок, более крупное абсолютно, но меньшее относительно мозговой коробки лицо, уменьшенные размеры неба, альвеолярной дуги и зубов, ослабленный альвеолярный прогнатизм. Аналогичные признаки, но бóльшая массивность обнаруживаются на более фрагментарном своде черепа KNM-ER 3892 возраста 1,43 млн лет.
Посткраниальные останки Homo ergaster не столь уж малочисленны, но весьма фрагментарны, а потому всегда диагностируются с большой долей сомнения. Это, например, обломки бедренных костей KNM-ER 737, KNM-ER 1809, большая берцовая и таранная кости KNM-ER 1476. Более комплектен скелет KNM-ER 1808 с датировкой 1,59 млн лет назад. Остатки черепа позволяют говорить, что это был именно Homo ergaster, однако кости сильно деформированы вследствие гипервитаминоза A. Из-за заболевания многие признаки могут быть искажены, но, по крайней мере, мы можем установить рост – порядка 1,7 м, что много, особенно учитывая женский пол KNM-ER 1808.
Кстати, о морковке, белых мишках и пчелках… Кости KNM-ER 1808 изуродованы, притом отнюдь не течением времени и не тягостью земных пластов. Скорее всего, болезнь KNM-ER 1808 вызвана очень сильным гипервитаминозом A (Walker et al., 1982). Свод черепа и кости скелета покрыты бесформенными костными наростами – поражены периоститом. Подобные деформации не так легко заработать. Самый прямой путь – съесть за раз пару тонн морковки. Но прямой – не значит простой. Есть другой способ – слопать печень какого-нибудь хищника, лучше всего белого медведя, на худой конец – моржа или кита (немало полярников погорело на незнании основ физиологии!). Правда, в Африке с ними напряженка, но и крупная кошка тоже подойдет; как говорится, на безмедвежье и саблезубый тигр – морж. Этот метод, понятно, тоже не лишен недостатков, ведь для развития периостита недостаточно разок выпотрошить леопарда, надо делать это регулярно. Мы, конечно, верим в способности нижнеплейстоценовых тарзанов, но все же день изо дня вырывать печень у саблезубых гомотериев (кстати, как раз в это время они вымирают в Африке – так вот она, причина?!) – это, наверное, перебор. Еще можно есть много печени морских рыб, но вот беда – от Кооби-Фора до моря немножко далеко: полтысячи километров. Существует, однако, более спокойное и надежное средство получить гипервитаминоз A: есть пчелиных личинок (Skinner, 1991). В них витамина A содержится тоже немало, главное – любить процесс. Мед и личинки в Африке – отличный источник витаминов, белка и жира. Посчитано, что пигмеи мбути в дождливый сезон могут до 80 % калорий получать из меда и пчелиных личинок. Кстати, пигмеи жалуются, что если переусердствовать, то начинают болеть кости и суставы. Не это ли происходило и с KNM-ER 1808? Возникают и другие вопросы. Например, как эргастеры могли разорять пчелиные гнезда? Современные конкуренты Винни-Пуха почти всегда обкуривают их дымом, да еще желательно при этом пользоваться сетками и перчатками. Думается, эргастерам последняя роскошь была недоступна, а вот запалить огонек они, вероятно, были уже способны. Кстати, гипервитаминоз A сопровождается массой впечатляющих симптомов: на сухой шелушащейся коже появляются высыпания и трещины, она чешется, лицо краснеет, ладони желтеют, губы сохнут, а уголки рта кровоточат, ногти истончаются и ломаются, человек лысеет, у него выпадают брови. Кроме того, несчастный теряет аппетит, у него нарушается сон и болит голова, кости и суставы, его тошнит, он становится раздражителен. Никому такого не пожелаешь… Зато какой простор для современных реконструкторов, стремящихся к гиперреалистичности в изображении первобытных времен!Особый интерес представляет фрагментарный скелет эргастера KNM-ER 803a-t, имеющий датировку около 1,53 млн лет назад. Замечательно, что по ряду признаков – например, размерам и строению плюсневой кости – этот индивид очень напоминает дманисцев и KNM-ER 1500, а по некоторым – к примеру, слабому изгибу локтевой кости – оказывается довольно прогрессивным. Размер тела, вероятнее всего, был небольшим, около 1,6 м.
Намного представительнее знаменитый скелет KNM-WT 15000, известный также как Мальчик из Турканы или Нариокотоме III из пачки Нату формации Начукуи Западной Турканы. Его не раз передатировали, долгое время общепринятым считался вариант 1,53 млн лет назад, но самый современный – 1,47 млн лет назад (McDougall et al., 2012). Скелет замечателен своей уникальной сохранностью: следующие сопоставимые – только некоторые неандертальцы. Однако индивидуальный возраст примерно в 11–12 лет затрудняет сравнения с другими находками. Поэтому KNM-WT 15000 определяли и как Homo ergaster, и как Homo erectus, а по мнению некоторых исследователей, он отличается на видовом уровне как от KNM-ER 992, так и Сангирана и KNM-ER 3733 (Schwartz et Tattersall, 2000b).
Некоторые особенности KNM-WT 15000 первоначально были описаны как примитивные, но в реальности являются следствием патологии развития. К таковым относится сужение позвоночного канала (Latimer et Ohman, 2001).
Череп KNM-WT 15000 несет все признаки ранних архантропов, но выраженные в нерезкой форме благодаря молодому возрасту. Очевидно, поэтому же часть черт выглядит схожей с таковыми у хабилисов. Например, объем мозга не очень велик – 750–880 см³, надбровье развито не слишком сильно, затылок более-менее округлый.
Благодаря сохранности, возможно установить размеры тела KNM-WT 15000. Первоначально рост подростка определялся в пределах 1,6–1,68 м, а взрослого аппроксимировался до 1,8 и даже 1,95 м. Однако в последующем, во-первых, было показано, что реконструкция роста сильно зависит от того, на основании каких материалов и каким математическим методом мы ее выполняем (Hens et al., 2000), а во-вторых, целый ряд работ был посвящен обсуждению вопроса – а был ли ростовой скачок у гоминид того времени (Clegg et Aiello, 1999; Smith, 2004)? Если его не было, то длина тела взрослого KNM-WT 15000 могла быть всего около 1,63 м (Graves et al., 2010). В любом случае пропорции тела были резко вытянутыми, выраженно тропическими и одновременно вполне человеческими, в отличие от хабилисов.
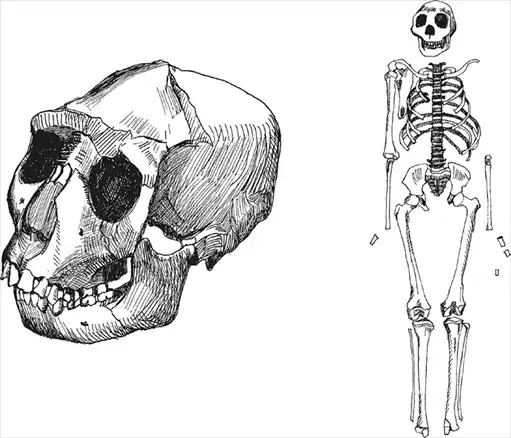
Рис. 19. Череп и скелет KNM-WT 15000.
К сожалению, от KNM-WT 15000 почти не сохранились кости кистей и совершенно не сохранились кости стоп. Этот пробел в некоторой степени заполняет третья пястная кость KNM-WT 51260 из Каитио, недалеко от Нариокотоме, имеющая датировку 1,42 млн лет назад. На этой кости есть такой важный признак, как шиловидный отросток. Этот отросток отсутствует у шимпанзе, Australopithecus afarensis и Australopithecus sediba; судя по основанию второй пястной кости, не было его и у Homo habilis OH 7. Зато отросток сильно развит у неандертальцев и современных людей, поскольку нужен для укрепления кисти при трудовой деятельности. Таким образом, на грани Homo ergaster и Homo erectus кисть уже была истинно “трудовой”, человеческой; неспроста незадолго до этого гоминиды изобрели новую – ашельскую – технику изготовления орудий.
Находки в Мелка-Контуре – фрагмент левой плечевой кости Гомборе IB-7594 с датировкой 1,6–1,7 млн лет назад и обломок нижней челюсти Гарба IVE с датировкой 1,4–1,5 млн лет назад – чаще определяются как Homo erectus, но по сути ничем не отличаются от Homo ergaster Кооби-Фора. В Западной Туркане, в слоях пачки Нату формации Начукуи с датировками 1,44 млн лет назад, найдены не очень представительные обломки черепа KNM-WT 16001, также сочетающие черты Homo ergaster и Homo erectus.
В Олдувае гоминиды из слоев моложе 1,6 млн лет назад обычно обозначаются как Homo erectus, но среди них также можно видеть существенную изменчивость. Самым комплектным и показательным, без сомнения, является мужчина OH 9, которого неоднократно передатировали с наиболее достоверным итогом в 1,33–1,48 млн лет назад. Его черепная коробка уже очень велика – 1067 см³ и морфологически ближе к классическим архантропам. Впрочем, от азиатских эректусов “шелльского человека” отличает ряд черт, отчего и он не избежал описания в качестве самостоятельного вида, причем сразу в трех ипостасях: Homo leakeyi (или Pithecanthropus leakeyi), Homo (Proanthropus) louisleakeyi и Pithecanthropus olduvaiensis (или Homo erectus olduvaiensis).
С OH 9 можно было бы отсчитывать начало архантропов-эректусов, если бы не OH 12. Особенности мозговой коробки OH 12 очень похожи на таковые OH 9, тогда как некоторые детали строения лица больше соответствуют варианту KNM-ER 3733 (Anton, 2004). Объем его мозга – 727 см³. При этом OH 12, вероятно, вдвое моложе: его датировка может быть около 700 тыс. лет назад, хотя другие авторы отстаивают цифры до 0,78–1,2 млн лет назад (McBrearty et Brooks, 2000). Из близких отложений происходят нижние челюсти OH 22 и OH 51, также “зависающие” между Homo ergaster и Homo erectus. Судя по тазовой и бедренной костям OH 28 все из тех же отложений, гоминиды этого времени были достаточно рослыми – порядка 1,65 м для женщины. Впрочем, фрагментарность всех этих находок и существование других “образцовых” Homo erectus с датировками порядка 1–1,2 млн лет назад не позволяет основывать на них слишком глубокомысленные выводы. Таким образом, граница двух этих видов, как и всегда в палеонтологии, оказывается нечеткой, растянутой на многие тысячи лет.
Нижняя челюсть KGA10–1 из Консо с датировкой около 1,4 млн лет назад чаще определяется просто как Homo erectus. Одна из самых заметных тенденций в хронологических изменениях нижних челюстей гоминид “загадочного миллиона” – понижение высоты восходящей ветви. Если у рудольфенсисов восходящая ветвь была очень высокой, то через эргастеров к эректусам она заметно “сдает”, так что у KGA10–1 может называться просто низкой. Очевидно, это отражение уменьшения высоты верхней челюсти и, следовательно, лица в целом. Параллельно мы видим и постоянное сокращение размеров моляров.
Особые находки сделаны в кенийских местонахождениях FwJj14E в Илерет и GaJi10 в Кооби-Фора с датировками 1,51–1,53 и 1,435 млн лет назад – это следы ног нескольких человек, ходивших по вулканическим туфам в компании с бегемотами и другими зверями (Bennett et al., 2009). Следы замечательны по нескольким причинам. Во-первых, они явно человеческие. Во-вторых, большой палец был прижат к прочим не в меньшей степени, чем у современных людей, всю жизнь ходящих босиком. В-третьих, пальцы были завернуты внутрь меньше, чем у австралопитеков Лаэтоли, но больше, чем у современных людей. Видимо, ориентация пальцев была одним из существенных признаков стопы и менялась уже на уровне Homo; это крайне интересно, ведь получается, что прямохождение продолжало эволюционировать даже 1,5 млн лет назад. В-четвертых, эти люди крупные. Они имели рост 1,53–1,86 м и вес от 41,5 до 60,3 кг (Dingwall et al., 2013). Это заметно больше, чем у австралопитеков и хабилисов, но соответствует ожидаемому для эргастеров – и время сходится, что приятно. Не исключено, конечно, что это отпечатки ног и вовсе парантропов, ведь об их стопе мы, честно говоря, вообще мало знаем, но хочется верить, что перед нами – следы наших предков, людей, проходивших как хозяева по необъятной Родине своей.
Кстати, об огне. Переход от Homo habilis к Homo ergaster ознаменовался величайшим открытием человечества – освоением огня! Этому вопросу посвящены бесчисленные страницы (отличные обзоры: Clark et Harris, 1985; James, 1989). Особенно много, как обычно, сказано неспециалистами. Мы же ограничимся немногими фактами. Древнейшие следы использования огня известны на восточноафриканских стоянках Чесованжа, Мелка-Контуре, Гомборе I, Гадеб, в двух местонахождениях в Кооби-Фора и одном в долине Среднего Аваша, в южноафриканской пещере Сварткранс. Они имеют возраст около 1,5, вероятно до 1,6–1,7 млн лет назад. Особенно замечателен очаг в Чесованже в слое с датировкой 1,38–1,46 млн лет назад. Исследования прокаленной почвы из него показали, что она нагревалась до температуры около 400 °C, как в обычном костре, причем огонь горел долго, чего не бывает при случайном пожаре природного происхождения (Gowlett et al., 1981). Более того, очаг обложен камнями, хотя и не так красиво, как делают современные туристы. Мы не знаем, как эргастеры добывали огонь и могли ли они его вообще целенаправленно добывать. Но несомненно, что использование огня стало поворотным пунктом человеческой цивилизации. Можно долго петь дифирамбы огню и его гениальным покорителям. Ведь люди смогли греться, пугать зверей, готовить еду, менять свойства природных материалов и изготавливать новые. Вероятно, обработанная на огне пища стала главной причиной изменения челюстей, зубов и вообще всего пищеварительного аппарата. Без огня люди вряд ли бы заселили север и попали в Америку. Без огня мы не полетели бы в космос, а эта книга не была бы написана. Слава огню!В Южной Африке наличие вида Homo ergaster спорно. Однако к нему относились четыре зуба и мелкий фрагмент затылочной кости из Линкольн-Кейв. Останки крайне фрагментарны; диагностика их как Homo ergaster вызывает основательное сомнение с учетом датировки 115–253 тыс. лет назад при наличии орудий раннего ашеля (Reynolds et al., 2007). С другой стороны, может, это останки тех самых невероятно архаичных гоминид, которые якобы дожили вплоть до появления сапиенса и дали примесь в негроидов и о которых говорилось выше?
В пятом уровне брекчии Стеркфонтейна пара находок тоже определялась как Homo ergaster. Это разрушенные нижние челюсти Stw 80 (очень схожая с SK 15) и Stw 84 (имеющая несколько более продвинутые черты).
Примерно 1,3–1,4 млн лет назад сформировались древнейшие слои со следами присутствия людей в Убедийе в Израиле (раньше их датировали 1,9–2,5 млн лет назад; Belmaker et al., 2002). Найденные тут два небольших обломка теменной кости, фрагмент височной, кусочек свода, два резца и моляр относятся, вероятно, к более поздним временам (но наверняка древнее 680 тыс. лет назад), они определялись как австралопитек, Homo habilis, Homo ergaster или Homo erectus, хотя реальные признаки не позволяют уверенно говорить об этом.
Наконец, около 1,2 млн лет назад и меньше мы имеем “чистокровных” Homo erectus не только в Африке (Боури и Буйя, имеющие датировку ровно в 1 млн лет; возможно, Салданья), но и в Европе (Сима-дель-Элефанте), и в Азии (Сангиран и Гунванлин). Эти находки отмечают становление классических архантропов и одновременно расселение их по Ойкумене.
Отнесение всех “эректоидных” гоминид второй половины “загадочного миллиона” к Homo ergaster по-своему удобно, но и тут возможны сомнения. Даже KNM-ER 3733 – казалось бы, классический эргастер – может не принадлежать к этому виду, ибо, по мнению некоторых авторитетных исследователей, отличается от KNM-WT 15000 на уровне вида, а KNM-WT 15000, в свою очередь, столь же сильно разнится от KNM-ER 992 – голотипа Homo ergaster (Schwartz et Tattersall, 2000b). KNM-ER 3883 отличается от них всех. Посему KNM-ER 3733 определялся и как Homo leakeyi и даже послужил голотипом для выделения Homo kenyaensis, а KNM-ER 3883 – голотипом для Homo okotensis. Все же, кажется, нет смысла плодить слишком много экзотических названий. Понятно, что черепа подростков, женщин и мужчин, разделенные сотнями тысяч лет, да еще реконструированные из обломков, не могут быть идентичны. Но, по крайней мере, мы можем быть спокойны за отсутствие географических вариаций, пока не выходим за пределы Восточной Африки.
Из вышеприведенного обзора видно, что некоторые авторы определяют древнейших Homo ergaster еще во времена существования Homo rudolfensis – до 1,9 млн лет назад (KNM-ER 2598, KNM-ER 3228, KNM-ER 3732, KNM-ER 3734), хотя морфологическое сравнение показывает, что все такие находки не выходят за пределы изменчивости Homo rudolfensis. “Образцовые” эргастеры укладываются в промежуток времени 1,65–1,4 млн лет назад, хотя некоторые их черты могли сохраняться и позже.
Являются ли эргастеры самостоятельным видом? С момента первоописания споры по этому поводу не утихают. Некоторые восточноафриканские находки отстоят друг от друга на сотни тысяч лет, и впору удивляться, что они вообще бывают схожи между собой. От классических же азиатских эректусов Африка отделена тысячами километров, а потому ожидать идентичности их населения тоже странно. Но все же находок не так и мало, появляются новые, мы выявляем хронологические и, возможно, географические вариации, общие контуры африканской эволюции вполне понятны, и хочется верить, недалек тот день, когда фрагменты загадочной мозаики сложатся в окончательную и четкую картину.
Происхождение Homo: калейдоскоп мнений.
Предки эогоминин, как ни странно, неочевидны, а этот вопрос имеет прямое отношение к их систематике. Хотя подавляющее большинство исследователей сходится, что предками были Australopithecus afarensis, некоторые сомневаются в этом, хотя бы частично. В частности, исследователи окаменелостей Омо указывают, что в слоях после афаренсисов, но до “ранних Homo” обнаруживаются зубы, удивительно схожие с южноафриканскими Australopithecus africanus. Таким образом, A. africanus оказывается не географически обособленным южноафриканским видом, а хронологической стадией (Hunt et Vitzthum, 1986). Такая точка зрения подтверждается и некоторыми исследованиями южноафриканских пещер, в которых основная часть находок классических A. africanus получает датировки всего 1,5–2,5 млн лет назад (Berger et al., 2002). Главная сложность этой концепции заключается в том, что она основана практически только на исследовании изолированных зубов. Парочка подходящих целых черепов могла бы выправить положение, но их пока нет.
Особый вопрос – место собственно южноафриканских грацильных австралопитеков во всей этой запутанной истории. Можно указать три основных варианта: либо африканусы являются тупиковой ветвью, либо они дали южноафриканских “парахабилисов” и, возможно, смешались с параллельно возникшими восточноафриканскими, либо они потомки афаренсисов и предки хабилисов, но вообще не привязаны к Южной Африке, просто там лучше сохранились слои с их останками. В пользу первой версии говорит масса специализаций A. africanus, в пользу второй – существование малапских A. sediba, в пользу третьей – особенности гоминид из слоев B, C, D, E и F в Омо, а также, например, OH 24, OH 68 и OH 70.
Другие палеоантропологи ищут экзотических предков для Homo rudolfensis. После описания вида Kenyanthropus platyops возникла версия, согласно которой именно этот плосколицый австралопитек дал рудольфенсисов, которых в этом случае можно называть Kenyanthropus rudolfensis, отделяя и отличая как от Australopithecus, так и от Homo (Collard et Wood, 2001). Однако самостоятельный статус самого кениантропа находится под большим сомнением. Даже уплощенность его лица, во-первых, не уникальна на фоне вообще плосколицых австралопитеков, а во-вторых, в значительной степени может быть следствием тафономической деформации.
Многие и многие исследования были посвящены попыткам разобраться во взаимоотношениях гоминид “загадочного миллиона”. Как обычно бывает в палеоантропологии, ученые разделились на два лагеря – “дробителей” и “объединителей”.
Первые (Blumenschine et al., 2003; Clarke, 2012; Grine et al., 1996; Kramer et al., 1995; Lieberman et al., 1996; McHenry et Coffing, 2000; Rightmire, 1993; Smith et Grine, 2008) считают возможным разделить виды Homo rudolfensis, H. habilis, H. ergaster и H. erectus. Крайние дробители добавляют еще виды H. gautengensis, H. microcranous, H. georgicus и предполагают еще и иные, например Australopithecus sediba, Homo kenyaensis, Homo okotensis, Homo leakeyi и неназванный вид, представленный черепом KNM-ER 1805. Крайняя морфологическая изменчивость “ранних Homo” позволяет метрическими и сравнительно-филогенетическими методами разделить их не только на отдельные виды, но роды и даже подсемейства (Дробышевский, 2003), что показывает огромный масштаб различий между группами. Иногда эти виды представляются как последовательно сменявшие друг друга (особенно для H. habilis и H. ergaster), иногда – как существовавшие параллельно или разнесенные географически (особенно для H. ergaster и H. erectus c H. georgicus). В частности, подчеркивается, что неспроста древнейшие люди довольно массивны (Homo rudolfensis), потом становятся мелкими (H. habilis), а после снова вырастают (H. ergaster).
Объединители (Lee et Wolpoff, 2005; Miller, 2000; Miller et al., 2002) обращают внимание, что слишком часто находки “разных видов” оказываются в одних слоях, что противоречит элементарным экологическим правилам о конкуренции родственных существ. Не многовато ли их? Если виды занимали близкие экологические ниши и не были разделены географически и хронологически (а у гоминид они вряд ли были специализированными, судя хотя бы по современным обезьянам и человеку), то как бы они вообще разделились? Ведь еще существовали Australopithecus garhi, Paranthropus aethiopicus, Paranthropus boisei, Paranthropus robustus, последних из коих дробители к тому же иногда делят еще на два вида. Таким образом, напрашивается логичная мысль о том, что по крайней мере некоторые из этих “разных видов” представляют собой просто самцов и самок или особей разных возрастов.
Дробители возражают на это тем, что нет достоверных случаев нахождения разных видов в одном слое, кроме надежно доказанного сосуществования эогоминин и парантропов. Ведь разница расположения в метр отложений значит тысячи, а то и сотни тысяч лет, а стало быть – и экологических условий. Вместе с тем среди дробителей тоже нет единства, конкретные виды и находки тасуются ими в самых разных сочетаниях.
Как представляется, одной из главнейших проблем, стоящих на пути решения вопроса о взаимоотношениях гоминид “загадочного миллиона”, является недоучет хронологического фактора. Слишком часто исследователи напрямую сравнивают находки, в реальности разделенные сотнями тысяч лет. Конечно, частично это объясняется неточностью самих датировок и обнаружением множества фрагментов на поверхности земли, а не в слое, но стоит все же стремиться к разделению материалов на хронологические группы. Иначе сравнение разных “ранних Homo” можно уподобить сравнению черепов питекантропов и современных людей – между ними тоже пролегают около 800 тыс. лет, как между древнейшими Homo и первыми достоверными архантропами. Никто ведь не усредняет значения по гейдельбержцам и сапиенсам, разделенным “всего” 200 тыс. лет, почему же мы можем говорить о “ранних Homo”, отстоящих друг от друга на бóльшие временные промежутки? Если за второй миллион лет существования рода Homo сменилось три “надежных” вида (H. erectus, H. heidelbergensis, H. sapiens), то почему бы трем видам не смениться и за первый – “загадочный” – миллион?
И действительно, можно видеть, что в целом гоминиды “загадочного миллиона” подразделяются на три морфологические группы, более-менее распределяющиеся и на три хронологических этапа: Homo rudolfensis с 2,4–2,3 по 1,9–1,8 млн лет назад, Homo habilis с 1,9–1,8 по 1,7–1,6 млн лет назад и Homo ergaster – до 1,5–1,4 млн лет назад. Как обычно бывает в палеоантропологии, четкие границы провести невозможно в принципе, но тенденции изменения прослеживаются достаточно хорошо.
Происхождение Homo: а может, все было так?
Как же можно попытаться свести все это многообразие находок и их интерпретаций?
В промежутке от 3 до 2 млн лет назад грацильные австралопитеки переставали быть грацильными. У некоторых это выразилось в увеличении передних зубов – Australopithecus garhi, у большинства – в увеличении задних. Как уже упоминалось, порядка 2,5 млн лет назад в связи с некоторым похолоданием и осушением климата среди разных групп африканских животных наблюдаются аналогичные изменения жевательного аппарата. В русле всеобщих преобразований из вида Australopithecus afarensis возникал вид Paranthropus aethiopicus и через него – Paranthropus boisei. Восточноафриканские парантропы адаптировались и даже специализировались к питанию травянистой растительностью, что особенно наглядно прослеживается в результатах палеодиетологических анализов (Sponheimer et al., 2013). Одновременно характер стертости эмали их зубов, палеоэкологические реконструкции и даже само обилие костей парантропов позволяют предположить, что жили они все же не совсем в открытых саваннах, а скорее рядом с водоемами, питаясь, вероятно, осокой (Cerling et al., 2011). Те же популяции, которые сохраняли “широкие взгляды на жизнь”, питались всем подряд и жили где попало, не столь специализировались своим жевательным аппаратом. Фактически эволюция гоминид интервала 3–2 млн лет назад – это появление массивных австралопитеков, тогда как Homo – отставшие неспециализированные группы, не нашедшие своего теплого местечка и бесприкаянно мыкавшиеся там и сям по африканским просторам. Однако появление специализированного варианта не могло произойти мгновенно и никак не сказаться на состоянии “серой массы”. На протяжении неведомого промежутка времени особи “препарантропов” и “прелюдей” могли скрещиваться между собой. Скорее всего, этот промежуток был не таким уж коротким, ибо у приматов репродуктивные барьеры вообще слабы. Отсутствие или ослабление конкуренции вследствие специализации и обитание в специфических условиях позволили первым парантропам вырасти в численности, судя по соотношению находок, успешнее, чем первым Homo. Таким образом, генные потоки в некоторый момент должны были преобладать от “препарантропов” к “прелюдям”, имея закономерным результатом увеличение у последних массивности в целом и мегадонтии в частности. Надо думать, именно этот эффект мы и наблюдаем в явных “парантропоидных” чертах Homo rudolfensis. Практически все гоминиды с датировками больше 2 млн лет обладают мегадонтными молярами и несколько уменьшенными передними зубами, их нижние челюсти массивны, с толстыми телами и высокими восходящими ветвями. Таким образом, Homo rudolfensis – это первые люди, несущие немалый “заряд парантропности”. Вероятно, скрещивание между парантропами и уже “готовыми” эогомининами могло происходить и позже, не такого ли метиса мы имеем в лице KNM-ER 1805? Или этот “Загадочный череп” представляет позднюю разновидность Homo rudolfensis – с уменьшенными зубами, но выраженными прочими признаками этого вида?
Несколько иная ситуация сложилась в Южной Африке. Там тоже появились парантропы, но другого, заметно менее массивного вида Paranthropus robustus. Этот вид резко отличался от восточноафриканского преобладанием в диете частей древесных растений. Впрочем, численность южноафриканских парантропов тоже была заметно большей, чем местных “ранних Homo”. Однако меньшая массивность южноафриканских “препарантропов” и их более позднее возникновение оказали закономерно меньшее влияние на “прелюдей”, что мы видим, например, в особенностях немегадонтных Australopithecus sediba и совсем уж мелкозубых Homo naledi. Впрочем, в последующем, с оформлением Paranthropus robustus, южные эогоминины также не избежали “робустизации”, причем едва ли не большей, чем восточноафриканские. Увеличение размеров зубов, массивности челюстей и резкое сближение височных линий у Stw 53, SK 80/846/847 и прочих телантропов или Homo gautengensis может отражать именно этот процесс.
Расстояние от Восточной Африки до Южной велико, но не непреодолимо, находки в Малави показывают, что гоминиды вполне могли проникать из одной части континента в другую. Вряд ли регионы были изолированы столь сильно, что формировались разные виды, скорее, ситуация была аналогична положению с современными павианами. Западноафриканский гвинейский павиан отличается от североафриканского анубиса, который отличается от гамадрила с севера Восточной Африки, тот, в свою очередь, – от бабуина юга Восточной Африки, а последний – от южноафриканского чакмы. Вместе с тем отличия не мешают всем им гибридизироваться в пограничных зонах, почему разные авторы склонны выделять от одного до пяти видов. Так и с гоминидами: мы можем статистически отличать южно– и восточноафриканских, но отдельные признаки отдельных находок иногда дают неожиданные специфические сходства на разных концах континента.
Другое дело – эогоминины, покинувшие пределы континента около 2 млн лет назад. Фактически это были поздние рудольфенсисы, но, уйдя с прародины, они оказались в изоляции. Поэтому по пути они, естественно, менялись, так что в Дманиси мы встречаем людей, которые по многим показателям не отличаются от Homo rudolfensis, но все же имеют некоторую специфику.
Со временем парантропы и эогоминины в Африке дифференцировались все больше; первые становились все массивнее, а вторые, изолировавшись генетически, стали грацилизоваться, что наглядно выразилось в уменьшении размеров челюстей и заклыковых зубов. С этого момента – порядка 1,85 млн лет назад – начинается вид Homo habilis. Впрочем, грацильность этого вида весьма относительна: во-первых, имеется целый ряд находок, связывающих Homo rudolfensis и Homo habilis непрерывной изменчивостью; это, например, KNM-ER 1590, OH 4 и даже OH 7 – голотип вида “Человек умелый”, во-вторых, размеры зубов и относительная величина челюстей хабилисов больше, чем у последующих гоминид. Homo habilis удивительны двумя странностями. Во-первых, у них уменьшился не только жевательный аппарат, но и размеры мозга. Во-вторых, пропорции их тела и конечностей оказываются едва ли не архаичнее, чем у афарских австралопитеков. Таким образом, мы видим, что понятие “прогресса” весьма относительно, он виден только на больших временных интервалах и немало зависит от конечного итога. Но ведь вопрос и в том – есть ли он, конечный итог? С точки зрения самих хабилисов, они, несомненно, были заметно прогрессивнее своих предков, так же как и мы считаем себя прогрессивнее неандертальцев и кроманьонцев, превосходивших нас мозговитостью.
Уменьшение размеров мозга у хабилисов по сравнению с более древними рудольфенсисами могло быть связано с повышением стабильности условий окружающей среды. Увеличение мозга рудольфенсисов, равно как и парантропов, было, очевидно, реакцией на перестройки африканского биома. Само возникновение новых родов и видов из пребывавших до того миллион лет в стабильности афарских австралопитеков говорит само за себя – среда бурно менялась. В эпоху же хабилисов условия могли вновь более-менее устаканиться. Припеваючи жить в саванне можно и с мозгом павиана, вот хабилисы и “расслабились”. Меньше неожиданностей – меньше надобности в генераторе нестандартных решений. Но жизнь берет свое: новые вызовы судьбы породили новые эволюционные подвижки.
Порядка 1,65 млн лет назад постепенные изменения морфотипа Homo habilis достигли такого уровня, что мы можем говорить о появлении нового вида – Homo ergaster. Его представители стали заметно крупнее, уменьшение зубов сопровождалось заметным ростом мозга и преобразованиями черепной коробки. Поскольку репродуктивно эргастеры были уже давно и полностью отделены от парантропов, а экологическая пластичность в сочетании с развитием культуры позволяла занимать все новые местообитания, Homo ergaster могли вступать с Paranthropus в прямую конкуренцию. Значительно больший интеллект и отсутствие пищевой специализации дали эргастерам заметные преимущества, а судьба массивных австралопитеков была предрешена. Предыдущий миллион лет трудовой деятельности не мог не сказаться и на строении рук эргастеров: они, похоже, стали первыми обладателями “трудовой кисти” и, видимо, именно благодаря этому смогли создать новую культуру – ашельскую, существовавшую после еще больше миллиона лет.
Так ли все было? Слишком много возможностей, слишком много допущений и предположений…
Мы точно знаем, что 1,2 млн лет назад архантропы уже расселились до Испании на западе и до Китая и Явы на далеком востоке. Начиналась заря нового этапа эволюции – времени истинных гоминид. Но что происходило до этого? До этого лежал бурный и насыщенный событиями миллион лет – загадочный миллион.
Глава 5. Homo erectus: непрямые дороги человека прямоходящего.
Как уже говорилось, в интервале от 2 до 1 млн лет назад люди расселялись из Африки. Следы этого распространения обнаруживаются там и сям, в ходе дальних странствований около миллиона лет назад сложился новый вид – Homo erectus.
Эти люди отличались повышенной массивностью черепа: их надбровья рекордны среди всех гоминид – существовавших и до и после. У многих надбровный валик образовывал сплошную прямую полку над глазами. Имели выдающиеся размеры и затылочные валики архантропов, и гребни на височных костях. Черепная коробка была низкой и приплюснутой сверху, в сочетании с рельефом спереди и сзади она приобрела вид сдавленной дыни: лба почти нет (впрочем, это в сравнении с нами, а рядом с австралопитеком архантропы выглядят высоколобыми), темя плоское, затылок треугольником выступает назад. При взгляде сзади череп расширен в нижней части и сужается кверху. Объем мозга архантропов колебался на грани “мозгового рубикона” – в пределах 700–1100 см³. В нем прогрессивными темпами развивались лобная, теменная и височная доли, отвечающие за специфически человеческие особенности поведения и психики. Особенно важно бурное развитие зон Брока и Вернике, где у современного человека находятся центры речи. Мы не знаем, говорили ли эректусы, но, по крайней мере, делали очевидные шаги в этом направлении. Огромные челюсти придавали этим людям грубые, истинно первобытные черты. Нос архантропов был широким, что неудивительно в тропическом климате.
Минутка фантазии. Не вполне понятно, зачем бы архантропам надо было отращивать огромные костные полки над глазами. Кстати, у эректусов велик не только рельеф, у них и толщина костей свода рекордная – до двух сантиметров (для сравнения – у современного человека обычно 4–5 мм, притом что сам череп у него намного больше). Два исследователя предположили, что усиление черепа объясняется повышенной агрессивностью, плохим контролем за эмоциями и, соответственно, постоянным мордобоем (Carrier et Morgan, 2015). Толстые кости лица, надбровье, скуловые дуги, мощная нижняя челюсть – все это спасало от переломов и напрямую подвергалось естественному отбору. Более того, те же авторы выдвинули гипотезу, что параллельно эволюционировала и рука человека – тоже для мордобоя (Morgan et Carrier, 2013). Дескать, как-то уж слишком подозрительно удобно пальцы кисти складываются в кулак, их длина как будто нарочно заточена под это неинтеллигентное дело, а мышцы ладони защищают концевые фаланги от повреждений при ударах. Также высказывалось мнение, что укороченные ноги австралопитеков и хабилисов придавали им устойчивость в драках, а нормальные отношения сказались на удлинении ног только у эректусов. Но это предположение выглядит совсем уж высосанным из пальца, учитывая, например, очень короткие ноги миролюбивых бонобо. От себя добавим, что идея мордобойного отбора отнюдь не нова. На треть века раньше ее гораздо основательнее обосновал П. Браун, исследовавший черепа современных австралийских аборигенов (Brown, 1987). Среди 430 обследованных черепов – 176 женских и 254 мужских – из Нового Южного Уэльса, Виктории и Южной Австралии 58 % женских и 37 % мужских имели разного рода трещины, вмятины и переломы, причем 74 % на левой стороне свода – очевидный признак драк, а не несчастных случаев; 7 % ранений были сквозными или почти таковыми. 20 % женских и 12 % мужских черепов из Робинвейла, а также 28 % и 26 % соответственно с озера Виктории имели вдавленные переломы свода (Webb, 1984). А ведь это больший процент травматизма, чем на Второй мировой войне! Ясно, что при такой нелегкой жизни веками должен был идти жесточайший отбор на толстолобость. И действительно: у австралийских аборигенов самый массивный череп из современных людей. К этому можно добавить крайне малую эффективность народной медицины аборигенов – на грани отсутствия (Taylor, 1977). Можно думать, что со временем способы общения совершенствовались и актуальность крепкоголовости снижалась, хотя стоит подчеркнуть, что выше приведены данные по современным людям. Впрочем, реальных травм на черепах архантропов не так уж много, им было далеко до своих далеких потомков. Фактически из всех архантропов только на четырех черепах синантропов отмечены следы прижизненных повреждений тяжелыми ударами тупых и острых орудий, но и они по-хорошему должны бы быть подтверждены, да вот беда – оригиналы утрачены. Кроме прочего, представляется, что питекантропы не колотили друг друга сомкнутыми кулаками; с тем же успехом можно предположить, что они элегантно давали утонченные пощечины белыми перчатками. Думается, что колошматили они ближних камнями и палками. Например, из описаний путешественников известно, что австралийские аборигены предпочитали кулаку дубину. Наверняка древнейшие люди имели те же вкусы – дешево, эффективно и самому не больно. Иначе мы встречали бы характерные переломы пястных костей, нижних челюстей и вдавленные переломы скуловых дуг. Вот в Древнем Новгороде и прочих древнерусских городах полным-полно таких результатов кулачных боев. Вдавленные переломы лобной кости (обычно с левой стороны), травмы надбровных дуг, выбитые зубы – все это начинается лишь с неандертальцев. Но вряд ли и они достигали всего этого сомкнутым кулаком. Так что теория – теорией, а статистика – статистикой.К сожалению, в нашем распоряжении до неприличия мало посткраниальных костей архантропов. От австралопитеков и даже хабилисов известно гораздо больше останков. Даже удивительно, ведь на Яве, например, найдены десятки черепов – и ни одной кисти, ни одной стопы! Но судя по имеющимся материалам, ниже головы “люди прямоходящие” не отличались от нас почти ничем.
Особенно интересны в этом отношении тазовые кости BSN49/P27 из местонахождения Гона в Эфиопии (0,9–1,4 млн лет назад; Simpson et al., 2008) и OH 28 из Олдувая в Танзании (1,07–1,2 млн лет назад; Day, 1971). Оба таза имеют интересные сходства и различия. С одной стороны, общий комплекс признаков в обоих случаях очевидно человеческий, хотя расширенные пропорции находятся на грани современной изменчивости. С другой – размеры костей удивительно различаются. Кость из Гоны маленькая, с очень небольшой вертлужной впадиной; рост этого индивида был порядка 1,2–1,46 м, а вес – всего около 33 кг. Размеры же тела олдувайца были намного крупнее – 1,65 м, да и большая вертлужная впадина говорит о существенном весе – 49–52 кг. Первоначально обе кости были определены как женские. В этом случае можно допустить, что кость из Гоны принадлежала другому виду, возможно – бойсовскому парантропу. Однако более вероятно, что в Олдувае найдены останки мужчины. Тогда размеры тела и половой диморфизм этих ранних архантропов вполне укладываются в современные рамки.
Кстати, упомянутая необычная расширенность таза типична не только для BSN49/P27 и OH 28, но и австралопитеков, и намного более поздних людей – из Араго, Сима-де-лос-Уэсос, Цзиньнюшань, а также большинства неандертальцев. Не очень понятно, чем это было вызвано, но наверняка существенно облегчало роды и затрудняло бег. Homo sapiens обладает суженным тазом – неожиданный поворот в обезьянью сторону, очередной пример странных вывертов эволюции. А мода на “канон Барби” только подгоняет странный дезадаптивный тренд. Почему, зачем? Пока нет ответа…
Рост и вес эректусов были примерно такими же, как у современных людей, некоторые были довольно высокими.
Величайшее достижение архантропов – успешный выход из Африки. Символами их устремления на новые просторы выступают черепа BOU-VP-2/66 из Боури в Эфиопии и UA 31 из Буйя в Эритрее с датировкой около 1 млн лет назад: они сочетают в себе некоторые черты более древних Homo ergaster, но одновременно похожи на азиатских питекантропов. В более поздние времена облик африканских архантропов специфически менялся, примерами чего могут служить Бодо из Эфиопии и Рабат с Сале из Марокко.
На звание древнейшего внеевропейского архантропа претендуют разные гоминиды. Безусловные лидеры гонки – дманисцы, о них уже сказано выше. Но есть и другие.

Рис. 20. Черепа Буйя (а) и Боури (б).
Вента-Мицена Гишпанская: тайна кентавра из Орсе. Смешались в кучу кони, люди… Удивительные находки были сделаны испанскими археологами в местности Орсе на юге Испании, в многострадальной Андалузии. В слоях стоянки Фуэнтинуэва 3, образовавшихся не менее 780 тыс. лет назад, а с некоторой вероятностью аж 1,07–1,2 млн лет назад, они обнаружили сотню орудий развитой олдованской культуры. Но это цветочки. Гораздо существеннее кости, добытые на стоянках Барранко-Леон, Вента-Мицена и Куэва-Виктория. Война за них не менее эпична, чем сражения, развернувшиеся вокруг ореопитека. Как обычно бывает в таких случаях, исследователи разделились на две команды – “оптимистов” и “скептиков”. В данном случае первую возглавил Хосе Хиберт, а вторую – Бенвенидо Мартинес-Наварро. Конечно, участников намного больше; так, Пауль Пальмквист первоначально был “оптимистом”, но после разочаровался в идеях гоминидности останков из Орсе и проникся духом пессимизма. История войны Орсе достойна описания в великой балладе в стихах высоким стилем. Десятки статей были написаны, сотни доводов приведены, были победы и поражения, осады и лобовые атаки, ученые, защищенные крепостью фактов и вооруженные отточенными аргументами, вступали в союзнические коалиции и переходили из лагеря в лагерь, блистали остротой ума и гарцевали на невероятных методах. Чего только не было! Здесь мы можем дать лишь краткий конспект этого масштабного действа, полное полотно еще никем не написано. Да и как сделать это вкратце? Можно ли полно описать, скажем, войну Алой и Белой роз в нескольких кратких абзацах? Более того, история Орсе не закончена, раскопки продолжаются, а в журналах появляются все новые статьи. Число публикаций по Орсе необозримо, но мнения по-прежнему расходятся диаметрально (отличные обзоры обеих точек зрения: Gibert et al., 2002; Palmqvist et al., 2005). На настоящий момент в войне было три великих битвы. Непарнокопытная битва. Самой эпичной в войне Орсе стала баталия, поныне гремящая вокруг фрагментов из Вента-Мицены. Это семислойная стоянка, располагавшаяся на берегу постоянного озера. Здесь обнаружено более 15 тысяч звериных костей, собранных гигантскими гиенами. Как и в других местонахождениях Орсе, имеются тут и каменные орудия или, по другой версии, просто камни, похожие на орудия. Датировки, определенные для костного фрагмента VM-0, составляют 1,6–1,65 млн лет назад, а для VM-1960 и VM-3961 – 1,2–1,4 млн лет назад (Gibert et Palmqvist, 1995). Эти цифры небесспорны, но мало обсуждались, поскольку их затмили дебаты, развернувшиеся вокруг самих находок. Спорные кости были откопаны еще в 1982 г. Это фрагмент свода черепа VM-0 диаметром всего 8 см, а также два диафиза длинных костей – VM-1960 и VM-3961. Обломок VM-0 был интерпретирован как фрагмент с кусочками обеих теменных и затылочной костей ребенка 5–6 лет, VM-1960 – полный диафиз плечевой кости ребенка, а VM-3961 – средняя часть диафиза плечевой кости взрослого человека (Gibert et al., 1983). И понеслось… VM-0 представляет собой обломок меньше ладони. Понятно, что на столь небольшой находке сохранилось немного морфологических черт. Значимых, собственно, два: Y-образный шов и гребешок на внутренней поверхности. Однако чем меньше кусочек, тем жарче споры: недостаток данных – это лишь повод к буйству полемики и поиску новых признаков, которые бы можно было задействовать. В 1987 г. появились сомнения: неожиданно обнаружилось, что кость на самом деле принадлежала вовсе не ребенку, а жеребенку ископаемой лошади Equus altidens в возрасте 3–4 месяцев! Кроме того, это не фрагмент задней части теменных и затылочной, а теменных и с лобной, и с затылочной (Agustí et MoyÁ-SolÁ, 1987). В последующем число публикаций стало расти как снежный ком. Выяснилось, что на кости имеется не один, а два поперечных шва, причем передний – венечный – отстоит от заднего – лямбдовидного – на слишком маленькое расстояние; такой длины теменной кости у людей не бывает, а вот у жеребят – запросто. На внутренней стороне кости обнаружился гребешок – такие совершенно нетипичны для человеческих костей, зато характерны для лобной кости лошадей. Чуть позже появилось подробное описание находок (Campillo, 1989), в коем человеческая принадлежность костей обосновывалась целым рядом доказательств. В частности, утверждалось, что на кости не видно венечного шва, а сагиттальный и лямбдовидный имеют простую форму, типичную для гоминид, пальцевидные вдавления на внутренней стороне неотличимы от тех, что бывают на современных детских черепах, а гребень изнутри – ну что ж, отчего бы и не быть гребню… В 1995 г. из всех трех костей были выделены белки-альбумины (Borja, 1995; Borja et al., 1997). В черепном фрагменте VM-0 и плечевой кости VM-1960 они оказались человеческими, а в плечевой VM-3961 – непонятными, причем достоверность подтвердилась проведением анализов в двух независимых иммунологических лабораториях. Для проверки альбумины были получены из звериных костей, найденных в Вента-Мицене: в бизоньих они закономерно оказались бизоньими, в лошадиных – лошадиными, однако у одной ископаемой лошади нашелся аномальный человеческий альбумин, что ставит весь анализ под большой вопрос. В том же 1995 г. был проведен фрактальный анализ сложности шва – он показал сходство VM-0 с Homo и отличие от лошадей (Gibert et Palmqvist, 1995). Сразу две критические статьи вышли в одном номере журнала Journal of Human Evolution в 1997 г. (MoyÁ-SolÁ et KhÖler, 1997; Palmqvist, 1997). Заметим, что авторы первой из них были одними из главных участников битвы за ореопитека, а автор второй более десяти лет до этого поддерживал гоминидность фрагментов из Вента-Мицены. В своих работах “скептики” показали, что предположение о лошадином статусе VM-0 практически неоспоримо. Аргументы, как водится, были исчерпывающие: прекрасно различимый снаружи и изнутри шов как раз соответствует лошадиному венечному, и лямбдовидный тоже виден, пальцевидные вдавления такой формы не встречаются у детей, но обычны у жеребят, а гребень – однозначно лошадиный. Форма шва была проанализирована заново; оказалось, что его простота была сильно преувеличена. В действительности швы имеют крайне мудреную форму, какой не бывает у людей. Для их анализа вновь был применен фрактальный анализ и даже прежним автором, но с диаметрально отличными выводами. Проблема в том, что для получения адекватного результата необходимо вносить правильные данные, а оценить точный рисунок шва на разрушенной кости не так уж просто. “Оптимисты”, годами писавшие о древнейших гоминидах Европы из Вента-Мицены, не могли оставить такие инсинуации без внимания (Gibert et al., 1998). Они указали, что пальцевидные вдавления – обычное дело на детских черепах, причем у них они круглее, мельче и с более острыми краями, нежели у лошадей. То, что “скептики” приняли за венечный шов, на самом деле трещина; для проверки этого был использован рентгеновский анализ. Много чего еще было сказано умного, какие только способы ни изыскивались, чтобы доказать свою – “оптимистичную” – точку зрения. Были изучены сроки зарастания швов черепа лошадей, углы их схождения, еще раз проверена их фрактальная сложность или, вернее, простота, длина и толщина кости, ее изгиб, помянуто, что у эргастера KNM-ER 3733 имеется аналогичный гребень на внутренней стороне затылочной кости. Все эти особенности, конечно же, говорят о гоминидности VM-0. Но “пессимистам” это не показалось убедительным. Новейшие исследования показали идентичность фрагмента VM-0 черепному своду молодых самок парнокопытных (Martínez-Navarro, 2002) – вот он, новый поворот и свежая струя в становившемся однообразным споре! В таком случае кости, считавшиеся теменными, оказываются парными лобными, а затылочная – сросшимися теменными. Логичное объяснение получают и пальцевидные вдавления, и пресловутый гребень. Не остались забыты и фрагменты длинных костей. Правда, их сохранность оставляет желать лучшего. Диафиз предположительно детской кости VM-1960 сильно сужен в верхней части и примерно в полтора раза шире в нижней, чего, строго говоря, не бывает у людей. Фрагмент VM-3961, напротив, заметно расширен сверху. Многомерные анализы измерительных признаков показали абсолютно точную принадлежность кости VM-1960 представителю рода Homo (Sánchez et al., 1999; Gibert et al., 2002), но сечения диафиза и уровень минерализации на разных уровнях лишь отдаленно или даже вообще не напоминают человеческий вариант, что не менее стопроцентно гарантирует их животное происхождение (Palmqvist et al., 2005). “Пессимистами” был изыскан еще один оригинальный довод своей правоты (Palmqvist et al., 2005): пересчитав количество костей и зубов разных крупных млекопитающих, они вычислили, что в Вента-Мицене по статистике должны бы уже найтись штук шесть человеческих зубов. Ан нет! Нету этих зубов – стало быть, и людей тут никогда не было. Как это ни удивительно, обе группы ученых – и “оптимисты”, и “скептики” – все эти годы оперировали одними и теми же данными. Но пока каждая сторона считает себя победившей, а другую мнит глубоко заблуждающейся. Думается, еще долго будут раздаваться отдельные иммунологические выстрелы и звенеть фрактальные дуэли. И это здорово! Парнокопытная битва. Менее масштабной и не столь кровопролитной явилась битва за Барранко-Леон. Эта стоянка, находящаяся неподалеку от Гранады, вероятно, древнейшая в Орсе. Ее возраст определялся много раз и каждый раз иначе. Показательно, как это подавалось в статьях: авторы каждый раз, сожалея о снижении максимальной даты, не забывали подчеркнуть исключительную древность слоев. Первоначально сгоряча озвучивались цифры аж 1,6–1,8 млн лет назад. После накал был сбавлен: точно меньше 1,5, но, вероятно, 1,2 млн лет назад (Cela-Conde, 1999). Далее падение ставок продолжилось, но опять с оптимизмом: наверняка более 780 тыс. лет назад или, чем магнитостратиграфия не шутит, даже раньше 1,07 млн лет назад (Oms et al., 2000). Затем возраст опять был удревнен до 1,4 млн лет назад (Toro-Moyano et al., 2013), что тут же было раскритиковано до 0,78–0,99 млн лет назад (Muttoni et al., 2013). Кроме олдованских орудий, в Барранко-Леоне был найден фрагмент моляра BL5–0, торжественно преподнесенный научному миру как Homo sp. – древнейший человек в Европе (Gibert et al., 1999). Некоторое время лавры покоились на его виртуальной голове, да вот беда: его эмаль не похожа на человеческую, зато подозрительно напоминает эмаль молочного зуба древнего бегемота Hippopotamus antiquus (Palmqvist et al., 2005). Но испанские археологи не сломились под ударом судьбы и нашли второй зуб BL02-J54–100 – опять молочный, но на сей раз стопроцентно человеческий (Toro-Moyano et al., 2013). Зуб огромный, уступает в размерах только зубам парантропов и лишь нескольких представителей рода Homo. Битва приматов. Третье местонахождение гоминид в Орсе – Куэва-Виктория рядом с Мурсией, в отличие от двух прочих, расположено в карстовой пещере. Слои тут датированы от 1,1 до 1,4 млн лет назад, но главные дебаты развернулись не вокруг них, а вокруг находок. В пещере обнаружены два обломка конца плечевой кости, отвратительная сохранность которых не позволяет сказать ничего умного, а также почти целая фаланга CV-0. Вокруг нее и поднялся дым орудий. Первоначально кость была преподнесена как средняя фаланга мизинца руки человека (Gibert et Pons-Moya, 1985). В последующем этот вывод был подтвержден хитрыми расчетами, в том числе оценкой общей формы мудреным анализом Фурье (Palmqvist et al., 1996). Выходило, что в Куэва-Виктория мы имеем очередного древнейшего Homo Европы. Довольно долгое время это никто не оспаривал, хотя и особых восторгов тоже почему-то не звучало. Из этих находок не удалось выделить никаких белков (Gibert et al., 1998), так что ничто не предвещало последовавших бурных событий. Однако прошли годы, и в гоминидности CV-0 появились сомнения: коллектив авторов опубликовал статью, в которой было показано, что кость на самом деле принадлежала молодой, хотя и очень крупной ископаемой геладе-теропитеку Theropithecus oswaldi, причем это – средняя фаланга стопы, а не кисти (Martínez-Navarro et al., 2005). В качестве доказательства “скептики” привели метрическое и морфологическое сравнение с костями людей и ископаемых гелад из кенийского местонахождения Олоргесайли. Кость из Куэва-Виктория короткая и толстая, с параллельными сторонами и цилиндрической головкой без выраженной бороздки на ладонной стороне, прикрепление поверхностного сгибателя пальцев растянуто по всей длине боковой стороны тела, а не локализовано в одном месте, а по бокам основания имеются бугорки, нетипичные для человеческих подростков. То, что CV-0 принадлежала подростку, следует из факта, что основание кости еще не приросло к телу. Все эти признаки соответствуют тому, что наблюдается у теропитеков, но отличают испанскую фалангу от человеческих. Кроме прочего, “скептики” не то сочувственно, не то ехидно посетовали: дескать, жаль, что по бедности и недостатку материалов в первоописании “оптимисты” не смогли провести сравнение с фалангами теропитеков Theropithecus oswaldi или, на худой конец, современных гелад, тогда как именно этот единственный примат был обнаружен в Куэва-Виктория раньше, причем не кем иным, как самим Х. Хибертом с соавторами (Gibert et al., 1995)! Стерпеть такое было никак нельзя. Кровь вскипела в жилах отважного Хосе и его верных соратников! Первооткрыватели фаланги бросились в бой на защиту фаланги сердца (Gibert et al., 2008). Может, и нет у нас кенийских фаланг, может, мы и бедные, но честные! Во-первых, основание CV-0 приросшее, а стало быть – индивид был взрослым. Во-вторых, если бы основание было неприросшим, то размеры целой фаланги должны быть пересчитаны в сторону увеличения, а тогда она оказывается на треть больше, чем у самых крупных гелад, причем ведь для сравнения брались взрослые гелады, отчего разница получается еще более существенной; тогда по цифрам самих “скептиков” фаланга не может быть обезьяньей. Да и морфологические признаки CV-0 более человеческие, нежели геладьи: борозда на ладонной стороне головки вполне выражена, прикрепление поверхностного сгибателя пальцев вовсе никуда не растянуто, боковые стороны вовсе не параллельны, а аргумент про боковые бугорки актуален лишь при признании подросткового возраста. И все это, заметьте еще разок, следует из измерений и описаний, сделанных самими “скептиками”! Был добавлен и новый довод: на человеческих фалангах латеральный край слегка вогнут, а медиальный – прямой, тогда как у гелад – оба равномерно изогнуты. На сей раз ответный выпад не заставил себя ждать (Martínez-Navarro et al., 2008). В первых строках благородные доны галантно взмахнули шляпой и признались, что, ознакомившись с оригиналом, они убедились, что основание уже действительно приросло к телу, но (!) отчетливо разглядели след прирастания этого основания, так что фаланга все ж таки принадлежала подростку. За этим последовали три страницы разгрома, где по пунктам все доказательства “оптимистов” были разнесены в пух и прах – с графиками и иллюстрациями. Однозначный приговор: фаланга CV-0 принадлежала геладе, а не человеку! Сказали как отрезали – бритвой Оккама (это буквально последние слова статьи). Справедливости ради надо сказать, что приводимые в статьях графики, описания и измерения позволяют интерпретировать CV-0 и как человеческую, и как обезьянью, поскольку объективно она попадает ровно на границу распределения Homo sapiens и Theropithecus oswaldi. Изменчивость тех и других велика, тем более зуб гелады из Куэва-Виктория очень большой, так что и испанские теропитеки могли быть крупнее африканских. С другой стороны, и древние люди не обязаны походить на современных. Удивительно, но до сих пор никто не сравнил CV-0 с фалангами из Атапуэрки. Так что поля для баталий еще просторны, а арсеналы отнюдь не исчерпаны. Что дальше – ждем микрофокусной томографии?Возможно, древнейший европеец найден в Хорватии, около города Пула, в пещере Шандалья I на горе Сан-Даниэле. Тут еще в 1975 году был откопан левый верхний резец гоминида (Malez, 1972). По фауне слои датированы 0,8–1,5 млн лет назад. Особо любопытно, что кости животных вроде бы были обожжены; кроме того, был обнаружен и древесный уголь. Таким образом, Шандалья является одним из древнейших местонахождений, на которых использовался огонь.
Находки из Шандальи требуют новейшего переисследования, а пока их грандиозный возраст не уточнен, древнейшим достоверным жителем Европы остается человек из Сима-дель-Элефанте (Carbonell et al., 2008). Эта пещера расположена на севере Испании, в горах Атапуэрка, известных на весь мир как палеоантропологическая сокровищница. Датировки слоя TE9 в Сима-дель-Элефанте, содержащего главные находки, весьма впечатляют – 1,2–1,3 млн лет назад. Тут обнаружены и каменные орудия самого примитивного галечного типа.
В 2008 году исследователи описали переднюю часть нижней челюсти ATE9–1 и премоляр из Сима-дель-Элефанте, хотя находки ими не ограничиваются. Челюсть явно отличается от австралопитеков и даже выглядит чуть прогрессивнее, чем у большинства архантропов. При желании на ней можно даже углядеть намек на подбородочный выступ. Слишком много по такому фрагменту не скажешь, но главное – он однозначно человеческий.
Перст указующий: древнейший палец древнейшего европейца. Древнейшие европейцы известны до обидного плохо: маленький обломок челюсти и изолированный зуб из Сима-дель-Элефанте да следы на грязи из Хейзборо. Чуть меньший возраст имеют находки в Гран-Долине. Конечно, есть еще великолепная серия черепов из Дманиси, но они стоят слишком уж особняком и географически, и хронологически, и морфологически. Что было до – понятно: люди жили в Африке, а Европа была заселена дикими зверями. Что было после – тоже понятно: в Европе люди гейдельбергские потихоньку эволюционировали в неандертальцев. А вот время примерно от 1,5 млн до 0,5 млн лет назад покрыто мраком. Поэтому каждая новая находка из этого интервала бесценна и поэтому крайне важно описание первой фаланги мизинца левой кисти взрослого человека из Сима-дель-Элефанте, получившей обозначение ATE9–2 (Lorenzo et al., 2015). Кости кистей имеют особое значение для антропологов. С одной стороны, они сохраняются не слишком часто, с другой – в кисти костей много, так что какие-нибудь фрагменты нет-нет да остаются. С третьей стороны, фаланги не очень велики, на них не так много признаков, а потому с ними трудно работать. Наконец, кисть – орган труда, так что представляет один из трех комплексов гоминидной триады – набора основополагающих сугубо человеческих особенностей. Для древнейших этапов эволюции рода Homo кисть известна обрывочно. Есть набор костей от Homo habilis и дманисцев (1,77 млн лет назад), совсем недавно описана пястная кость из Каитио (1,42 млн лет назад), богатая россыпь из Гран-Долины (730–950 тыс. лет назад), а после в наших знаниях зияет пробел вплоть до Сима-де-лос-Уэсос (430 тыс. лет назад). Поэтому фаланга из Сима-дель-Элефанте важна – она хоть частично заполняет один из промежутков. Новоописанная кость при умеренных общих размерах отличается крайней массивностью, особенно в середине тела. Мощные гребни на ладонной стороне свидетельствуют о значительных нагрузках, которые испытывал первый европеец. Что такого тяжкого он делал своим левым мизинцем? Давил орехи? Подманивал носорогов? Ковырялся в носу? Даже по столь незначительной кости ясно, что жизнь в каменном веке была нелегкой. Сравнение с другими древними и современными людьми показывает, что индивид из Сима-дель-Элефанте в целом вписывается в рамки изменчивости Homo heidelbergensis, но также очень похож на южноафриканских не то последних австралопитеков, не то первых Homo, имеющих близкие датировки. Судя по всему, у древнейшего жителя Испании трудовой комплекс кисти был уже полностью развит, что, впрочем, не странно, учитывая предшествующий миллион лет орудийной деятельности. Но! Как обычно, я не могу удержаться и от толики критиканства. По неведомой причине на графиках нет данных по Гран-Долине, хотя в тексте про нее, конечно, говорится. А ведь именно в Гран-Долине найдено большинство сопоставимых материалов и изучали их те же авторы, что написали новую статью. Впрочем, в обсуждении и выводах все данные учтены. Наши знания о древнейших этапах человеческой эволюции пополнились еще одним фрагментом. Будем надеяться, что испанские недра далеко не иссякли. Может, в Сима-дель-Элефанте найдется и череп? Отчего бы и нет?.. Из грязи – в люди: путешествие по стопам древнейших жителей Европы. Обычно древнейшие люди предстают перед нами в виде черепов и костей – не самых жизнеутверждающих элементов. Гораздо реже удается найти отпечатки стоп: на всей планете до сих пор было обнаружено всего семь мест, в которых наследили досапиентные люди. Это Лаэтоли в Танзании (3,66 млн лет назад), Илерет и Кооби-Фора в Кении (1,5 млн лет назад), Роккамонфина в Италии (350 тыс. лет назад), Лангебаан-Лагун и Нахун-Пойнт в Южной Африке (117 и 125 тыс. лет назад) и пещера Вартоп в Румынии (62–119 тыс. лет назад). И вот этот небогатый перечень пополнился, причем довольно неожиданным образом. На юго-восточном побережье Англии расположено местечко Хейзборо. Волны Ла-Манша подмывают тут древние отложения, обнажая слои окаменевших доисторических грязей. И вот на одном из участков такой грязи, размером всего около 12 м², обнаружились следы ног пяти человек (Ashton et al., 2014). Самое интересное, что датировка слоя, судя по остаткам фауны, флоры и другим данным, составляет 0,78–1 млн лет назад. А ведь самые древние достоверные останки человека в Европе – челюсть из Сима-дель-Элефанте – датируются 1,2–1,3 млн лет назад, то есть едва более ранним временем. Причем Сима-дель-Элефанте находится в Испании и расположена гораздо южнее Хейзборо. Судя по палеонтологическим данным, климат в то время был теплым, как раз завершалось межледниковье. Таким образом, в Хейзборо мы имеем древнейших из самых северных и самых северных из древнейших жителей Европы! Надо признаться, никто не ожидал обнаружить столь далеко на севере столь ранних людей. Размеры следов сильно разнятся, судя по ним, рост людей колебался от 93 см до 1,73 м. Очевидно, тут присутствовали как дети, так и взрослые. Как часто бывает, собственно антропологической информации из следов получить удается немного. Рост оказывается достаточно усредненным для человечества, но стоит отметить, что, по крайней мере, точно не низким. Примерно такой же рост по длинным костям реконструируется у синхронных Homo antecessor Испании. Соотношение ширины отпечатков к их длине показывает, что ноги первых “англичан” были шире, чем у “кенийцев” Кооби-Фора и Илерет, но ýже, чем у “итальянцев” Роккамонфина, неандертальца Вартоп и современных мексиканцев, зато примерно такими же, как у нынешних индейцев и инуитов акиак. Такое распределение выглядит логично, поскольку соответствует стандартным экологическим закономерностям: в жарком климате тела становятся более вытянутыми, а в холодном – коренастыми. Люди из Хейзборо уже успели малость расшириться по сравнению с тропическими предками, но далеко не достигли позднейших значений. Большой вопрос – были ли обитатели раннеплейстоценовой Англии прародителями гейдельбергских людей и неандертальцев. По следам это установить не представляется возможным. С одной стороны, само их существование демонстрирует широкие возможности расселения даже самых первых европейцев, с другой – климат в последующие времена резко ухудшился. Мигрировали ли хейзборцы обратно на благоприятный юг, адаптировались ли к суровым условиям ледникового периода или вымерзли? Пока мы этого не знаем. Зато теперь у исследователей есть уверенность, что людей с датировками под миллион лет можно найти не только в Средиземноморье, но и в северных широтах. Кто знает, раз они добрались до Англии, не заглянули ли они и в Восточную Европу? Сколь много нам открытий чудных готовит двадцать первый век?..
Рис. 21. Череп и скелет ATD 6–15+6–69.
Более основательные находки сделаны в пещере Гран-Долина в испанской Атапуэрке. Древнейшие слои с останками людей датированы тут 900–950 тыс. лет назад, хотя большинство костей имеют возраст порядка 730 тыс. лет назад. В Гран-Долине обнаружены десятки костей от пяти – семи человек – трехлетнего ребенка, как минимум двух подростков и двух взрослых. Самое ужасное – человеческие кости разбиты на куски, несут недвусмысленные следы отрезания мяса и раскиданы в слое вперемешку с мослами носорогов, лошадей, кабанов, ланей и оленей. Судя по всему, бедняги стали охотничьей добычей кровожадных каннибалов. Лучше всего сохранился череп девушки ATD 6–15+6–69 и ее скелет, вернее, то, что от него осталось после банкета.
Кстати, о низких пороках и высоких помыслах… Надрезки на человеческих костях необязательно свидетельствуют о каннибализме. Из этнографии известны многочисленные примеры, когда с телом умершего скорбящие родственники производят некие погребальные операции, в том числе разрезают тело целиком или частично, чтобы, например, освободить душу или, напротив, не дать ей вернуться в мир живых. Поэтому многие археологи склонны большинство случаев находок надрезок на костях расценивать как свидетельство развитой погребальной практики. Согласитесь, есть разница: одно дело, когда предки – мерзкие людоеды, жадно отрезавшие кровавые куски мяса с коварно убитой жертвы с тупой целью набить свое ненасытное каннибальское брюхо, и совсем иное – если они, проливая слезы, участливо заботились о загробной судьбе души горячо любимого усопшего. К сожалению, археологический контекст зачастую не дает разгадки – какая версия верна. Поэтому спорным остается случай с Бодо из Эфиопии (640 тыс. лет назад). Череп этого выдающегося представителя африканских эректусов (в частности, у него самое мощное надбровье и самое тяжеловесное лицо из всех архантропов!) несет многочисленные следы надрезов (White, 1986). Они сконцентрированы на надбровье и задней стороне свода, по окружности глазниц, по краям носового отверстия и носовых костей. Такое впечатление, что с черепа снимали скальп, причем вместе с “маской” лица. Представляется, что для людоеда кожа представляет мало интереса, разве что для совсем отмороженного. А вот некая ритуальная практика, вероятно погребальная, тут вполне могла иметь место. Другой пример – кости синантропов из Чжоукоудяня. Многие из них разбиты и даже вроде бы обожжены. Однако внимательный анализ доступных данных показал, что они с наибольшей вероятностью разгрызены, а некоторые и переварены гиенами (Boaz et al., 2000). Выломанные основания черепов (например, у Синантропа X) первоначально интерпретировались как доказательство того, что злобные каннибалы доставали мозги, чтобы всласть ими полакомиться. И вновь поправочка: при ближайшем рассмотрении выяснилось, что повреждения по краям разломов с наибольшей вероятностью – погрызы дикобразов.Люди из Гран-Долины заметно архаичнее, чем более поздние европейцы. Однако молодой возраст и женский пол ATD 6–15 сказались на ее более интеллигентном обличье: надбровье развито слабо, челюсти вроде бы не слишком большие. Стоит же сравнить жертву людоедов с современными детьми или даже отпрысками неандертальцев, как ее примитивные особенности становятся очевидны. В частности, строение зубов гран-долинцев оказывается промежуточным между более древними африканскими Homo ergaster и более поздними европейскими Homo heidelbergensis, причем гораздо ближе к первым, и несколько отличается от варианта азиатских синантропов и дманисцев. Поэтому испанские антропологи посчитали возможным описать особый вид Homo antecessor (Bermúdez de Castro et al., 1997). Надо сказать, что статус этого вида пока остается “подвешенным”: во-первых, не так уж запредельно он разнится от своих предков и потомков, а во-вторых, описание вида по фрагментарным остаткам, как мы уже знаем, всегда создает проблемы в будущем.

Рис. 22. Черепа Бодо (а), Синантроп (б), Чепрано (в).
К виду Homo antecessor предположительно относятся и другие находки. По датировкам близка челюсть из Мауэра – голотип вида Homo heidelbergensis, – но ее зубы по всем параметрам ближе к неандертальцам и существенно отличаются от гран-долинских. Предполагалось, что представителем Homo antecessor был человек из Чепрано, чью черепную коробку, правда, переехал бульдозер, так что ее пришлось собирать, как мудреный 3D-пазл. Первые датировки Чепрано указывали на огромный возраст – 800–900 тыс. лет назад (Ascenzi et al., 1996); получалось, что это древнейший более-менее целый череп в Европе. Однако новый пересмотр дела показал, что Чепрано жил гораздо позже – лишь 385–430 тыс. лет назад (Manzi et al., 2010). Из этого тут же выросла новая проблема, ведь Чепрано действительно очень архаичен, но это мы обсудим ниже.
Люди попали не только в Европу. По берегу Индийского океана очень быстро они достигли Южной, а потом и Восточной Азии и расселились по ее просторам. Береговая линия тех времен могла заметно отличаться от современной. В периоды похолоданий массы воды уходили в полярные ледники, уровень Мирового океана существенно понижался и многие проливы становились мостами суши. Так люди смогли переправиться в Сунду – субконтинент, вытянувшийся на юго-восток от Индокитая, от которого ныне остались разрозненные острова Индонезии. Фактически Суматра, Калимантан, Ява и прочие острова – лишь вершины гор Сунды. Понятно, что большая часть людей жила на солнечном побережье, поближе к дарам моря, и лишь самые невезучие оттеснялись в гористую глубинку. Именно останки этих немногочисленных бедолаг и достаются теперь нам.
Ясно, что люди жили много где, но, как обычно, мы находим их там, где сохранились соответствующие отложения. Далеко не всегда ясен их геологический возраст. Так, огромные цифры назывались для местонахождений Кедунг-Брубус, Моджокерто и Сангиран на Яве – до 1,66, 1,8, 1,87, 1,9 и даже 2,3 млн лет назад (например: Bandet et al., 1989; Hoffman, 2001; Langbroek et Roebroeks, 2000; Swisher et al., 1994). В последующем, правда, эти даты были заметно снижены – до 710–830 тыс. лет назад для Кедунг-Брубус и не более 800 тыс. лет назад для Моджокерто (Vos, 1994; Bilsborough, 2000). Самые оптимистичные оценки для Сангирана – 1,25–1,51 млн лет назад, причем древнейшей находкой может быть затылочная кость Brn-1996.04 с датировкой более 1,51 млн лет назад (Larick et al., 2001) или череп Сангиран IX – 1,3 млн лет назад (Larick et al., 2001). Но чуть позже и эти цифры были пересмотрены в сторону уменьшения – не более 1,1 млн лет назад как для Сангирана, так и Моджокерто (Hyodo et al., 2002). Самая древняя находка на материке – череп Гунванлин из Лантьяня – относится ко времени около 1,15–1,2 млн лет назад (Hyodo et al., 2002).
Заря Поднебесной: датировка черепа из Лантьяня. Всем хочется, чтобы древнейший человек зародился в местной, родной пещере. А особенно этого хочется китайцам. Ведь всем известно, что Поднебесная империя – это центр мироздания, а все остальные страны расположены на ее периферии. И как досадно, что Африка не в Китае! Уж и зубы обезьяны из Лунгупо с возрастом 1,9 млн лет назад пытались пристроить в качестве древнейшего человека, и орудия из Жензидуна датировали аж 2,25 млн лет назад, и синантропов воспевали, а все находится среди западных варваров кто-то древнее. Обидно! Но Китай велик, гор и пещер в нем много, на каждой горе и в каждой пещере много слоев, а раскопаны они часто так, что стратиграфическое положение находок можно хитро интерпретировать. Посему всегда есть простор для поисков еще более древних китайцев. Один из лучших кандидатов – архантроп из Лантьяня, а точнее из Гунванлина, известный также как PA 1051–6. Его череп был найден в 1964 г. в слоях маленького холма в провинции Шэньси в Центральном Китае. Череп сохранился неидеально, но по нему видно, что он крайне архаичен: лоб приплюснут, надбровье огромное, кости свода толстенные, заглазничное сужение чрезвычайное, межглазничное расстояние запредельное. Китайский глаз радуется, глядя на сильно уплощенное лицо. Конечно, свежеоткопанного предка тут же торжественно провозгласили представителем нового вида Sinanthropus lantianensis.
Рис. 23. Черепа Триниль (а), Сангиран 17 (б), Гунванлин (в).
А вот с датировками было не все так здорово. Поначалу предполагались смелые 700 тыс. лет. После начались игры с интерпретациями палеомагнитных данных, в зависимости от чего получалось то ли 750–800 тыс. лет назад, то ли 1,13–1,15 млн лет назад. Дальше бóльшие цифры стали подтверждаться анализом фауны и новыми палеомагнитными исследованиями. Кое-кто не поскупился и на 1,8 млн лет назад, но эту цифру все же широко не принимали, ибо оснований для нее явно не хватало. На долгие годы дата 1,15 млн лет назад (часто ее незатейливо округляли до 1,2 млн лет назад) стала практически общепризнанной, хотя в 2008 г. ее уточнили до 1,22 млн лет назад (Li et al., 2008). И вот подул ветер перемен. Группа китайских исследователей при поддержке английского специалиста опубликовала подробнейший разбор стратиграфии, магнитостратиграфии, древних фаун и серий датировок как самого Гунванлина, так и многих других китайских местонахождений (Zhu et al., 2015). Выяснилось, что с большой вероятностью череп происходил вовсе не из того слоя, как считалось доселе, а из гораздо более глубокого. Пересмотр данных привел ученых к выводу, что его реальный возраст – 1,63±0,02 млн лет назад! Таким образом, Китай одним махом и с запасом обошел почти всех внеафриканских соперников, за исключением одного лишь Дманиси. Все же Африку не превзойти, границы у Китая с Черным континентом, как ни печально, нет, а в промежутке лежит почти вся Евразия, а почти в самом начале Азии гвоздем торчит Дманиси. Ну ничего, упорство китайцев всем известно, так что ждем новых открытий… Но! Ясно, что не все так просто. Череп, как уже говорилось, был найден в 1964 г., с тех пор сомнений в его стратиграфическом положении не высказывалось. Фауна, обнаруженная с ним, сначала характеризовалась как холодолюбивая, а затем – тропическая и субтропическая, что совсем не одно и то же и существенно влияет на оценку датировки. Именно субтропический характер фауны стал главным аргументом отказа от предыдущего определения залегания черепа. Однако сложности изучения древних фаун Восточной Азии слишком велики, с ними еще много непонятного. Архаичные формы местами могли сохраняться очень долго, климатические колебания и связанные с ними миграции животных изучены недостаточно. К тому же уточнение магнитостратиграфии производилось на основе не самого Гунванлина, а холма Жакун, расположенного в десяти километрах севернее. Сопоставление фаун двух холмов привело исследователей к мысли, что и череп в Гунванлине залегал в ином слое, нежели считалось ранее. Но данные по самому Гунванлину фактически не пересмотрены. А ведь известно, что сопоставления расположенных в километрах друг от друга местонахождений и слоев далеко не всегда дают надежные результаты. Наглядным примером служит вековой спор о датировках яванских питекантропов. Посему новая оценка возраста человека из Гунванлина не может быть признана окончательной. Будем надеяться, что новые переисследования стратиграфии и определение истинного положения черепа все же поставят точку в вопросе о времени появления людей на востоке Азии.Если проблемы с датировками самых древних архантропов понятны, многим покажется удивительным, что гораздо труднее бывает определить позднейшую границу их существования. Дело в том, что переход от Homo erectus к позднейшим видам совершался, во-первых, плавно, а во-вторых, неодновременно в разных местах. Поэтому в разных книгах можно найти определения рубежа между эректусами и гейдельбергенсисами чуть ли не от от миллиона до трехсот тысяч лет. Немало сложностей создает строгое следование правилу приоритета в номенклатуре в сочетании с новейшими датировками. Традиционно эректусы рассматриваются как предки более поздних и прогрессивных гейдельбергенсисов, однако голотип вида Homo erectus – Триниль – недавно был передатирован с 0,78–1 млн лет назад до 430–540 тыс. лет назад, а голотип Homo heidelbergensis – Мауэр – с 300–500 до 700 тыс. лет назад. В очередной раз история палеоантропологии и использование в качестве голотипов фрагментарных находок задали непростую задачку. Как обычно, помочь делу могло бы переопределение голотипов, но профессиональным антропологам и так все ясно, отчего они не заморачиваются на формальностях.
Вообще, существует несколько концепций вида Homo erectus. В самом широком варианте под этим названием понимают всех людей, существовавших после хабилисов и до неандертальцев, то есть от 1,5 или даже 2 млн лет назад до примерно 150 тыс. лет назад. Тогда с одной стороны туда попадает KNM-ER 1740 и Дманиси, с другой – Бильцингслебен и Вертешселлеш. Получается, честно говоря, широковато.
Годами тлеет дискуссия о том, можно ли относить к виду Homo erectus восточноафриканских людей, обозначаемых как Homo ergaster. Одни считают, что они не так уж сильно отличаются от классических яванских питекантропов, другие склоняются к тому, что их можно разнести в разные виды. В последнем случае под названием Homo erectus остаются лишь внеафриканские гоминиды среднего плейстоцена; послеэргастеровых же африканских можно назвать Homo leakeyi, Homo rhodesiensis, Homo mauritanicus или еще как-нибудь.
Тут возникает новый соблазн уточнения: а не отделить ли поздних прогрессивных товарищей с крупным мозгом и специализациями в отдельный вид Homo heidelbergensis? Но нет предела редукционизму, ведь в черепах европейских архантропов при желании можно углядеть свою специфику и они отпочковываются все в тех же Homo heidelbergensis или более спорных Homo antecessor, а от Homo erectus остаются лишь азиатские формы.
Наконец, китайские представители тоже имеют личные особенности – Homo pekinensis, – и вот ареал эректусов сокращается до одной лишь Явы. Но и тут их настигает суровая рука дробителя: поздние яванские архантропы весьма специализированы, а потому, конечно, заслуживают выделения в Homo soloensis или Homo ngandongensis.
Заметьте, каждая точка зрения имеет свое веское обоснование, каждая подтверждается целым набором доказательств. В понимании Homo erectus ярчайшим образом выявилась проблема палеонтологического вида: как его понимать – как хронологическую стадию или географический вариант, какое число особенностей должно быть уникальным, чтобы признать его самостоятельным, валидным?
Поскольку от тяжких раздумий на эти темы начинает болеть голова, для облегчения своей участи антропологи и изобрели спасительный термин “архантропы” без внятных границ. Право слово – удобно! Все, кто явно не австралопитек и не неандерталец или сапиенс, имеет повышенную массивность и мозги в пределах современного минимума, – все архантропы. А дальше в их пределах можно с чувством разбирать локальные варианты, развлекаясь раздачей экзотических названий или, лучше, оперируя лишь каталожными номерами самих находок и их датировками.
Видимо, существовало как минимум две основные географические ветви архантропов – западная, или афроевропейская, и восточная, или азиатская. Потом ветви бурно ветвились. Европейские в последующем стали неандертальцами, азиатские – денисовцами и “хоббитами”, а африканские – нами.
Во времена архантропов люди из разных концов планеты могли сильно отличаться друг от друга – существеннее, чем расы современных людей. Особенно специфичными были яванские питекантропы. По всем возможным признакам они уклоняются от африканских и европейских сородичей и даже архантропов материковой Азии: у них более плоский лоб, сильнее выступает затылок, у последних представителей появляются экзотические специализации височной кости. Особенно велики челюсти яванских питекантропов. Это даже вызвало многолетнюю дискуссию среди антропологов.
Дело в том, что первыми находками на Яве были черепные крышки и бедренные кости. Несколько позже появились челюсти. Но антропологи, видимо, были не готовы к тому, что люди могут иметь такой жевательный аппарат. Поэтому обладатели челюстей были названы Г. Кенигсвальдом мегантропами древнеяванскими Meganthropus palaeojavanicus. Про них было написано весьма много, главным лейтмотивом всех этих работ было сравнение мегантропов с африканскими австралопитеками и выяснение – добрались ли австралопитеки до Явы и были ли они грацильными или же массивными. По пути возникли термины Australopithecus palaeojavanicus и Paranthropus palaeojavanicus. Удивительно, но за бурными обсуждениями мало кто обращал внимание на то, что картина получается более чем странная: среди десятков яванских находок черепные крышки принадлежат сплошь питекантропам, а нижние челюсти – мегантропам. Конец идее мегантропов положили находки черепов с лицевым скелетом (например, Сангиран 17 и Сангиран IX), а также открытия в Восточной Африке. Стало окончательно ясно, что большие крупнозубые челюсти вполне совместимы с черепными коробками питекантропов и это не их эксклюзивная черта, а модный тренд того времени. Теперь же слово “мегантроп” применяется просто для обозначения яванских челюстей, даже необязательно очень больших.
Более того, самая каноничная челюсть мегантропа – Сангиран 5 или Питекантроп C 1939 года – оказалась с наибольшей вероятностью орангутаньей (Tyler, 2004). Слава статистике и новым методам – теперь мы можем успешнее отсеивать зерна от плевел, а людей от обезьян даже по очень фрагментарным находкам.
Питекантроп – творец. Яванский питекантроп стал первым известным предком человека древнее неандертальца. Чего только про него не писали: и о примитивности его черепа, и о прогрессивности бедренной кости, и о болезни, поразившей бедро, и о незавидной судьбине, сгубленной в пасти злого крокодила. Последующие находки расширили диапазон тем. Челюсти, описанные как “мегантропы”, сравнивались с массивными австралопитеками Южной Африки, черепа – с эргастерами Восточной. Много рассуждений рассудилось на тему небывалой островной изоляции на краю Земли, приведшей к появлению странных нгандонгцев и совсем уж экзотических “хоббитов”. И только о жизни древних яванцев мы практически ничего не знали. Дело в том, что кости их находили большей частью либо случайно, либо в сильно переотложенных слоях. Орудий в ассоциации с костями питекантропов никогда не обнаруживали, вплоть до того, что была выдвинута гипотеза “бамбуковой культуры”: дескать, когда вокруг растет полно бамбука, зачем колоть камни? Действительно, даже во многих современных культурах Юго-Восточной Азии и Индонезии из этого замечательного растения делается буквально все: дома, водопроводы, ножи, оружие, посуда, одежда, даже книги. Потребности же питекантропов были явно поменьше, так что им сей травы должно было хватать за глаза. Впрочем, и на Яве были-таки откопаны каменные орудия, правда весьма примитивные; они были описаны как патжитанская культура. Но все же эти корявые чопперы из кварцита были моложе тринильских отложений, в коих были найдены кости первого питекантропа. Чем же занимались питекантропы? Впервые завесу над этой тайной приоткрыл международный коллектив ученых, опубликовавший свои открытия в журнале Nature (Joordens et al., 2015). Эжен Дюбуа – первооткрыватель питекантропа – был настоящим ученым. В поисках обезьяночеловека он не забывал о других вещах и в числе прочего собрал коллекцию раковин из слоев в Триниле, в которых отрыл свои главные находки – бедренную кость и черепную крышку. Наконец, руки археологов дошли и до этих раковин. Для начала были сделаны датировки. Методами 40Ar/39Ar и люминесценции возраст тринильских слоев был определен в 430±50–540±100 тыс. лет назад. Это заметно более поздняя дата, чем прежде считалось. Доныне слои Триниля получали датировки 0,9–1 млн лет, в наименьшем варианте – 710–780 тыс. лет. Во-вторых, хитрыми способами сравнения химического и изотопного состава в очередной раз была подтверждена синхронность черепной крышки и бедренной кости. Уже в который раз исследователи убедились, что питекантроп с примитивным черепом и вполне современным бедром – не химера, а реальность (впрочем, в этом никто, кроме креационистов, не сомневался уже больше ста лет). Наконец, самые главные результаты дало исследование собственно раковин. На нескольких из них обнаружились довольно аккуратные отверстия напротив того места, где у живого моллюска расположена мышца-замыкатель. Исследования краев отверстий показали, что они имеют искусственное происхождение. Более того, на акульих зубах, найденных тут же, нашлись следы использования и износа – на кончике и по краю. Выходит, питекантропы акульими зубами открывали ракушки, просверливая в них маленькую дырочку! Это гораздо интеллигентнее, чем размочалить моллюска булыжником, а потом лопать мясо с осколками перламутра. До такого изысканного метода, кажется, не додумались ни высокомудрые африканские предки сапиенсов, ни даже французы! Одна из раковин имеет следы износа по краю. Не очень понятно, что ей делали, кажется, скребли что-то твердое (бамбук?!). Конечно, на основании одной раковины делать широкие выводы немножко смело, но авторы не боятся, они так и пишут: “Орудия из раковин были частью культурной адаптации Homo erectus на Яве”. И апофеоз! Одна из раковин несет на своей поверхности произведение искусства: процарапанный зигзаг! Кажется, столь древнего зигзага еще никто не видел. Насечки были, булыжники в форме головы или человека были, а вот такого зигзага – нет. Правда, древность сего граффити сказывается на его качестве: приплюснутый мозг творца закипал под надбровным валиком от грандиозности замысла, акулий зуб выскальзывал из потных пальцев, мозолистые руки дрожали от напряжения, да наверняка еще и москиты донимали. Зигзаг вышел не очень ровным, но, в конце концов, попробуйте сами, сидя голышом на берегу яванской реки, акульим зубом нацарапать на ракушке свой шедевр. Кто знает, может быть, именно вдохновение и подвело питекантропа: творческий порыв так захлестнул его, что он не заметил подкрадывающегося крокодила… Не смотрите на кажущуюся незатейливость рисунка. Все гениальное просто. Стоило начать, а там и до Моны Лизы недалеко. Для подтверждения в приложении к статье авторы приводят примеры древнейшего искусства из других мест и времен. И знаете – питекантропий зигзаг ненамного уступает сложностью крестикам-ромбикам сапиенсов Южной Африки, жившим 100–75 тыс. лет назад, зато в разы превосходит их древностью. Культура питекантропов Явы большей частью так и остается неведомой нам, но отныне мы уже не можем относиться к ним свысока. Теперь совсем уж очевидна несправедливость их названия “обезьяночеловек”. Новые поиски ракушек, зубов и костей откроют нам новые страницы культуры изолированных, специфических, но очень одаренных жителей древней Индонезии. Ява – миллион и сто лет спустя. Черепная крышка и бедренная кость из Триниля стали первыми известными останками Homo erectus. Но и спустя более ста лет Ява продолжает радовать антропологов. В ноябрьском номере 2012 г. Journal of Human Evolution были опубликованы две статьи: одна посвящена черепной коробке Букуран (Grimaud-Hervé et al., 2012), другая – бедренной кости Кресна 11 (Puymerail et al., 2012). В настоящее время известно довольно много черепов яванских питекантропов, но каждая новая находка дает что-то новое. Ява сотни тысяч лет являлась своеобразным заповедником, в котором шла своя местная эволюция. Отсюда, в частности, выселились предки флоресских “хоббитов”, тут появились специализированные поздние нгандонгцы. Черепная крышка из кабухских слоев Букурана представляет собой образцовый пример питекантропа. Крайне низкий, расширенный, приплюснутый сверху свод с мощнейшим надбровным валиком в виде полки, резким заглазничным сужением, сагиттальным лобным валиком и выступающим затылком, объем мозга 916 см³ – классика архантропа. По размерам и некоторым пропорциям Букуран близок к Сангирану 17 – самому крупному и сохранному питекантропу из ныне известных. Заметнее различие с классической черепной крышкой из Триниля. Гораздо сильнее отличается Букуран от людей из Нгандонга и синантропов из Чжоукоудяня – более поздних и прогрессивных гоминид. В совокупности же мы имеем замечательную эволюционную последовательность азиатских архантропов. Диафиз бедренной кости Кресна 11 – одна из немногочисленных находок посткраниальных останков яванских питекантропов. К сожалению, концы кости полностью разрушены, так что анализ заострился на распределении компактного слоя вдоль длины. По основным показателям – утолщению боковых стенок и смещению вниз наименьшего диаметра кости – Кресна 11 укладывается в рамки изменчивости архаичных людей. Такие черты, видимо, связаны со значительной шириной таза древних людей и, соответственно, походкой несколько вразвалочку, с закономерным усилением боковых нагрузок на ноги. Не вполне обычными для архантропов выглядят в целом умеренная толщина стенок и увеличение толщины внутренней стенки кости сверху вниз у Кресна 11. Всегда приятно, когда удается обнаружить еще один вариант древней изменчивости. Долгожданное описание черепа из Букуране и бедренной кости Кресна 11 дополняет наши представления о яванских питекантропах в частности и эволюции гоминид в целом.Архантропы материковой Азии известны по множеству находок, преимущественно из Китая. Самыми знаменитыми из них, без сомнения, являются синантропы, чьи многочисленные останки были откопаны с 1921 по 1929 годы в пещере Чжоукоудянь около Пекина. Всего были найдены останки порядка сорока человек, причем преимущественно черепа и зубы. Находки первоначально получили название Sinanthropus pekinensis, но довольно быстро стало ясно, что это вариант все того же Homo erectus. Более того, находки происходили из разных слоев, разница между которыми составляла сотни тысяч лет, так что тут мы имеем редкостную возможность проследить изменения морфологии со временем. Так, череп Синантроп III древнее прочих – 585 тыс. лет назад, большинство – Синантропы II, X, XI и XII – имеют возраст 350–423 тыс. лет назад, а самый поздний череп Синантроп V– всего 256–338 тыс. лет назад.
С синантропов началось полноценное изучение вида Homo erectus. Ученые получили в свои руки бесценную коллекцию, дающую возможность изучить половую, возрастную и хронологическую изменчивость. Получили… Но ненадолго. Наука наукой, а исторический процесс идет сам по себе. В самый разгар раскопок японские войска вторглись в Китай. Пока они наступали, но еще не добрались до Пекина, коллекции срочно описывались и воплощались в виде гипсовых слепков. Потом кости были запакованы в ящики и отправлены в порт на борт американского корабля, отправлявшегося на другой конец Пацифики… И тут история таинственно обрывается. То ли в суете эвакуации ящики не добрались до порта, то ли корабль был уничтожен, то ли все досталось японцам, а может быть – драгоценности достигли-таки Америки, но попали не в те руки. Мы этого не знаем. И никто этого не знает. Тут начинаются сплошные домыслы и даже полушпионские истории, что якобы черепа до сих пор хранятся в частной коллекции в Америке, но не засвечиваются из каких-то хитрых соображений. Оптимисты верят, что где-то как-то коллекции рано или поздно “всплывут” (а может – всплывут и без особых кавычек, со дна моря, с борта потопленного транспорта), но, честно говоря, надежд на это мало. Правда, есть несколько прецедентов, когда вроде бы утерянные палеоантропологические находки бывали вторично открыты – Ле-Мустье II, Кзар-Акил, Комб-Капель, – так что все небезнадежно.
Особый случай обретения уникальной палеоантропологической находки – Самбунгмачан 3. Эта черепная коробка уникальной сохранности была найдена фермерами где-то на берегу яванской реки Соло, скорее всего, еще в 1977 году. До 1997 года она меняла хозяев, после чего была контрабандой вывезена в США, где в 1999 году ее выставили в Нью-Йорке на Манхэттене в витрине магазина природных диковин с характерным названием Maxilla & Mandible (не совсем “Рога и копыта”, но близко к бессмертному идеалу, Остап Бендер одобрил бы). У антропологов Эрика Дельсона и Яна Таттерсалла глаза на лоб полезли, когда они увидели, что продается в качестве антиквариата. После выяснения всех обстоятельств и подробного изучения череп был торжественно возвращен на Яву. В популярных публикациях, освещавших эту историю, Самбунгмачан 3 был даже в шутку назван Homo erectus newyorkensis.
Вообще таких странных событий вокруг находок происходит множество.
Эжен Дюбуа, найдя своего драгоценного питекантропа, в 1895 году вернулся с Явы в Европу и, воодушевленный величием открытия и горя желанием поведать о нем миру, поехал завоевывать Париж. Именно там в то время водились самые породистые антропологи, да и родная Голландия недалеко. В Париже он пошел с антропологом Леонсом Мануврие в ресторан, прихватив с собой кости из Триниля в саквояже. После ресторана они отправились гулять по городу, и можно представить себе размер мурашек, побежавших по спине Э. Дюбуа, когда он осознал, что забыл саквояж в ресторане! К счастью, никто его не тронул, кости вернулись в стихию бурных ученых баталий, развернувшихся вокруг “обезьяночеловека прямоходящего”.
Кстати, совершенно аналогичная история случилась позже с Беби из Таунга: в 1931 году Дора – жена Раймонда Дарта – забыла ящик с черепом в багажнике такси в Лондоне. К счастью, сознательный таксист сдал забытую вещь в полицейский участок, где его и разыскали спохватившиеся Дора и антрополог Эллиот Смит.
Архантропы пользовались разными вариантами галечной и ашельской культур. Многие архантропы изготовляли орудия олдувайского типа, но прогресс шел своим чередом. Как уже говорилось, еще 1,5 млн лет назад в Восточной Африке появились первые ашельские ручные рубила. Кроме них, вошли в моду кливеры – орудия в виде топора с широким рабочим краем. Новая технология не слишком быстро, но все же распространялась по миру.
Древнейшие ручные рубила в Европе найдены на испанской стоянке Солана дель Замборино – их сделали 900 тыс. лет назад (Scott et Gibert, 2009). Показательно, что в Африке технология изготовления рубил появилась на 700 тыс. лет раньше, а люди пришли в Европу намного позже изобретения рубил в Африке, но за 300–400 тыс. лет до распространения рубил по Европе. Получается, что Евразию начали осваивать далеко не самые технологически продвинутые и даже, прямо скажем, отсталые группы. Также либо европейские эректусы заново изобрели рубила, что маловероятно, либо были новые миграции, что мы пока не можем доказать или опровергнуть за малочисленностью антропологических находок, либо идеи и технологии распространялись по популяциям путем культурного обмена.
Однако далеко не все группы прониклись торжеством прогресса. На протяжении всего времени существования архантропов оставались ретрограды, упорно коловшие самые примитивные чопперы и отказывавшиеся напрячься и изготовить приличное рубило. Местами это объясняется просто доступностью каменного сырья. Геологически планета устроена таким образом, что в западной части Евразии выходы качественного кремня на поверхность не такая уж редкость, а вот в восточной их откровенно не хватает. Граница – так называемая “линия Мовиуса” – проходит по горным областям центра континента и ныряет в Индийский океан примерно в районе современной Бангладеш. Культуры западной половины Ойкумены часто содержат ручные рубила, культуры восточной обычно их лишены. Бедным жителям Восточной Азии приходилось колоть роговик и песчаник – не самые лучшие породы для изготовления орудий. Мало того что они бьются как попало, а не как хочется мастеру, так еще и крошатся при использовании. Поэтому орудия азиатских архантропов, да и более поздних гоминид обычно выглядят весьма аморфными, прямо скажем – корявыми. Многим в голову приходили мысли, что азиатские архантропы были биологически более примитивными, что им не хватало способностей для изготовления нормальных рубил, но дело скорее все же в материале, а не недоразвитости и эволюционной отсталости.
Впрочем, не всегда картина объясняется сырьем. В некоторых областях кремень или обсидиан были, а жители все равно предпочитали делать орудия олдувайского типа. Тут уж действительно стоит задуматься – не развитие ли мозга тому причиной? Впрочем, этнографическая практика показывает, что в одной культуре вполне могут уживаться самые разные технологические уровни. Известно, что австралийский абориген в случае, когда надо было быстро решить простую хозяйственную проблему (например, срочно разделать кенгуру), мог парой-тройкой ударов изготовить вполне себе галечный чоппер и был этим абсолютно удовлетворен. Но если тот же человек находил кусок горного хрусталя и душа просила высокого, он мог днями и чуть ли не неделями сидеть и творить наконечник – произведение искусства: идеальной формы, абсолютно симметричный, с филигранными сколами.
Вообще, ашель не слишком разнообразен. Ручные рубила, сделанные в Африке, на Ближнем Востоке, в Европе или Азии, выглядят порой как штампованные. Конечно, археологи выделяют разные хронологические и географические варианты, но отличия их не чересчур выразительны. Многие исследователи даже считают ашель временем своеобразного застоя, когда культура якобы могла не меняться буквально сотни тысяч лет. С другой стороны, эта удивительная унификация сама по себе, во-первых, отличает ашель от галечной индустрии, где орудия были заметно более аморфными и случайными по форме, а во-вторых, говорит о совершенстве ашельской культуры. В разных климатических условиях, в разных ландшафтах, на разных материках одни и те же универсальные орудия полностью покрывали все потребности архантропов. Коли уж люди поколение за поколением были вполне удовлетворены уровнем своей культуры и не стремились как-то особо ее разнообразить – это ли не идеал, это ли не стабильность!
Впрочем, всегда стоит помнить, что мы можем изучать только одну сторону – каменную. Изучение фитолитов – микроскопических окаменелостей растений – из микротрещин на рубилах показывает, что чаще всего эти орудия использовались для обработки древесины. Но как выглядели эти деревянные предметы, для чего использовались – никому неизвестно.
Да и каменные рубила были все же не абсолютно одинаковы в разных местах. Со временем росло совершенство в их изготовлении.
Уголок занудства. Ашель удобно разделять на три или четыре этапа. С 1,7 до 1,4 млн лет назад ашель только зарождался, подавляющая часть комплексов определяется как развитый олдован B. Ранний ашель длился с 1,4 до 1 млн лет назад, орудия этого этапа несколько корявы, но могут быть двухмерно симметричны. За пределами Африки ранний ашель неизвестен, а в Африке вместе с галечной культурой обычно объединяется под названием “ранний каменный век”. Средний ашель – 1–0,5 млн лет назад – в Европе раньше назывался ранним, в литературе можно встретить также его устаревшие синонимы: аббевиль, абвиль и шелль; в это время появляются орудия с трехмерной симметрией. Поздний ашель – 0,5–0,1 млн лет назад – заметно разнообразнее; орудия этого этапа сделаны очень качественно, иногда, можно сказать, совершенно.Несколько сотен тысяч лет понадобилось, чтобы люди добрались до более-менее северных областей. Временем 700 тыс. лет назад датированы древнейшие отщепы и прочие следы пребывания человека в Англии на стоянке Пэкфилд (Parfitt et al., 2005). Хейзборо, вероятно, древнее, но там датировки уж очень неточные. А уже полмиллиона лет назад в Боксгроуф жили люди, приспособленные к холодам физически. В этом английском местонахождении найдена большая берцовая кость, пропорции и строение стенок которой свидетельствуют об адаптации к ухудшающемуся климату начинающегося ледникового периода (Trinkaus et al., 1999b). До крайности интересно, что древнейшие северные стоянки не сохранили следов использования огня, первые жаркие костры разгорелись в Европе и Азии только во времена Homo heidelbergensis.
Часто в литературе в качестве удивительного примера человеческого упорства приводится факт, что в Чжоукоудяне отложения золы достигали толщины аж почти семь метров! На этом основании много было сказано про то, что использовать огонь синантропы уже умели, а добывать – нет, почему и жгли костры непрерывно буквально в течение тысяч лет подряд. Особенно развесистые выводы строили на этом факте философы; более того – они и ныне продолжают их строить. Между тем специальные исследования показали, что, хотя в Чжоукоудяне и есть отдельные следы использования огня, все же мощные многометровые пеплоподобные прослойки образовались из перегнившей растительности, занесенной в трещины скалы дождевыми потоками, и не имеют никакого отношения к деятельности людей (Goldberg et al., 2001). Перегнивший ил внешне не очень-то отличается от пепла, углерод – он и есть углерод, так что ошибка первых исследователей вполне понятна. На то и прогресс науки, чтобы с помощью новых методов уточнять и исправлять старые выводы. Тем забавнее повторение байки про тысячелетние костры синантропов в современных книгах и даже учебниках.
Мы не так много знаем о жизни Homo erectus'ов. Но некоторые африканские стоянки дают возможность приподнять завесу тайны. Например, в локальном местонахождении DE/89 кенийского Олоргесайли на небольшом пятачке найдены останки полусотни гелад Theropithecus oswaldi и полтысячи рубил, а также валунчики лавы, вроде бы принесенные сюда из окрестностей. Не очень ясно, что здесь произошло. Некоторые археологи полагают, что тут имело место избиение стада гелад охотничьей группой архантропов. Не исключено, впрочем, что дело не в охотничьих талантах эректусов, а в водных потоках, бурно проносившихся по оврагам и собиравших в кучу все подряд. Другие стоянки из Олоргесайли позволяют оценить численность групп – от четырех до тридцати человек – и длительность их проживания на одном месте – от нескольких дней до двух-трех месяцев. Некоторые стоянки посещались неоднократно; видимо, они были удобно расположены – рядом с водой, где было больше животных или, напротив, меньше хищников.
Отдельный вопрос, который мучает некоторых исследователей, – количество орудий на стоянках. В некоторых местах рубил и прочих изделий найдены буквально тысячи, они могут покрывать некоторые участки сплошным ковром. Возникает вопрос – зачем? Зачем было делать новые и новые рубила (а ведь это развлечение тоже непростое), если буквально под ногами валялись уже готовые и точно такие же? Кое-кто даже рассудил, что сия странность – свидетельство неразумности архантропов, дескать, изготовление орудий у них было на уровне инстинкта, как строительство хаток у бобров, шалашей у шалашников или выдалбливания дупел дятлами. Дятел, как известно, не может не долбить… Однако мы можем недооценивать уровень архантропов. Может быть, они не хотели пользоваться брошенными – грязными – рубилами. Сейчас тоже в помойных ящиках встречаются вполне годные предметы. Отчего бы любителям рассуждать об инстинктивности эректусов не покопаться там и не осчастливиться найденными сокровищами? То-то же. Предки были тоже людьми по-своему интеллигентными, в мусоре не рылись и старьем брезговали. Приличные люди делают себе рубила сами.
Приходи сюда лечиться… И корь, и дифтерит у них, И оспа, и бронхит у них, И голова болит у них, И горлышко болит. Жизнь архантропов была нелегка. Это очевидно следует из их патологий. Уже поминавшийся череп из Гунванлина имел странные деформации правого надбровья – следы травмы или инфекции (Caspari, 1997). Некие следы лизиса кости отмечены и на черепах Синантропа XII и Бодо. Внутренняя сторона женского черепа Сангиран 2 с Явы поражена разрастаниями кости, появившимися, вероятно, из-за гормональных нарушений (Anton, 1997). Не исключено, что питекантропша говорила хриплым басом и почесывала бородку. Одна из жертв в Гран-Долине – ATD 6-17a – страдала от болезни правого нижнечелюстного сустава. Бедренная кость классического питекантропа из Триниля имеет мощное разрастание в верхней трети. Советский палеопатолог Д. Г. Рохлин предположил, что несчастный болел оссифицирующим миозитом (Рохлин, 1965), а позже было выдвинуто предположение, что дело в отравлении фтором (Soriano, 1970). Получить он его мог из-за извержения вулкана: ядовитый вулканический пепел оседал на фрукты и забивался во все поры, а питекантроп простодушно травился им. Не совсем аналогичные, но близкие повреждения известны, например, на костях овец из Исландии, возникшие после извержения вулкана Гекла 1845 г. Не исключены и другие причины недуга питекантропа. Как бы то ни было, бедняга явно ходил с большим трудом. Еще интереснее китайский череп Таншань I (580–620 тыс. лет назад): его лобная кость основательно изъедена некой болезнью (Shang et Trinkaus, 2008). Вообще, такое поражение очень похоже на сифилитическое, однако отсутствие деформаций лица и других частей черепа делает более вероятными другие сценарии – широкую давящую травму, частичное скальпирование или мощный ожог. Что бы это ни было, внешность Таншаня I наверняка впечатляла. Другая напасть свалилась на голову человека из Кокабаса в Турции (490–510 тыс. лет назад): на внутренней стороне его лобной кости обнаружены вроде бы туберкулезные поражения (Kappelman et al., 2008), хотя этот диагноз еще требует подтверждения (Roberts et al., 2009). Череп Сале 1 из Марокко (389–455 тыс. лет назад) искорежен куда основательнее, у него напрочь перекошен затылок (Hublin, 1994). Такая деформация могла быть следствием внутриматочной или родовой травмы. В итоге человек имел слабую шейную мускулатуру и с трудом двигал головой. Из-за этого же его лицо и нижняя челюсть были асимметричны. Впрочем, это не помешало прожить марокканскому “атлантропу” до сорока с лишним лет – едва ли не рекордного для архантропов возраста. Челюсть из Мауэра – та самая, образцово гейдельбергская, – имеет прямо-таки букет болезней (Czarnetzki et al., 2003). Некоторые ее “архаичные” особенности, описывавшиеся даже как “гориллоидные”, являются на самом деле следствием болезней. Так, крайняя ширина восходящей ветви, малая глубина нижнечелюстной вырезки, низкий, уплощенный и широкий венечный отросток – результат неправильного направления и прикрепления височных мышц на венечном отростке. Кроме того, Мауэр мучился от периодонтита, остеопороза, начинающегося артроза, артролита (суставного камня) и вызванного травмой рассекающего остеохондроза левого мыщелка. Короче, челюсть у него болела. Некоторые архантропы, впрочем, пытались заботиться о своем здоровье. На зубах многих древних людей – Omo L 894–1 и Дманиси D2700/2735, из Гран-Долины и Сельунгура, синантропа PA86 и Чизиншан, и уж тем более неандертальцев с кроманьонцами, встречаются характерные полированные желобки, образовавшиеся из-за использования палочек-зубочисток (Sun et al., 2014; Turner, 1988). От ближайших больниц и докторов горемык отделяли сотни тысяч лет, они болели, но продолжали эволюционировать.Глава 6. Homo heidelbergensis: всеобщий предок или абориген Европы?
Около полумиллиона лет назад морфологические изменения, происходившие с эректусами, накопились в достаточной мере, чтобы мы могли выделить новый вид – “человека гейдельбергского” Homo heidelbergensis. От образцовых эректусов гейдельбергенсисы отличаются прежде всего крупным мозгом: для них уже не редкость размеры как у современного человека – 1025–1450 см³. Правда, форма мозга еще заметно отличалась от нашей. Соответственно изменился и череп: мозговая коробка в целом и лоб в частности стали более высокими и выпуклыми, затылок округлился, а его рельеф заметно уменьшился, так что характерное для архантропов выступание затылка треугольником назад если и не исчезло совсем, то стало редкостью. Особенно продвинутой выглядит височная кость. Например, у человека из Брокен-Хилла она почти не отличается от современного варианта. Если бы от этого черепа сохранилась только она, его без особых колебаний определили бы как Homo sapiens. Но гейдельбергенсисы – это еще не мы. Прогресс по черепу почему-то шел сзади и снизу, оставляя первобытный анфас нетронутым. Достаточно взглянуть на переднюю часть черепа гейдельбергенсисов, чтобы понять, почему их выделяют в особый вид. Надбровный рельеф их рекорден. Тот же Брокен-Хилл имеет едва ли не самое мощное надбровье из всех ископаемых гоминид. Если бы от него осталась только лобная кость, он наверняка был бы распознан как Homo erectus. Есть, конечно, тонкое отличие: у эректусов внутренняя стенка черепа за надбровьем далеко отстоит назад, так что лобные доли мозга оказываются как бы отодвинутыми, а у гейдельбергенсисов надбровный валик снаружи очень мощный, но его задняя стенка сдвинута вперед, отчего лобные доли оказываются более крупными и выпуклыми.

Рис. 24. Черепа Брокен-Хилл (а), Ндуту (б) и Гуомде (в).
Лицевой скелет гейдельбергенсисов очень велик, но все же заметно уступает значениям архантропов. Тут мы видим достаточно плавный ряд изменчивости к последующим гоминидам – палеоантропам.
Посткраниальный скелет гейдельбергенсисов сейчас очень хорошо изучен, в основном благодаря бесчисленным находкам из Сима-де-лос-Уэсос. Замечательно, что он почти не отличается от нашего. Некоторая специфика, конечно, имеется, ведь у европейских гейдельбергенсисов уже появлялись признаки специализации, ставшие потом визитной карточкой неандертальцев. Но, строго говоря, отличия от современных людей скорее статистические: у гейдельбергенсисов все кости несколько массивнее, толще, с более мощными стенками, хотя при желании такой вариант можно найти в любой нынешней популяции.
Размеры тела – рост и вес – гейдельбергенсисов принципиально не отличались от наших, некоторые были даже рослыми.
Как это принято в палеоантропологии, существует несколько взглядов на то, кого вообще считать гейдельбергенсисом. Голотипом вида послужила челюсть из Мауэра под Гейдельбергом (Schoetensack, 1908). Ныне понятно, что она заметно древнее большинства других находок, относимых к этому виду. По-хорошему, ее бы стоило причислить к эректусам, а для гейдельбергенсисов подобрать новое название из сонма уже имеющихся. По правилу приоритета лучше всего подходит Homo rhodesiensis или Homo steinheimensis – в зависимости от того, считать ли их голотипы – Брокен-Хилл и Штейнгейм – относящимися к одному виду. С другой стороны, зубы челюсти из Мауэра весьма прогрессивны и больше напоминают зубы неандертальцев, многие “чересчур архаичные” черты, как уже упоминалось, могут быть следствием патологии, а датировка челюсти, найденной в начале века в песчаном карьере, пока не может быть установлена как совершенно достоверная. Так что антропологи, как обычно, понимают, о чем идет речь, и не спешат менять номенклатуру.
Гораздо важнее вопрос – можно ли всех людей этого временного этапа относить к одному виду? Ведь с гейдельбергенсисов начинается явное разделение популяций разных материков на специфические варианты. В Африке совершенно явно вырисовывается линия к сапиенсу, в Европе и Западной Азии – к неандертальцам, а восточноазиатские гоминиды, отгороженные заоблачными горами, существовали сами по себе, превращаясь, по-видимому, в денисовцев. И тут в очередной раз в полный рост встает проблема необходимости чертить резкие грани в непрерывном потоке изменчивости. Сколько надо миллиметров или статистических “сигм”, чтобы считать ископаемые популяции самостоятельными видами или подвидами? А ведь в большинстве случаев у нас нет популяций, а лишь отдельные, обычно еще и фрагментарные, кости.
Все же представляется, что на уровне препалеоантропов – так удобно называть гоминид этого этапа, чтобы избежать латыни, – географические варианты разошлись еще не настолько сильно, чтобы давать им множество видовых наименований. Мы знаем, что дифференциация начиналась, мы видим ее ход, что нам еще надо?
Таким образом, хронологические рамки вида в самом широком диапазоне можно определить с 700 до 130 тыс. лет назад, а в узком – с 450 до 200 тыс. лет назад.
Африканские препалеоантропы известны по целому ряду замечательно полных образцов. Самый известный из них, без сомнения, – череп из Брокен-Хилла, или Кабве, найденный в шахте свинцового рудника еще в 1921 году на территории современной Замбии, а тогда Северной Родезии. Его первобытный облик впечатлил первооткрывателей настолько, что было введено название Homo rhodesiensis (Woodward, 1921), которое после даже было преобразовано до Cyphanthropus rhodesiensis. Первые датировки Брокен-Хилла были определены всего в 30–40 тыс. лет, так что в последующем он часто упоминался как “тропический неандерталец”. Успел он прославиться и как предок негроидов. Однако ныне ясно, что его реальный возраст – 130–300 тыс. лет назад, так что хотя он вполне может быть предком негроидов, но в равной степени – и всех других рас планеты. Сопоставление же его с другими препалеоантропами на современном уровне показывает, что Брокен-Хилл – весьма образцовый гейдельбергенсис: с архаичным лицом и куда более прогрессивным мозговым отделом черепа. Кстати, размер его мозга – 1285–1325 см³.
Минутка фантазии. В левой височной кости Кабве зияет круглая дырка. Это дало повод некоторым восторженным товарищам утверждать, что тут мы имеем дело с огнестрельным ранением. Кстати, и противоположной височной кости нет – она отломана, чтобы скрыть выходное отверстие? Стало быть, череп совсем свежий! Тем более кости людей почти не минерализованы, в отличие, кстати, от звериных: для отвода глаз и сокрытия преступления останки бедняги были подкинуты в шахту? Выходит, некий белый охотник в белых шортах и белом пробковом шлеме из своего черного-пречерного ружья чуть ли не в начале XX века застрелил последнего черного “тропического неандертальца”?! Воистину черный день для палеоантропологии! Сколько мы могли бы узнать, будь в нашем распоряжении не череп, а живой реликт минувших эпох! Будьте прокляты, расисты и колонизаторы! Да, кстати, и ужасная богомерзкая дарвиновская гипотеза рушится в тартарары из-за этого факта! Но стоп… Может, стоит присмотреться к отверстию получше? И что же это – неужели следы заживления (Montgomery et al., 1994)? После сквозного пулевого ранения в висок? Видимо, дело все же не в пулях, а в ударе копьем (Prise et Molleson, 1974). Покушение не удалось: ни на древнего человека – он таки выжил, ни на Ч. Дарвина – он тут вообще ни при чем. Вот уж что в действительности удивительно в человеке из Брокен-Хилла – это количество его болезней. В нескольких местах его височной кости, кроме травмы, есть следы какого-то воспаления, возможно мастоидита, в том числе патологически изменено внутреннее ухо; вероятно, бедняга был совершенно глух. Еще хуже дело обстоит с его зубами: из тринадцати сохранившихся одиннадцать поражены кариесом, да не слабо, а по полной программе, так что в верхней челюсти созрел немалый абсцесс. По всей вероятности, болести Кабве связаны с отравлением тяжелыми металлами, поскольку почва в этой местности перенасыщена свинцом и цинком – неспроста же стали разрабатывать тут свинцовый рудник (Bartsiokas et Day, 1993). Выходит, то, что портило жизнь несчастному, стало залогом его посмертной славы.Брокен-Хилл – не единственный африканский препалеоантроп. Отличные черепа найдены в эфиопских местонахождениях Омо (Омо I и Омо II; 195 тыс. лет назад) и Херто (три черепа; менее 160 тыс. лет назад), суданском Синга (145,5 тыс. лет назад), кенийских Гуомде (KNM-ER 3884; 272–279 тыс. лет назад) и Элие-Спрингс (KNM-ES 11693), танзанийских Лаэтоли (Нгалоба LH 18; около 200 тыс. лет назад) и Эяси (более 130 тыс. лет назад), марокканском Джебель-Ирхуд (Джебель-Ирхуд I и Джебель-Ирхуд II; 160 тыс. лет назад), южноафриканском Флорисбад (259 тыс. лет назад). И это не говоря о более фрагментарных находках из этих же и других местонахождений. Все вместе они представляют замечательный последовательный ряд эволюционного превращения из страхолюдного эректоидного варианта типа KNM-ER 3733 и Бодо в более-менее сапиентный и, наконец, совсем сапиентный. У всех них достаточно продвинутая мозговая коробка с выпуклым лбом сочетается с мощным надбровьем, выдающимся затылочным рельефом и тяжелым лицом. На нижней челюсти уже мог появляться подбородочный выступ, о чем мы знаем по находке Омо I, хотя чаще его все-таки не было. Почти все перечисленные находки регулярно упоминаются как “архаичные сапиенсы” или “анатомически современные люди”. Более того, в сапиенсы иногда записывается даже череп из Ндуту в Танзании с датировкой 350 или даже 490–780 тыс. лет назад.

Рис. 25. Черепа Нгалоба (а), Флорисбад (б), Джебель-Ирхуд I (в) и Херто (г).
При чтении названия Homo sapiens в применении к этим людям стоит помнить три вещи. Во-первых, на фоне современных людей они все же основательно выделялись бы. То есть если в аудиторию среди студентов посадить, скажем, человека из Херто (помывши, постригши и причесавши), то на него, может быть, немножко бы покосились, но шарахаться бы, наверное, не стали. А вот если бы одну сторону той же аудитории заселить студентами, а другую – препалеоантропами, то обе половины уже пялились бы друг на друга с большим удивлением.
Во-вторых, на названия, приклеивающиеся к конкретным находкам, немало влияет просто сама история палеоантропологии. Например, череп из Ндуту был найден в 1973 году, когда пошла очередная волна объединительства. Многочисленные виды и роды отменялись (Э. Майр предлагал даже австралопитеков именовать Homo transvaalensis!), и логично, что все более-менее прогрессивные гоминиды, включая, кстати, и неандертальцев, автоматически заносились в Homo sapiens. Туда же попал и Ндуту. Когда же вновь накатило дробительство и новые находки, даже менее архаичные, распихивались увлеченными антропологами по своим видам, Ндуту уже прочно укоренился в сознании многих специалистов как сапиенс и продолжал цитироваться как представитель этого вида. Но морфология-то его не поменялась! И примитивные черты никуда не делись.
Кроме этого, порой сапиентность немало зависит от реконструкции и того, на чем акцентирует внимание тот или иной исследователь. Лучший тому пример – Омо I, чей череп, склеенный из множества нестыкующихся фрагментов, часто приводится в качестве самого древнего сапиенса, хотя реальная морфология не дает оснований для столь значимых заявлений. Скажем, высота его свода реконструирована такой несуразно огромной, какой вообще в природе не бывает, – в стремлении сапиентизировать предка реставраторы малость перестарались. Лучше оперировать достоверными фактами, благо их ныне хватает. Скажем, гораздо полнее сохранившаяся черепная коробка Омо II имеет массу примитивных черт и не выделяется из ряда прочих синхронных находок.
В-третьих, Homo sapiens необязательно значит “современный человек”. Если общевидовой комплекс африканских пре-палеоантропов вполне вписывается в расширенные рамки нашего вида, это не значит, что отдельные их черты не могли быть специфичными. Скажем, такие размеры надбровья и лица, как у тех же Ндуту или Брокен-Хилла, мы лишь с большим трудом сможем найти среди современных людей, а может быть – и вовсе не сможем. Выступающий затылок людей из Джебель-Ирхуда, Нгалобы и Эяси при желании можно обнаружить у наших современников, но нет такой группы, где бы такой “шиньон” был обычным – самым частым – состоянием. Но переход от плейстоценовых людей к нам слишком плавный, чтобы мы могли провести четкую границу: вот до сей поры это еще Homo erectus, а тут уже начинается Homo sapiens.
Уголок занудства. Череп из Кебибата, нижняя челюсть и лучевая кость из “Пещеры с очагом” очень архаичны и даже сторонниками теории раннего возникновения анатомически современного человека в Африке классифицируются как Homo rhodesiensis. Черепа из Кебибата и Эяси в некоторых деталях схожи с более древними азиатскими архантропами и архаичнее палеоантропов Европы и Ближнего Востока. Однако большинство признаков сближают их с ранними неандертальцами: это отсутствие собачьей ямки, большое небо, скошенность симфиза и двойное подбородочное отверстие нижней челюсти, большие размеры и строение зубов (например, тавродонтность моляров) на черепе из Кебибата, а также массивность костей, уплощенная форма черепа, маленькие сосцевидные отростки, шиньонообразный затылок и другие детали строения черепа из Эяси. Каких-либо очевидных более сапиентных признаков, чем у синхронных внеафриканских гоминид, на черепах из Кебибата и Эяси не обнаруживается. Зубы из Хэджес-Пунт по размерам и пропорциям больше похожи на зубы архантропов – Homo erectus и Homo heidelbergensis. Черепа Нгалоба LH-18, Синга, Флорисбад, Омо I и II, Джебель-Ирхуд I и Джебель-Ирхуд II описываются двояко – то как неандерталоиды, то как относительно сапиентные; в их строении еще очень много архаичных признаков: лоб покатый, надбровье мощное, затылок выступающий, часто шиньонообразный, стенки черепа толстые, лицевой скелет массивный. Часто именно эти находки привлекаются в качестве первых “несомненных Homo sapiens”. Надо признать, они имеют некоторое своеобразие в сравнении с азиатскими и европейскими находками, однако их “сапиентность” заключается скорее в отсутствии ряда специализированных признаков классических неандертальцев. Только вот сравнение африканских гоминид среднего неоплейстоцена с вюрмскими неандертальцами неправомерно, поскольку в промежутке времени от 400 до 130 тысяч лет европейские и азиатские гоминиды тоже не имели специализаций классических неандертальцев. Эволюционный уровень гоминид трех континентов оказывается, таким образом, примерно одинаковым – различаются лишь комбинации архаичных и прогрессивных признаков: например, шиньонообразная форма затылка фиксируется только у африканских гоминид среднего неоплейстоцена, тогда как у европейских и азиатских гоминид этого времени затылок более округлый.Дабы хоть как-то отразить переходный статус африканских препалеоантропов, антропологи иногда пользуются особыми названиями – Homo helmei для более древних или Homo sapiens idaltu для более поздних предков сапиенсов. Первое из этих названий в более заковыристой форме Homo (Africanthropus) helmei было предложено для черепа из Флорисбада (Dreyer, 1935), второе – для черепов из Херто (White et al., 2003). На самом деле, есть и другие исторические термины – Palaeoanthropus njarasensis (Reck et Kohl-Larsen, 1936) и Africanthropus njarasensis (Weinert, 1939), которыми был назван череп из Эяси, но их вспоминают гораздо реже.
Кстати, о человеческой сути… В эфиопском местонахождении Херто обнаружены два более-менее полных черепа, один разбитый и фрагменты нескольких других. Вертикальность боковых стенок черепа, высота лба, форма лица позволили описать их как сапиентные, но мощные надбровье и затылочный валик, размеры челюстей, общая массивность вынудили первооткрывателей добавить подвидовое название – Homo sapiens idaltu. Но морфология морфологией, а что мы знаем об интеллекте этих людей? Многочисленные орудия, собранные в тех же слоях, олицетворяют переход от ашельских ручных рубил к отщепам “среднего каменного века”. Но это тоже скучно – колотые камни есть где угодно. Гораздо интереснее, что на всех черепах из Херто обнаружены надрезки, сконцентрированные вокруг свода. Видимо, кто-то старательно перерезал мышцы основания черепа. Для чего это делалось? Как уже говорилось выше, многие археологи склонны считать, что подобные следы свидетельствуют об особой погребальной практике. Что ж, отчего бы и нет; все лучше, чем считать предков мясниками-головорезами, хотя, строго говоря, возможны самые разные объяснения. Есть факт, а есть интерпретации, дело ученого – не увлекаться и не сочинять слишком много. А правда никуда не денется – рано или поздно мы найдем способы узнать ее.В Азии гоминиды этапа препалеоантропов известны не очень хорошо. Но и тут есть на что посмотреть. Это прежде всего, конечно, черепа Лонтандун, или Гексьян (412 тыс. лет назад), Дали (260–300 тыс. лет назад) и Цзиньнюшань (280 тыс. лет назад) в Китае, Салхит в Монголии (для коего датировки нет, ибо он был найден при промывке золота в речном песке). По своей морфологии они выстраиваются в свою замечательную последовательность, которая лучше всего может быть проиллюстрирована объемами мозга: Гексьян – 1025 см³, Дали – 1100–1200 см³, Цзиньнюшань – 1260–1400 см³. Если первый из них еще не очень-то отличается от эректусов, то два последних часто описываются уже просто как сапиенсы. Конечно, не обошлось и без словотворчества, лексикон антропологов пополнился такими названиями, как Homo erectus hexianensis, Homo sapiens daliensis и Homo erectus jinniushanensis, но в настоящее время они основательно подзабыты. А зря! Ведь они являются наиболее вероятными приоритетными названиями для денисовцев. Китайские антропологи склонны рассматривать этих и некоторых других азиатских препалеоантропов как непосредственных предков современного человека, по крайней мере монголоидной расы. Было бы дело только в одной морфологии, с ними можно было бы с некоторым скрипом согласиться. Однако, учитывая новейшие данные по генетике современных популяций, кажется крайне маловероятным значительное участие потомков Дали и Цзиньнюшань в сложении Homo sapiens. Все же при желании можно углядеть в форме их надбровного валика и пропорциях скуловых костей черты, отличающие нынешних австралийских аборигенов – обладателей как раз мирового рекорда “денисовских генов”. Кроме прочего, нельзя забывать, что череп из Цзиньнюшаня реконструирован из множества обломков, а у Дали обломан низ верхней челюсти, отчего череп выглядит намного прогрессивнее, чем он был при жизни. Реконструкция же дает нам облик, удивительно похожий на Брокен-Хилла.
Другой претендент на звание денисовца – человек из местонахождения Нармада в Индии. Это, кстати, самый лучший потенциальный денисовец из всех, ведь путь из Африки в Австралию пролегал как раз тут; коли уж меланезийцы и австралийские аборигены получили где-то “денисовские гены”, то, возможно, как раз в Индии или Индокитае. Беда в том, что кости найдены в переотложенном состоянии, так что их датировка гуляет в более чем просторном интервале от 49 до 407 или даже 500–700 тыс. лет назад. Морфологически же череп из Нармады описывался как Homo erectus, но по большинству признаков заметно прогрессивнее этого вида. В принципе, он достаточно похож на человека из Дали. Крайне интересно, что ключица, найденная тут же, отличается крайне малыми размерами (Sankhyan, 1997). Рост должен был быть всего около 1,4 м – среди денисовцев были пигмеи?
В более южных регионах эволюция шла своим ходом и своими путями. Мы уже писали о Яве – заповеднике странных нгандонгцев, специализированных потомков яванских же питекантропов. Не исключено, что на соседних островах в будущем обнаружатся и другие странные люди. На Флоресе они уже обнаружились – про “хоббитов” речь уже шла и еще будет помянуто впереди.
Архантроп и море: Пэнху – человек с Тайваня. Прибежали в избу дети, Второпях зовут отца: “Тятя! тятя! наши сети Притащили мертвеца”. Люди заселяли просторы Евразии не хаотично. В их миграциях была простая, но закономерная логика. Как бы вы шли: напрямую по горам и долам, поперек рек и пустынь или вдоль берегов и долин? А какая самая простая дорога на любом материке? Конечно, берег моря! Так и двигались древние первооткрыватели. Проблема в том, что тогдашние береговые линии ныне оказались на дне океана. Где-то под коралловыми рифами и толщами ила лежат драгоценные скелеты, орудия, наверняка и целые стоянки. Но как вызволить их из владений Нептуна? Пока подводная археология развивается в полноценную отрасль археологии, остается уповать на везение. На сей раз удача подвалила тайваньским рыбакам; видимо, они выбрали удачное местечко в 25 километрах от берега в Тайваньском проливе около Пескадорских островов, или Пэнху (Chang et al., 2015). В первый раз закинули рыбари невод в синее море, пришел невод с травою морскою. Они в другой раз закинули невод, пришел невод с одною рыбкой. В третий раз закинули невод, и принесли сети не только рыбу, но и кучу костей. Среди мослов древних слонов, антилоп, кабанов, оленей благородных и Давида, диких лошадей, медведей и гиен нашлась и драгоценность – правая половина нижней челюсти гоминида. Челюсть преотличная! Правда, экзотические обстоятельства находки не позволяют даже условно оценить стратиграфическое залегание, о слоях и планиграфии местонахождения речь даже не идет. Но велика наука, и методов в ней не счесть. Во-первых, ассоциация и синхронность человеческой кости с останками ископаемых гиен (определенная по соотношению оксида фосфора и фтора с оксидом натрия) сама по себе показательна, ибо подвид Crocuta crocuta ultima жил в Юго-Восточной Азии только в промежутке от 170 до 8 тыс. лет назад. Интервальчик тоже, конечно, немалый, поэтому есть “во-вторых”. Во-вторых же, уран-ториевый анализ показал, что возраст ископаемых костей меньше 450 тыс. лет, а наиболее вероятно – 10–190 тыс. лет. Это, конечно, тоже широковато. В-третьих, можно рассматривать саму человеческую челюсть. А она весьма примечательна, так как из всех известных ископаемых гоминид Пэнху больше всего напоминает китайских Homo erectus и неандертальцев. Однако для первых у Пэнху вроде бы датировка маловата, для вторых – география не подходит. Челюсть большая, очень широкая, тяжелая, с рекордно толстым телом, низкой и широкой восходящей ветвью. Подбородочный выступ напрочь отсутствует. Многомерные анализы помещают Пэнху среди гейдельбергенсисов или даже эргастеров. Примерно о таком же родстве говорят размеры зубов, соответствующие ранним яванским и китайским эректусам, конкретно – из Лонтандуна (он же Гексьян). Но эректусы Сангирана имеют датировки до миллиона лет или даже больше, а Лонтандун – 412 тыс. лет. Если принять наиболее вероятную дату Пэнху, то она более чем вдвое моложе Лонтандуна. В это время в восточной части Азии жил только один вид гоминид с огромными зубами – денисовцы. А они, как известно из генетики, смешивались с древними сапиенсами, шедшими по берегу в сторону Сахула (то есть слитых воедино Новой Гвинеи и Австралии). Тайвань, правда, лежит дальше предполагаемого пути предков папуасов и аборигенов, но ведь миграции совершались не по спутниковому навигатору и не по утвержденному туристическому маршруту, а денисовцам, раз уж они жили на Алтае и где-то на берегах Индийского океана, никто не мешал расселиться и дальше – на берега Южно-Китайского моря. Неужели мы получили, наконец, возможность взглянуть хотя бы на волевой недоподбородок денисовца? Есть одна проблема: от денисовцев нам известны только фаланга и два верхних зуба, а около Тайваня найдена нижняя челюсть. Авторы открытия тем не менее попытались сравнить их косвенным образом: коли Пэнху похож на сангиранцев и китайских эректусов, можно сравнить их верхние зубы с денисовцами. Сходство действительно получается близким. Но, понятно, тут мы вступаем на путь догадок, так что без коронной фразы о необходимости получения большего количества материала не обошлось. Что ж, пожелаем тайваньским рыболовам: ловись челюсть большая и маленькая! Тем более всем ясно – где нижняя челюсть, там должна быть и верхняя, а где верхняя – там и череп…В Европе гейдельбергенсисов найдено больше, чем где бы то ни было. Араго, Петралона, Штейнгейм, Эрингсдорф, Сванскомб, Рейлинген – это все незабвенная классика антропологии. С 1976 года и по настоящее время идут раскопки в Сима-де-лос-Уэсос в испанской Атапуэрке – бездонной кладовой среднего плейстоцена, уже давшей науке несколько тысяч костных фрагментов от трех десятков индивидов. Никакому Аладдину не снились такие чудеса, что хранятся в этой сказочной пещере. Сим-сим открылся и осчастливил палеоантропологов на долгие годы вперед. Богатства, конечно, не могут просто так даться в руки: с одной стороны, материалы из Атапуэрки невероятно богаты, тут сохранились несколько целых скелетов, с другой стороны, кости разбиты на мелкие кусочки и безнадежно перемешаны. Но испанские антропологи – это вам не королевская конница и не королевская рать. Терпение и труд, как всем известно, скелет соберут. Благодаря этим и другим находкам мы знаем о гейдельбергенсисах больше, чем о большинстве других ископаемых видов людей.

Рис. 26. Черепа Араго (а), Петралона (б) и Штейнгейм (в).
Крайне интересно, что в Европе, вероятно, могли сосуществовать препалеоантропы нескольких различающихся вариантов. Скажем, Петралона из Греции, имеющая датировку всего 150–250 тыс. лет назад, выглядит архаичнее, чем вдвое более древний – 450 тыс. лет назад – Араго. Весьма примитивны не чересчур древние фрагменты черепов со стоянок Бильцингслебен в Германии (412 тыс. лет назад) и Вертешселлеш в Венгрии (185–210 тыс. лет назад). Впрочем, биологический прогресс не мог полностью обойти этих людей. Конечно, их надбровья похожи на эректусов, но надбровные валики характеризуют и других препалеоантропов. Затылок у людей из Бильцингслебена фактически не отличается от варианта классических архантропов, тогда как у Вертешселлеша уже больше похож на образцовых гейдельбергенсисов. Размер мозга был тоже уже вполне приличный – около 1200 см³ у Бильцингслебена и 1400 см³ у Вертешселлеша.
Останки из Сванскомба (380–400 тыс. лет назад), напротив, описывались как необычайно прогрессивные, отчего они даже получили название Homo sapiens protosapiens (Montandon, 1943). Предполагалось, что Сванскомб, Штейнгейм и люди из Фонтешевада представляют собой продвинутую линию европейских жителей – предков сапиенсов, существовавших одновременно с пращурами неандертальцев.
Можно было бы еще долго играть в увлекательную игру “примитивный – прогрессивный”, однако у нас есть серия из Сима-де-лос-Уэсос. Черепа из этой пещеры замечательнейшим образом перекрывают размах изменчивости по всем прочим гейдельбергенсисам Европы, доказывая, что разница между ними – возрастная, половая и индивидуальная, но не таксономическая. Так, черепа 4 и 15 похожи на Петралону, черепа 5 и 17 – на Араго XXI, череп 6 – на Штейнгейм, череп 13 – на Эрингсдорф, а череп 14 выглядит весьма современно, в основном за счет детского возраста да еще патологии – слишком раннего срастания теменной и затылочной костей, отчего череп не мог расти в длину. В целом же люди из Сима-де-лос-Уэсос занимают промежуточное положение между заметно более примитивными архантропами типа Гран-Долина и более поздними и специализированными неандертальцами. Например, форма надбровного рельефа у уэсосцев скорее эректоидная, но уменьшенная, у многих затылок выступает в виде “шиньона”, выражен “среднелицевой прогнатизм”, то есть средняя часть лица выступает вперед, – а это типичные неандертальские черты, только выраженные в не слишком резкой форме.

Рис. 27. Череп Сима-де-лос-Уэсос.
Первоначально останки из Сима-де-лос-Уэсос получили датировку порядка 325 тыс. лет назад, потом их неожиданно удревнили аж до 600 тыс. лет назад с минимальной возможной датой в 530 тыс. лет (Bischoff et al., 2007), но в конце концов исследователи сошлись на 427 тыс. лет назад (Arnold et al., 2014) – самое актуальное для гейдельбергенсисов время.
Многочисленные останки из Сима-де-лос-Уэсос представляют образцовую палеопопуляцию – группу людей, живших примерно в одно время. Благодаря этому мы можем узнать много интересного. Например, определить демографические показатели. Останков детей тут не так уж много, большая часть костей принадлежит подросткам в возрасте от 12 до 20 лет, несколько меньше людей старше двадцати. Продолжительность жизни не превышала 35 лет. Судя по такому распределению, интервал между родами составлял 3–3,5 года. Конечно, преобладание подростков несколько подозрительно – ведь у современных людей это самый живучий возраст. Если уж человек пережил детство, значит, он здоров, с большой вероятностью переболел всем чем можно и его иммунитет наиболее силен; после вилочковая железа резко уменьшается, и все показатели здоровья помаленьку падают. Подростки к тому же еще не занимаются опасной взрослой деятельностью, у них меньше риск погибнуть, например, на охоте. С другой стороны, у подростков нет опыта, зато много нахальства, самоуверенности и бессмысленной отваги, а у первобытных людей взрослой деятельностью могли начинать заниматься сразу после младенческого возраста. Таким образом, странное возрастное распределение в Сима-де-лос-Уэсос может либо быть следствием гибели массы людей из-за какой-то катастрофы – тогда оно отражает не образ жизни, а реальное соотношение возрастов в “живой” популяции; либо же образ жизни гейдельбергенсисов и возрастные роли существенно отличались от нынешних.
Особенно здорово переходность от гейдельбергенсисов к неандертальцам выявилась при исследовании скелета из Альтамуры. Тут еще в 1993 году в узкой трещине глубокой пещеры был найден почти целый скелет, имеющий датировку от 130 до 172 тыс. лет назад. Однако выковырять кости из сталактитов оказалось чрезвычайно сложной задачей. Пока вытащен только один обломок лопатки (Lari et al., 2015). Его форма дюже похожа на вариант классических неандертальцев – люди из Крапины и то примитивнее. Впрочем, намного важнее то, что удалось расшифровать небольшой кусок мтДНК, который у альтамурца оказался образцово неандертальским. К сожалению, его невозможно сравнить с имеющейся мтДНК людей из Сима-де-лос-Уэсос (напомним, она почти “денисовская”), так как у последних именно этот участок сохранился очень плохо. Но в совокупности все это значит, что неандертальский комплекс в целом уже вполне был развит более 130 тыс. лет назад.
Мала Баланика, да споров много. В последнее время появилось много данных и размышлений о разнообразии древних человеческих групп. Экзотические флоресские “хоббиты” и загадочные алтайские денисовцы бередят воображение антропологов. Однако, оказывается, необязательно слишком удаляться из, казалось бы, давно и подробно обследованной Европы, чтобы найти что-то оригинальное. Статья группы сербских археологов и антропологов, опубликованная в одном из номеров Journal of Human Evolution за 2011 г., посвящена именно этой теме (Roksandic et al., 2011). В сербской пещере Мала-Баланика был найден обломок левой стороны нижней челюсти BH-1 с тремя молярами – находка хорошая, но, на первый взгляд, не самая многообещающая. Подробнейшее датирование дало наименьший радиометрический возраст 113+72/−43 тыс. лет назад – порядок возраста ранних неандертальцев из Крапины. Археологическое сопровождение оказалось весьма скудным – всего 102 артефакта шарантского мустье, выполненных без техники леваллуа. Ретушированные артефакты к тому же составили всего 26,7 % коллекции. Следов костяных орудий или тем более искусства нет и в помине. В общем, жили просто, без затей… Вроде можно было бы констатировать очередного неандертальца, ан нет! Кластерный анализ 16 признаков (никогда не устану удивляться, как много можно выжать из самого маленького обломка кости!) тела нижней челюсти показал, что BH-1 больше всего похож на архантропов, в том числе самых ранних, а вовсе не на неандертальцев. Несуразно архаичное строение! Ближайшим сходством с BH-1 обладают Сангиран 1b, Атапуэрка, Гран-Долина ATD6–96, Тернифин 2, несколько меньшим – Дманиси D211, KNM-ER 992, дальше идут синантропы, Араго, Мауэр, Монморен, прочие Дманиси и Тернифины. Неандертальцы резко выделились в самостоятельный кластерный “куст”. Показательно, что в “куст” архантропов затесался Баньолас, а в “куст” неандертальцев – Атапуэрка Сима-де-лос-Уэсос AT-888 и Эрингсдорф F. Последние два всегда, кстати, рассматривались как непосредственные предки неандертальцев. Конечно, кластерный анализ – штука хитрая, работает по принципу “алгоритм что дышло – куда повернешь, туда и вышло”, да и индивидуальную изменчивость никуда не денешь. Но в свете последних датировок некоторых показательных находок картина вырисовывается интересная. Накапливается все больше данных, что в Европе даже в самые что ни на есть неандертальские времена жили и другие люди. Идея, в общем, не новая, Г. Валлуа еще полвека назад доказывал синхронное существование в Европе двух линий; только вот второй линией, наряду с неандертальской, у Г. Валлуа были “пресапиенсы”, а на самом деле обнаруживаются еще более архаичные, примитивные и вообще низколобые, мордастые и небритые персонажи. Видимо, на просторах Европы неандертальцы были самыми продвинутыми гражданами, а по углам таились древние пережиточные архантропы. В их число, видимо, попадает Чепрано, недавно получивший новую датировку 385–430 тыс. лет назад (Manzi et al., 2010), а также помянутый выше Баньолас – 66±7 тыс. лет назад (Grün et al., 2006). Морфологически они соответствуют архантропам, а датировки имеют сравнительно поздние. Впрочем, ничто не ново под Луной. Пафос великого открытия всегда несколько тускнеет, стоит лишь вспомнить историю вопроса. Старые находки из Вертешселлеша и Бильцингслебена всегда были образцом пережиточности европейских архантропов, об этом писалось с момента их открытия. В последнее время Вертешселлеш был датирован абсолютным методом временем 185–210 тыс. лет назад (Schwarcz et Latham, 1990), хотя другие исследователи называют цифры 300 (Stringer et Hublin, 1997) или 400 тыс. лет назад (Pesci, 1990) – в любом случае мало для архантропов. Бильцингслебен имеет близкий возраст 300–412 тыс. лет назад (Schwarcz et al., 1988). Вертешселлеш и Бильцингслебен, кстати, сопровождаются вообще галечной культурой. Впрочем, полтора года спустя в новой статье, опубликованной в PLoS ONE, челюсть из Мала-Баланики была передатирована интервалом 397–525 тыс. лет назад (Rink et al., 2013). Неужели идея похоронена? А так красиво получалось: торжество прогрессивной неандертальской морфологии при сохранении архаичной эректоидной в отдельных популяциях… Неужели стоит проститься с красивой сказкой? Неужели все так банально – одни исчезли, другие появились? На самом деле – все стало гораздо интереснее! Удревнение “самого позднего эректуса Европы” вовсе не обесцвечивает картину эволюции гоминид в Европе. Во-первых, никуда не делась не менее архаичная челюсть из Баньолас с датировкой всего 66 тыс. лет. Во-вторых, новая датировка практически синхронизирует Мала-Баланику со столь же примитивными Вертешселлешем и Бильцингслебеном, которые, кстати, условно близки географически. В-третьих, она же возводит Мала-Баланику в звание древнейшего гоминида Восточной Европы. Авторы новой статьи идут еще дальше – даже за пределы Европы. Они указывают, что Мала-Баланика становится в ряд южных архантропов типа Кокабаса – 490–510 тыс. лет назад (Kappelman et al., 2008), Висольяно – 400–500 тыс. лет назад (Manzi, 2004) и Чепрано – 385–430 тыс. лет назад (Manzi et al., 2010). Правда, для всех этих находок есть и иные, менее достоверные определения возраста: 1,11 млн лет назад для Кокабаса, от 120 до 600 тыс. лет назад для Висольяно и 800–900 тыс. лет назад для Чепрано. Нельзя не вспомнить также Мауэра (500–700 тыс. лет назад), Араго (450 тыс. лет назад) и Петралону (от наиболее вероятных 150–250 тыс. лет назад до 700 тыс. лет назад). Наконец, и люди Сима-де-лос-Уэсос неожиданно удревнились до 427 тыс. лет назад (против прежних 325 тыс. лет назад; Arnold et al., 2014). А ведь последние претендуют на должность предков неандертальцев! Таким образом, отодвигание Мала-Баланики в глубь времен компенсируется тем же для пращуров палеоантропов при сохранении поздних архантропов. То есть синхронное существование гоминид разного эволюционного уровня никуда не делось, его рамки даже заметно расширились. Изобилие не вполне надежных датировок оставляет еще много простора для хронологической эквилибристики, но интрига в любом случае сохраняется. Если новые цифры верны, то мы имеем хорошего балканского архантропа, связующего западноазиатских с южноевропейскими и даже центральноевропейскими. Если верны все же первые определения – мы имеем опять же хорошего балканского архантропа, но уже никого ни с кем не связующего, а пережиточного, доживающего свой век в глухих горах. Хочется надеяться, что недра Балкан выдадут еще и иные хранимые ими тайны эволюции гоминид.Промежуточный статус гейдельбергенсисов между архантропами и палеоантропами в сочетании с последовательностью палеоантропологических открытий (сначала были найдены неандертальцы, потом эректусы и лишь после гейдельбергенсисы) вызвал к жизни термин “атипичные неандертальцы”. В действительности же под этим словосочетанием скрываются именно гейдельбергенсисы – уже не эректусы, но еще не неандертальцы. Именно невыраженность специализированных признаков последних и позволила некоторым антропологам говорить о якобы удивительной прогрессивности “атипичных неандертальцев”. Получалась странная картина: сначала в Европе появляются вроде бы прогрессивные предки сапиенсов, а потом – специализированные неандертальцы. Такая ситуация долгое время смущала умы специалистов. Сейчас же, с появлением новых находок, все стало на свои места. Это не гейдельбергенсисы удивительно сапиентны, это мы местами слишком примитивны на фоне неандертальцев. Ледниковые периоды вызвали ускорение эволюции в Европе, тогда как в Африке, где климат не особо менялся, некоторые черты трансформировались медленнее.
Одно из значимых отличий гейдельбергенсисов от эректусов – расширение экологической пластичности. Чаще это однобоко представляется в виде расселения на север, в холода. Однако в тропиках тоже было что осваивать. Ведь люди как род возникли в саваннах, фактически мы степной вид. Лесное прошлое, о котором так много говорилось в первой части нашей книги, окончательно стало прошлым примерно на уровне хабилисов. Но препалеоантропы, возможно, начали реконкисту. Около 200–300 тыс. лет назад в Центральной Африке широко распространяется культура сангоан – одна из первых культур так называемого “среднего каменного века”; она представлена, скажем, в Брокен-Хилле. Сангоан отличается орудиями огромных размеров. Непонятно, зачем надо было такие делать, ведь размеры руки пользователей не отличались от наших. Некоторые археологи интерпретируют эти грандиозные рубила как топоры для рубки деревьев и, следовательно, относят к этому времени первое проникновение людей в дождевые тропические леса. Впрочем, палеоботанические реконструкции показывают существование в местах и во время распространения культуры сангоан открытых саванн, так что идея требует новых обоснований.
Пока наши предки загорали на африканских просторах, их суровые евразийские родичи заселяли севера. Гейдельбергенсисы были первыми людьми, прочно освоившими зоны умеренного климата. Насколько далеко они продвинулись в этом – вопрос.
Галечные орудия самого примитивного облика найдены в якутском местонахождении Диринг-Юрях. Вокруг их возраста развернулись бурные дискуссии. Первооткрыватель стоянки Ю. А. Мочанов, основываясь на их примитивности, в своих работах озвучил древность 1,8–2,5, а то и 3,2 млн лет назад (Мочанов, 1992), а абсолютное датирование термолюминесцентным методом дало цифры более 260, возможно, до 366 тыс. лет назад (Waters et al., 1997). Однако проблема в том, что по неведомой причине для датировки брались образцы не из того слоя, где были найдены орудия, а из соседнего. Сами же скопления артефактов в реальности намного моложе: возраст самых примитивных – всего 125–10 тыс. лет назад, прочих – менее 50 тыс. лет (Kuzmin, 2000; Kuzmin et Krivonogov, 1994). Так что в лучшем случае Якутию освоили неандертальцы или денисовцы, а с большой вероятностью – лишь сапиенсы.
В Европе Homo heidelbergensis наконец дошли до берегов Северного моря и смогли освоить местности, где уже была настоящая зима; архантропы на это были неспособны (Jablonski et al., 2000; Roebroeks et al., 1992). Впрочем, и гейдельбергенсисы жили тут, по-видимому, только в теплые периоды и достаточно спорадически.
Чтобы оградить себя от погодных невзгод, гейдельбергенсисы развили три сугубо человеческих особенности поведения: строительство жилищ, пользование огнем и охоту на крупных животных. Все они появились раньше, но именно препалеоантропы стали пользоваться ими регулярно. Все три хорошо представлены на французской стоянке Терра-Амата с датировками около 380 тыс. лет назад. Тут найдены остатки 21 примитивной хижины. Постройки эти были весьма внушительными – до 7–15 м длиной и 4–6 м шириной, вдвое больше стандартной большой комнаты “хрущевки”. Стены были сделаны, видимо, из веток, сохранились ямки от опорных столбов. Пол этих бунгало был утрамбован галькой, в центре имелся очаг (Lumley, 1969; справедливости ради заметим, что некоторые археологи сомневаются, являются ли эти следы остатками жилищ). Тут же, кстати, обнаружено больше 60 кусков охры со следами использования – едва ли не древнейший пример такого рода. Как они применялись, мы не знаем. По расчетам, в тепле и комфорте тут жило две семьи на протяжении одиннадцати лет. Гейдельбергенсисы Терра-Аматы охотились на древних слонов, носорогов и прочих зверей.
Там, где рельеф местности позволял, люди жались к скалам. Приятно, когда от ветра и дождя защищает надежная каменная стена. Посему именно на уровне гейдельбергенсисов началось активное заселение пещер и скальных гротов. Однако пещеры и навесы есть далеко не везде, так что расхожее представление о “пещерных жителях” сильно преувеличено. Другое дело, что в пещерах все лучше сохраняется, да и найти их несравненно легче, чем открытую стоянку: поди отыщи, где в степи или лесу сидели люди сотни тысяч лет назад. Пещера же никуда не денется, разве что обвалится; так это еще лучше – никто не потревожит древних отложений. Вот и выходит, что подавляющая часть находок действительно сделана в пещерах.
Кроме того, постоянно жить в сырой и холодной норе тоже не полезно для здоровья – здоровье портится, кости начинает ломить. Поэтому чаще всего люди жили не в глубине пещер, а на привходовой площадке, углубляясь в недра гор, лишь когда разыгрывалась непогода. Жители французской пещеры Лазаре 130–250 тыс. лет назад устроили навес из шкур у стены, отгородив уютный уголок – по крайней мере, так на голову с потолка не капает и каменная шуга не сыпется. От навеса сохранились прослои темного органического вещества вдоль стены пещеры; тут же есть два очага. Интригует находка двух волчьих черепов у двух входов в два отсека жилища. Что это – защитная магия или просто мусор? А удвоение всех элементов – случайность, результат проживания тут двух семей или разделения жилища на мужскую и женскую половины?
Не стоит думать, что жилища и очаги были прерогативой северных жителей. Все же честь их изобретения принадлежит древним африканцам. В Каламбо-Фоллс в Замбии в позднеашельских слоях с датировками 190 тыс. лет назад найдены многочисленные обломки обожженной древесины, хорошо прокаленный очаг и полукруг из камней диаметром чуть больше двух метров. Углубление внутри этого полукруга не содержит орудий, тогда как вокруг их хватает. Сооружение может быть ветровым заслоном или жилищем, хотя не исключено, что оно образовалось, когда некий водный поток окружил булыжниками дерево или термитник, которые после исчезли в небытие, оставив археологов ломать голову над происхождением таинственной конструкции.
Приручение огня, как уже говорилось, свершилось уже 1,5 млн лет назад. Однако еще миллион лет после этого люди крайне редко пользовались этим, казалось бы, невероятно ценным изобретением. До времени около 350 тыс. лет назад очаги не считались необходимым элементом интерьера. Это кажется удивительным с точки зрения современного человека, каждое утро которого начинается с зажигания огонька в том или ином виде. Неизвестно ни одного самого захудалого и дремучего племени современных людей, которое бы не умело добывать огонь и которое бы не зависело от огня. Тем страннее выглядит отсутствие кострищ и обожженных костей почти на всех стоянках древнее 400 тыс. лет и многих – после этой даты.
В Европе древнейшие достоверные следы огня – прокаленные осколки кремня и обугленная древесина – обнаружены на стоянках Бичес-Пит в Англии и Шенинген в Германии со сходными датировками 300–400 тыс. лет назад (Roebroeks et Villa, 2011). Очаги известны во французской Терра-Амате и венгерском Вертешселлеше.
Показательно и сравнение разновременных отложений на многослойных стоянках: в нижних слоях Араго с датировками 350–550 тыс. лет назад следов огня нет, а появляются они только в верхних уровнях моложе 350 тыс. лет назад. То же можно сказать и о Гран-Долине, и о пещере Табун.
Как люди обходились без обогрева и готовки пищи? Думается, мы слабо представляем их образ жизни. Видимо, адаптационные возможности древних гоминид были весьма значительными. Ведь даже на многих стоянках европейских неандертальцев, живших уже во время ледниковых периодов, кострищ и обожженых предметов по-прежнему нет. Конечно, они могли просто не сохраниться, но статистика неумолимо свидетельствует, что все же часть людей жила, вообще не зная огня или, по меньшей мере, не считая его необходимостью.
Не исключено, что недостаток внешнего тепла гейдельбергенсисы компенсировали избытком внутреннего – они стали есть гораздо больше мяса. Именно с этого вида людей человек становится специализированным охотником. То есть ловить животных умели уже хабилисы; более того – мясоедение сделало человека человеком. Но на крупных и опасных животных, да еще регулярно, так чтобы это стало основой существования, – так охотиться стали только гейдельбергенсисы. Свидетельства массовых охот на очень крупных животных – слонов, быков, оленей и лошадей, вероятно путем загона их в болото, получены при раскопках испанских стоянок Аридос, Торральба и Амброна с древностью 350–400 тыс. лет назад. Впрочем, скептики не согласны с такой интерпретацией; особенно много споров вызвало предположение об охоте на слонов (например: Villa, 1990). Но слоны слонами, а охота охотой; гейдельбергенсисам хватало добычи даже и без клыкастых-хоботастых.
К тому же, даже если в Испании свидетельства слоноборчества спорны, есть ведь и другие места на планете. Недвусмысленный и очень яркий пример того – недавнее исследование костей и орудий с израильской стоянки Ревадим с датировкой 300–500 тыс. лет назад (Solodenko et al., 2015). Тут были найдены многочисленные кости животных, в том числе древнего слона со следами разделки. Замечательно, что исследователям удалось обнаружить следы слоновьего жира на ашельских бифасах и скреблах.
Культура гейдельбергенсисов – поздний ашель. При взгляде с высоты птичьего полета разницы со средним ашелем эректусов вроде бы и не так много. Все те же рубила, разве что более ровные и симметричные. Однако уровень гейдельбергенсисов был несравненно выше предшествовавшего.
Кроме каменных орудий, препалеоантропы делали и деревянные. Лучшими образцами служат изделия, найденные в немецкой шахте бурого угля Шенинген (Thieme, 2000). В двух местах этого местонахождения с датировками 320 тыс. лет назад исследователи откопали массу остатков из дерева, в том числе три рукоятки из пихты с вырезанными расщелинами для закрепления каменных наконечников, заостренную с двух сторон палку, подобную метательным дубинкам, коими австралийские аборигены сбивают птиц на лету, обугленную палку – возможно, вертел для жарки мяса, а самое главное – несколько копий. Копья сделаны из молодых елей, одно – из сосны; они имеют длину от 1,82 до 2,5 м. Показательно, что наконечники не приставные, мастера просто застругали и, возможно, слегка обожгли для пущей твердости прикорневые – самые прочные – части деревьев. Наиболее толстая и, соответственно, тяжелая часть копий находится примерно на треть длины от конца. Судя по такой балансировке, копья были метательными. Эксперименты с точными копиями шенингенских копий показали, что при желании и некоторой сноровке их можно метнуть аж на 70 метров. Судя по годовым кольцам, деревца, использованные для изготовления копий, росли медленно и в довольно холодном климате. Об этом же говорит и состав фауны.
Таким образом, в Шенингене мы имеем аж две великие новации. Во-первых, были изобретены составные орудия, люди научились комбинировать несколько элементов вместе, как-то соединять их. До сих пор безоговорочно главенствовал принцип “одна заготовка – одно орудие”. Рубила, кливеры и прочие чопперы надо было держать в руке, что, конечно, не всегда удобно. Теперь же возникли понятия “рукоятка” и “лезвие”: палки с щелями из Шенингена явно были частью чего-то вроде ножа. Правда, копья отсюда же без приставных наконечников, но не все же сразу.
Во-вторых, метательные копья и палка-“бумеранг” явно свидетельствуют, что появилось дистантное оружие, в своем действии отрывающееся от руки человека.
Кстати, о снежках… Метательные способности человека, очевидно, превосходят обезьяньи. Казалось бы, у шимпанзе плечевой сустав подвижный, идеально шаровидный, да и координация явно отличная, ведь ей приходится прыгать по ветвям, очень быстро хватаясь за нужные ветви. Однако наблюдения в природе и эксперименты показывают, что шимпанзе не может точно бросить предмет в цель. Примером может служить знаменитый опыт, когда исследователи предъявили группе шимпанзе чучело леопарда с моторчиком внутри, простейшим образом двигавшим “зверя”. Обезьяны очень возбудились, а самые храбрые атаковали супостата, бросая в него сучья. Однако половина ударов приходилась не по чучелу, а мимо, в том числе часть палок летела в прямо противоположном направлении. Конечно, обезьяны в конце концов разнесли несчастного леопарда в клочья, но с живым это у них не прошло бы, поскольку вряд ли бы он стал терпеть так долго. Люди же кидают предметы удивительно метко. Не стоит даже заводить речь об олимпийских чемпионах, достаточно вспомнить зимние забавы: даже напрочь неподготовленный человек, играющий в снежки, быть может, раз в году (а самым невезучим доводится поразвлекаться так и не каждый год), попадает в движущуюся цель с десятка метров, да еще умудряется залепить не куда-нибудь, а куда хочет, например, не попасть в лицо или, напротив, угодить именно в него. Очевидно, отбор на снайперские достоинства шел в свое время нешуточный. Технически меткость человека обеспечивается “вынужденными траекториями” движения в плечевом суставе, возникающими вследствие легчайшей асимметрии суставной впадины лопатки и головки плечевой кости. У обезьян сустав излишне шаровидный, он движется легко во всех направлениях; это здорово при скакании по ветвям, когда надо мгновенно менять траекторию броска (а бросает обезьяна себя), но не дает гарантии попадания при метании предметов. У человека же сустав “заточен” под преимущественно передне-задние движения, да еще с некоторым поворотом лопатки и всей руки. Эволюция бросания должна иметь длинную историю, еще с первых спускавшихся на землю предков австралопитеков. Известные нам метательные орудия из Шенингена и других мест знаменуют скорее финал процесса. Судя по морфологии плечевого сустава австралопитеков KSD – VP–1/1 и AL 288–1, “вынужденные траектории” начали формироваться уже у них, а у гейдельбергенсисов из Сима-де-лос-Уэсос не отличались от нашего варианта. В саванне, в окружении сонма злобных хищников, без булыжника – ни шагу!Копья в Шенингене найдены на небольшом участке, где были обнаружены кости девятнадцати мосбахских лошадей; на костях имеются надрезки, некоторые из них разбиты. Видимо, гейдельбергенсисы загнали табун на край озера и неплохо попировали.
Шенингенские находки имеют наилучшую сохранность, но они не единичны. Фрагменты деревянных орудий времен гейдельбергенсисов обнаружены также в Боксгроуфе и Клектон-он-Си в Англии, в Амброне в Испании, в Каламбо-Фоллс в Зимбабве, во Флорисбаде в Южной Африке. Отличный образец найден в немецком местонахождении Леринген с датировкой около 400 тыс. лет назад: копье из тиса длиной 2,44 м застряло между ребер древнего слона. Как и в Шенингене, наконечник – просто заструганный конец, обожженный на огне. Но тут есть пара новаций: несколько тонких продольных желобков, идущих к острию, вероятно, предназначены для кровостока, а на центральной части копья серия узких поперечных зарубок – для того чтобы оружие не выскальзывало из рук. Кроме того, лерингенское копье, похоже, не метательное, а ударное – оно слишком тяжелое, да и центр тяжести у него расположен примерно в середине древка.
Понятно, что все эти вещи могли существовать и задолго до указанных местонахождений, ведь деревянные предметы сохраняются вообще очень редко. Но мы имеем то, что имеем. По крайней мере, мы можем быть уверены, что уже 300–400 тыс. лет назад составные и метательные орудия были известны людям.
Ближайшим же к Шенингену примером составного орудия является находка из Кампителло в Италии (200 тыс. лет назад): широкий каменный отщеп, вмурованный в смолу, на которой сохранилась продольная бороздка от древка. Неясно, как выглядело целое орудие – вероятно, это было довольно тяжеловесное копье, не очень похожее на современные изящные аналоги.
Левша из Турвиля – гейдельбергенсис, метавший копье. Все знают, что в стародавние былинные времена небо было гораздо синее, трава зеленее, а вода мокрее. Это общеизвестно. Этот закон распространяется и на палеоантропологию: в годы оные в пещерах обнаруживались сплошь целые скелеты, черепа с нижними челюстями, горы диковинных орудий и грандиозные наскальные росписи. Нынешним же нам с вами приходится довольствоваться жалкими обломками костей и невнятными отщепами. Как ни странно, этому есть объективная причина: все большие и малые пещеры, в которых потенциально можно было найти что-то интересное, были раскопаны раньше середины XX века. С каждым новым раскопом вероятность обнаружить нечто сенсационное катастрофически падает. Но не все достали из земли классики романтического периода археологии, кое-что осталось и современным исследователям. 10 сентября 2010 г. повезло французским археологам: на стоянке Турвиль-ла-Ривьер в Нормандии они нашли три кости левой руки – плечевую, локтевую и лучевую. Правда, найдены лишь крайне эродированные диафизы, а вдобавок к естественной раздолбанности кости были повреждены в процессе раскопок, но не будем слишком пристрастны – вероятно, ветер с Атлантики пронизывал насквозь, ранний осенний холодок знобил, руки археологов дрожали, бывает всякое. Главное, находка свершилась (Faivre et al., 2014). Зубы животных из того же слоя были датированы 183–286 тыс. лет назад. Это ставит находку из Турвиля в не очень длинный ряд поздних гейдельбергенсисов или ранних неандертальцев Европы, большая часть коих найдена в Германии. Не много морфологических признаков можно выявить на столь разрушенных костях, но те, что есть – длина, диаметр, изгиб, толщина стенок, – однозначно похожи на неандертальские. Это ожидаемо и не странно – место совпадает идеально, а по времени человек из Турвиля как раз годится неандертальцам в прапрадедушки. Интригует, что останки человека были обнаружены в отложениях, нанесенных водным потоком. Причем комплект – все длинные кости одной руки – и расположение в слое говорят о том, что изначально это была целая рука, замытая водой в песок. Как она туда попала? Кому-то была не нужна рука и он выкинул ее в ручей? Кому и за что ее оторвали? Был ли это первый музыкант, постигавший гамму, но имевший невыспавшихся соседей, или допотопный мим, чьи гениальные мановения не оценили современники, или первобытный фокусник, чей номер с исчезновением кролика не был понят соплеменниками? Кто знает… Нам досталась лишь рука. Но на то и наука, чтобы из всякого праха выведать хоть что-то. На то и компьютерная томография, чтобы просканировать кости во всех возможных направлениях. И вот перед нами предстает не просто обломанная костяшка, а реконструкция плечевой кости с необычайно развитой дельтовидной бугристостью в виде кривого завернутого гребня. Дельтовидная бугристость – рельефный участок в верхней трети плечевой кости, на котором крепится дельтовидная мышца, а дельтовидная мышца – это, собственно, мягкая часть плеча, она поднимает руку вверх. Судя по размеру и форме гребня – не просто большого, а уже патологического, человек из Турвиля не просто умел поднимать левую руку, а делал это часто и с большим напряжением, вплоть до травмирования – можно сказать, вдохновенно. Сильное развитие мускулатуры у неандертальцев – не секрет, но такого у них антропологи еще не видали; самые близкие аналогии – левая плечевая III в Сима-де-лос-Уэсос, левая же неандертальца из Сен-Сезер и правая из Хвалынска. Конечно, известны еще более выдающиеся прецеденты вроде кузнецов, галерных гребцов или шахтеров, но все они относятся к гораздо более поздним временам, в неандертальские времена таких бодрящих профессий еще никто не изобрел. Первое из приходящих в голову и самое вероятное занятие, которое потенциально способно довести плечевую кость до такого состояния, – метание копья. Для этого необходимо не просто поднимать руку, но довольно долго держать ее одновременно поднятой, согнутой и занесенной назад. Охота – занятие для терпеливых, надо ведь выжидать момент, затаиваться, подкрадываться и при этом быть готовым в любой момент нанести мощный удар. Неандертальцы и их предки были великими охотниками. Вероятно, человек из Турвиля был величайшим охотником среди них? Может, после смерти героя благодарные сородичи хранили его удачливую руку, долгие годы кормившую их? Впрочем, он умер далеко не стариком, возможно даже подростком, но для тех времен это как раз неудивительно. Любопытно, что и в Турвиле, и в Сима-де-лос-Уэсос, и в Сен-Сезере мощнейшие кости – левой стороны. Неандертальцы были левшами? Конечно, статистика смешная, но зато какой повод для спекуляций! Мы удержимся от них. Хорошо бы, конечно, иметь более солидное обоснование столь смелого предположения, а для этого нужны материалы, нужны новые руки и, не будем слишком скромны, ноги. Сколь много нам находок чудных сготовил ледниковый век? Чтобы это узнать, надо работать: копать, открывать и изучать!Другая грань технического прогресса – появление костяных орудий. Из кости делать что-то намного труднее, чем из камня. Читатель может легко в этом убедиться, взяв хотя бы и железный нож и попробовав вырезать что-нибудь приличное хотя бы и из куриной кости. Лучше не надо – можно порезаться, а дельное что-то вряд ли получится. Древние же люди умудрялись камнями изготовлять из толстых трубчатых костей животных вполне практичные вещи. Правда, первые эксперименты в этом направлении были скорее случайными. Из Олдувая (600–800 тыс. лет назад) и Бильцингслебена (412 тыс. лет назад) известны орудия, сделанные из слоновьих костей, но без особой фантазии, по той же технологии, что и каменные рубила. То есть когда мастеру подворачивался под руку кусок кости, он отрабатывал на нем свои “каменные” навыки. Получалось не очень. Все же кость не камень, она вязкая и плохо колется. Но вот прогресс добрался и до столь сложного материала. Древнейшие костяные орудия, сделанные по специальной “костяной” технологии, известны из Брокен-Хилла – это три зашлифованных наконечника, которые, кстати, наверняка крепились к древку (Barham et al., 2002).
Впрочем, и после полумиллиона лет – до самого конца ашельской эпохи и даже после – в Европе и Азии продолжали существовать типично галечные индустрии. Характерно, что часто они сопровождают останки очень архаичных по морфологии гоминид. Наглядными примерами могут служить уже упоминавшиеся стоянки Бильцингслебен и Вертешселлеш. Для этих людей прогресс был пустым звуком. Их орудия были бы вполне уместны в руках хабилисов, а двухсантиметровой толщины своды черепов оберегали мозги от подозрительных новаций. Но даже и у этих суровых аскетов в заскорузлой душе нет-нет да и звенела тонкая струнка тяги к прекрасному: один из бильцингслебенцев взял ребро слона (что еще могло подвернуться под мозолистую руку этого брутального троглодита, чьей главной добычей были носороги и бобры?) и чоппером мрачно нарубал на нем длинную серию параллельных насечек – не корысти ради, а исключительно в возвышенном порыве разыгравшихся чувств. Тут, правда, его творческий порыв иссяк, а нам осталось сие мощное в своей лаконичности свидетельство первобытного минимализма.
Гейдельбергенсисы недаром имели крупный мозг. Он позволял им быть творческими людьми. Археологи давно обратили внимание, что ашельские орудия избыточно симметричны. Особенно этим отличаются рубила позднего ашеля: с какой бы стороны мы на них ни смотрели, правый и левый края будут одинаковы. Их грани обработаны так тщательно, что это совершенно не нужно с практической точки зрения. В голову приходит закономерная мысль, что такое стремление к совершенству – это именно выражение душевного порыва к прекрасному. Пусть им не дано было высекать мраморные статуи, писать картины маслом и слагать поэмы пятистопным ямбом, но творить хотелось. Трехмерная симметрия рубил – не меньшее достижение, чем живопись или театральное искусство. Кроме того, подмечено, что часто в рубилах неслучайно подобран цвет камня. Если в заготовке были некие выделяющиеся жилки, творцы обрабатывали ее так, чтобы в орудии полосы располагались красиво. Образцовым примером может служить финально-ашельское рубило из Си-ля-Комюн в долине реки Эна во Франции: в его центре оставлено включение черного цвета с красными крапинками.

Рис. 28. Рубила c моллюском из Вест-Тофтса (а) и с морским ежом из Сванскомба (б).
Известны даже два прецедента из Англии, когда в породе случайно попались окаменевшие животные – моллюск Spondylus spinosus в Вест-Тофтсе и морской еж Conulus sp. в Сванскомбе, а первобытные левши не скололи их в помойку, а оформили в центре рубил. Можно представить, какими гоголями ходили владельцы: у всех рубила как рубила, а у меня – во с какой фишкой!
Другим путем пошел мастер из Ферз-Платт в Англии: около 300 тыс. лет назад он уселся поустойчивее, взял огромадный булыжник и изваял из него невиданное рубило почти сорокасантиметровой длины и весом больше трех килограммов! Таким орудием практически невозможно пользоваться, пользы от него никакой, зато оно впечатляет.
Не чужды были гейдельбергенсисы и коллекционированию. В Сванскомбе в тех же среднеашельских слоях, где был найден известный череп “пресапиенса”, обнаружены два небольших куска юрских кораллов Isastraea. Самое замечательное, что принесены они были за 193 км! Вот оно – древнейшее свидетельство горячки коллекционирования, так часто поражающей и современных людей. В другом английском ашельском местонахождении Веймос археологи с удивлением отрыли брусок аналогичного коралла, но уже полированный и весьма красивый, такой, что с удовольствием положил бы на полочку и современный ценитель ископаемых диковин. Страсть к собирательству всяческих барахлоток, кстати, наверняка имеет более древние корни: в Чжоукоудяне в слоях с синантропами обнаружены красивые кварцевые призмы, которые не могли иметь практического значения (вряд ли они были, скажем, частью гиперболоида), но обладают очевидной эстетической ценностью (Pei, 1931).
Минутка фантазии. Великое множество причудливых камней было собрано в моренах Гросс-Пампау в Северной Германии, отложившихся около 0,5 млн лет назад. Оптимисты видят в них обезьяньи и человеческие головы, фигурки женщин, овцебыков и прочих животных. Якобы древние люди коллекционировали такие камни в качестве диковинок или естественных “портретов”, иногда, возможно, подправляли для придания определенной формы и украшали тем свою унылую первобытную жизнь. Однако при желании в любой куче камней можно найти булыжник, который при определенном развороте напомнит кому-нибудь чего-нибудь. Если современные люди усматривают в камнях из Пампау портреты и силуэты, это не значит, что и гейдельбергенсисы были способны на то же.Больше всех повезло обитателям стоянок Тан-Тан и Берехат-Рам – им попались каменные “фигурки”. Тан-Тан находится на юге Марокко, “статуэтка” была найдена археологами в ненарушенном слое среднего ашеля, в нескольких сантиметрах от ручного рубила. Аналогичные слои в Северной Африке датируются примерно 300–500 тыс. лет назад. Собственно, сама “статуэтка” представляет собой кусок кварцита шестисантиметровой длины, несколько похожий на фигуру человека. При некоторой фантазии нетрудно углядеть на нем голову, руки и ноги. Более того, некоторые из горизонтальных бороздок, отделяющих голову и ноги от туловища, могут быть рукотворными. Возможно, они образовались от трения об веревочку, на которой фигурка была подвешена.
Похожая вещь найдена в израильском Берехат-Раме, тоже в ашельском слое, только с гораздо меньшей датировкой – 150–280 тыс. лет назад. Базальтовая галька случайным образом оказалась похожей на женскую фигуру. Как и в Тан-Тане, люди то ли доработали ее опять же горизонтальными бороздами, то ли носили на шнурке, который и проточил эти борозды.
Как уже говорилось выше, слух у людей из Сима-де-лос-Уэсос был почти таким же, как у нас, хотя и с явственным смещением в шимпанзиную сторону, так что с большой вероятностью у них была звуковая речь, которую только и имело смысл слушать такими ушами (Martínez et al., 2004). Однако тяжеленная челюсть, возможно, не позволяла артикулировать слова так же внятно, как это делаем мы.
Наконец, Homo heidelbergensis сделали еще один шаг в сторону очеловечивания – они начали обращать внимание на своих умерших. На самом деле, даже слоны и шимпанзе при гибели сородича ведут себя крайне необычно. Слоны могут забрасывать тело погибшего товарища ветками, шимпанзе некоторое время охраняют умерших от посягательств извне. Но настоящих погребений они все-таки не устраивают. Не утруждались и австралопитеки, и “ранние Homo”, и архантропы. Умерших они оставляли там, где их настигал последний удар судьбы. Потому-то мы имеем так мало их останков и почти не имеем целых скелетов – тело без присмотра в саванне долго не пролежит. Внимательные падальщики гарантируют скорейшую утилизацию и оставят в лучшем случае незначительные огрызки. Другое дело, когда тело похоронено в укромном месте, – шансы сохраниться целому скелету резко возрастают. Но понятно, что погребальная практика не могла возникнуть вдруг и сразу. Первые опыты в этом направлении, очевидно, были весьма простыми. Тем более здорово, что мы имеем нагляднейший пример такого поведения.
Речь, конечно, идет о знаменитых “санитарных погребениях” Сима-де-лос-Уэсос. Как уже говорилось в начале этой главы, тут были обнаружены буквально тысячи фрагментов костей. Но это не значит, что люди жили в пещере. На самом деле Сима-де-лос-Уэсос представляет собой узкую шахтоподобную трещину в земле четырнадцатиметровой глубины, в которой никто никогда не жил, потому что это просто невозможно. Люди селились неподалеку, в полукилометре, а когда кто-то умирал, они волокли его и сбрасывали в темные глубины. Согласитесь – не очень здорово, когда в одной пещере с тобой разлагается труп. Поэтому уэсосцы решали проблему просто, практично и без затей. Каких-либо обрядов при таком “санитарном погребении”, вероятно, и не предполагалось; конечно, сугубо теоретически они могли рыдать, рвать волосы на посыпанной пеплом голове и произносить надмогильные речи, но последнее – вряд ли. В любом случае никаких определимых археологических следов эти действия не оставляли. Единственное свидетельство такого рода – одинокое ручное рубило, получившее даже собственное имя Эскалибур, обнаруженное среди завалов костей. Оно сделано из довольно яркого красного кварцита и, возможно, было сброшено в шахту в качестве погребального инвентаря. Даже удивительно, что на такую толщу отложений нашлось единственное орудие.
Впрочем, есть и другая версия. На левой стороне лба Сима-де-лос-Уэсос 17 зияют два более чем выразительных пролома со всеми классическими признаками намеренного удара (Sala et al., 2015). Этого человека явно убили; вряд ли он два раза с размаху смертельно упал на один и тот же камень. Так может, десятки тел в шахте – не кладбище, а место сокрытия геноцида? Исследователям Сима-де-лос-Уэсос предстоит открыть еще много интересного…
Минутка фантазии. До крайности интересно, что в Сима-де-лос-Уэсос, кроме человеческих, найдены многочисленные кости хищных животных – медведей Денингера (больше полутора сотен особей!), львов, рысей, кошек, лис и волков, но совсем нет останков копытных. Еще есть грызуны, но они, ясно, напáдали туда по собственной простоте. Такой набор может быть интерпретирован двояко. Прозаическое объяснение: хищники, привлеченные запахом, забирались в естественную ловушку, из которой уже не могли выбраться, где и оставались навеки. Но так ли бестолковы медведи и львы, чтобы лезть в узкую и темную трещину в скале? Посему возникает более возвышенная версия: люди понимали, что чем-то похожи на хищников, ассоциировали себя с могучими медведями и львами, а потому бросали в местный филиал Аида тела не только генетических, но и ментальных родственников. “Клан медведя”, бета-версия?..Более чем вдвое моложе датировка германского местонахождения Охтенданг – 160 тыс. лет назад (впрочем, участие в датировании Р. Протча, оскандалившегося подделками дат для некоторых местонахождений, ставит эту цифру под большое сомнение). Тут были найдены куски черепной крышки, по краям и на боках которой имеются глубокие длинные надрезки. Возможно, череп был обработан в форме чаши. Это мрачное свидетельство открывает новый уровень сознания и знаменует переход к следующей стадии антропогенеза – палеоантропам.
Глава 7. Палеоантропы: не наши.
Хронологические рамки стадии палеоантропов туманны. Под этим словом в разных книгах и статьях могут пониматься совсем неодинаковые гоминиды. Иногда к палеоантропам относят и Homo heidelbergensis, и Homo helmei. Мы же пойдем минималистским путем и будем подразумевать под палеоантропами лишь людей, живших примерно от 130 до 30 тыс. лет назад. Иногда их же называют “архаическими сапиенсами”, но сей термин имеет совсем уж неопределенные границы, так что, несмотря на частое его применение, мы воздержимся от его употребления.

Рис. 29. Череп и скелет неандертальца.
Самыми известными палеоантропами, без сомнения, являются неандертальцы. В разное время их определяли либо как Homo neanderthalensis, либо Homo sapiens neanderthalensis. С самого открытия в середине XIX века и до наших дней маятник мерно качался между признанием их то дремучими троглодитами, то необычайно разумными и по большому счету не особо отличающимися от нас. Сейчас столь горячие когда-то споры поостыли, поскольку аргументы иссякли, а смысла в дискуссии не так уж много. Гораздо интереснее изучать реальные особенности неандертальцев, чем доказывать “правильность” того или иного названия.
Кстати, об истории… Скелет Неандерталь (известный также по ближайшему городу как Дюссельдорф, по селу – Гохдаль, а по пещере – Фельдгофер), как известно, был найден горнорабочими в августе 1856 г. и предъявлен научному миру К. И. Фульротом. С этого фактически началась палеоантропология. Однако в действительности кости неандертальцев находили и намного раньше (Schmitz, 2006). Так, на одном из портретов “отец немецкой хирургии” Уильям Фабри (1560–1634) изображен по доброй традиции того времени в классической позе врачевателя-мудреца – с черепом в руках. Но ведь в руках у него – череп классического неандертальца! Покатый лоб, круглые глазницы, выступающая средняя часть лица, скошенный подбородок, длинная нижняя челюсть с широкой восходящей ветвью и характерно сглаженным углом. Можно даже углядеть, что нижних моляров нет, совершенно аналогично Ла-Шапель-о-Сен. Откуда этот череп и куда делся? Мы не знаем. В 1853 г. доктор А. Ф. Спринг описал череп из бельгийской пещеры Шаво (не той Шове, что с верхнепалеолитическими росписями и находится во Франции). Он подчеркнул покатый лоб и очень большую носовую полость и определил ее как принадлежавшую представителю вымершей человеческой расы. Череп имел крайне плохую сохранность, развалился и, вероятно, был выброшен, так что сейчас трудно понять, был ли он неандертальским, но с большой вероятностью таки был. В 1829 г. был откопан череп неандертальского ребенка Энгис II, в 1848 г. при взрывных работах был найден череп неандертальской женщины Гибралтар I, но на них мало кто обратил внимание. Гибралтар I был определен как неандерталец в 1863 г., только после описания Неандерталя, а Энгис II – лишь в 1936 г. Очевидно, уровень развития науки и общества в целом только к середине XIX века дорос до того, чтобы уникальные находки могли быть оценены по достоинству. Кстати, первые раскопки почти всегда производились крайне непрофессионально и небрежно. Археология до конца первой трети XX века больше напоминала кладоискательство в духе Индианы Джонса. Например, нет точной зарисовки положения скелета Ла-Шапель-о-Сен – никто не удосужился ее сделать. Да и немало мелких костей и их обломков ушло от внимания раскопщиков. Потому много нового могут принести повторные исследования старых отвалов. Так, в 1999 г. Р. Шмиц и Ю. Тиссен нашли и изучили завалы от разрушения Фельдгоферских пещер. И – о чудо! – обнаружились не только новые фрагменты костей классического неандертальца Неандерталь 1, но и останки еще как минимум одного взрослого и молочный моляр ребенка. Весьма продуктивным оказалось и переисследование пещеры Ла-Шапель-о-Сен в 2011–2012 гг.: кроме новых костей первого скелета, нашлись зубы еще одного взрослого и двух детей. Иногда открытия можно совершать, никуда не выходя, проводя раскопки не в полях и горах, а в хранилищах музеев. Образцовый и многострадальный пример – детские скелеты из грота Ле-Мустье. Раскопки в нем начались осенью 1907 г., а 7 марта 1908 г. О. Гаузер наткнулся на человеческие кости. 12 августа 1908 г. Клаач в присутствии участников экскурсии Франкфуртского антропологического конгресса нашел и через несколько дней вынул из раскопа череп. Надо сказать, раскопки проводились крайне небрежно, отчего большая часть костей была разрушена и утеряна. Не везло бедняге и после: один из исследователей – врач-стоматолог В. Дик – ничтоже сумняшеся расковырял челюсть, чтобы достать оттуда зубы. Интересно было человеку – как выглядят зубы неандертальца? А челюсть мешала… Трудно дались горемыке-неандертальцу и проутюжившие его четыре реконструкции: после каждой от него оставалось все меньше и меньше. В конце Великой Отечественной войны извилистая фронтовая судьбина забросила останки в СССР, откуда в 1958 г. они были возвращены в ГДР, где, впрочем, до них далеко не сразу дошли руки. В 1965 г. череп был, наконец, опознан – переоткрытие свершилось! На этом длительном пути, правда, у него исчезла вся средняя часть лица, да и другие части заметно пообветшали. Не менее интересная история приключилась со вторым детским скелетом из Ле-Мустье. Он был раскопан Д. Пейрони в 1914 г., однако никем не изучался. Кости каким-то непонятным образом растворились во чреве Парижа. Однако в 1996 г. большая часть костей обнаружилась на полочке в коробке с камнями в одном из французских музеев (Maureille, 2002). Но и это не самое любопытное. Выяснилось, что правые плечевая и бедренная кости дитятки Ла-Ферраси 4bis на самом деле принадлежат все тому же Ле-Мустье II. Оказывается, когда в Ла-Ферраси пошли находки детских костей, Д. Пейрони передал М. Булю кости из Ле-Мустье для сравнения, но почему-то не забрал обратно. А следующие исследователи, не разобравшись, посчитали, что это кости из Ла-Ферраси, ведь лежали они в соответствующей коробке. Отсюда выросла немалая ошибка, ведь из-за дубликата получалось, что в Ла-Ферраси имеется двойное детское погребение – уникальный случай. Теперь же разъяснилось, что это вовсе не исключение, а просто казус. Все же неандертальцы никогда не хоронили двух индивидов вместе.Палеоантропы, как и их предки, продолжали мигрировать по планете, впрочем, расселение шло в основном к северу по уже освоенным материкам; в Австралию и Америку они так и не проникли. Неандертальцы – аборигены Европы и Западной Азии. Их ареал простирался от Атлантического океана до Алтая. Существенно, что на всем немалом ареале – от тайги до британских морей – неандертальцы были довольно однообразны. В Европе можно проследить плавное возникновение неандертальцев из гейдельбергенсисов, тогда как в Азии они появляются позже и уже в готовом виде. По всей видимости, это говорит о возникновении в Европе и расселении оттуда в сравнительно позднее время – заметно позже 100 тыс. лет назад.
Неандертальцы активно расширяли свой ареал на югах, причем расселяясь не только по суше, но и по морю. Иначе как они могли оказаться на острове Крит в центре Средиземного моря? Конечно, уровень воды существенно понижался во время оледенений, но не настолько, чтобы Крит стал частью материка. Меж тем в местности Превели около города Плакиас найдены ашельские ручные рубила с датировками более 107 и около 130 тыс. лет назад (Strasser et al., 2010, 2011). Как выглядели лодки первых мореходов? Вряд ли это было просто бревно, ведь переселиться должна была как минимум семья, да и путь был неблизкий. Плот? Долбленка? Парусный фрегат? Пароход? Впрочем, остановимся на первых двух вариантах…
Гораздо меньшее расстояние по морю надо было преодолеть первооткрывателям южных Ионических островов у побережья Греции (Ferentinos et al., 2012). Первобытные одиссеи впервые прибыли на остров Кефалиния 125 тыс. лет назад, а между 110 и 35 тыс. лет назад плотно обосновались на нем, а также на соседних островах Лефкада и Закинф. Если Лефкада периодически и соединялась с материком, то Кефалиния и Закинф всегда оставались отрезанными от него проливами. Таким образом, возможности неандертальцев к преодолению пространств были передовыми для своего времени.
Неандертальцы изучены едва ли не лучше, чем любые иные ископаемые люди. Этому способствовало их раннее открытие и, соответственно, долгая история исследований. Важно, что от неандертальцев сохранилось довольно много останков, и часть – в отличном состоянии. Классическая шутка: древние люди жили вдоль современных автомагистралей. Ведь большинство открытий, особенно первых, было сделано при дорожных работах, когда случайно вскрывались древние пещеры, расчищались погребенные слои, а в них обнаруживались кости. По этой же причине большая часть находок обнаружена в Западной Европе – на небольшой территории тут самый значительный процент строек. Немалую роль также сыграла своеобразная романтика пещерных троглодитов и загадочная их судьба. Посему публикаций, посвященных неандертальцам, едва ли не больше, чем кому-либо еще из древних людей или вообще приматов.

Рис. 30. Черепа Гибралтар I (а), Саккопасторе I (б), Шапель (в), Ферраси (г).
Очень характерная морфология неандертальцев лучше всего описывается двумя словами – массивность и расширенность. Какую бы их часть мы ни рассматривали, она будет раздавшейся вширь и иметь толстые стенки.
Череп неандертальцев огромный и тяжелый, особенно развитый в ширину. Объем мозга очень большой – 1200–1750 см³, в среднем даже чуть больше, чем у современных людей. Лоб покатый, с мощным надбровным валиком, изогнутым в виде двух дуг, но не достигающим значений архантропов. В отличие от большинства архантропов, препалеоантропов и неоантропов, мозговая коробка неандертальцев при взгляде сзади почти круглая. Затылок неандертальцев сильно выдается назад и имеет характерную форму: при взгляде сбоку он не треугольный, как у архантропов, а “пяткообразный” или в виде “шиньона”, так как затылочный рельеф у них на удивление слабый, а наружного затылочного выступа практически совсем нет, да и выйные линии развиты весьма слабо. Невелики и сосцевидные отростки височной кости. Очевидно, мускулатура основания головы, шеи и спины у неандертальцев заметно отличалась от нашей. Думается, их шея была намного толще нашей и они не могли так легко и непринужденно вертеть головой, как мы. О том же свидетельствуют длинные и нераздвоенные остистые отростки шейных позвонков неандертальцев.
Лицо неандертальцев тяжелое, очень широкое и очень высокое. Характернейшая их особенность – среднелицевой прогнатизм, то есть выступание вперед именно средней части лица, причем сразу и в горизонтальной, и в вертикальной плоскостях. Челюсти при этом не так уж сильно выдаются вперед. Другая “фишка” неандертальцев – скошенные скулы, которые прямой или даже выпуклой линией спускаются от собственно скуловых костей вплоть до альвеолярного отростка верхней челюсти, отчего лицевой скелет приобретает как бы опухший вид. Глазницы очень большие и почти круглые. Нос тоже рекордных размеров и, кроме того, имеет специфическое строение гребешков на внутренней стороне. Носовые кости не очень велики и обычно вогнуты, но направлены вперед под большим углом, так что нос живых неандертальцев, очевидно, был выдающимся – в прямом и переносном смысле.
Челюсти крупные, массивные. Передняя сторона – симфиз – нижней челюсти скошена, но далеко не так резко, как у архантропов; у многих неандертальцев она почти вертикальна, а у особо одаренных имеется даже слабый намек на подбородочный выступ. Правда, морфологически неандертальский выступ устроен иначе, чем у нас.
Уголок занудства. Подбородочный выступ сапиенсов имеет несколько характерных черт, главная из которых – вертикальный валик, идущий по средней линии симфиза, раздваивающийся внизу и имеющий в итоге вид перевернутой “Т”, так что по бокам валика и над нижним краем имеются подбородочные ямки. Сам выступ спереди раздвоен на два подбородочных бугорка, образующихся из маленьких косточек, прирастающих к челюсти еще у эмбриона. На нижне-задней стороне симфиза расположены двубрюшные ямки округлой формы – место прикрепления двубрюшных мышц, а на задней – маленькие острые подбородочные ости, от одной до пяти, от которых тянутся подбородочно-язычная и подбородочно-подъязычная мышцы – к языку и подъязычной кости соответственно. Все эти элементы могут быть выражены нерезко, но они всегда есть (Schwartz et Tattersall, 2000a). У неандертальцев никаких валиков по средней линии симфиза нет, он плоский или плавно закругленный в поперечном сечении; нет и подбородочных ямок. Если и имеется выступание, похожее на подбородочный выступ, то оно монолитное, без всяких бугорочков, это просто утолщение всего нижнего края челюсти. Двубрюшные ямки ориентированы строго вниз и сильно вытянуты. Подбородочные ости могут быть, но они толстые и притупленные. Неандертальцы имели и множество иных особенностей: из-за общей вытянутости черепа его основание очень слабо изогнуто; височная кость имеет очень низкую чешую без теменной вырезки, горизонтально ориентированную барабанную пластинку и уплощенный, сглаженный рельеф нижнечелюстной ямки. Специфично у неандертальцев строение внутреннего уха: полукружные каналы невысокие, задний полукружный канал заметно опущен вниз; улитка сдвинута вперед (Spoor et al., 2003). Стенки носовой полости вздуты и несут особой формы гребешки: боковой гребень, образующий нижний край носового отверстия, ведет к передней подносовой ости, от которой остевой гребень продолжается назад, вбок и вверх в раковинный гребень, образуя хорошо развитый край приблизительно до уровня прикрепления нижней носовой раковины и, возможно, вперед от него; все это вместе образует единую кость, которая сильно выступает медиально в носовую полость (Schwartz et Tattersall, 1996; Schwartz et al., 2008).Нижняя челюсть неандертальцев имеет очень характерные пропорции: она широкая сверху, в мыщелках, и сужается в углах; восходящая ветвь очень высокая, под стать лицу, а венечный отросток выступает выше мыщелкового. Общей чертой с более архаичными людьми являются множественные подбородочные отверстия – аж до пяти штук на одной стороне челюсти; у современных людей имеется обычно по одному, редко по два отверстия. Зубы неандертальцев большие, но челюсть еще больше, поэтому между последними – третьими – молярами и началом восходящей ветви зияет зазор – ретромолярное пространство. Зубы, кроме прочего, имеют большую внутреннюю полость – тавродонтные; для современных людей более типичны зубы с маленькой пульпой – кинодонтные.
Посткраниальный скелет неандертальцев тоже весьма специфичен. Телосложение их было очень коренастым, ноги сравнительно короткими, грудь бочкообразной формы, плечи и таз очень широкими. Соответственно, ребра толстые и сильно изогнутые, ключицы очень длинные, тонкие и слабо изогнутые. Например, женщина из Ла-Ферраси при росте всего 1,48 м обладала ключицами и шириной плеч большего размера, чем половина современных мужчин-европейцев. Получается, что тело этих людей было почти квадратным.
Лопатка неандертальцев очень широкая, часто имела два гребня на латеральном – боковом – крае (для этого есть умный термин – амфимаргинальная форма), один из которых отделяет борозду на дорзальной – спинной – стороне; у современных людей борозда обычно находится только с передней стороны лопатки. Видимо, это связано со специфическим расположением мышц, в частности сильным развитием малой круглой мышцы (Trinkaus, 1977). Любопытно, что в некоторых группах современных людей – жителей острова Энсэй на шотландских Внешних Гебридах и патагонцев – дорзальная борозда встречается тоже довольно часто, причем это гребцы, много плававшие на лодках вдоль берегов (Moran et Chamberlain, 1997). С другой стороны, у алеутов такой борозды нет; может, у них были другие весла? Конечно, это не значит, что неандертальцы много рыбачили; судя по археологическим находкам – рыбьи кости встречаются на их стоянках довольно редко, – как раз наоборот. Дело, видимо, в специфических нагрузках с вращением плечевой кости наружу и прижиманием ее к телу. Трудно понять, что такого делали неандертальцы, но ясно, что весьма энергично.
Таз неандертальцев очень широк. В этой и некоторых других особенностях он опять же “гиперсапиентен”. Например, седалищный бугор был приближен к сочленовной впадине сильнее, чем у нас. Впрочем, седалищная ость развита слабее, да и не столь уж велики эти различия.
Кстати, о ро́дах… Большая ширина таза, очевидно, имела важное значение при родах, ведь голова у неандертальских новорожденных была очень крупной и сильно вытянутой. Поэтому родовой канал был не круглым, как у современных женщин, а овальным, расширенным, так что при родах ребенок должен был поворачиваться, что могло сказаться на повышенной детской смертности. Поэтому у неандертальцев дети имели относительно взрослых небольшую голову – как у современных новорожденных, а после родов она начинала ускоренно расти (Ponce de León et al., 2008). Впрочем, это тоже не очень здорово, ведь в итоге означало более позднее развитие в целом. В целом же родовой механизм неандертальцев был примитивнее современного (Weaver et Hublin, 2009). С другой стороны, развитие зубов у неандертальцев происходило заметно раньше, чем у нас (Ramirez Rozzi et Bermudez de Castro, 2004), и даже быстрее, чем у их предков из Гран-Долины и Сима-де-лос-Уэсос. Видимо, такое ускорение развития было необходимо в нелегких условиях, когда мать не могла долго выкармливать ребенка молоком, зато за свою короткую жизнь должна была родить несколько детей. Немытым чадам не оставалось ничего иного, как по возможности скорее переходить на взрослую пищу.Длинные кости неандертальцев толстые, изогнутые и с сильно увеличенными концами. В их строении есть ряд специфических отличий от современного варианта, свидетельствующих о своеобразных типах движений.
Шероховатая линия на задней стороне бедренной кости выражена очень слабо. Раньше считалось, что это свидетельство не полностью развитого прямохождения неандертальцев, дескать, они неуклюже передвигались на полусогнутых ногах и не могли их полностью выпрямлять. Другое дело – человек, ведь у него не просто шероховатая линия, а прямо-таки мощный пилястр – выступающий гребень, поддерживающий и укрепляющий бедренную кость сзади. Однако в действительности мышцы ноги неандертальцев не так уж отличались от наших, и ни о какой обезьяноподобности, конечно, речь не идет. Просто пилястр неандертальцев был “внутренним”: кость была укреплена не только по центру диафиза, но по всей ширине задней стороны – опять же гиперсапиентный признак.
Большая берцовая кость неандертальцев отличается запрокинутостью верхнего конца назад (что можно определить и “на глазок”, но лучше – измерив углы ретроверсии и инклинации). Этот признак тоже расценивался как свидетельство скрюченности несчастных троглодитов, однако в реальности отражает привычную позу отдыха.
Кстати, о стульях… Антропологам хорошо известен “комплекс положения на корточках”: если непривычный человек сядет в эту незатейливую позу, довольно быстро ноги затекут, будет весьма неприятно и неудобно. Когда же он регулярно и подолгу сидит так, сосуды вжимаются в кости, а суставные поверхности в тазобедренном, коленном и голеностопном суставах перестраивают свою конфигурацию: появляются “затеки” суставных поверхностей верхнего края вертлужной впадины и с головки на шейку бедренной, дополнительные фасетки на задней стороне мыщелков бедренной и большой берцовой, на коленной чашечке и передней стороне нижнего конца большой берцовой и “затек” с головки на шейку таранной, то есть во всех местах избыточного сгибания – гиперфлексии. Пара месяцев, и вуаля – комплекс готов. Читатель при желании может запросто развить его себе, если еще не приобрел. Полезная вещь при отсутствии стульев. Замечательно, что на нижнем конце большой берцовой кости и шейке таранной кости Ла-Ферраси II имеются именно такие дополнительные суставные фасетки. Так что мы точно знаем, как сидели неандертальцы. Когда анатомы впервые обнаружили дополнительные фасетки на коленных чашечках африканских негров, они приняли их за расоводиагностический признак – редкостный случай, так как фактически все различия рас сконцентрированы на черепе, а не посткраниальном скелете. Однако теперь ясно, что дело не в расе, а просто в отсутствии стульев в XIX веке в тропической Африке. Такие же изменения скелета – обычное дело у древних греков, скифов, да и жителей более чем половины земного шара. Уголок занудства. Отличия неандертальских костей рук от современных непринципиальны, но статистически достоверны. У неандертальцев суставная впадина лопатки расположена косо в сравнении с нашим вариантом, кроме того, она узкая и высокая, в форме вытянутого эллипса, а не грушевидной формы. Дельтовидная шероховатость плечевой кости очень широкая, расположена параллельно длинной оси диафиза и выступает намного меньше, чем гребень большого бугорка. Головка плечевой кости повернута назад, так что торзион – “завинченность” – кости превосходит современные средние значения. На нижнем конце плечевой блок расположен более горизонтально, чем у нас. Локтевая ямка плечевой кости широкая и глубокая, часто пробуравлена сквозным отверстием. Локтевой отросток локтевой кости очень велик, а венечный, напротив, уменьшен. Блоковидная вырезка локтевой кости ориентирована вперед, а ее срединный валик резко выступает. Шейка лучевой кости сдавлена, сильно наклонена относительно диафиза и сужена сравнительно с крупной головкой, чашечка которой довольно мелкая. Лучевая бугристость смещена на медиальную сторону кости, внутрь или дорзальнее по сравнению с сапиентным вариантом. Ниже нее расположена отчетливая ямка прикрепления плечевой мышцы, не оставляющей подобного следа на костях современных людей. Отличия неандертальских костей ног от современных достаточно очевидны. Характерная черта бедренных костей – преобладание толщины передней и задней стенок над боковыми. Стенки диафиза крайне утолщены, а диаметр костномозгового канала, соответственно, сужен. Шейка бедренной кости резко наклонена. Весьма характерно, что в губчатом слое верхнего эпифиза бедренной кости трабекулы расположены диффузно, типичный для современного человека рисунок трабекул, называемый треугольником Варда, отсутствует. Скрученность бедренной кости очень слабая. Заметно отличаются от современных расширенные и повышенные пропорции таранной кости. Фаланги стоп имеют крайне уплощенные головки и высокие основания.Поражает ширина кисти неандертальцев. Очевидно, это были дюже сильные люди, привыкшие к огромным физическим нагрузкам. Особое внимание исследователей привлекла форма сустава кости-трапеции и первой пястной кости. У современного человека он седловидный, такая форма – один из главных признаков комплекса “трудовой кисти” и считается видоспецифическим признаком. У неандертальцев же его форма может быть совсем иной. Если у Ла-Ферраси I он хотя бы слабоседловидный, то у Ла-Ферраси II – уплощенно-цилиндрический, у Ла-Шапель-о-Сен – головчатый, поскольку основание первой пястной равномерно округлое, а у Киик-Коба 1 представляет собой сильно уплощенный полуцилиндрический блок. Такие формы либо вообще не встречаются, либо крайне редко обнаруживаются у современных людей. Мнения о подвижности неандертальского сустава расходятся. Одни авторы считали, что сгибание и разгибание большого пальца было ограниченным (Бонч-Осмоловский, 1941), тогда как другие приводили аргументы, что “неудобная” форма сустава полностью компенсировалась крайним развитием мышц, скошенностью суставной поверхности и изгибом диафиза первой пястной кости, за счет чего большой палец кисти мог нормально противопоставляться (Данилова, 1979).
Как архаичный признак можно рассматривать большую длину конечных фаланг кисти и средних – стоп.
Стопы неандертальцев, как и все прочее в теле этих людей, были крайне широки. В немалой степени это объясняется тем, что ходили они босиком, по крайней мере, единственный достоверный неандертальский след из румынской пещеры Вартоп именно босой. Но босоногостью ширина неандертальских ступней целиком никак не объясняется. Большой вес, видимо, был причиной уплощенности сводов стопы.
Рост европейских неандертальцев был сравнительно с их же предками и нами невысоким – от 1,48 м у некоторых женщин до 1,72 м у отдельных мужчин, в среднем около 1,65 м. Несколько крупнее были ближневосточные представители: Кебара 2 вырос аж до 1,72 м, а самым высоким был человек из Амуда – 1,75 м, хотя в нем как раз можно заподозрить некую ненеандертальскую примесь.
Расшифровка ДНК позволяет узнать и о таких особенностях неандертальцев, которые, казалось бы, утрачены безнадежно. Например, неандертальцы из пещеры Сидрон с большой вероятностью имели первую (0) группу крови (Lalueza-Fox et al., 2008). Они же, а также их родичи из Рипаро-Меццена были светлокожими, некоторые – темноволосыми, а другие – рыжими (Lalueza-Fox et al., 2007, 2011). Любопытно, что мутация, отвечающая за посветление волос, у неандертальцев расположена в тех же генах, что и у европейцев, но сама мутация другая. А вот белокожесть неафриканцев вполне могла достаться им именно от неандертальцев. Показательно и в какой-то мере утешительно, что именно в тех частях нашего генома, которые контролируют развитие головного мозга, неандертальской примеси очень мало либо нет вовсе.
Между прочим, неандертальцы резко отличались от денисовцев, которые были темнокожими, темноглазыми и темноволосыми (Meyer et al., 2012).
Кстати, о Соломоновых островах… На Соломоновых островах 5–10 % людей имеют светлые волосы, причем генетическая основа такой пигментации отлична от европейского варианта (Kenny et al., 2012). Раньше предполагали, что либо причина светловолосости – метисация, либо у меланезийцев волосы быстро выцветают, либо они вообще красят их известью; очень уж необычно для европейского глаза выглядят темнокожие блондины. Теперь точно известно, что известь ни при чем. Особенно здорово, что мутация у меланезийцев ломает ту же цепочку синтеза пигмента в том же гене, что и у неандертальцев и европейцев, но конкретная мутация – своя собственная. Это замечательный пример параллельного и независимого возникновения схожего и генетически, и фенотипически признака сразу в трех группах. Дело будущего – определить генетику светловолосости у индейцев-манданов, эвенков, кабилов Алжира и калашей Пакистана.Важно знать и помнить, что все перечисленные и многие неперечисленные особенности неандертальцев не обязаны встречаться полным комплексом у всех индивидов. Например, женщина Ла-Кина 5 имела много продвинутых черт строения черепа, а мужчина Ла-Ферраси I – бедренной кости.
Показательно, что неандертальцы специализированы по сравнению как с гейдельбергенсисами, так и сапиенсами. Некоторые антропологи склонны поэтому говорить о “гиперсапиентности” неандертальцев. Обычным объяснением этого является адаптация к морозному климату ледникового оледенения: многие из указанных признаков европейских классических неандертальцев могли возникнуть под влиянием тяжелейших климатических условий около 70–60 тыс. лет назад. Кроме того, интересные аналогии морфотипу европейских неандертальцев можно найти среди современных арктических народов – чукчей и эскимосов. Широкие плечи, бочкообразная грудь, коренастое телосложение – все это приспособления к арктическому климату. Однако у неандертальцев биологическая специализация к холоду зашла намного дальше, чем у современных арктических популяций человека, видимо из-за неразвитости культуры, которая не могла обеспечить надежного барьера между климатическими невзгодами и неандертальским организмом.
Кстати, о медведях и лисах… На человека, как и на других теплокровных животных, распространяются экогеографические правила Бергмана и Аллена. Согласно первому, животные, живущие в холодных условиях, обычно крупнее обитающих в тепле и комфорте. Классическим примером служат медведи: полярные белые – самые огромные, бурые из умеренного пояса – средние, тропические малайские – самые мелкие. Второе правило гласит, что у тех, кто населяет холодные области, короче выступающие части тела – чтобы не отморозить; чем климат жарче, тем больше надобность остывать, отчего ноги, уши и хвосты становятся длиннее и тоньше. Чем ближе форма тела к шару, тем дольше оно остывает, ибо площадь относительно объема у этой формы минимальна; в частности, самовар потому и пузат, что его задача – не остыть, а изящный бокал не имеет шансов сохранить тепло. Лучший образец правила Аллена – лисы: полярный песец кругленький, плотненький, с короткими ушками, мордочкой и лапками, лиса умеренного климата имеет средние пропорции, а пустынный фенек поджар, щупл, без меры лопоух, востронос и длинноног. Понятно, что эти правила не вполне универсальны, но в общем и целом срабатывают. Неандертальцы вполне вписываются в них. Пусть они не были слишком рослыми, но массивность вполне искупала этот недостаток; весили они наверняка немало. У неандертальцев были укороченные относительно туловища руки и ноги. Правило Аллена продолжает действовать и в пределах самих рук и ног: предплечье относительно плеча и голень относительно бедра у неандертальцев короткие, тогда как для большинства сапиенсов типична противоположная комбинация – укороченные плечо и бедро.Впрочем, неандертальцы жили не только и даже не столько на суровых северах. Хотя чаще всего их представляют как мохнатых обитателей заснеженных пространств приледниковой зоны и этот образ вроде бы наглядно подтверждается костями животных мамонтовой фауны, в изобилии находимыми на стоянках, необходимо помнить, что подавляющее большинство неандертальцев жило все же в Средиземноморье. Немало их обитало вообще на Ближнем Востоке, где в те времена, как и сейчас, росли, скажем, финиковые пальмы. Показательно, что при всех многочисленных признаках морфологической адаптации европейских неандертальцев к холодному климату они практически не заселялись в области, где зимние температуры опускались ниже −8 °C, и предпочитали летние от +12 до +25 °C (Davies et Gollop, 2003). Температуры холоднее –8… –10 °C, вероятно, были критическими для неандертальцев, предположительно из-за несовершенства их одежды и неумения строить теплые жилища (Vendramini, 2009).
Исключения, конечно, тоже есть, но они немногочисленны и даже спорны. Самым выдающимся примером холодоустойчивости неандертальцев является стоянка Бызовая, расположенная на Полярном Урале, на реке Печоре. Слои заселения тут датированы 27–29 тыс. лет назад или 31–34 тыс. лет назад (Slimak et al., 2011). Орудия предположительно относятся к мустье, хотя отмечено сочетание мустьерских и верхнепалеолитических элементов. К сожалению, тут не найдены человеческие останки, так что неясно, были ли изготовители сих орудий последними и самыми северными неандертальцами, бежавшими от нашествия сапиенсов аж до Полярного круга, или же это были сапиенсы-первопроходцы, использовавшие очень архаичную технологию. Датировки позволяют допустить оба варианта.
Конечно, многие исследователи пытались выделить хронологические или географические группы (например: Алексеев, 1978; Гремяцкий, 1948), мало-мальски надежны из них четыре или пять. Ранние неандертальцы жили до времени примерно 70 тыс. лет назад; часто их называют также “атипичными”, но при этом включают сюда и гейдельбергенсисов. Классические неандертальцы жили в Европе с 70 до примерно 30 тыс. лет назад (названы “классическими” они исключительно по той причине, что именно их скелеты были первыми найденными и описанными палеоантропологическими находками). Видимо, несколько отличались от них “грацильные микродонтные неандертальцы типа Ортю”, жившие по северным берегам Средиземного моря. Также особое положение занимают ближневосточные и центральноазиатские неандертальцы, хотя относительно единства этой группы есть сомнения. Иногда еще выделяются пережиточные неандертальцы, жившие позже 45 тыс. лет назад.
“Атипичные” еще не имели ярко выраженного комплекса всех неандертальских специализаций; классические формы – самые образцовые, всем неандертальцам неандертальцы; “микродонтные” отличаются более грацильным сложением и сравнительно мелкими зубами; ближневосточные, напротив, крупнее, а в чертах некоторых представителей проглядывают ненеандертальские особенности вроде высокого свода и округлого затылка; пережиточные неандертальцы – тоже обладатели ряда вроде бы сапиентных признаков, доставшихся им, скорее всего, от уже прибывших в Европу кроманьонцев.
Жизнь неандертальцев была нелегка. Об этом недвусмысленно свидетельствуют многочисленные болячки на их костях. Более того, те или иные патологии есть едва ли не у всех взрослых неандертальцев, а на детских скелетах они, видимо, просто не успели отпечататься в силу возраста, хотя сам факт детского скелета говорит о том, что не все было ладно в государстве неандертальском. Но, как известно оптимистам, стакан ведь наполовину полон: если большинство неандертальцев успешно выживали с неоднократными переломами, артритом и гормональными нарушениями – в отсутствие больниц, докторов и даже фельдшеров, стало быть, они обладали не только крепким, но даже богатырским здоровьем. Есть такой парадокс в палеопатологии: коли на скелете много деформаций, значит, человек был очень здоровым, ведь чтобы болезнь оставила след на костях, необходимо довольно долгое время. Человек, конечно, страдает, ему плохо, но он таки борется с недугом, живет и не умирает, иногда годами. А вот если на скелете нет никаких следов, стало быть, этот человек был заморышем – сдался первой же заразе без сопротивления. Конечно, не все болезни отпечатываются на костях, но статистически принцип срабатывает: плохая жизнь кончается грудами “здоровых” скелетов, а хорошая – “больных”. Так вот у неандертальцев как раз чуть ли не все скелеты патологичны, выходит – жизнь была стабильна и надежна, хотя и тяжела. Обращает на себя внимание и тот факт, что от ранних неандертальцев к поздним число патологий растет.
Кстати, палеопатология тем и отличается от патологоанатомии и медицины, что ее задача – не установить причину смерти или узнать, как плохо было человеку, что у него болело и уж тем более – не как его вылечить, ведь он умер тысячи лет назад. Цель совсем иная – узнать, насколько люди были благополучны, что на них влияло, какие нагрузки они испытывали, чем питались. Суть прямо противоположна патологоанатомии – определить не как человек умер, а как он жил. Кроме того, хотя палеопатология имеет дело с индивидами, ее смысл – выяснить закономерности, касающиеся групп людей.
Минутка фантазии. Первобытный облик первого неандертальца из Неандерталя в сочетании с многочисленными немощами послужил основой для довольно оригинальных интерпретаций. Например, К. Майер предположил, что кости принадлежат монгольскому казаку-дегенерату российской армии, который в 1814 г. в погоне за наполеоновской армией получил ранение, отстал от своих, заполз в пещеру (вход в которую, что характерно, располагался на 18-метровой высоте весьма крутой скалы) и умер там, всеми забытый и заброшенный. Отряд не заметил потери бойца… В частности, “логичное” объяснение получали надбровные валики – мрачный сын степей часто хмурился, а также изогнутые бедренные кости – казак с детства ездил на лошади, вот ноги и загнулись под форму седла и лошадиных боков. Ф. П. Бей утверждал, что перед нами – остов кельта, похожего на ирландца, причем явно не самого интеллектуального; Р. Вагнер – старого голландца; А. Р. Уоллес – просто дикаря. Б. Левис аргументировал, что виной странной форме головы раннее зарастание черепных швов. Самый развернутый диагноз поставил корифей немецкой медицины Р. Вирхов: рахит в детстве искривил ноги и руки бедняги, артрит в старости исказил его суставы, раннее зарастание швов привело к микроцефалии, а несколько увесистых ударов по голове довершили историю болезни. Эти и другие подобные объяснения, надо признать, выглядели вполне научно в XIX веке в отсутствие других находок, но выглядят забавно сегодня. Тем более любопытно, что уже в 1971 г. была сделана попытка объяснения большинства специфических неандертальских особенностей – людей из Неандерталя, Гибралтара II, Пеш-дель-Азе и Староселья – сифилитическими изменениями (Wright, 1971). Якобы этим обусловлена форма надбровья, теменных и затылочной костей, вогнутость носовых костей, частое отсутствие передних зубов, сильная стертость тавродонтных моляров и изогнутость бедренных костей. Статья, что удивительно, была опубликована не где-нибудь, а в журнале Nature – и не первого апреля.Уникальный палеопатологический случай – Крапина 120.71. Этот небольшой фрагмент ребра с разрастанием странной формы долгое время не привлекал внимания исследователей. Наконец, в 2013 году дошла очередь и до него. Тщательное исследование и сравнение с возможными аналогами показали, что с наибольшей вероятностью у несчастного был рак кости (Monge et al., 2013). Это древнейший известный случай такого заболевания у предшественников сапиенсов. Впрочем, он может быть не единственным: в компактном слое нескольких костей Неандерталя 1 обнаружены подозрительные отверстия с зубчатыми краями, тоже с большой вероятностью канцерогенной природы.
Намного больше повезло самому северному неандертальцу из Зиланд-Риджес: он был счастливым обладателем доброкачественной опухоли – эпидермоидной кисты; она, по крайней мере, не болит.
Неандертальцы и гормоны: болезнь человека из Марийяк. События прошлого можно реконструировать разными путями. Наблюдения за характером геологических отложений, анализ фауны и флоры, исследования культурных артефактов дают бесценные свидетельства жизни наших далеких предков и их соседей. Но, конечно, самые впечатляющие результаты мы получаем, анализируя останки самих людей. Это дает неповторимый взгляд на конкретную личность, а из массы таких индивидуальных историй восстает общая картина былого. И неважно, что зачастую в нашем распоряжении имеются лишь небольшие обломки: взгляд антрополога распознает следы давнишних событий, и способов таких – не счесть. Один из путей реконструкции жизни пращуров – оценка палеопатологий. Им и воспользовались исследователи останков неандертальцев из пещеры Марийяк (Garralda et al., 2014). В слое с датировкой 57,6±4,6 тыс. лет назад были найдены крайне фрагментарные останки (всего в Марийяке обнаружено 26 обломков), в том числе кусок свода на границе лобной и теменной костей. Честно говоря, данная часть черепа – одна из самых “безыдейных”, обычно кроме толщины костей изъять из нее ничего не удается. Не так редко исследователи подобные находки отправляют в запасники на годы. Но не таковы испанские и французские антропологи! Тщательное изучение фрагмента Марийяк 3 позволило выявить на нем следы довольно редкой патологии – внутреннего лобного гиперостоза, то есть значительного разрастания кости на мозговой поверхности черепа. Строго говоря, сам гиперостоз – не болезнь, а скорее побочный эффект. Непосредственные причины данного отклонения точно неизвестны, но сопровождающие симптомы изучены хорошо. Среди современных людей внутренний лобный гиперостоз чаще всего обнаруживается у пожилых женщин с гормональными нарушениями. Болезнь выражается в повышении концентрации мужских половых гормонов и, как следствие, увеличении жироотложения на животе, появлении мужских признаков – росте бороды и усов, низком голосе, усиленном росте мускулатуры, а также, соответственно, нарушении женских особенностей. Любопытно, что известны случаи внутреннего лобного гиперостоза и у мужчин, в том числе в древности: в Древнем Египте, бронзовом веке Сирии, у индейцев анасази, скифов и сарматов. Среди ископаемых гоминид эта патология встречена у питекантропа Сангиран 2 с Явы, неандертальцев Гибралтар I из Испании и Шанидар 5 из Ирака. Из них первые два с наибольшей вероятностью женские, а последний – мужской. Пол неандертальца Марийяк 3 определить, понятно, трудно, но хитрые расчеты привели исследователей к мысли, что это был мужчина. Все эти люди имели пожилой по древним меркам возраст – старше 40 лет, неандертальцы, возможно, и до 60 лет. Учитывая общее число находок древних людей, частота гиперостоза у неандертальцев оказывается завышенной. Таким образом, среди неандертальцев регулярно встречались гормональные отклонения, причем как среди женщин, так и мужчин. Фактически этим заканчивается статья про Марийяк 3. Но… Если бы зарубежные коллеги обращали больше внимания на труды российских антропологов, они могли бы знать, что почти двадцать лет назад Елена Николаевна Хрисанфова достаточно детально реконструировала гормональный статус неандертальцев и особенно подчеркивала при этом увеличение у них концентрации андрогенов – мужских половых гормонов (Хрисанфова, 1997, 2000, 2002; Хрисанфова, Булыгина, 2000; Boulyguina et Khrisanfova, 2000). Лобный гиперостоз – крайнее выражение этой тенденции, но и у вполне здоровых неандертальцев маскулинизация выражена весьма ярко. Более того, такая их особенность могла быть в числе причин вымирания наших невезучих родственников, ведь увеличение андрогенов у женщин катастрофически снижает их женственность по всем статьям; в числе прочего резко повышается риск выкидышей. Таким образом, способности к размножению у неандертальцев были изначально ниже, чем у сапиенсов. Мощные, сильные, волосатые, с хриплым низким голосом, агрессивные, но плохо размножающиеся троглодиты даже при изначальном численном превосходстве были обречены на исчезновение перед лицом не столь брутальных, но плодовитых пришельцев из Африки. Что ж, остается надеяться, что международное сотрудничество в будущем будет не столь односторонним, а важные научные разработки всех исследователей будут включаться в мировой оборот, ускоряя всеобщий прогресс.Часть неандертальских травм могла быть получена случайно, например на охоте. Женщина Ла-Кина 5 получила повреждение левой кисти, из-за чего практически не могла пользоваться всей рукой, вплоть до того, что уменьшилась плечевая кость, хотя и не в такой катастрофической степени, как у старика Шанидар 1, у которого правой руки ниже локтя вообще не было. Нижний конец правой локтевой кости и, очевидно, вся кисть были ампутированы у неандертальца Крапина 180. Не мог пользоваться левой рукой из-за перелома, вывиха и суровой деформации локтя Неандерталь 1. Видимо, безрукие инвалиды были обычными персонажами заиндевевших плейстоценовых пещер. Запястье было повреждено и у мужчины Кебара 2, хотя и не так серьезно, как в предыдущих случаях; у него же был травмирован пятый грудной позвонок.
Уже перечислялись многочисленные переломы и болезни Шанидара 1. Шанидар 3 повредил правую лодыжку, заработав сильное артритическое осложнение. Ла-Ферраси II и Шанидар 4 ломали свои малые берцовые кости, в последующем зажившие. Киик-Коба 1, кроме прочего, сломал себе мизинец на левой стопе и, с некоторой вероятностью, отморозил несколько пальцев на обеих ногах, что понятно, поскольку ходил он наверняка босиком (Рохлин, 1965; Trinkaus et al., 2008). Ла-Шапель-о-Сен за свою бурную жизнь сломал ребро и палец на ноге, повредил левый тазобедренный и крестцово-подвздошный суставы.
Т. Бергер и Э. Тринкаус обратили внимание, что многие неандертальцы имеют травмы в верхней части тела, иногда сразу по 3–4 на одном человеке, но не встречено ни одного случая переломов бедренной или большой берцовой костей. Любопытно, что аналогичное распределение травм обнаруживается у ковбоев, участвующих в родео. Стало быть, дело в близком контакте с крупнорогатыми и копытастыми? Исследователи предположили, что при недостатке метательного оружия неандертальцы могли быть сторонниками контактного метода охоты, с ударными копьями ближнего действия (Berger et Trinkaus, 1995). В принципе, их сложение позволяло им душить бизонов чуть ли не голыми руками. Конечно, не стоит воспринимать эти сопоставления слишком однозначно, поскольку факторов травматизма было, очевидно, много разных, а среди верхнепалеолитических сапиенсов распределение ранений аналогично неандертальскому, тогда как в наличии у кроманьонцев метательного оружия никто не сомневается. Что характерно, об этом предупреждает сам автор “родео-гипотезы” (Trinkaus, 2012).
Не так мало неандертальцев имеют ранения, нанесенные с большой вероятностью оружием. Например, неандерталоид Схул IX получил удар по голове, а его тазобедренный сустав – головка бедренной кости и вертлужная впадина – были с большой силой пробиты дротиком или копьем. Девятое ребро Шанидара 3 кто-то проткнул острым орудием типа деревянного копья, причем наверняка пострадало легкое; следы заживления говорят о том, что после ранения человек прожил несколько дней или даже недель. Левый мыщелок нижней челюсти подростка Ле-Мустье I несет зажившую трещину, полученную от правого хука.
Большой круглый след от тумака на левой стороне свода знаменует конец жизни Крапины 4, а Крапина 34,7 после подобного ранения, частично проникающего, прожил еще несколько недель. Неслабая оплеуха могла быть первопричиной повреждения левого виска Крапины 1, продолжившегося в инфекцию среднего уха и ячеек сосцевидного отростка. По правой стороне лобной кости выше надбровья пришелся удар, настигший неандертальца Шаля 1 из Словакии, по левой – Шанидара 5, по середине правой брови – Неандерталя 1, по правому виску – Монте-Чирчео I из Италии. Шанидар 1, как уже упоминалось, имел шрам на правой стороне лба и потерял левый глаз. Шанидара 4 треснули по левой стороне лба и сломали или пробили ему одно из правых ребер, причем несчастный прожил после этого совсем недолго.
По полной программе схлопотал неандерталец Сен-Сезер 1: кто-то недобрый разрубил ему правую сторону головы (Zollikofer et al., 2002). Отдельный вопрос – чем можно было нанести такую рану? Самое подходящее оружие – мачете или меч с длинным рубящим краем. Думается, это было кремневое орудие на деревянной рукояти. Проблема в том, что ближайшие археологически известные аналоги относятся к неолитической эпохе, а тут речь идет о времени 36,2 тыс. лет назад! Кстати, это время появления в Европе сапиенсов, а сам Сен-Сезер 1 с немалой вероятностью является неандертальско-сапиентным метисом. Уж не приложили ли изобретательные кроманьонцы руку или, вернее, мачете, к голове бедняги? Или шательперронские пластины на самом деле составные части вкладышевых мечей (слышу, слышу возмущенные возгласы археологов)? Кстати, судьба Пьеро или Пьеретты, как назвали несчастного антропологи (пол его неочевиден, так что оба имени равноценны), не прервалась с роковым ударом. Несмотря на сквозной семисантиметровый разруб, человек выжил, рана заживала еще несколько месяцев, так что, видимо, какая-то добрая душа заботилась о страдальце все это время.

Рис. 31. Черепа Чирчео (а), Кина 5 (б), Сен-Сезер 1 (в).
Некоторые повреждения костей, нанесенные орудиями, не имеют следов заживления. Чаще всего они интерпретируются как свидетельства каннибализма. Тема эта столь же обширна, сколь спекулятивна. Чего только не писали о первобытных людоедах! Особенно прославились жители хорватской пещеры Крапина, раскопанной в 1899 году Д. К. Горянович-Крамбергером. В среднем уровне отложений Крапины были обнаружены сотни обломков человеческих костей от десятков индивидов. Исследователи, привыкшие к гораздо более скромным находкам, были потрясены. Такое изобилие должно было иметь какое-то объяснение. И оно не замедлило появиться. Само расположение человеческих останков в полном беспорядке и вперемешку с костями животных, более того, повреждения на многих обломках, вроде бы обожженность некоторых из них – все это стало основанием для изображения мрачной картины геноцида, развернувшегося под мрачными сводами Крапины 130 тыс. лет назад. В конце XIX века, кроме прочего, были очень модны представления о сосуществовании в ледниковый период людей разных типов, отличающихся “первобытных рас”. Избыток материала из Крапины, особенно если подойти к нему типологически, отлично подтверждал подобные построения. Особенно масштабное полотно представил Г. Клаач: местные примитивные западные неандертальцы бились тут насмерть с прибывшими с востока прогрессивными ориньякскими кроманьонцами. Убитые пожирались победителями. Особенный колорит придавало этой сцене мнение Г. Клаача о происхождении неандертальцев и сапиенсов от разных видов обезьян – гориллоидов в первом случае и орангоидов во втором. В масле воплотил итог сего кровавого действа талантливый палеохудожник З. Буриан.
Впрочем, у исследователей с самого начала закрадывались сомнения в каннибальских событиях в Крапине. Как уже говорилось, черепные повреждения некоторых крапинцев какое-то время заживали. Их держали в плену как живые консервы? А может, это останки раненых победителей? Однако тезис о существовании двух различающихся групп вообще-то не находит подтверждения в статистике. Обожженность человеческих костей тоже не доказана. На некоторых из них действительно есть надрезки без следов заживления, нанесенные каменными орудиями, например, они весьма многочисленны на лобной кости Крапины 3 и теменной Крапины 16. Но что это – результат каннибализма, скальпирования или сложной погребальной практики? Строго говоря, мы этого не знаем.
Другое во многом аналогичное место – пещера Виндия, тоже хорватская, но с гораздо меньшими датировками: 32–33 тыс. лет назад для слоя G1 и 42 тыс. лет назад – G3. В этих отложениях найдены порядка 60 костей от дюжины людей. На остатках Vi 207, Vi 76/226, Vi 250, Vi 228, Vi 253, Vi 265 и Vi 266 имеются явственные надрезы – свидетельства свежевания. Особый интерес представляет то обстоятельство, что как культура ольшевий, так и морфология людей из Виндии промежуточны между неандертальской и сапиентной. В частности, здесь имеются костяные орудия, а у самих людей надбровья уменьшены, “шиньона” нет, лицо поменьше и не так выступает, нос поуже, нежели у классических неандертальцев, на нижней челюсти есть намек на подбородочный выступ. Одни археологи считают, что прогрессивные черты культуры Виндии – результат механического смешения слоев, другие – итог собственного развития неандертальцев, третьи – неумелого заимствования ими отдельных технологических достижений у продвинутых кроманьонцев. Одни антропологи расценивают сапиентные черты виндийцев как свидетельство специализации, другие – метисации пережиточных неандертальцев с сапиенсами. В свете последней версии (весьма, кстати, сильной) до крайности любопытно, что именно образцы из Виндии послужили основой для расшифровки неандертальского генома. Так может, известный нам неандертальский геном – вовсе не чистокровный неандертальский, а хорошо разбавленный сапиенсами? Но тут мы уклоняемся в сторону. Вернемся же к мрачной теме каннибализма.
Подводя мини-итог, в Хорватии мы встречаем как первых неандертальцев, так и последних, но в обоих случаях занимавшихся одним и тем же. Однако не только балканские пещерные жители отличались кровожадностью.
Порезы на височной части лобной кости неандертальского ребенка Энгис II недвусмысленно намекают, что ему отрезали жевательную мышцу, а стало быть – и всю нижнюю челюсть.
Кстати, о лингвистике… Вообще-то, лингвистически правильнее транскрипция “Анжи”, но в отечественной палеоантропологии давно устоялось написание “Энгис” – калькированное с оригинального Engis. Такое бывает сплошь и рядом. Но антропологи не расстраиваются неверным написанием, ведь главное – чтобы читателям было понятно, о чем идет речь. В некоторых же случаях верная транскрипция вообще практически невозможна. Лучшим примером служит Чжоукоудянь: по-китайски оно звучит так, как русскими буквами написать в принципе не получится. Посему в литературе можно встретить написания Чжоугоудянь, Чоукоудянь, Чжоу-Коу-Тянь, Чоу-Коу-Тьен и другие. Вариант Чоу-Коу-Тьен, наверное, лучше прочих отражает реальное произношение; верная литературная транскрипция будет скорее Чжоу-Гоу-Дъень, хотя как раз она не использовалась антропологами ни разу. В итоге же, по таинственным причинам, устоялся Чжоукоудянь. Гексьян в оригинале больше похож на Хэсянь, да и остальные китайские названия передаются с большим трудом и чаще не очень похоже на исходник. “Люси” на английском оригинале звучит с ударением на первый слог, тогда как по-русски все произносят с ударением на последний. Специалистов такие несуразности не смущают. Ведь как говаривал Шалтай-Болтай: “Когда я беру слово, оно означает то, что я хочу, не больше и не меньше”.Подобные же повреждения, интерпретируемые обычно как последствия каннибализма, обнаружены на останках неандертальцев из пещер Мула-Герси, Пинар, Зафаррайя, Комб-Греналь, Сидрон, Лос-Морос-де-Габаза, Макассарг, Марийяк, Ортю. Во всех этих случаях надрезки свидетельствуют о разделывании по суставам и местам прикрепления мышц, а кости людей беспорядочно смешаны со звериными, как и положено охотничьей добыче и кухонным отбросам. Кстати, не стоит думать, что людоедскими наклонностями отличались лишь неандертальцы, а наши предки ходили во фраках и белых перчатках. Совершенно аналогичная картина обнаруживается в южноафриканской пещере Клазиес-Ривер (90–105 тыс. лет назад), где останки предков сапиенсов также разделаны, обожжены и смешаны с мусором.
С другой стороны, подросток Ле-Мустье I похоронен как следует, но его череп несет следы надрезов и скобления. Судя по сохранности, погребен был и Неандерталь 1, однако и на его костях, в том числе спереди и сзади на черепной крышке, тоже есть надрезки. Так может, по крайней мере иногда неандертальцы резали друг друга не просто с голоду, но и с возвышенными целями и глубокими мыслями?
Ритуальное захоронение отчлененного черепа предполагалось для Монте-Чирчео I. Он был найден изолированным в центральной части потайной пещеры грота. Череп лежал вверх основанием на полу, окруженный по кругу большими камнями. Основание черепа выломано, а повреждения на краях были интерпретированы исследователями как искусственные. Якобы сородичи доставали мозг для ритуального каннибализма. В качестве аналогий приводились черепа папуасов с современной Новой Гвинеи, где поедание мозга умершего часто бывает необходимой частью погребальной церемонии. На раздумья наводит и отсутствие других костей скелета Монте-Чирчео I при идеальной сохранности черепа. С другой стороны, там же найдены еще две челюсти от других людей, но от них нет черепов. Некоторые археологи пошли еще дальше – они постулировали подобные же обряды выламывания основания черепа и поедания мозга у более древних людей из Эрингсдорфа и Штейнгейма в Германии, Нгандонга на Яве, Мапа в Китае; череп Саккопасторе II для разнообразия якобы был вскрыт сверху – с этой стороны мозг тоже можно достать. Некоторые исследователи выстроили на этой основе целые концепции, особенно много сказали об уровне развития древних людей философы.
Однако основание черепа – место вообще не очень прочное, того и гляди отваливается, даром что голова держится на нем всю жизнь. Что же касается конкретно Монте-Чирчео I, повреждения на нем нанесены не орудиями, а зубами гиен. Достоверного описания обстоятельств находки вообще-то нет (его откопали в 1939 году в ходе не слишком профессиональных раскопок), так что преднамеренность помещения черепа в круг камней довольно сомнительна. Пресловутый круг вообще с большой вероятностью случайный завал, а судя по следам натеков, череп не был изначально перевернут (White et Toth, 1991).
Сказанное, впрочем, не отменяет факта, что неандертальцы были способны совершать всяческие обряды (об этом – позже), просто стоит подходить к фактам непредвзято и всегда перепроверять информацию – этим наука и отличается от ненауки.
Минутка фантазии. Не совсем обычная форма черепов Шанидар 1 и Шанидар 5 послужила основой предположения, что неандертальцы умели делать искусственную деформацию черепа (Trinkaus, 1983). Подобными вещами развлекались многие и многие племена и народы от австралийских аборигенов, меланезийцев и африканских мангбету, квакиутлей, майя, сапотеков и паракасцев до скифов, сарматов и даже туркменов начала XX века. Более того, даже среди современных русских, говорят, есть странное и дикое поветрие под названием “снять сливку”. Дескать, если у новорожденного голова вытянутая, это некрасиво, надо в ванной ее распарить и массировать спереди-сзади, тогда она станет красивая – круглая. И ведь действительно, так можно изменить форму головы. Правда, можно заработать еще массу проблем вплоть до гидроцефалии, но это не останавливает любителей посконной премудрости. И уж тем более не останавливало в прошлом. Какими только способами не деформировали голову! Самый простой вариант – непреднамеренная деформация типа бешик, широко распространенная в Средней Азии. Ребенка плотно пеленают и укладывают в тесную колыбель с деревянной спинкой, где он может лежать целый день. От постоянного прижимания к деревяшке затылок уплощается и становится либо вертикальным, либо перекошенным набок – смотря как лежал малыш. Преднамеренные деформации могут быть разной степени сложности. В некоторых австралийских племенах добрые мамаши плющили головы любимых дитяток голыми руками. Чаще же для этого используются всевозможные повязки и дощечки. Если равномерно обмотать голову тугим бандажом, получится кольцевая деформация – голова приобретет вид трубы, а если хорошенько постараться, даже лицо станет со скошенными сторонами, как будто на затылке волосы стянули в пучок и очень сильно потянули. Кольцевые деформации типичны для жителей античного Крыма, древних перуанцев и современных мангбету. Если повязки делать неравномерные, то на своде отпечатаются перетяжки. Можно положить на лоб, а иногда и под затылок дощечку, тогда получится лобно-затылочная деформация; такой вариант типичен для сарматов и многих индейских племен. Если к ней добавить продольный перехват по средней линии, можно довести голову до сердцевидной формы, с двумя выступающими назад и вверх выпученными буграми и бороздой посередине. Сию экзотику уважали в Древнем Перу. В самом изощренном варианте под повязки помещали какие-нибудь предметы хитрой формы, так что на своде отпечатывались, скажем, треугольные вмятины; такие черепа обнаружены, например, в неолитическом могильнике Бойсмана-2 в нашем Приморье. Шанидарские черепа вытянуты назад, с приплюснутым, почти ровным лбом, выступающим назад и вверх теменем, уплощенной нижней частью затылка. При желании в такой форме действительно можно углядеть свидетельство искусственной деформации. Однако при ближайшем рассмотрении выясняется, что, во-первых, черепа склеены из множества фрагментов, так что не исключена некоторая доля реставрационного произвола, а во-вторых, шиньонообразный затылок Шанидара 1 явно не сдавлен сзади. Так что версия о великом уровне развития, позволявшем неандертальцам делать искусственные деформации, не подтверждается фактами.Редки, но известны случаи кариеса: от зубной боли мучились Кебара 27, Баньолас, Бо-дель-Обезье 5 и еще два его сопещерника. Вообще же, учитывая зачастую сильную стертость зубов, отсутствие кариеса у подавляющего большинства неандертальцев радует.
Как могли, неандертальцы берегли свое здоровье. У многих из них на зубах обнаружены характерные зашлифованные бороздки. Как предполагают некоторые исследователи, это следы палочек-зубочисток. Впрочем, подобные повреждения могли возникать из-за биомеханических нагрузок при жевании очень твердой растительной пищи или из-за специфических хозяйственных операций, в которых зубы используются как тиски. Не исключено, что повышенная стертость эмали многих неандертальцев тоже объясняется активной работой, например жеванием шкур для их размягчения. В частности, в этом заподозрен старик Шанидар 1.
Другие царапины на резцах и клыках – тонкие горизонтальные – образовались, когда неандертальцы зажимали в зубах кусок мяса и каменным ножом отрезали его, иногда случайно чиркая по зубам.
Кстати, о проблемах… Отдаленно похожи на царапины, но имеют совсем иное происхождение полосы эмалевой гипоплазии, весьма часто обнаруживаемые на зубах неандертальцев, да и других древних людей. Суть в том, что, когда ребенок растет, эмаль его формирующихся зубов, откладывающаяся ровными слоями, чутко реагирует на всякие жизненные невзгоды. Если случается что-то нехорошее: война, голод, холод, эпидемия, родители – алкоголики, хулиганы, тунеядцы, а того хуже, наркоманы, – ребенку становится плохо. Ростовые процессы замедляются, в том числе приостанавливается рост зубов. Когда же проблемы минуют – война кончилась, урожай созрел, лето наступило, эпидемия миновала, родители бросили пить-курить-колоться и взялись за ум, – зубы начинают нагонять упущенное с удвоенной силой; как и для всего организма, для них типичен наверстывающий рост. А на эмали из-за всех этих пертурбаций на всю жизнь остается отчетливая горизонтальная полоса. Чем сильнее был стресс, тем резче и рельефнее полоса. Поскольку коронки формируются от верхушки к корню, то мы, зная скорость роста, можем посчитать, в каком возрасте ребенок получил стресс. По количеству же полос мы узнаем число серьезных проблем, настигших дитя. Самая стандартная слабенькая полосочка формируется при отнятии ребенка от груди и переходе с молока на взрослую пищу – для малютки это может быть существенным потрясением. Более всего гипоплазии подвержены резцы, реже клыки, а на премолярах и молярах отпечатываются лишь самые суровые испытания. Если мы обнаруживаем один такой случай в палеопопуляции, это ни о чем особо не говорит – ну бывает, не повезло человеку. Но вот если гипопластических зубов много, это явный признак, что что-то было совсем не так, притом наверняка долгое время, ведь дети рождаются не одновременно. Зачастую это свидетельствует о том, что группа пришлая, недавно переселилась сюда откуда-то издалека. На новой родине ей все не впору: вода не та, еда не та, погода неправильная, соседи-аборигены чужаков не любят, говорят: “Вы люди не местные”, затевают войны и всячески пакостят, стараясь выжить пришельцев обратно. Часто в таких популяциях будут с большой частотой проявляться и другие маркеры неспецифического стресса: по тому же принципу – из-за ростовых задержек – образуются линии Харриса около концов длинных костей (впрочем, эти линии могут отражать больше стандартные ростовые скачки, а не стресс), а иным способом, но по тем же причинам формируется cribra orbitalia – отверстия на глазничных пластинках лобной кости, как будто натыканные иголочкой. Обычно лет сто – двести спокойной жизни (впрочем, бывало ли такое?) приводят популяцию в гармонию, и маркеры стресса почти исчезают. Среди неандертальцев эмалевая гипоплазия была весьма частым явлением, например, у шанидарцев она обнаружена на 40 % постоянных зубов. Очевидно, жизнь была нелегкой. Что интересно, предки неандертальцев из Сима-де-лос-Уэсос, судя по гораздо меньшей встречаемости этого маркера, жили существенно спокойнее, более того – благополучнее, чем многие группы современных людей. Уголок занудства. Вертикальные бороздки “от палочек-зубочисток” найдены на зубах из Гибралтар I, Жене, Ла-Кина 5, Лаурикоча 6, Ортю 9, Куэва-де-Сидрон, Фигуэйра-Брава. Переломы эмали, периодонтоз, остеоартрит и другие неприятности портили жизнь людям, чьи останки найдены в 25-м уровне пещеры Комб-Греналь. Характернейшей болезнью неандертальцев был артроз височно-нижнечелюстного сустава, он встречен у людей из Крапины и Шанидара, Ла-Шапель-о-Сен, Ла-Кина и Ла-Ферраси. Ле-Мустье I был слишком молод для артроза, поэтому у него для разнообразия череп был слегка перекошен плагиоцефалией – прижизненной косой асимметрией затылка. Гидроцефалия, хотя и в слабой форме, отпечаталась на внутренней стороне черепа трехлетней девочки Сарстедт I. Добил же ее неспецифический менингит. Гидроцефалия могла быть причиной изменений костей черепа у взрослого неандертальца Бигден 6. У Ла-Ферраси I основание черепа было сильно скошено влево, так что тело основной кости асимметрично, а правый затылочный мыщелок деформирован. У него же был артроз левого крестцово-подвздошного сустава, а также множественный периостит лучевых, бедренных, больших и малых берцовых костей, возникший из-за инфекционного или злокачественного процесса, что с большой вероятностью стало причиной смерти. Неандерталь 1, кроме прочего, имел внутреннюю патологию верхнечелюстного синуса и страдал от артрита. На лобных костях и толстых фрагментах сводов из Крапины, например у Крапины 4 и 16, отмечен поротический гиперостоз. 17 % костей шанидарцев поражено болезнью отложения пирофосфотата кальция. Остеоартрит или генерализованный остеоартроз мучил Шанидара 5. Поясницы Ла-Шапель-о-Сен и Шанидара 2 были скрючены болезнью Баструпа, вызванной чрезмерными нагрузками. У Шанидара 4, кроме прочего, был полиартроз кисти и синдром диффузно-идиопатического гиперостоза, появлявшийся в виде костных разрастаний и преждевременной изношенности суставных поверхностей поясничных позвонков, костей рук и ног, причиной чего был тяжелый физический труд. Шанидарцы перетруждались, таская добычу в родную пещеру? Не стоит думать, что только неандертальцы были настолько приспособленными, что могли позволить себе тяжелые и продолжительные болезни. Первые сапиенсы или близкие к ним люди тоже старались не отставать. Трехлетний ребенок Джебель-Кафзех XII умер от гидроцефалии. Хватало и случайных переломов – пяточной кости у Джебель-Кафзеха VIII, левых плюсневых у Схула IV. Нередки и ранения, нанесенные оружием или упавшими со свода пещеры камнями: у Джебель-Кафзеха XI на правой лобной кости имеется глубокое понижение с отверстием в центре, у Джебель-Кафзеха XIII – треугольное отверстие на лобной кости, в обоих случаях со следами заживления, а вот у четырехлетнего Схула I – уже без оных. Стоматологические проблемы тоже не обходили сапиенсов стороной: кариес был у Джебель-Кафзеха III и Схула II, абсцесс – у Схула V, у которого страдания усугублялись ревматоидным артритом височно-нижнечелюстного сустава.Питание неандертальцев – особая тема.
Судя по огромному количеству костей на стоянках, неандертальцы были величайшими охотниками. Об этом же свидетельствуют изотопные анализы их костей – по соотношению 13C и 15N неандертальцы оказываются хищнее медведей, волков, гиен и даже пещерных львов (например: Bocherens et al., 2001; Richards et al., 2001). Трудно понять, как можно быть хищнее пещерного льва; видимо, неандертальцы были настолько суровы, что ели и этих кошек. Более того, судя по все тем же изотопным анализам и пропорциональному составу охотничьей фауны, основной добычей некоторых групп неандертальцев – например, в Складине, Болльшвейле и Сен-Сезере – могли быть мамонты. Охотиться так охотиться! Ребята уж точно не мелочились и не разменивались на пеструшек и зайцев! Другие предпочитали шерстистых носорогов, самые скромные – бизонов, лошадей и северных оленей. Неандертальцы Альп устраивали вылазки в высокогорные пещеры за пещерными медведями. Кстати, своей любовью к мамонтам и шерстистым носорогам неандертальцы отличались от гиен, которым чаще доставались северные олени (например: Bocherens et al., 2005).
Неандертальцам Заскальной VI в Крыму в некоторый момент наскучили мамонты, гигантские, северные и благородные олени, бизоны, сайгаки, лошади и ослы – сплошные рога и копыта. И они приволокли на стоянку двух дельфинов-белобочек. Тонкость заключается в том, что берег располагался тогда в полусотне километров от стоянки. Но экзотика всегда была в цене.
Конечно, не все были такими свирепыми. В испанской пещере Боломор жили куда более скромные и непритязательные люди. Кого они только не ели – уток, фазанов, лебедей-шипунов, даже воробьев и балканских черепах. На втором месте в меню красовались благородные олени. Но основной добычей служили кролики (Blasco et Peris, 2012). Впрочем, датировки семнадцати слоев этой пещеры весьма приличны – от 350 до 100 тыс. лет назад, так что кроликобойцами были поздние гейдельбергенсисы и самые ранние неандертальцы; потомки взяли свое.
Образ неандертальца-суперхищника, казалось бы, безоговорочно победил. Но наука на то и наука, что всегда стремится опровергнуть самое себя. Анализ крахмальных зерен из зубного камня показал, что неандертальцы ели не так уж мало растений (Henry et al., 2011). Бельгийские Спи I и II уважали водяные лилии и сорго. Иракский Шанидар 3 был не прочь отведать фиников и бобов. Но главной сенсацией стало обнаружение в его зубном камне измененных крахмальных гранул ячменя. Эксперименты и сопоставления показали, что ячмень варился в воде! Неандертальцы варили кашу! Этого от них никто не ожидал. Как они это делали? Ведь до ближайшей керамики были сотни тысяч лет. Однако этнография дает много способов сварить что-нибудь без керамической посуды, например в кожаном мешке или желудке бизона, как это делали, скажем, индейцы еще в XVIII–XIX веках. Ительмены умудрялись проворачивать это даже в плетеных из травы корзинах. В такую емкость наливается вода, кладутся ингредиенты и закидываются раскаленные на огне камни. Теплоемкость камней удивительно велика, так что вода довольно быстро закипает. А что сверху будут плавать травинки и зола – так все наваристее. Ведь как говаривал мистер О'Тул: “Чтобы октябрьский эль удался на славу, в него должны падать жучки и всякая другая пакость, не то душистости в нем той не будет!”.
Второе исследование подобного рода было проведено на зубном камне неандерталки из пещеры Сидрон (Hardy et al., 2012). В его составе нашлись гранулы ромашки и тысячелистника, а также неких злаков и даже частицы дыма из костра. Вот оно – торжество науки! Фиксация дыма, возносившегося над очагом 47,3–50,6 тыс. лет назад, – это ли не чудо! В ближайшее время эта методика, видимо, будет применяться все шире: древесный уголь, споры грибов, растительные жиры, фитолиты и гранулы крахмала из зубного камня указывают на особенности кулинарии обитателей пещеры Кезем в Израиле, живших 200–420 тыс. лет назад; на одном зубе был найден кусочек крыла моли (Hardy et al., 2016).
Другой экзотический способ определения диеты – анализ копролитов, окаменевших фекалий (Sistiaga et al., 2014). Пять отличных образцов были найдены в испанской пещере Эль-Салт. Археологи, конечно, не могли пропустить столь щедрый подарок судьбы. С великим пиететом и почтением, в стерильных перчатках и затаив дыхание – не дай бог чихнуть и загрязнить бесценный привет из прошлого! – подступили они к сим сокровищам. Как и ожидалось, в четырех копролитах из пяти обнаружилось высокое содержание копростанола и его производных, что однозначно свидетельствует о поедании мяса. Но в пятом – самом важном – образце нашлось немало 5b-стигмастанола (хотя и копростанола там хватало), а это – результат переваривания растительной пищи. Судя по отсутствию растительного воска, растения попали в пищу неслучайно, они были как-то очищены. Так что в меню неандертальцев были не только бифштексы, но и гарнир. Что закономерно и вполне ожидаемо, в копролитах нашлись и яйца нематод – паразитических круглых червей, куда уж без них в антисанитарии каменного века.
Понятно, что в ледниковый период выбор съедобных растений у европейских неандертальцев был не очень велик. А вот ближневосточные могли и пошиковать. Остатки семян растений, использовавшихся в пищу, найдены в пещере Амуд; в Кебаре откопаны бобы и фисташки. Камни, интерпретированные как терки, ступки и пестики, найдены на среднепалеолитических стоянках Молодова I и V, Старые Дуруиторы, имени Валиханова, Киик-Коба.
Впрочем, некоторые антропологи все же не склонны так легко сдавать позиции неандертальцев-суперхищников. Конечно, отчего бы иногда и не побаловаться орешками, но гранулы многих растений могли попасть на зубы допотопных охотников другим путем – из желудков их жертв, копытных животных (Buck et Stringer, 2014). Дело в том, что полупереваренные растительные остатки в желудке – химус – неплохо ферментированы и содержат массу витаминов и минералов – более полусотни наименований, целую готовую аптеку, к тому же тонко сбалансированную и подготовленную к употреблению. Неспроста едва ли не все охотничьи народы из самых разных мест планеты – эскимосы, индейцы, австралийские аборигены, бушмены и прочие – так уважают химус; часто он считается просто деликатесом. Кстати, не отворачивается от него и более цивилизованная кулинария: итальянское фирменное блюдо ригатони-кон-ла-пальята сделано как раз из верхнего отдела телячьего желудка с его содержимым. Так что неандертальцы задали неплохой старт. Кисловатый вкус и насыщенный аромат приятно разнообразили приевшееся жареное мясо. А в зубном налете вязли частицы, которые могут быть приняты за гарнир.
Какая версия ближе к истине – покажут будущие исследования. На самом деле, разные варианты не исключают друг друга, а вполне могут дополнять, ведь не стоит забывать, что мы говорим о группах, живших на протяжении десятков тысяч лет на огромной территории.
Время существования неандертальцев – средний палеолит. Это название не конкретной культуры, а лишь временного отрезка с не очень точными хронологическими рамками. Культур же было несколько, главные из них – мустье и микок. Были и другие: секленьен в Западной Европе на заре появления неандертальцев, нерон (Юго-Восточная Франция), шательперрон (Пиренеи), улуццо (Италия) и ольшевий (Карпаты) – на закате.
Главным достижением среднего палеолита в сравнении с нижним стало изготовление орудий на отщепах. От изначального булыжника-нуклеуса, специально подготовленного, отбивались сравнительно мелкие отщепы, а потом уже из них делались орудия; иногда неандертальцам для нехитрых нужд хватало и самого отщепа. Таким образом, материал экономился, а изделия получались меньше и удобнее. Что характерно, при таком способе обработка края орудия подразумевала скорее некоторое его притупление, в отличие от галечной культуры и ашеля, где острие надо было с большим трудом затачивать. Чаще всего неандертальцами использовалась леваллуазская техника, при которой с дисковидного нуклеуса в определенном порядке скалывались достаточно стандартные отщепы. Леваллуа применялось так часто, что многие неспециалисты воспринимают этот термин как синоним мустье, что, однако, не так. Иногда мустьерские орудия изготавливались нелеваллуазским методом, а техника леваллуа была известна и в других культурах.
Основными типами орудий среднего палеолита были остроконечник (внешне похожий на рубило, но сделанный из отщепа, меньше, ровнее и удобнее) и скребло (с широким рабочим краем), хотя сохранялись и классические ручные рубила, разве что размером поменьше ашельских. Принцип использования этих орудий нам точно неизвестен. Можно предположить, что остроконечники использовались как наконечники, прикрепленные к древку, а скреблами обдирались шкуры, но твердых доказательств тому нет.

Рис. 32. Мустьерские орудия.
Уголок занудства. Культуры среднего палеолита отличаются друг от друга, но все их объединяет несколько характерных черт, которые одновременно разнят их от верхнепалеолитических (например: Вишняцкий, 2007). Во-первых, нуклеусы среднего палеолита плоские, а верхнего – объемные, то есть высокие. Во-вторых, заготовками среднего палеолита, как только что говорилось, служили отщепы, а верхнего палеолита – пластины. Разница – в пропорциях, определяемых как раз формой нуклеуса: у отщепа длина и ширина близки, к тому же он толстый, а пластина длинная, узкая и тонкая. В-третьих, в среднем палеолите техника скола некраевая, а в верхнем – краевая. В-четвертых, отличаются сами орудия и их разнообразие: остроконечники, скребла, зубчато-выемчатые с одной стороны и скребки, резцы, долотовидные, ножи и многие прочие – с другой. В-пятых, на среднепалеолитических стоянках крайне редки или чаще вообще отсутствуют орудия с черешками или другими приспособлениями для крепления на рукоятку или древко, тогда как на верхнепалеолитических такие вполне обычны. В-шестых, в среднепалеолитических культурах практически нет костяных орудий, а в верхнепалеолитических это норма жизни. Наконец в-седьмых, следы символического поведения в среднем палеолите редки и невнятны, а в верхнем цветут пышным цветом. Конечно, все эти признаки не стоит воспринимать слишком однозначно. Черешковый наконечник или использование охры не делает всю стоянку верхнепалеолитической, а отсутствие костяных орудий – среднепалеолитической. В реальности археологи, как и любые ученые, оперируют статистикой. Поэтому бывает довольно сложно однозначно отнести индустрию конкретного слоя конкретной стоянки к определенной эпохе. Иногда новые раскопки и пересчеты меняют мнение исследователей.Чаще всего при упоминании неандертальцев вспоминается мустье, однако эта культура в действительности использовалась не только ими. Сапиенсоподобные люди израильских пещер Кафзех, Схул и Геула изготовляли образцово-показательные мустьерские орудия. На самом деле, единственная культура, на сто процентов неандертальская, – это микок, рубильца которого внешне очень похожи на ашельские, только сделаны иначе и имеют намного меньший размер.
Мустьерская культура появилась порядка 200–300 тыс. лет назад и просуществовала примерно до 35–40 тыс. лет назад, а местами – и до 28 тыс. лет назад. Мустье, с одной стороны, довольно однообразно – одни и те же типы орудий встречаются от Испании, Англии и Франции до Северной Африки и Ближнего Востока и даже дальше – до Алтая и Ирана, с другой – все же делится на варианты. Тонкость в том, что варианты эти отличаются не специфическими типами орудий, а процентным их соотношением: здесь больше скребел, а тут – остроконечников. Это может объясняться по-разному: культурными отличиями, неодинаковым назначением орудий и стоянок (например, для охоты, разделки добычи, обработки дерева, изготовления других орудий), спецификой обработки материалов, наконец, хронологическими изменениями.
Уровень развития микока и мустье в целом был заметно ниже верхнепалеолитических культур сапиенсов. Однако, во-первых, сравнивать, конечно, стоило бы синхронные памятники, а во-вторых, в последнее время примитивность среднепалеолитических культур ставится некоторыми археологами под сомнение.
Например, долгое время общим местом было, что европейские неандертальцы никогда не изготовляли орудий из кости, хотя костей у них было в избытке; обрабатывать этот неподатливый материал довольно трудно, вот они и не тратили понапрасну время и силы. Те предметы, которые считались костяными орудиями неандертальцев, при ближайшем рассмотрении оказывались случайно обломанными или погрызенными гиенами кусками, к которым люди не прикладывали руку (Villa et d'Errico, 2001). Единственными исключениями были настоящие костяные орудия культур шательперрон, улуццо и ольшевий, то есть самых поздних для неандертальцев, про которые всегда можно было сказать, что это – результат благотворного культуртрегерского влияния кроманьонцев.
Однако в слоях французских пещер Абри Пейрони и Пеш-дель-Азе I с датировками 41,13–47,71 тыс. лет назад и 51,4 тыс. лет назад и орудиями мустье в ашельской традиции недавно были обнаружены костяные фрагменты с очень характерной изношенностью. Эксперименты показали, что такая зашлифовка образуется при обработке кож, то есть кости использовались как лощила (Soressi et al., 2013). Другое дело, что для этого кость никак особо не обрабатывалась, характерная форма приобреталась уже в процессе использования.
Кстати, о вшах… Наличие одежды у неандертальцев вроде бы логично, но занудным ученым всегда хочется доказательств. Как уже упоминалось, единственный известный неандертальский след из румынской пещеры Вартоп – босой. Судя по структуре неандертальской фаланги стопы из Денисовой пещеры, ее владелица тоже ходила без обуви (Mednikova, 2011). Кстати, огнеземельцы и даже алеуты тоже не имели обуви, и им это не мешало жить. Но что было на неандертальцах выше стоп? Заматывались ли они в шкуры, как их стандартно изображают? Отметим в скобках, что образ “дикого человека в шкуре с дубиной” восходит не только к средневековью и греческой античности с ее Гераклом, но аж к шумерским временам – Гильгамешу и Энкиду (Соколов, 2015). Орудия, вроде бы предназначенные для обработки шкур и пошива, – все же лишь косвенное свидетельство существования одежды, ведь шкурами можно, например, крыть чум и стелить постель. Так может, неандертальцы ходили голышом? Вдруг они заново отрастили подшерсток, ведь чего только в эволюции не бывает… Так бы и гадали несчастные ученые, если бы им не помогли вши. Нет, помогли не тем, что исследователи стали сильнее чесать головы и вычесали оттуда сакральные знания, а своей генетикой. Доблестные биологи, объездив полсвета и собрав соответствующие коллекции, проведя анализы ядерной и митохондриальной ДНК, выяснили, что самые разнообразные вши водятся в Африке, так что паразиты эти сопровождали наших предков от самых основ. Бабуинские вши Pedicinus hamadryas и человеческие разошлись 22,5 млн лет назад, головные Pediculus humanus и лобковые Pthirus pubis расползлись 11,5 млн лет назад, шимпанзиные Pediculus schaeffi и человеческие Pediculus humanus – 5,6 млн лет назад (Reed et al., 2004). Дальше было интереснее: примерно 1,18 млн лет назад возникла особая генетическая линия вшей, ныне сохранившаяся только в Америке. Ясно, что людей там тогда не было. Исследователи выдвинули такое объяснение: примерно в это время Африку покинули Homo erectus, ушедшие далеко на восток и ставшие питекантропами. Они унесли на своих головах докучливых паразитов, которые следующий миллион лет эволюционировали независимо. Однако когда уже сапиенсы расселялись по Евразии, где-то в Азии они столкнулись с реликтовыми эректусами и обогатились от них эндемичными вшами, мало им было своих. Предки индейцев унесли их в Новый Свет, а в Старом они, слава гигиене, вымерли (Reed et al., 2004). Показательно, что “эректоидные” вши, судя по всему, дали всплеск разнообразия около 150 тыс. лет назад. Современные данные позволяют предположить, что их счастливыми владельцами были не только Homo erectus, но и их потомки – денисовцы. Стоило бы исследовать паразитов Новой Гвинеи и Австралии, но пока до них руки не дошли. На этом история не заканчивается. В Африке вшам хорошо жилось в шевелюрах своих владельцев. Но за пределами тропиков некоторым – самым привередливым и мерзлячим – показалось там неуютно. И вот тут мы подходим к самому интересному – на сцене, то есть в складках изобретенной одежды, появились платяные вши Pediculus humanus corporis (она же Pediculus corporis и она же Pediculus humanus humanus), на головах же остались головные Pediculus humanus capitis. Первые оценки времени этого радостного события были 72±42 тыс. лет назад (Kittler et al., 2003), вскоре они уточнились до 107 тыс. лет назад (Kittler et al., 2004) и, наконец, до интервала 83–170 тыс. лет назад (Toups et al., 2011). А ведь мы знаем, что сапиенсы в это время сидели в Африке и если выходили оттуда, то ненадолго и только до Ближнего Востока. А кто сидел в холоде? Кому сотню тысяч лет назад нужна была одежда? Конечно, неандертальцам! Стало быть, это от них, родимых, кроманьонцы получили новую разновидность паразитов, когда пришли из Африки. Из грязи – в техно. Время не пожалело бóльшую часть вещей, созданных неандертальцами. Однако новые технологии могут открыть новые стороны их жизни, казалось бы скрытые тлением навеки. В четвертом слое разрушенной французской пещеры Абри-дю-Марас с датировкой чуть моложе 90 тыс. лет назад найдены очаги и более 3600 орудий: отщепы, пластины и остроконечники, в основном выполненные в леваллуазской технике. Судя по кремню, неандертальцы приносили материал для изготовления орудий из двух мест, причем одно из них расположено за 10 километров от пещеры, а другое – за рекой. Но не это самое замечательное. В Абри-дю-Марас тончайшая минеральная корка сохранила на каменных орудиях множество интереснейших микрочастиц. Правда, чтобы обнаружить их, пришлось побороть вековечную археологическую методику и исследовать находки совершенно новым образом. Орудия не мылись, а изымались из слоя вместе с грязью, а в лаборатории тщательно рассматривались под микроскопом. И вот в этой грязи археологам открылись невероятные горизонты (Hardy et al., 2013). Для начала как на рабочих краях орудий, так и на их тыльных сторонах и на торцах выявились остатки древесины. Надо думать, деревяшки как стругались, так и служили рукоятками. Шесть небольших каменных наконечников имеют повреждения, как будто ими что-то ударяли. Впрочем, почему “как будто”? Видимо, это были дротики, а скромные размеры позволяют предположить, что их метали, а не тыркали ими, держа в руках. На нескольких из них сохранились микрочастицы древесины, стеблей и кожи – то есть древка, а также веревок и ремешков для крепления. Мельчайшие фрагменты растительных волокон нашлись на поверхности четырех орудий, еще на восьми – похожие, но спорные структуры. Остатки напоминают прожилки однодольных растений типа тростника. Пять фрагментов волокон перекручены, причем специальные эксперименты показали, что при строгании и сверлении дерева, при очистке и разрезании растений такие завитушки сами собой не образуются. Выходит, неандертальцы вили веревки. Вообще-то идея скрутить из травы некий жгут не такая уж запредельно сложная, но все же доселе никто не предполагал за неандертальцами таких способностей. К 17 орудиям прилипли частицы волос, кожи, коллагена и костей, из коих три волоса принадлежали кроликам. Охота на ушастиков подтверждается и двумя их костями с надрезками. Три отщепа сохранили остатки птичьих перьев – хищника, утки или гуся и какой-то неведомой птахи. Не игнорировали неандертальцы и рыбу: к рабочим краям двух отщепов пристало нечто весьма похожее на рыбью чешую, хотя сохранность не позволяет утверждать это уверенно. Впрочем, найденные в слое 167 рыбьих костей и чешуек голавля и окуня говорят сами за себя. Наконец, на двух орудиях нашлись споры грибов, причем на одном из них – вдоль рабочего края. Видимо, это древнейший известный грибной нож древнейшего грибника. Таким образом, неандертальцы были не чужды всем видам охоты: кролики, птицы, рыба и грибы – все шло в ход. Согласитесь, новый имидж неандертальцев заметно отличается от привычного образа угрюмого сутулого мясника. На самом деле технологические достижения неандертальцев были даже бóльшими. В лигнитовой шахте Кенигсау в Германии еще в 1963 г. были обнаружены остатки сезонного охотничьего лагеря, два слоя которого содержат микокские и мустьерские орудия и датированы временем более и около 80 тыс. лет назад (Koller et al., 2001). В каждом из слоев найдено по вытянутому куску березового вара – сгущенного дегтя. На самом древнем комке с одной стороны отпечатан след ретушированного каменного орудия, а с другой – деревянной рукоятки, сохранились даже фрагменты самой деревяшки – отличный пример составного орудия типа каменного топора. Тут же имеется даже отпечаток пальца неандертальца, на котором, впрочем, к великому сожалению дерматоглифистов, не видно пальцевого узора. Но самое главное, что оба куска – не просто смола, надранная с ближайшей елки. Чтобы получить такой деготь, надо сильно постараться. Мы не знаем, как неандертальцы его варили, но химический анализ однозначно указывает, что в Кенигсау найдены образцы древнейшего искусственного материала в мире! Обычно пишется, что первым материалом, не встречающимся в природе, стала керамика – а вот и нет! Неандертальцы обладали химпромом еще восемьдесят тысячелетий назад. В принципе, народные методы дегтеварения не запредельно сложны, но все же подразумевают устройство специальной печи. Такая вот ложка неандертальского дегтя в бочку самомнения сапиенсов.Неандертальцы, как и их предки, были не прочь поселиться в пещере, выгнав оттуда крупных хищников – медведей, львов и гиен. Но там, где пещер не было, они строили жилища. Отличные образцы неандертальской архитектуры обнаружены на украинских стоянках Молодова I и V. На первой найдено овальное кольцо из крупных костей мамонтовых ног с внутренней площадью не менее 5 на 8 метров. Мослы подпирали стены, сделанные, видимо, из веток и шкур. Более того, внутри жилище подразделялось на две половины с отдельными входами, из каждой половины был проем в дополнительную общую камеру 5 на 3,5 м, а из северной половины – в еще один отсек. На стоянке Молодова V раскопана основа еще одного жилища из костей мамонта. Правда, некоторые археологи не согласны с такой интерпретацией и считают молодовские конструкции лишь ветровыми заслонами, но в любом случае их возведение потребовало работы некоторой инженерной мысли и немалых трудозатрат.
Другие сооружения неандертальцев известны со стоянок Чокурча, Бо-дель-Обезье, Эскишо-Грано и Ле-Перар. В последнем случае хижина имела размер 11,5 на 7 м – больше, чем трехкомнатная квартира в “хрущевке”!
Социальные стороны жизни неандертальцев известны плохо. Мы уже знаем, что им не чужда была доброта и любовь к ближнему своему, однако неближнего могли и приложить по лбу. Судя по размерам стоянок, числу очагов, костей животных и погребениям, группы неандертальцев насчитывали от десятка до шести десятков человек, то есть примерно столько же, сколько бывает в группах горилл, шимпанзе, австралопитеков, гейдельбергенсисов и современных охотников-собирателей.
Кстати, о школе, армии и идеальном офисе… Очевидно, численность порядка 10–50 индивидов весьма универсальна. В среднем группа охотников-собирателей состоит из 35 человек, в реальности хозяйственная группа часто меньше – вплоть до семьи из нескольких человек. Охотники-собиратели практически никогда не живут группами больше 150 человек. В значительной степени это определяется доступностью ресурсов. Именно столько людей может прокормиться с территории, которую может обойти за день. С другой стороны, миллионы лет жизни группами именно такого размера сказались на наших способностях: мы лучше всего чувствуем себя именно в коллективах 12–15 человек и теряемся в толпе больше полутора сотен. Кстати, из этого можно вывести понятие толпы: 150 человек – это именно тот предел, когда мы перегружаемся и перестаем различать индивидуальность. Наш мозг рассчитан запоминать столько лиц, характеров и социальных связей, сколько было в стадах австралопитеков и питекантропов. Бóльшая численность появилась только в неолите, когда оседлость, производящее хозяйство и стабильность напрочь порушили нашу родную социальную структуру. Пришлось изобретать верховную власть, бюрократию, списки избирателей и пропаганду, то и дело взывающую к родственным чувствам. Неспроста школьный класс в идеале включает человек пятнадцать, а при численности больше тридцати превращается в неконтролируемое стадо. В армию идут люди с чуть большей сознательностью, но размер взвода в разных странах составляет все те же 9–50 человек – размер племени или стаи шимпанзе. Психологи рассчитали, что идеальный офисный коллектив тоже не должен быть сильно больше 15 человек, иначе человек чувствует себя некомфортно, а эффективность работы падает.Анализ мтДНК 12 неандертальцев из пещеры Сидрон показал, что у трех взрослых мужчин, двух подростков тоже мужского пола и одного ребенка имелся один и тот же вариант, так что они с большой вероятностью были братьями, двоюродными братьями или дядями и племянниками. У одной из женщин мтДНК такая же, но две другие относятся к двум иным и притом разным митохондриальным линиям; к одной из них принадлежали еще один мужчина и два ребенка. Подводя итог этим расчетам – для неандертальцев Сидрона была типична патрилокальность, то есть мужчины жили там же, где родились, а женщины переходили из группы в группу (Lalueza-Fox et al., 2011).
Многие исследователи отмечали, что лобная доля мозга, отвечающая у современного человека за мышление и социальное поведение, у неандертальцев была развита сравнительно слабо. Возможно, это приводило к большей агрессивности и меньшему сознательному контролю за эмоциями. Однако в нижней части лобной доли, в надглазничной области, резко выделялись рельефные бугры. А ведь у современных людей именно тут находится центр Брока, контролирующий моторику речи, попросту говоря – говорение.
Кстати, о кстати и вроде бы, как бы, возможно, о типа… Центр Брока занимается не только артикуляцией членораздельной речи, но и ее распознаванием, конкретно – восприятием контекста. Например, если рассказать человеку с повреждением центра Брока о том, что сей центр назван в честь французского анатома Поля Брока, то он будет в недоумении – только что речь шла об анатомии, при чем тут Франция? Правда, выразить свое замешательство ему будет не очень просто, ведь сказать-то он ничего не сможет. Повреждение зоны Вернике приводит к сенсорной афазии Вернике: больной прекрасно слышит слова, но не может понять их смысл, любая речь для него звучит как иностранная или набор незначащих звуков. Впрочем, и тут все непросто. Зона Вернике занимается и говорением. Только при повреждении речь нарушается своеобразно – она становится очень беглой и свободной, буквально течет и журчит, только вот состоит преимущественно из междометий и слов-паразитов, так что понять ее с непривычки крайне сложно. В облегченном виде подобный эффект может проявиться после трудного дня, насыщенного разговорами: усталый человек без конца сыплет оборотами “дык, елы-палы, типа того и все такое”, и слушать эти излияния бывает довольно утомительно.Речь – слишком эфемерная вещь, чтобы можно было найти ее в окаменевшем виде. Однако если хочется, то всегда можно. Хитроумные анатомы нашли немало морфологических приспособлений, косвенно указывающих на речевые способности. Проблема в том, что каждый такой признак не стопроцентно надежный, ни один не дает хорошей гарантии. Все же полезно их перечислить. Кроме рельефа эндокрана в зоне Брока, это структуры, связанные с иннервацией и мускульно-связочным аппаратом гортани. Например, на основании затылочной кости имеется отверстие для выхода подъязычного нерва. Оно узкое у обезьян и австралопитеков, но не отличается от нашего у людей Брокен-Хилла, Схула и Ла-Ферраси (Kay et al., 1998). Правда, самые выдающиеся гориллы дотягивают диаметр отверстия до человеческих значений, а неандерталец как раз имеет самое узкое из возможных для человека. Кроме того, диаметр отверстия не очень-то связан с числом аксонов – нервных окончаний, проходящих через него (DeGusta et al., 1999). Но это все отговорки скептиков; в первом приближении – чем толще нерв, тем сложнее движения гортани, тем больше вероятность наличия речи.
Другой признак – диаметр позвоночных отверстий шейных и грудных позвонков, через которые проходят в числе прочих нервные пути, превращающиеся далее в межреберные нервы и регулирующие дыхательную мускулатуру. Логично, что чем сложнее дыхание при говорении, тем толще проводящие пути и шире отверстие. Австралопитеки с обезьянами имеют узкие отверстия, дманисцы, гейдельбергенсисы и неандертальцы – широкие (Meyer et al., 2006). Кстати, эргастер KNM-WT 15000 был обладателем небольшого позвоночного канала, что интерпретировалось как его примитивность. Однако бедняга, скорее всего, страдал от неврального стеноза – патологического сужения отверстий позвонков, отчего, видимо, и умер (Latimer et Ohman, 2001).
Уголок занудства. Положение и форму гортани пытались восстановить на основании изгиба основания черепа (у неандертальцев и более древних гоминид он очень слаб, а у людей – силен), размеров нижней челюсти (она уменьшалась в процессе эволюции), подбородочного выступа (у неандертальцев его нет, а у людей есть), подбородочных остей на задней стороне симфиза (у неандертальцев они в общем-то развиты). Другой косвенный признак речи – шиловидный отросток височной кости. У обезьян на его месте расположена вообще ямка, так как мышца крепится мясистой частью, у человека же это длинная тонкая палочка, так как сухожилие сильно окостеневает; характерно, что у новорожденного ребенка его нет, оформляется он между двумя и двенадцатью годами. Шиловидный отросток есть у некоторых “ранних Homo”, подавляющего большинства гейдельбергенсисов, неандертальцев и африканских среднеплейстоценовых гоминид, но его нет, скажем, у людей Крапина 38,12, Шанидар 1 и Лаэтоли 18. Подъязычная кость и вообще гортань крепятся ко всему, что их окружает, богатым веером мышц: двубрюшная, шилоподъязычная, челюстно-подъязычная, подбородочно-подъязычная, грудино-подъязычная, лопаточно-подъязычная, грудино-щитовидная, щитоподъязычная – все они двигают гортань, способствуя произнесению звуков. Соответственно, можно попытаться понять расположение гортани и ее основные движения по развитию мест прикрепления этих мышц. Проблема, правда, в том, что они слабые и оставляют на костях почти неразличимые следы. Первые попытки реконструкции голосового аппарата неандертальцев вылились в вывод, что речь у них могла быть, но в речи не было звуков “И”, “У” и “А” (например: Lieberman et Crelin, 1971). Впрочем, в современных языках тоже сплошь и рядом нет каких-то звуков, в английском, например, той же “А”, а в китайском хань – “Р”. Существуют языки с весьма бедным фонемным инвентарем: в одном из диалектов языка ротокас с острова Бугенвиль в Меланезии всего одиннадцать звуков (с долгими гласными – шестнадцать: 6 согласных и 10 гласных). Это не мешает людям нормально общаться друг с другом. Отчего бы неандертальцам не разговаривать без пары-тройки звуков?Особые надежды возлагаются на подъязычную кость, или гиоид. Это крайне редкая находка даже в недавних захоронениях, поскольку косточка тоненькая и хрупкая, часто окостеневает не полностью, да и найти ее в земле крайне трудно. Поэтому, когда впервые археологи откопали подъязычную кость неандертальца в израильской пещере Кебара, антропологи с восторгом кинулись реконструировать голосовой аппарат. Первое заключение гласило, что у Кебара 2 были развиты анатомические структуры, необходимые для артикуляции слов (Arensburg et Tillier, 1991; Lieberman, 1993). Потом, как всегда бывает, возник скепсис: было показано, что у 18 видов приматов и многих других млекопитающих морфология гиоида примерно схожа (при великой внутривидовой изменчивости), а потому по ней нельзя судить о способности к членораздельной речи (Kennedy et Faumina, 2001). Иначе и корова должна говорить. Однако дискуссия на этом не завершилась. Новые технологии сказали свое веское слово. Точку в споре поставило исследование трабекулярной микроструктуры подъязычной кости из Кебары: линии напряжения расположены тут подобно человеческим, значит, гортань Кебары использовалась так же, как наша, а стало быть – для речи (D'Anastasio et al., 2013).

Рис. 33. Положение гортани у шимпанзе (а), неандертальца (б) и человека (в).
Афарские австралопитеки, что характерно, имели подъязычную кость, подобную шимпанзиной. Это мы знаем благодаря уникальной сохранности скелета Селам из Дикики (Alemseged et al., 2006). Как показали специальные исследования с моделированием всего голосового аппарата, афаренсисы имели горловые мешки, которые дают громкость, но не позволяют выдавать четко различимые звуки (Boer, 2012). Стало быть, австралопитеки могли зычно орать, но разобрать в этих воплях что-то внятное было бы крайне сложно. А вот гейдельбергенсисы из Сима-де-лос-Уэсос имели подъязычные кости, внешне уже неотличимые от современных (Martínez et al., 2008). То же можно сказать о неандертальце из пещеры Сидрон (Rodriguez et al., 2002).
Подводя итог – точно неизвестно, была ли речь у неандертальцев: мнения разных ученых по этому поводу расходятся (современные обзоры: Бурлак С. А., 2012; Dediu et Levinson, 2013). Если она была, то сильно отличалась от современной, но главная проблема – что мы вообще понимаем под речью? Подробнейше этот вопрос рассмотрен в замечательной книге С. А. Бурлак, из которой любознательный Читатель сможет почерпнуть знания на эту тему полной мерой (Бурлак, 2011).
Психика неандертальцев продолжала усложняться. Зачатки символической деятельности, возникшие у предков, развивались в новые формы. О достижениях неандертальцев на поприще изящных искусств уже говорилось выше, но известны и другие стороны творчества “запасного человечества”.
Замечательный пример – “маска” из Ла-Рош-Котар во Франции. Это плоский кусок камня с засаженным в естественную щель осколком кости, подпертым к тому же маленьким клинышком. В торчащих с двух сторон половинках кости при желании можно узреть глаза, а в каменном мостике над щелью – нос. Вопрос только в том, знал ли неандерталец, что сделал “маску”, или он имел на этот счет свои мысли?
В румынской пещере Чиоарей-Бороштени (47–55 тыс. лет назад) обнаружены сосуды из обломков пещерных сталагмитов со следами охры внутри, но чистые снаружи. Судя по следам скобления и полировки в центре чашечек, внутри них толкли охру. Больше полусотни кусочков красной и желто-красной охры найдены тут же (Cârciumaru et al., 2002). Как неандертальцы ее использовали – нам неведомо. Может, раскрашивали куски коры, может – друг друга, а то и использовали как средство от насекомых. Как знать, возможно, они творили и настенные росписи, да те просто не сохранились – все ж таки времени утекло немало.
Единственным примером настоящего рисунка из мустьерского слоя является изображение леопарда, процарапанное на кости бизона, найденной на украинской стоянке Пронятин (30–40 тыс. лет назад). Однако с пронятинским рисунком есть свои проблемы. Во-первых, гравировка выполнена на губчатой ткани, а так никто никогда не делал, ибо на ней нормально ничего изобразить не получится. Поэтому есть подозрение, что леопарда увидел в случайных трещинах только археолог – автор находки, а неандертальцы тут ни при чем. Находка старая, но ни разу не переисследовалась, так что этот принципиальный вопрос ждет своего решения. Во-вторых, датировка стоянки относится как раз ко времени, когда неандертальцы сменялись кроманьонцами, так что потенциально рисунок мог быть создан сапиенсами, пользовавшимися мустьерскими орудиями. Человеческих костей в Пронятине нет, так что и с этой стороны вопросов больше, чем ответов.
Гораздо лучшую доказательную базу имеет неандертальский “культ медвежьих черепов”. В пещерах Швейцарии, Австрии, Германии, Хорватии и Кавказа были обнаружены тайники со спрятанными там черепами пещерных медведей. Примеров таких весьма много – Петерсхеле, Драхенлох, Вильденманлислох, Зальцофен, Ле-Фюртен, Регуду, Радоховская пещера, Ишталлошко, Ветерница, Верхняя пещера Цуцхватской пещерной системы, Азых, Кударо I, Аман-Кутан, Ильинка. Целые черепа медведей обнаружены в разного рода ямах, нишах и каменных ящиках, закрытыми плитами и стенками из камней. Это вряд ли запас еды на черный день, ведь в голове мяса не так много, да и востребованы тайники не были. В некоторых случаях пещеры расположены слишком высоко над уровнем моря и не содержат собственно культурных слоев. Видимо, неандертальцы в таких не жили, а лишь иногда наведывались сюда ради охоты на медведей. Головы тащить вниз было бессмысленно, вот они и складывали их в кучи. Что они при этом думали? Были ли это оформленные обряды или мимолетные движения души?
Впрочем, некоторые археологи подходят к этим свидетельствам крайне скептически. Например, высказывалось предположение, что черепа, валявшиеся на проходе, топтались следующими поколениями мишек, а закатившиеся в боковые ниши оставались нетронутыми – вот и весь “медвежий культ”. Только откуда в таком случае взялись каменные стенки и плиты – тоже медведи сложили? Жаль, что подавляющее большинство самых выдающихся образцов найдено давно и крайне плохо документировано.
На Ильской стоянке в Краснодарском крае (80–100 тыс. лет назад) к очень большому камню для разнообразия был приставлен череп зубра, у которого один рог был поднят вверх, а другой – опущен вниз; рядом нашелся второй череп со сбитыми рогами и две нижние челюсти. Можно ли интерпретировать их как следы ритуалов, или это банальная охотничья добыча?
Все же, сколько ни хвали неандертальцев, свидетельства их символического поведения редки и маловыразительны. На фоне всплеска творчества в верхнем палеолите все неандертальские потуги выглядят детским садом. Вероятно, психотип неандертальцев отличался ограниченностью фантазии, сознание было очень конкретным и предметным. Но не будем очень их ругать, они старались как могли.
Самым явным свидетельством высокого уровня психики неандертальцев являются первые истинные захоронения умерших (интересно, что настоящие погребения известны только у классических и ближневосточных неандертальцев, а “микродонтные средиземноморские” этим вроде бы не озабочивались). Выше уже шла речь о “санитарных погребениях” в Сима-де-лос-Уэсос, но неандертальцы вышли на новый уровень. Они копали настоящие могильные ямы. Регулярно обнаруживаются следы неких надмогильных сооружений в виде симметрично расположенных камней или, как в Тешик-Таше, козлиных рогов.
Впрочем, погребения неандертальцев существенно отличаются от погребений современных людей как минимум в трех аспектах. Во-первых, умершие всегда клались на бок или спину в скорченной позе. Современные люди делают это гораздо разнообразнее: известны погребения, вытянутые на спине и животе, скорченные на боку, даже сидячие и перевернутые вверх ногами. Некоторые философски настроенные авторы склонны рассуждать, что укладывая покойника в скорченной позе, неандертальцы якобы стремились придать ему позу эмбриона с надеждой на будущее возрождение, возвращение в мир живых в новом перерождении, а это, дескать, говорит о существовании у них развитых представлений о загробной жизни. Вообще-то возникает два сомнения: знали ли неандертальцы, в какой позе находится эмбрион (они, конечно, постоянно кого-то потрошили, но…), и не объясняется ли все гораздо проще – для сложенного трупа надо копать меньшую яму? Ведь и глубина могил была совсем незначительной – двадцать – тридцать сантиметров, только чтобы присыпать тело.
Вторая особенность неандертальских погребений – в них никогда не бывает больше одного скелета. У современных людей обычно тоже, конечно, погребается один человек, ведь люди редко умирают массово. Однако групповые могилы – как синхронные, так и с последующим подзахоронением – вполне обыденное дело для сапиенсов, причем не только современных, но и верхнепалеолитических. Число погребенных у людей может быть любым – от одного до сотен. У неандертальцев единообразие не нарушено ни разу. Причем, судя по ориентации могил в Ла-Ферраси, неандертальцы, совершая новое погребение, знали и помнили, где расположено предыдущее, но никогда его не беспокоили.

Рис. 34. Погребение неандертальца.
Третье абсолютное свойство неандертальских захоронений – отсутствие инвентаря. Никогда – ни единого разочка – неандертальцы не положили что-либо в могилу. Конечно, с засыпаемой землей туда могли упасть какие-то предметы, но, судя по их случайному положению, никакого умысла в этом не было. Другое дело, что думают по этому поводу археологи. Ю. А. Смирнов провел замечательнейшее исследование, в котором показал, как из скупых строчек о четырех сочлененных костях быка в заполнении могилы Ла-Шапель-о-Сен, опубликованных в оригинальном отчете о раскопках, в последующих цитатах возникла сначала рулька, положенная “у правой руки вдоль тела погребенного”, а после и вовсе выросла “целая нога зубра”, которая в философском изложении превратилась в “ритуальную пищу, которой умерший должен был питаться в загробной жизни” (Смирнов, 1979). В действительности никаких явных свидетельств существования у неандертальцев представлений о потустороннем мире нет. В некоторых современных культурах – например, исламе – тоже не принято класть что-либо в могилу, в других же подношения могут быть более чем изобильными, стоит вспомнить древнеегипетских фараонов или мерседесы, загоняемые в склепы их современных последователей.
В некоторых случаях неандертальцы могли повторно раскапывать могилы и совершать какие-то манипуляции с останками. Уже упоминавшийся скелет Кебара 2 имеет практически идеальную сохранность, целыми остались все мелкие кости кистей, шейные позвонки, нижняя челюсть и даже подъязычная кость в ненарушенном анатомическом положении. Однако черепа нет. Объяснить это можно только одним способом: могила была аккуратно раскопана, череп изъят, а останки не менее аккуратно закопаны обратно. Снять череп, не сместив челюсть и подъязычную кость, не так просто; как минимум, речь идет именно о скелете, а не теле. Операция должна была проводиться спустя довольно длительное время после захоронения, но раскапывавший точно знал, где без промаха надо рыть землю. Место было как-то отмечено снаружи? Думается, что череп могли унести родственники в ритуальных целях.
Указанные особенности подчеркиваются тем, что в погребениях ближневосточных ненеандертальских палеоантропов они вполне могут нарушаться. Богата такими исключениями израильская пещера Схул, в слоях которой, датированных 119 тыс. лет назад и содержащих мустьерские орудия, обнаружились кости людей, сочетающих признаки неандертальцев и сапиенсов. У человека Схул IV между ладонями, сложенными перед лицом, было зажато кремневое скребло – какой-никакой, а погребальный инвентарь. На груди Схула V покоилась нижняя челюсть отборного, очень крупного кабана. В израильской пещере Джебель-Кафзех, слои которой имеют возраст порядка 92 тыс. лет назад, на груди подростка Джебель-Кафзех XI поверх скрещенных рук лежала часть черепа с рогами крупной лани. Тут же на груди нашлась метаподия также немаленькой лани с искусственно отсеченным эпифизом и мелкие обожженные осколки скорлупы одного яйца страуса. В захоронении присутствовали и куски охры, тогда как вокруг ее не было. Если метаподия и скорлупа могли завалиться случайно, то рога слишком велики, чтобы ненароком подвернуться в засыпку. Кстати, стены могильной ямы были укреплены известняковыми плитами. Имеется и двойное погребение – молодой женщины Джебель-Кафзех IX и шестилетнего ребенка Джебель-Кафзех X у ее ног. Кстати, положение тела Джебель-Кафзех IX несколько согнутое, но далеко не в той степени, что у неандертальцев. Тесно прижатыми друг к другу погребены Джебель-Кафзех VI и VII.
Люди из Схула и Кафзеха вообще выделяются на общем фоне. Спор об их сущности продолжается с момента открытия до наших дней. Их признавали и неандертальцами, и образцовыми сапиенсами, немало было и уклончивых, и компромиссных определений – Palaeoanthropus palestinensis, “группа Схул – Кафзех”, “анатомически современные H. sapiens”. Пока они не были датированы абсолютно, многие антропологи считали их переходным звеном от классических неандертальцев к сапиенсам. Не стоит забывать о неоднородности выборок Схула и Кафзеха: смешивание их в одну кучу ничем не оправдано, ведь кости найдены в слоях, датировки которых расходятся на десятки тысяч лет. Да и морфологически они совсем не одинаковые. Скажем, если в чертах Схула IV и V нетрудно усмотреть сапиентность, то Схул IX мало отличается от классических неандертальцев. На Ближнем Востоке есть и другие находки нестандартных палеоантропов – Амуд, Табун I и II.
Особенность этих людей в том, что на общем палеоантроповом фоне у них явно выражены некоторые вроде бы сапиентные черты: более высокий лоб и вообще свод, чуть меньшее надбровье, круглый затылок, развитый подбородочный выступ. Однако при ближайшем рассмотрении тот же выступ у схульцев, большинства кафзехцев и Табун II оказывается “поддельным”: он каплевидной формы, но не имеет специфических особенностей, типичных для подбородка сапиенсов. Лицо Джебель-Кафзех IX вроде бы сапиентно, по крайней мере точно не похоже на неандертальское, однако среди современных людей такое найти невозможно. У Табун I свод округлый, но лицо неандертальское. Только череп Джебель-Кафзех XI оказывается действительно сапиентным практически по всем показателям, но он принадлежит двенадцатилетнему ребенку, так что прогрессивность его может быть итогом скорее возраста, а не эволюционного статуса.
Некоторые черты ближневосточных людей не промежуточные между неандертальцами и сапиенсами, а просто мозаичные. Так, у женщины Табун I тело несколько вытянуто, пропорции предплечья к плечу выраженно “тропические”, то есть вроде бы сапиентные, а голени к бедру – резко “арктические”, неандертальские. У Схула V широтно-высотные пропорции тела “тропические”, а соотношения сегментов конечностей крайне “арктические”. У Кебара 2 широтно-высотные пропорции тела скорее “арктические” при очень большом росте, а лучеплечевой указатель “тропический”. Адаптивными закономерностями – приходом неандертальцев с севера и изменениями в субтропиках – такую чехарду объяснить трудно.

Рис. 35. Черепа Схул IV (а) и Схул V (б), Кафзех VI (в), IX (г) и XI (д).
Посему с самого открытия схульцев была выдвинута и в последующем только утверждалась гипотеза о метисном происхождении ближневосточных палеоантропов. В периоды потеплений из Африки сюда проникали предки сапиенсов, а морозы вюрмского оледенения гнали в Левант неандертальцев. В географически промежуточной зоне они вполне могли метисироваться. Орудия, что характерно, во всех случаях образцово мустьерские. Но при внимательном анализе находятся продвинутые черты культуры. Про погребения с инвентарем и двойные речь уже шла. Были тут и другие достижения.
В Кафзехе обнаружены многочисленные куски охры со следами использования и четыре продырявленные раковины из слоя с датой 90–100 тыс. лет назад, хотя доказательств искусственного происхождения отверстий нет. Гораздо лучше изучены две раковины из Схула с датировкой 100–135 тыс. лет назад – они намеренно просверлены и использовались, очевидно, как украшение. Вместе с раковиной из атерского слоя алжирской стоянки Уед-Джеббана это – древнейшие в мире бусы (Vanhaeren et al., 2006). Правда, крапинские подвески из орлиных когтей имеют не менее почтенный возраст, да и выглядят круче.
Вопросы судьбы неандертальцев и перехода от палеоантропов к неоантропам тесно связаны.
Судьба самих неандертальцев виделась в трех версиях.
Согласно первой, неандертальцы были прямыми предками сапиенсов. Это классика стадиальной концепции: виды ископаемых людей торжественно сменяют друг друга в великом эволюционном марафоне.
Однако уточнение датировок и накопление данных привели эту идею к краху. Мало того что неандертальцы слишком уж резко отличались от сапиенсов, так они еще и сосуществовали немалое время. У неандертальцев просто не было времени эволюционировать в Homo sapiens.
Посему возникла вторая версия: неандертальцы – эволюционный тупик. Они вымерли без следа, а освободившиеся территории были заняты пришедшими из Африки кроманьонцами. Гипотеза печальная, но имеющая много основательных подтверждений. Особенно сильное доказательство предоставили палеогенетики, когда выяснили, что мтДНК неандертальца из Неандерталя весьма отличается от нашей (Krings et al., 1997). На этом основании был сделан вывод, что метисации между двумя видами не было; в дальнейшем он неоднократно подтверждался анализом мтДНК из других неандертальцев.
Однако, увлекшись новомодными высокотехнологичными методиками, многие забыли о классике. А ведь мтДНК не может отменить черепов и костей. Еще с конца XIX века появлялись находки, сочетающие признаки неандертальцев и сапиенсов. Выше уже шла речь о схульцах. Но есть и другие. Особенно обращает на себя внимание факт, что сапиентность резко возрастает у самых поздних неандертальцев, живших после 40 тыс. лет назад (Дробышевский, 2003). Было бы странно, если бы это был внутренний процесс, учитывая, что по Европе уже бродили кроманьонцы.
Уголок занудства. Судьба неандертальцев волновала умы с момента открытия этих древних людей. Первые исследователи были склонны рассматривать их скорее как тупиковую ветвь, в этом русле следовали, например, Г. Швальбе и М. Буль. В немалой степени такая позиция объяснялась первоначально неверной интерпретацией артритических патологий скелета Ла-Шапель-о-Сен как примитивных, присущих неандертальцам как виду. Впрочем, даже после установления истинной природы скрюченности престарелого троглодита идея о тупиковости неандертальской линии никуда не делась и поддерживалась множеством антропологов, слишком уж очевидными виделись отличия неандертальцев от нас, слишком резкий переход наблюдался и в смене мустье верхним палеолитом. Причины вымирания неандертальцев виделись по-разному, на этот счет было выдвинуто, пожалуй, слишком много предположений. Немалую роль в таких построениях сыграли находки в Крапине, где расколотые, частично обожженные кости со следами надрезов были интерпретированы как остатки каннибальской трапезы после кровопролитного сражения между классическими неандертальцами и прогрессивными предками кроманьонцев. Несколько позже, в известной статье 1927 г., А. Хрдличка сформулировал концепцию неандертальской фазы человеческой эволюции (Hrdlicka, 1927; вообще-то идея возникла сразу же по открытии в Дюссельдорфе, но концептуальное и каноничное воплощение нашла именно в работе А. Хрдлички, по крайней мере, склонность американцев к рекламе всего американского сделала свое дело: более ранние труды немецких и французских антропологов основательно подзабыты и пылятся в библиотеках, а не упомянуть А. Хрдличку даже как-то неприлично). Гипотеза была принята далеко не всеми антропологами, но в ней были сильные места. Во-первых, в промежутке от архантропов до неоантропов были известны только неандертальцы; за пределами Европы к тому времени был найден лишь Брокен-Хилл, а до Второй мировой войны стали известны еще черепа из Нгандонга; черепа из обоих местонахождений тогда рассматривались как “тропические неандертальцы”, что не нарушало концепции. Во-вторых, ряд морфологических признаков современных европейцев можно логично истолковать как доставшиеся им в наследство от европейских неандертальцев. В-третьих, открытие спустя несколько лет многочисленных ближневосточных палеоантропов из пещеры Схул с промежуточными неандертальско-сапиентными чертами красиво подтверждало гипотезу А. Хрдлички. В-четвертых, на умы антропологов сильно повлияли авторитетные заявления археологов, повсеместно описывавших более-менее плавный переход от среднего к верхнему палеолиту. В отсутствие достоверных абсолютных датировок можно было довольно произвольно располагать находки в нужной последовательности, аргументируя предковый статус неандертальцев. В последующем много путаницы внесла “гипотеза пресапиенса”. В 1943 г. Монтандон описал Сванскомб и “находку” из Пильтдауна как “протосапиенсов” при признании неандертальцев тупиковой ветвью эволюции. В 1944-м и последующих годах Г. Хеберер определил Сванскомб и Фонтешевад как “пресапиенсов”, а неандертальцев опять же как тупик. Развитие гипотезы последовало в 1949-м и следующих годах в работах Г. Валлуа. Дескать, еще до появления классических неандертальцев в Европе существовали две линии – одна массивная предковая для неандертальцев, окончивших свое существование без потомков, а другая продвинутая – исходная для сапиенсов. Концепция была сурово раскритикована Я. Я. Рогинским и другими антропологами. У черепа из Сванскомба нет лобной кости, от фонтешевадских осталось и того меньше, а морфология сохранившихся частей не дает оснований для выводов о происхождении из них сапиенсов. К тому же в новейшее время черепа из Фонтешевада получили новую датировку – всего 39–41 тыс. лет назад (Chase et al., 2007), так что оказались “по другую сторону” от неандертальцев. В настоящее время “гипотеза пресапиенса” представляет скорее исторический интерес. Отсутствие хороших датировок и малое количество находок привело к выделению среди неандертальцев двух основных групп: ранней, или “атипичной”, и поздней, или “классической”. Это разделение независимо и почти одновременно было произведено перед Второй мировой войной Ф. Вейденрейхом и М. А. Гремяцким. Долгое время считалось, что ранние неандертальцы были морфологически ближе к сапиенсам, чем поздние, и это вызывало закономерное удивление. В 1978 г. В. П. Алексеев показал, что различия двух групп в немалой степени объясняются неравномерностью распределения полов в известных выборках: “атипичные” неандертальцы известны большей частью по женским черепам, а “классические” – по мужским (Алексеев, 1978). Появление новых датировок позволило установить, что часть “атипичных” неандертальцев действительно имеют значительную древность и скорее должны быть отнесены к предшествующему виду Homo heidelbergensis, тогда как, например, Гибралтар I должен бы относиться к поздней группе. Можно отметить, что распределение конкретных находок по группам гораздо ближе соответствует современным датировкам у М. А. Гремяцкого, чем у Ф. Вейденрейха. Новый этап в осмыслении места неандертальцев в человеческой эволюции настал в самом конце XX века, когда был расшифрован кусок митохондриальной ДНК неандертальца из Дюссельдорфа (Krings et al., 1997). Первые интерпретации значительных отличий неандертальца от современного человека позволили утверждать, что отличия эти намного превосходят межгрупповую человеческую изменчивость и с большой вероятностью говорят о видовом уровне различий неандертальцев и сапиенсов, о расхождении их линий в глубокой древности – около 600 тыс. лет назад – без последующего смешения. Многочисленные последующие расшифровки мтДНК разных индивидов неандертальцев и даже первые опыты выделения ядерной ДНК (Noonan et al., 2006) вроде бы полностью подтверждали этот вывод, тем более что анализы проводились почти исключительно одной группой исследователей. Однако новейшие работы по расшифровке ядерной ДНК неандертальцев и сравнение ее с разными вариантами генома современного человека показали, что у современных негроидов неандертальской примеси нет, тогда как для ненегроидов ее может быть от 1 до 4 %, по последним уточнениям – 1,6–2,1 % (Green et al., 2006, 2010). Более того, метисация видов могла происходить как минимум трижды (Vernot et al., 2016). Столь долго выстраивавшийся генетиками фундамент “теории африканской Евы” дал трещину, которая расширилась еще более, когда оказалось, что некоторые современные меланезийцы могут еще вдобавок иметь 4,8 % ненеандертальских, так называемых “денисовских” генов, ближайшие аналоги которых обнаружены в останках среднего палеолита Денисовой пещеры на Алтае. Примечательно, что генетики реконструируют генный поток от неандертальцев и денисовцев к сапиенсам, но не обратно. Впрочем, последние исследования показали, что алтайские неандертальцы могли получить часть своего генома именно от первых людей нашей линии примерно 100 тыс. лет назад (Kuhlwilm et al., 2016). Все эти данные были широко разрекламированы как сенсационные, но насколько они на самом деле неожиданны? Метисное происхождение на основе мозаики неандертальско-сапиентных черт можно предположить (и уже давно предполагалось) для некоторых ранних и множества позднейших палеоантропов. Кандидаты на метисов первого поколения многочисленны: скелеты из Схула (100–135 тыс. лет назад) и Кафзеха (92–115 тыс. лет назад), Амуд I (55 тыс. лет назад), бедренная кость из Романково, нижняя челюсть и бедренная кость Зафаррайя (27–33,4 тыс. лет назад), череп Пеш-дель-Азе I (41–51 тыс. лет назад), скелет Сен-Сезер 1 (36 тыс. лет назад), фрагменты из слоя G пещеры Виндия (G1 – 28–33 тыс. лет назад, G3 – 41–42 тыс. лет назад). Для всех этих находок типично сочетание неандертальских и сапиентных черт, причем часто в довольно противоречивом варианте. Кроме того, выраженная асимметрия черепа и лица, а также наличие многочисленных вставочных косточек в швах свода, согласно исследованиям Ю. Д. Беневоленской, являются маркерами метисного происхождения (Беневоленская, 1996). Явная асимметрия имеется на черепах Кафзех IX, Пеш-дель-Азе I, Ла-Кина 5 и 18, Ле-Мустье I. Еще ярче метисный характер выражен на черепах и скелетах из пещеры Схул, найденных в 1931–1932 гг. Сложно даже сказать – это неандерталоиды с сапиентными чертами или сапиенсы с неандерталоидными. Череп Схул I при взгляде сбоку больше похож на черепа неандертальских детей, тогда как при взгляде сзади мало отличается от современного, хотя очень расширен; его нижняя челюсть в целом неандертальская, хотя имеет слабый подбородочный выступ, морфологически отличающийся от современного; пропорции тела Схул I, по-видимому, были выраженно “тропические”, нетипичные для неандертальцев. Общая форма черепа Схул IV весьма похожа на таковую верхнепалеолитических людей, хотя форма отдельных костей слабо отличается от неандертальской. Лицевой скелет имеет куда более сапиентное строение, чем мозговой отдел. В целом сапиентный посткраниальный скелет включает отдельные неандертальские черты: выпуклое сечение VIII ребра, округлое сечение диафиза плечевой кости, низкая и широкая форма таза, вытянутая ушковидная поверхность, сближение седалищного бугра и вертлужной впадины, массивность передней нижней ости. Мозговой отдел черепа Схул V имеет ряд архаичных черт, из коих неандерталоидной может считаться близкая к “шиньону” форма затылка. В посткраниальном скелете неандертальской выглядит форма остистых отростков шейных позвонков, ребер и грудной клетки в целом, дорзальная бороздка на латеральном крае лопатки, вытянутая форма суставной ямки лопатки, округлое сечение диафиза плечевой кости, признаки таза как у Схул IV, сильный изгиб бедренной кости. В пропорциях тела удивительным образом сочетались “тропические” и “арктические” черты. С одной стороны, тело было вытянутым, с очень укороченным туловищем и шеей, узкими плечами и крайне длинными ногами. С другой стороны, таз был широкий, руки относительно ног весьма длинные, а предплечье относительно плеча и голень относительно бедра – короткие. Такое сочетание трудно объяснимо с точки зрения экологической целесообразности, не встречается у других ископаемых гоминид и может быть одним из лучших подтверждений гипотезы о метисном происхождении схульцев. От остальных схульцев осталось меньше костей, но и у них можно наблюдать мозаичное сочетание признаков, которое лучше объясняется метисной гипотезой, чем эволюционным уровнем этих гоминид. Кафзехцы в среднем выглядят более сапиентно, чем схульцы, однако при более-менее сапиентной форме большая часть их размеров выходит за пределы видовой изменчивости современного человека. Многомерные анализы выявляют большее сходство людей из Кафзеха с другими палеоантропами, чем с людьми верхнего палеолита. Например, размеры лица Кафзех IX, часто упоминаемого как несомненный сапиенс, совершенно нехарактерны для современных людей. Весьма необычно сочетание сильной горизонтальной профилировки верхней части лица с уплощенностью на среднем уровне и альвеолярным прогнатизмом. Верхнечелюстная вырезка и клыковые ямки выражены слабо, что тоже можно расценить как неандерталоидность. Довольно неандерталоидный облик имеют нижние челюсти Кафзех X и XV, а Кафзех V и XI занимают промежуточное неандертальско-сапиентное положение. Кисть Кафзех III, VII, VIII и IX морфологически мало отличается от кисти неандертальцев, а тазовые кости детей из Кафзеха фактически идентичны таковым неандертальских детей из Ла-Ферраси. Фрагменты костей скелета Кафзех VIII весьма массивны. Амуд I часто расценивается как классический неандерталец, но по целому ряду признаков, особенно лицевого скелета, оказывается намного сапиентнее, чем гоминиды из пещер Схул и Кафзех. Например, относительные размеры верхней челюсти значительно меньше, чем у неандертальцев Европы, а форма альвеолярной дуги не отличается от современной, хотя альвеолярный отросток спереди заметно уплощен. Сапиентны форма альвеолярной дуги и соотношение мыщелковой и угловой ширины нижней челюсти. В отличие от схульцев, таз Амуд I сравнительно небольшой, с довольно короткой лобковой костью. Бедренная кость из Романково сочетает неандертальские и сапиентные черты практически в равной пропорции. Так, “по-неандертальски” выглядят массивность, значительная толщина стенок диафиза и малый диаметр костномозговой полости, крайняя уплощенность подвертельной области, отсутствие межвертельной линии и очень слабое развитие гребенчатой линии, сильный наклон шейки, огромные размеры головки; “по-сапиентному” – большая длина, умеренный изгиб диафиза, хорошее развитие пилястра, преобладание толщины боковых стенок диафиза над толщиной передней и задней, относительно небольшие размеры нижнего эпифиза. Нижняя челюсть Зафаррайя 8698 в целом вроде бы неандерталоидна, но на ней есть слабый подбородочный выступ современного морфологического строения. Уклонением от неандертальского варианта является и поперечная выпуклость симфиза. Двубрюшные ямки на нижней стороне симфиза глубокие, но не очень широкие и ориентированы не строго вниз, а несколько назад: такая морфология промежуточна между неандертальской и сапиентной. Ретромолярное пространство хотя и присутствует, но все же не очень широкое. Разница угловой и мыщелковой ширины достаточно велика, хотя и не в такой степени, как у классических неандертальцев. Прогрессивным является также то, что нижнечелюстная вырезка разделяет мыщелок в его боковой части. Иначе говоря, все неандертальские черты тут имеют сглаженный характер. Бедренная кость из Зафаррайя тоже демонстрирует мозаику неандертальских и сапиентных признаков. Так, сечение середины диафиза круглое, а стенки толстые, как у неандертальцев, однако пилястр четко выражен, а шейка сравнительно тонкая, как у неоантропов. Череп Пеш-дель-Азе I, хотя во многом похож на других неандертальских детей, имеет ряд сапиентных особенностей. В частности, свод высокий, его боковые стенки почти вертикальны, так что при взгляде сзади череп не имеет округлой формы, а наибольшая ширина черепа заметно смещена вверх. Продольный профиль свода равномерно выпуклый, что особенно выражено на лобной кости. Нижнечелюстные ямки височных костей довольно глубокие для ребенка такого возраста. Лицо Пеш-дель-Азе I сравнительно с другими неандертальцами маленькое, очень узкое и низкое, очень узок по неандертальским масштабам нос. В отличие от всех европейских неандертальцев, у Пеш-дель-Азе I хорошо выражена верхнечелюстная вырезка, а подглазничная область низкая, с некоторым перегибом к носовой области, хотя отчетливой клыковой ямки и нет. Выражен альвеолярный прогнатизм, нетипичный для неандертальцев; форма альвеолярной дуги равномерно закругленная, без уплощения передней части. В строении нижней челюсти крайне нехарактерна для палеоантропов очень слабая разница мыщелковой и угловой ширины; кроме того, венечный отросток низок, а форма альвеолярной дуги не отличается от современной. В целом челюсть Пеш-дель-Азе I выглядит неандерталоидной при взгляде сбоку и снизу, но сапиентной при взгляде спереди и сверху. Зубы Пеш-дель-Азе I относительно небольшие, что довольно необычно для неандертальцев. Ряд сапиентных черт имеется и на черепе неандертальского ребенка Рок-де-Марсаль с датировкой 79 тыс. лет назад. Датировка делает маловероятной метисное происхождение этого индивида, но нельзя не отметить таких прогрессивных признаков, как увеличенная высота черепа, выпуклость свода в целом и лба в частности, приостренность верхнего края глазниц, отсутствие “шиньона”, не слишком большая подглазниная высота, намек на клыковые ямки, выраженные верхнечелюстные вырезки, малые размеры зубов, хорошее развитие ягодичной бугристости бедренной кости. Не исключено, что тут мы имеем дело с не до конца сложившимся классическим неандертальским комплексом, либо сказывается возраст ребенка Рок-де-Марсаль – 2–4 года. Наверное, главный кандидат на звание неандертальско-кроманьонского метиса первого поколения – человек из Сен-Сезера, найденный в 1979 г. Его череп обладает замечательным сочетанием черт, причем, хотя неандертальские явно преобладают, по числу сапиентных признаков лицевого скелета Сен-Сезер занимает первое место среди всех неандертальцев. В числе сапиентных особенностей – сравнительно тонкий и округлый надбровный валик, изогнутый не так сильно, как у прочих неандертальцев, причем толщина валика заметно уменьшена в центре и по бокам. Нетипично для большинства неандертальцев наличие как минимум трех надглазничных отверстий на правом надбровье. Практически по всем измерительным признакам Сен-Сезер оказывается в самых нижних пределах изменчивости неандертальцев и верхних – современных людей. Лицо ниже, чем у большинства европейских неандертальцев, и при этом удивительно узкое. Комплекс так называемого “среднелицевого прогнатизма” выражен довольно слабо. Глазницы маленькие, особенно замечательна их малая высота и подпрямоугольная форма, обусловленная спрямленностью верхнего и нижнего краев. Такая форма абсолютно нетипична для европейских неандертальцев. Межглазничное расстояние было довольно широким, но все же значительно ýже, чем у прочих палеоантропов. Нос сравнительно узкий, особенно по неандертальским меркам; ширина носовых костей, хотя и близка к современному групповому максимуму, в масштабе других архаичных гоминид может считаться вполне умеренной. Высота носа велика, но меньше, чем у подавляющего большинства европейских неандертальцев. В отличие от всех остальных неандертальцев, скуловая кость очень маленькая, несет сразу три скулолицевых отверстия, а лобный отросток верхней челюсти крайне короткий. Небо короткое и сравнительно узкое. Нижняя челюсть, как и остальные части черепа, имеет множество прогрессивных особенностей на фоне общей неандерталоидности. Слабое понижение кости под передними альвеолами создает впечатление наличия зачаточного подбородочного выступа, хотя никаких его сапиентных морфологических черт не обнаруживается. Ретромолярное пространство не столь велико, как у многих других неандертальцев. Крайне сапиентным выглядит соотношение между мыщелковой и угловой шириной, поскольку их разница весьма невелика. В целом комплекс черт нижней челюсти Сен-Сезер значительно ближе к современному человеку, чем у какой-либо другой находки из Европы доверхнепалеолитического времени. Зубы Сен-Сезера, особенно резцы, маленькие, меньше, чем это характерно для неандертальцев. Кости посткраниального скелета в целом неандерталоидны, но передне-задний диаметр середины диафиза бедра намного больше, чем у прочих европейских неандертальцев, что сближает соответствующие биомеханические показатели – особенности ходьбы и уровень подвижности – с таковыми людей верхнего палеолита. Сен-Сезер имеет большое значение, так как это единственный более-менее полный череп, ассоциированный с шательперроном, и одновременно один из наиболее поздних неандертальцев в Европе. В его строении в полном согласии с датировкой проявляется огромное количество явно прогрессивных сапиентных черт. Важно, что все эти признаки встречены не изолированно, а в комплексе, причем сочетание промежуточного характера культуры с промежуточным антропологическим типом заслуживает пристального внимания. Многочисленные фрагменты костей из слоя G пещеры Виндия имеют на фоне общей неандерталоидности ряд продвинутых черт. Так, кости сводов черепов относительно грацильные, некоторые довольно тонкие. Свод Виндия 230/255/256/284 сравнительно высокий, а лоб вертикальный. На многочисленных лобных костях из Виндии надбровные валики несколько уменьшены по сравнению с классическими неандертальцами и напоминают скорее лобный рельеф людей раннего верхнего палеолита Европы. Вероятно, у виндийцев не было “шиньона” затылочной кости. Судя по фрагментам верхних челюстей, высота лица и ширина носа людей из Виндии были не столь велики, как у классических неандертальцев. Вероятно, не так сильно был выражен и “среднелицевой прогнатизм”. Напротив, подносовая ость выступает больше, чем у неандертальцев. Симфиз нижних челюстей практически вертикальный, имеется слабый намек на подбородочный выступ. Наклонная зарезцовая площадка выражена очень слабо. На фрагменте челюсти Виндия 75/206 нет ретромолярного пространства. Наибольшая глубина нижнечелюстной вырезки расположена примерно посреди ее длины, тогда как у неандертальцев она сдвинута назад. Альвеолярная дуга в передней части расширена не столь заметно, как у неандертальцев. Размеры суставной ямки лопатки Виндия 209 соответствуют размахам изменчивости как неандертальцев, так и современного человека. При всем том митохондриальная и ядерная ДНК людей из Виндии типично неандертальская. Еще любопытнее, что сапиентные черты имеются и на фрагментах из слоя Ic, отложившегося около 60 тыс. лет назад, то есть задолго до документированного появления сапиенсов в Европе. Замечательно, что культурные остатки пещеры принадлежат к переходному этапу от мустье к ориньяку. В уровне G3 преобладают мустьерские орудия, но они встречаются смешанно с элементами верхнего палеолита. Здесь же найдены многочисленные ретушированные кости, а подходы древних людей к использованию материалов отличаются от мустьерских и больше схожи с верхнепалеолитическими. В уровне G1 преобладают орудия так называемой ольшевской индустрии, для которой характерны костяные орудия, но встречены и мустьерские формы. В более позднем слое F развитие ольшевской индустрии продолжается. Показательно, что многие другие поздние неандертальцы, хотя обычно и не фигурируют в списке неандертальско-сапиентных метисов, имеют явно продвинутые черты. Например, у ребенка Ле-Мустье I (40–42,5 тыс. лет назад) при взгляде сзади череп не имеет типичной для неандертальцев округлой формы, боковые стенки свода почти вертикальны, а размеры полукружных каналов довольно большие, ретромолярного пространства нет, углы нижней челюсти закругленные, восходящие ветви низкие, гребень нижнечелюстной вырезки подходит к боковой части мыщелка, альвеолярная дуга нижней челюсти имеет вполне современную форму, без уплощения передней части. Многомерные анализы подтверждают его уклонение в сторону верхнепалеолитических сапиенсов по большинству комплексов признаков. Индивид Ла-Кина 5 (65 тыс. лет назад) является одним из самых прогрессивных неандертальцев. По всем неандертальским показателям Ла-Кина 5 оказывается несколько ближе к людям верхнего палеолита, чем прочие европейские неандертальцы. Нетипична для палеоантропов малая толщина костей его черепа. В строении лобной кости Ла-Кина 5 проявляется замечательная мозаичность: наклон лба оказывается одним из самых сильных среди палеоантропов, тогда как развитие надбровного валика – одним из самых слабых. Теменные кости продольно более выпуклые, чем у прочих неандертальцев, равномерно изогнуты поперечно, без теменных бугров. При этом “шиньон” у Ла-Кина 5 выражен в большей степени, чем у всех прочих палеоантропов. Лицо весьма узкое, что крайне нетипично для палеоантропов и даже верхнепалеолитических неоантропов. Крайне приблизительно реконструированные размеры носа меньше, чем у всех прочих европейских неандертальцев. Скуловые кости весьма грацильны для палеоантропа. По всей видимости, были хорошо выражены верхнечелюстные вырезки. Много прогрессивных черт имеет мозг индивида Ла-Кина 5. У него не так резко, как у прочих палеоантропов, выражен рельеф надглазничной части лобной доли, а височная доля увеличена в передней части и удлинена сверху, чем напоминает верхнепалеолитических сапиенсов. Вместе с тем объем мозга Ла-Кина 5 невелик – около 1350 см³ или чуть больше. При выраженном неандертальском характере большинства черт нижней челюсти есть и весьма прогрессивные черты: угловая ширина не очень резко отличается от мыщелковой; край нижнечелюстной вырезки подходит к боковой части мыщелка, а не делит его пополам; альвеолярная дуга в передней части округлая. Нижняя челюсть Ла-Кина 9 еще более прогрессивна. На ней присутствует подбородочное возвышение и нет ретромолярного пространства. Один из самых сапиентных неандертальцев найден в пещере Ле-Роше-де-Вильнев и имеет датировку 41–44 тыс. лет назад (Beauval et al., 2005). При общем неандертальском комплексе соотношение продольного и поперечного диаметров бедренной кости из Ле-Роше-де-Вильнев находится практически ровно посреди размахов изменчивости неандертальцев и верхнепалеолитических людей. Толщина передней и задней стенок диафиза превышает толщину боковых, но не в такой сильной степени, как у большинства неандертальцев. По указанным параметрам из палеоантропов сапиентнее человека из Ле-Роше-де-Вильнев оказывается только Сен-Сезер 1. Замечательно, что митохондриальная ДНК человека из Ле-Роше-де-Вильнев типично неандертальская. В распределении сапиентных признаков среди неандертальцев есть одна крайне значимая закономерность, которую часто незаслуженно недооценивают: “процент сапиентности” резко возрастает у неандертальцев с датировками меньше 40 тыс. лет назад, но и до этого встречаются индивиды, имеющие явный уклон в сапиентную сторону. “Классический” вариант резко “посапиентнел” со времени появления сапиенсов в Европе, но тенденция к этому появилась еще во времена, когда сапиенсы стояли лишь на ее пороге. Это позволяет говорить о возможном генном дрейфе, не прекращавшемся все время существования неандертальского вида. Учитывая малую численность неандертальцев во все времена, этот дрейф мог быть не таким уж и слабым. Можно, конечно, считать уклон отдельных индивидов в ту или иную сторону простым проявлением популяционной изменчивости, но странно, что “сапиентный” уклон резко усиливается именно у самых поздних неандертальцев. Крайне сомнительно, чтобы они вдруг стали сами по себе эволюционировать именно в сапиентную сторону именно во время присутствия рядом кроманьонцев, но независимо от них. Не флюиды же на них влияли. Также особо стоит заметить, что генетики склонны подчеркивать резкие отличия неандертальцев от сапиенсов, но неандертальский геном расшифрован на основе самых поздних находок, которые, строго говоря, нельзя считать образцами “классического” типа. Ряд находок еще с конца XIX века заставлял предположить некоторую неандертальскую примесь у кроманьонцев верхнего палеолита. Например, найденные в 1894–1895 гг. многочисленные скелеты из Пшедмости (29,5–31,5 тыс. лет назад) несут массу архаичных особенностей, из которых мощный надбровный валик, низкий свод и шиньонообразный затылок могут расцениваться как неандертальское наследие. Сапиентный череп Байя-де-Фьер 1 (35 тыс. лет назад) имеет выраженно неандерталоидную нижнюю челюсть. Наконец, в 1998 г. был раскопан скелет ребенка Абригу-ду-Лагар-Вельу I, скошенный подбородок которого, вместе с “неандертальскими” пропорциями таза и конечностей, позволили говорить о неандертальской примеси даже у сравнительно поздних – 24,5 тыс. лет назад – кроманьонцев. Таким образом, морфологический анализ вкупе с хронологическим дает больше оснований в пользу гипотезы о наличии метисации между неандертальцами и сапиенсами, чем данные палеогенетики. Кроме метисации, трудно объяснить появление мозаичных сочетаний признаков на скелетах, а тем более увеличение их частоты у позднейших неандертальцев, их быстрое морфологическое сближение с кроманьонцами.Отрадно, что генетики, десять лет доказывавшие отсутствие метисации, после анализа ядерного генома признали-таки ее существование (Green et al., 2006, 2010 и многие другие статьи). Были даны оценки процента смешения и его времени, хотя уточнять их можно еще долго. Поначалу генетики рассчитали дату метисации более чем в 100 тыс. лет назад, позже поправили эту цифру на 37–86 тыс.
Отдельно стоит подчеркнуть, что 2 % неандертальской примеси не означают различий в общей длине генома. Многих цифры вводят в заблуждение, ведь шимпанзе вроде как отличается от человека на те же 2 % генома. Хитрость в том, что это разные проценты. Ведь можно, допустим, подсчитать, что в некоторой группе 50 % европеоидных и 50 % монголоидных предков, но это же не будет значить, что монголоиды и европеоиды отличаются друг от друга на половину генома! Всегда стоит помнить, что при разговоре о неандертальских “генах” имеются в виду на самом деле не целые гены, а отдельные нуклеотидные замены. Неандертальская примесь у человека не означает, что у него вырастут надбровные валики или “шиньон”, это значит, что где-то среди миллиардов нуклеотидов несколько “сапиентных” будут заменены на “неандертальские”.
День метиса, или Ничто не ново под Луной. Фрагменты человеческих костей были найдены в гроте Рипаро-Меццена еще в 1957 г. Останки залегали в слое шарантского мустье, а потому сразу были определены как неандертальские, несмотря на малое число определимых на обломках признаков. В 2006 г. был произведен анализ митохондриальной ДНК, который полностью подтвердил первое заключение: геном оказался вполне неандертальским (Caramelli et al., 2006). Однако не все так просто… В новой статье, опубликованной в электронном журнале PLoS ONE, франко-англо-итальянская группа исследователей наконец-то решила рассмотреть морфологические особенности людей из Меццены (Condemi et al., 2013). Как бы совсем нежданно выяснилось (с 1957 г. никто так и не озаботился описать фрагменты: “Что там – опять неандерталец? Сколько можно! Положите его в коробку на ту дальнюю полку…”), что подбородочный выступ на обломке челюсти совсем даже не неандертальский. Авторы статьи приводят подробный и детальный разбор особенностей рельефа симфиза человека из Меццены и сравнивают его с длинным рядом других архаичных гоминид – от Баринго и Тернифина до Кро-Маньона и Абри-Пато. В общем-то достаточно уже и фотографий. Челюсть из Меццены выглядит совсем не по-неандертальски: подбородочный выступ хотя и слаб, но имеет все отличительные черты сапиенса, альвеолярная дуга не уплощена (у неандертальцев линия резцов почти прямая), перед челюсти хорошо изогнут и при взгляде снизу, двубрюшные ямки расположены не строго снизу (как это было бы у неандертальца), а наклонно, что опять же типично для сапиенсов. Описание отлично подтверждается расчетами: параметры итальянской кости идеально вписываются в размах изменчивости верхнепалеолитических сапиенсов Европы и капитально расходятся с неандертальскими. И это все – при образцово неандертальской ДНК! Неандертальская она, кстати, и во фрагменте черепа из Меццены, исследованном ранее, о чем уже говорилось. Датировка людей из Меццены довольно поздняя для неандертальцев, но не слишком ранняя для кроманьонцев – 34,5 тыс. лет назад. Таким образом, напрашивается несколько объяснений. Во-первых, полученные результаты ставят вопрос об адекватности выделения ДНК из костей подобной древности. Про это много говорилось, но можно спросить еще разок: “Товарищи генетики, а вы уверены, что получаете более-менее целую ДНК неандертальца, а не артефакт?” Сходство ДНК из разных индивидов вроде говорит о том, что все это не просто глюк, но кто знает?.. Во-вторых, если ДНК все же неповрежденная: действительно ли имеющиеся отличия говорят о давнем расхождении линий? Мутации – штука непредсказуемая, генный дрейф – и подавно. Но это варианты осторожно-пессимистические, упаднические и попахивающие занудством и неверием в прогресс. Гораздо интереснее третья возможность. В-третьих (к этому варианту склоняются авторы статьи), наличие неандертальской мтДНК в сапиентной по морфологии кости хорошо интерпретируется как результат метисации. Мама – неандерталка, папа – кроманьонец. Время и место идеально подходят. Все сходится! Показательно, что среди других позднейших неандертальцев авторы рассматриваемой статьи (конечно, и тут вполне неожиданно) тоже обнаружили уклонение в сторону сапиенсов. Особенно этим отличается Спи I. Среди более-менее стандартных неандертальцев край распределения, направленный в сапиентную сторону, занимают Ла-Ферраси I и, конечно, Сен-Сезер. Так и хочется воскликнуть: кто бы мог подумать?! Еще хочется ехидно сказать: “А я же говорил!”, ибо в своей кандидатской диссертации, писанной на ранней заре XXI века, я, помнится, на основании гораздо большей цифири пришел ровно к тем же – и даже большим – выводам. Но, как ни жаль признаваться, я отнюдь не был первым. Подобного рода факты и заключения, если честно, были известны еще в XIX веке. Все же приятно, когда в далекой теплой стране умные люди еще разок приходят к той же мысли, да еще обосновывая ее столь мудреными и высокотехнологичными методами, как секвенирование ДНК и геометрическая морфометрия.Кроме того, следует подчеркнуть, что вообще-то далеко не все генетики согласны с озвученными выше выводами. Многие считают, что “неандертальские” и “денисовские” “гены” на самом деле достались нам не путем метисации, а от общих с неандертальцами и денисовцами предков (Eriksson et Manica, 2012; Lowery et al., 2013). Математически это выглядит весьма убедительно. А на нуклеотиде не написано, откуда он вклинился в ДНК. Правда, географическое распределение групп с этими загадочными “генами” свидетельствует скорее все же в пользу метисации.
Если принять, что смешение популяций все же было, то оно могло быть и прямой причиной исчезновения неандертальцев. Их численность всегда была мала. Как уже говорилось, повышенный уровень мужских половых гормонов у женщин мог создавать проблемы с вынашиванием и рождением детей. Пока неандертальцы были единственными людьми Европы и Западной Азии, все было отлично – хищники и не должны слишком плодиться. Но ушлые кроманьонцы нарушили тысячелетний баланс. Даже если они не превосходили бы неандертальцев интеллектуально и технически (а они, видимо, таки превосходили), а только лишь быстрее плодились, то за не слишком большое число поколений должны были вытеснить неандертальцев. А метисация должна была еще ускорить процесс, растворяя немногочисленных аборигенов в ордах пришельцев. Полукровки и бастарды заполонили мир, но доля исходных групп была сильно неодинакова, так что сапиентность безоговорочно возобладала.
С другой стороны, это можно рассматривать и иначе: а вымерли ли вообще неандертальцы? Скажем, в США сейчас примерно 2,5 млн индейцев, а общее население – 321 млн, то есть индейцы составляют 0,78 % (в реальности еще меньше, ведь среди современных индейцев на самом деле преобладают метисы). Так кто вымер – неандертальцы, последние из которых бродили по Европе 28 тыс. лет назад, но давшие 1,6–1,8 % примеси в европейцев, или индейцы?
Немалое значение для решения всей этой путаницы имеет датировка последних-распоследних неандертальцев. Жаль, что сам этот вопрос до крайности непрост.
Большинство данных сходится на позднейшей цифре для последних неандертальцев около 28 тыс. лет назад (например: Вишняцкий, 2007). Однако есть несколько любопытных исключений. В португальской Грута-до-Кальдерао мустьерский слой был датирован 18,06–27,6 со средней 23,04 тыс. лет назад (d'Errico et al., 1998). Еще более выдающиеся цифры получены для крымских местонахождений. Верхние микокские слои стоянки Пролом II трижды были датированы 22–25 тыс. лет назад (Степанчук, 2005; Степанчук и др., 2004), хотя датировавшиеся образцы происходят из слоя, залегающего непосредственно под современной почвой, и могли быть загрязнены.
Самые же сенсационные результаты – восемь радиоуглеродных дат в двух разных лабораториях – получены для мустьерских слоев крымской стоянки Шайтан-Коба IV: 14–21 тыс. лет назад (Степанчук, 2005; Степанчук и др., 2004)! Вряд ли это ошибка, независимая проверка это гарантирует. Так что же, неандертальцы задержались в Тавриде до конца плейстоцена? Пока этот вопрос остается открытым…
Впрочем, все всегда надо проверять и перепроверять. Отличным примером служит испанская стоянка Агут. Орудия отсюда были определены как зубчатое мустье, здесь даже были найдены четыре фрагмента зубов, тут же, конечно, приписанные неандертальцам (раз мустье – то чьи же еще?), хотя сильная стертость и не позволяла провести полноценный морфологический анализ. Однако серия датировок торий-урановым и радиоуглеродным методом однозначно указали, что слой имеет возраст всего 8–13 тыс. лет назад! Что же, неандертальцы засиделись в окрестностях Барселоны вплоть до голоцена?! Но нет, внимательное рассмотрение орудий и сравнение их с изделиями с других окрестных стоянок показало, что они, похоже, относятся к эпипалеолиту (Vaquero et al., 2002). Мы имеем тут дело с культурной конвергенцией. Да, не только звери могут быть похожи друг на друга; если перед людьми стоят одинаковые задачи, они могут начать делать одинаковые орудия. Рука-то, держащая отщеп, одна и та же, дерево и мясо, которые надо разрезать, тоже ничем не отличаются. Так что камни и зубы из Агута не имеют к неандертальцам никакого отношения.
Последние неандертальцы доживали свой век в самых бесплодных, хотя и живописных местах – Пиренеях, Балканах, Кавказе и Крыму. Характерно, что смена неандертальцев кроманьонцами происходила почти без смены фауны, разве что пещерные медведи вымерли практически синхронно с коренными европейцами. Но влияние климата все же, видимо, было. Например, для Испании установлено сокращение численности последних неандертальцев в холодные периоды, когда расширялись степные и полупустынные ландшафты (d'Errico et Goni, 2003).
Не обошлось и без катастрофических гипотез. Например, в отложениях Мезмайской пещеры на Кавказе четко видны прослои, образованные пеплом вулканических извержений. Европу несколько раз подряд настигали довольно мощные катаклизмы: 43,4–45,3 тыс. лет назад извергся Эльбрус, около 39 тыс. лет назад – Таштебе, 39,28 – Флегрейские поля в Италии, менее 36 тыс. лет назад – Казбек (Golovanova et al., 2010). Все они приводили к понижению температуры и локальным ледниковым периодам. Кроме прочего, немаловажным было и отравление ядовитыми шлаками. В отложениях над вулканическими прослоями наблюдается уменьшение числа костей животных и смена орудийных комплексов. Если кавказские извержения имели достаточно локальный эффект, то кампанское игнимбритовое суперизвержение Флегрейских полей повлияло на климат и экосистему всего Северного полушария. По мнению авторов концепции, такие глобальные потрясения могли критически подорвать численность крупных копытных и, соответственно, неандертальцев.
Неандертальцы не жили вместе с сапиенсами в Европе… Или все-таки жили? В 2011 г. вышли две статьи, посвященные проблеме датировок последних неандертальцев. Обе статьи опубликованы в очень престижных и уважаемых журналах, так что в корректности приведенных данных не приходится сомневаться. Тем не менее выводы их могут показаться противоречащими друг другу. В чем же дело? Первая статья, опубликованная в Science международной группой исследователей, в которую входит наш соотечественник, археолог из Коми Павел Юрьевич Павлов, посвящена датировке палеолитических слоев стоянки Бызовая на Северном Урале (Slimak et al., 2011). Стоянка Бызовая находится на правом берегу реки Печоры. Это одна из самых северных палеолитических стоянок. Раньше ее относили к верхнему палеолиту. Стоянка была открыта в 1965 г. и изучалась последовательно советскими археологами, затем норвежско-российской командой, затем французско-российской командой. Здесь, на площади 550 м², найдено 4000 костей животных и более 300 каменных орудий. К сожалению, останков тех, кто изготовил эти орудия, пока что обнаружить не удалось… Типологически индустрия Бызовой вполне соответствует европейскому мустье – индустрии, обычно ассоциируемой с неандертальцами. Показательно, что это не просто мустье, а образцовое мустье, поскольку в коллекции вообще нет орудий верхнепалеолитического облика, зато есть артефакты, обработанные в технике леваллуа. А ведь Бызовая находится почти на 1000 километров северней ранее известных мустьерских стоянок. Но самое замечательное, что древность слоев, содержащих эти орудия, составила 31–34 тыс. лет назад. В это время в Европе уже давно царил верхний палеолит. Авторы статьи провели датирование костных материалов, обнаруженных на стоянке, радиоуглеродным методом и получили калиброванные даты от 34 580 до 31 370 лет назад. Надежность датировок подтверждается тем, что другой метод датирования – метод оптически стимулируемой люминесценции – дал сходный результат: 30–34 тыс. лет назад. Авторы осторожно указывают, что пока на Бызовой не найдены останки людей, утверждать, что это обязательно были неандертальцы, неправильно. Возможны два варианта: либо последние неандертальцы добрались до Северного Урала, либо туда же проникли самые ранние сапиенсы, изготовлявшие среднепалеолитические орудия, – еще до всеобщего распространения по Европе верхнепалеолитической культурной традиции. До настоящего времени находки останков сапиенсов в сочетании с мустье крайне редки и всегда это не совсем сапиенсы. И вторая статья… Вторая статья, опубликованная в PNAS международной группой исследователей, в которой ведущее место занимают археологи из Санкт-Петербурга Любовь Витальевна Голованова и Владимир Борисович Дороничев, посвящена пересмотру прямых датировок костей неандертальцев и древнейших сапиенсов Европы (Pinhasi et al., 2011). Главный вывод статьи – не было такого периода, когда бы в Европе сосуществовали неандертальцы с сапиенсами. Ранее полученные другими учеными радиоуглеродным методом “слишком” молодые датировки неандертальцев теперь, с применением новых методов подготовки датируемых образцов, удревняются, отчего между неандертальцами и сапиенсами возникает хронологический разрыв. Известны несколько неандертальских местонахождений Европы, возраст которых, как полагали, моложе 36 тыс. лет. Это пещера Окладникова на Алтае, пещера Мезмайская на Северном Кавказе, Виндия в Хорватии и Спи в Бельгии. Однако эти датировки подвергаются сомнениям. Самым “молодым” неандертальцем, по оценке авторов статьи, оказывается индивид из Мезмайской пещеры – 39,7 тыс. лет назад. Данное исследование продолжает ранее выдвигавшуюся теми же авторами концепцию вымирания неандертальцев из-за грандиозных извержений вулканов на Кавказе и в Италии. Сапиенсы же после исчезновения неандертальцев смогли заселить уже пустые территории. Каков же итог? Во-первых, неандертальцы могли продержаться на Северном Урале почти до 30 тыс. лет назад. Во-вторых, позднейшие неандертальцы Европы вымерли на Кавказе чуть позже 40 тыс. лет назад. Неувязка в 10 тысяч лет очевидна. Но!.. Во-первых, на Бызовой нет человеческих костей. Как уже говорилось, авторы сами допускают, что мустьерскую технику могли применять тут и сапиенсы. Правда, это предполагает довольно тесное предшествующее общение сапиенсов с неандертальцами… Но где и когда оно осуществлялось? Может, еще 100 тыс. лет назад в Леванте? Во-вторых, вероятный размах пересмотренных датировок неандертальцев Виндии (обладающих, кстати, рядом сапиентных черт) немало перекрывается с размахом датировок сапиенсов из Пештера-ку-Оасе – 34–42 тыс. лет назад. А люди из Пештера-ку-Оасе имеют, по мнению Эрика Тринкауса, ряд неандертальских черт (многие антропологи особой неандертальскости тут не замечают, лишь архаику общего плана, но Э. Тринкаус изучает неандертальцев десятки лет, ему видней). Кроме того, проведенный в 2015 г. анализ ДНК показал-таки великую долю неандертальскости у Пештера-ку-Оасе 1 – до 6–9 % по всему геному и едва ли не половину в двенадцатой хромосоме; это больше, чем у кого-либо еще в древности или современности. Вероятно, метисация произошла всего за 4–6 поколений до жизни этого человека (Fu et al., 2015). В-третьих, останки из Кентс-Каверн, ранее определенные как сапиенсы и имеющие возраст 35–36 тыс. лет назад, рядом антропологов пересмотрены как неандертальские. Авторы статьи в PNAS справедливо отмечают этот факт, но помещают людей из Кентс-Каверн в группу сапиенсов, а датировки оценивают как крайне ненадежные. Примерно то же можно сказать о пещере Окладникова: и антропологическая принадлежность неясна, и с датировками не все слава богу. В итоге вопросов, как обычно, остается больше, чем ответов. Вариантов решения проблемы много, и они противоречивы. Что ж, такова наука. Понятно, что такое заключение очень не понравится людям, ждущим от антропологии однозначных ответов. Но не будь исследований, подобных рассмотренным, не будь ожесточенных споров и дискуссий – не было бы стимула для развития научной мысли, а мы бы никогда не узнали об истоках нашего рода. Мы разошлись как в море корабли: неандертальцы и сапиенсы разминулись на Кавказе… Начиная с открытия первого неандертальца ученые вели между собой жаркие споры: встречались ли когда-либо и где-либо последние неандертальцы с первыми сапиенсами? Диапазон мнений был весьма широк, с появлением новых данных то одни, то другие исследователи торжествовали победу. То объявлялось, что окончательно доказано, что сапиенсы не имеют ни малейшего отношения к неандертальцам, то, напротив, приводились убедительные свидетельства их тесных взаимодействий на протяжении тысяч лет. В конце XX – начале XXI века наибольший накал страстей вызывали исследования генетики неандертальцев. Опять же, сначала утверждалось, что ДНК неандертальцев и сапиенсов слишком различны, чтобы говорить об их смешивании, недавно же было насчитано 1,6–2,1 % неандертальского вклада в наш генотип, плюс еще примесь от денисовцев. Многие так увлеклись тасованием нуклеотидов, что позабыли об археологии. А она дает свою картину. Статья, написанная международной группой исследователей и опубликованная в Journal of Human Evolution, подлила еще немножко масла в огонь (Pinhasi et al., 2012). Датировки средне– и верхнепалеолитических слоев целого ряда важнейших стоянок Северного и Южного Кавказа показали, что неандертальцы ни в одном случае не обнаруживаются позднее 37 тыс. лет назад. Сапиенсы же появляются во всех пещерах через несколько тысяч лет после исчезновения неандертальцев. Сравнивая эти данные с материалами по другим регионам, исследователи делают вывод, что две разновидности древних людей никогда не встречались друг с другом. Отличная новость! Правда, она не отменяет того, что для целого ряда неандертальских стоянок на Балканах, в Испании и других регионах ранее делались датировки вплоть до 28 тыс. лет назад. Да и неандертальский генетический вклад в сапиенсов никто доказательно не опроверг. В принципе, логично, что сапиенсы заселяли в первую очередь самые благоприятные – равнинные – регионы Европы, а в горы Кавказа полезли в последнюю очередь. Таким образом, если для конкретного региона проблема вроде как решена, она остается в целом. Велика Европа, и стоянок в ней не счесть!Неандертальцы и сапиенсы в тех местах, где жили все же синхронно, как могли старались держаться подальше друг от друга. Особенно наглядно это проявилось в Испании, где отличным разделителем двух миров служила река Эбро (например: Zilhão, 2000). Нельзя сказать, чтобы это была какая-то слишком уж выдающаяся река, но она почти по прямой разрезает Пиренейский полуостров на две неравные части. На север от нее жили кроманьонцы, на юг – неандертальцы. Это продолжалось примерно 5000 лет – больший отрезок, чем отделяет строителей египетских пирамид от нас! Трудно сказать, что мешало тем или другим людям переплыть-таки Эбро – врожденное ли благородство предков будущих донов или столь же врожденная неспособность построить примитивнейший плот, но статус-кво поддерживался в Иберии, как нигде. Конечно, в конце концов переправы были наведены, а неандертальцам пришел конец. Однако сторонники неандертальцев утверждают, что перед исчезновением они успели научить кроманьонцев изготовлению украшений и костяных орудий. Ведь неандертальцы много тысяч лет жили в Европе, были как нельзя лучше адаптированы к условиям ледникового периода, особенно учитывая тропическое происхождение кроманьонцев. Возможно, именно смешение генов и культур помогло первым неоантропам быстро приспособиться к совершенно новым для них природным условиям. И не с тех ли пор у европейцев относительно широкая кисть, широкая стопа, массивный сравнительно с населением других материков череп и скелет? Тут, конечно, споры разгораются с новой силой.
Вымирание неандертальцев. Опять. С момента открытия неандертальцев – с середины XIX века – не утихают споры об их судьбе. Каких только версий не выдвигали за полтораста лет! Суммируя их, у неандертальцев просто не было шансов, остается удивляться, как они и их предки протянули сотни тысяч лет в столь негостеприимном мире. Огнедышащие вулканы и смертоносные тропические бактерии, коварные кроманьонцы и собственная глупость, инцест и фатальная необщительность, технологическая отсталость и ледниковые стужи… Только что не зеленые человечки виноваты в исчезновении бедолаг. Среди всего прочего обычно красной строкой идет мысль, что неандертальцы существенно уступали современным людям в умениях, ремеслах и живости ума, а потому-то, дескать, и не устояли перед жизненными невзгодами. Не раз, конечно, возникали и сомнения в такой позиции: как-никак, размер мозга неандертальцев весьма впечатляет. И вот очередная серия боевика “Вымирание неандертальцев”. Паола Вилла и Вил Роэрбрукс опубликовали в электронном журнале PLoS ONE очередной обзор мнений об исчезновении наших двоюродных родственников (сосредоточившись на “археологических” и “социальных” вариантах) и предложили свою версию (Villa et Roebroeks, 2014). Согласно мнению археологов, одна из проблем многих прежних гипотез в том, что технологические достижения более древних неандертальцев сравнивают с новациями кроманьонцев, появившимися значительно позже. Так как же можно ставить их на одну доску? Авторы новой статьи напрямую сравнивают культуры западноевропейских неандертальцев и синхронных африканских предков сапиенсов (в западной литературе они обычно прямо называются сапиенсами). Сравнение проведено по символизму, методам охоты и диете, организации жизненного пространства, умению делать составные орудия и использовать огонь, а также более философским вещам, таким как “способность к инновациям” и “размеры социальных сетей”. Авторы приходят к выводу, что существенных различий между уровнями развития неандертальцев и сапиенсов по всем этим показателям не было. П. Вилла и В. Роэрбрукс предполагают, что вовсе не интеллектуальная дремучесть неандертальцев повинна в их исчезновении, а комплекс факторов. Низкая плотность населения, малое генетическое разнообразие вследствие близкородственного скрещивания, ограниченность культурных контактов, сужение ареала – вот предтечи катастрофы. Коварным оказалось и смешение с мигрантами с югов – кроманьонцами: во-первых, мужчины-гибриды часто оказывались бесплодны, во-вторых, “неместных” оказалось существенно больше и неандертальцы просто растворились в ордах пришельцев. Понаехали, одним словом! Но! Во-первых, часто повторяющаяся в статье фраза “различия не существенны” настораживает. Различия таки были, и современному человеку очень трудно понять, насколько они были существенны для жизни в каменном веке. Недооценка как бы мелочей запросто может подвести человека цивилизации. Это работает не только на примере троглодитов. Например, сидя в уютной современности, легко игнорировать разницу остроконечника и черешкового наконечника, копьеметалки и лука, плетеной корзины и керамического сосуда, мягкого и жесткого седла, кожаного и металлического доспеха. И это, разумеется, наиболее очевидные противопоставления. В нелегкой жизни ледникового периода любая новация могла дать преимущества, каждая удачная мысль привести к перевесу в пользу родной орды. Во-вторых, остается без объяснения, почему столь умные-разумные неандертальцы при равных способностях и схожем стиле жизни имели все же меньшую плотность. Почему кроманьонцев оказалось больше, причем настолько, что неандертальцы растворились в них? Почему не наоборот? Пришельцы не имели приспособлений к местным условиям, страдали от отсутствия опыта жизни в приледниковом климате, бесплодие потомков мужского пола должно было ударить и по их демографии, странно, если бы оно затронуло лишь аборигенов. Авторы приводят аналогию с ситуацией, когда в Европу на смену мезолитическим охотникам-собирателям пришли носители неолитического уклада с Ближнего Востока и демографически поглотили малочисленных европейцев. Дескать, интеллектуальные способности у них явно были одинаковые, они же были одного вида. Однако почему-то упускается факт, что производящее хозяйство неолита гарантировало значительно большую численность и плотность населения – конечно, охотники растворились в новых пришельцах. Но что было причиной демографических различий неандертальцев и сапиенсов? В статье нет на это ответа (ответов-то давно предложена масса: например, у неандертальских детишек были слишком большие головы, что приводило к повышенной смертности при родах; у неандертальцев, в том числе у неандерталок, было повышенное содержание мужских половых гормонов, что опять же приводило к риску абортов и проблемам с деторождением; однако в статье об этом речь не идет). В-третьих, новая концепция как-то подозрительно напоминает уже не раз и давно опубликованные идеи. Например, в книге “Культурная динамика в середине позднего плейстоцена и причины верхнепалеолитической революции”, вышедшей в 2008 г., Л. Б. Вишняцкий на огромном материале – фактически со всего света – подробнейше разобрал сию проблему. Более того, Л. Б. Вишняцкий сделал это не “на глазок”, а обосновал статистически. Правда, цели и выводы у него были несколько иные. Его интересовало не вымирание неандертальцев, а, напротив, природа технологического рывка при переходе к верхнему палеолиту. Но суть – сравнение достижений палеоантропов и неоантропов – от этого не меняется. В новой статье работы Л. Б. Вишняцкого не цитируются. Видимо, мы имеем дело с очередным полувелосипедом. Можно бы скромно помянуть и трехлетней давности мой доклад на заседании клуба “Антропогенез.ру” “Судьба неандертальцев” (http://antropogenez.ru/article/239/), но он, естественно, не мог быть оценен зарубежными коллегами. А ведь там тоже говорилось о демографическом растворении неандертальцев в сапиенсах… Что ж, хочется верить, что разгадка исчезновения наших предшественников еще немножечко приблизилась. Неандертальцы никогда не перестанут будоражить воображение людей, ведь в их судьбе кроется важный урок нам, намек на нашу возможную судьбу. Наука должна иметь предсказательную силу, так не пора ли начать пользоваться ей?А что же происходило в странах восходящего солнца? На индонезийском Флоресе во времена палеоантропов жили “хоббиты”, про которых подробно говорилось выше. Эти странные человечки – измельчавшие потомки питекантропов – не оставили никакого следа в современности, кроме разве что смутных легенд об эбу гого.
На Дальнем Востоке население, синхронное гейдельбергским людям Европы и Африки – до 130 тыс. лет назад, почти не отличалось от них внешне. А вот последующая судьба этого населения неясна. Антропологические находки в Китае и соседних странах в промежутке от 130 до 40 тыс. лет назад почти неизвестны. Нельзя сказать, чтобы их совсем не было, но их очень мало, и они слишком фрагментарны.
Больше всего шуму в последние годы наделали, конечно, денисовцы. Загадочные люди, известные, вопреки житейской логике, только по ДНК, они населяли, видимо, всю восточную часть Евразии. Зубы и фаланга из Денисовой пещеры на Алтае дали нам генетику, но облик их остается неизвестным.
Нашествие денисовцев. Денисовцы – странные люди, о которых стало известно совсем недавно. Казалось бы, только-только обратили внимание на зуб, долгие годы лежавший в коробочке в Новосибирске, нашли еще один и фалангу пальца, расшифровали сначала митохондриальную, а вот уж, гляди, и ядерную ДНК. Еще пару лет назад слова “денисовцы” в принципе не было, а генетики уверенно утверждали, что сапиенсы – чистокровные африканцы без малейшей примеси “местных”, а сейчас наследие денисовцев, оказывается, исчисляется процентами генома! Началось с того, что “денисовские гены” были обнаружены у жителей Новой Гвинеи и острова Бугенвиль в Меланезии; почти сразу, приглядевшись, обнаружили их и у австралийских аборигенов (что до крайности логично). Было заявлено, что у других жителей планеты этих генов нет. Выходило, что восточные экваториалы “нахватались” денисовских генов по пути на новую родину где-то в Южной Азии, причем еще до появления там людей, которые стали предками монголоидов. Но генетики любят пересматривать свои хитрые расчеты. Две статьи, вышедшие в 2011 г., “расширяют” денисовское влияние чуть ли не на половину населения планеты! В начале октября 2011 г. “денисовские гены” (конечно, корректнее говорить о характерных для денисовцев последовательностях нуклеотидов, а не генах – гены-то и у шимпанзе те же самые, – но, да простят нам ужасный вульгаризм генетики, мы будем для простоты писать известное народу слово “гены”) были выявлены в 33 популяциях Океании и Юго-Восточной Азии, в том числе у папуасов Новой Гвинеи, австралийских аборигенов (даже больше, чем у папуасов), полинезийцев, фиджийцев, восточных индонезийцев с разных островов (включая жителей Флореса – не забывайте о “хоббитах”!), филиппинцев и у филиппинских аэта-маманва (чернокожих курчавоволосых пигмеев, неродственных африканским пигмеям; Reich et al., 2011). Намного меньше или совсем не оказалось “денисовских генов” у жителей Тайваня и Малайзии, западных индонезийцев (с Суматры и Калимантана), индийцев, андаманцев-онге и семангов-джехай из Малайзии. Последние две группы внешне очень похожи на филиппинских аэта – тоже низкорослые чернокожие курчавоволосые люди – и традиционно объединялись с ними в одну расу. Однако же выходит, что примесь древних генов у них заметно разная. Впрочем, из таблиц, приведенных в статье, получается, что хоть и малая, но некая доля “денисовских генов” у андаманцев, семангов и даже некоторых тайваньцев, суматранцев и калимантанцев все же может быть (можно ее списать на генные потоки последующих времен, но можно считать и остатками гораздо большей древней примеси). Выходит, что смешение с денисовцами происходило не в Центральной, не в Южной и даже не в Юго-Восточной Азии, а в Восточной Индонезии. В более северные районы примесь могла попасть позже вследствие генного дрейфа. Это, кстати, красиво объясняет грацильность древнейших азиатских сапиенсов из Там-Па-Линг и Ниа и массивность австралийских аборигенов: у первых денисовской примеси нет, а предки вторых получили ее уже восточнее Индокитая и даже Калимантана. Вторая статья, опубликованная тоже в 2011 г., еще шире раскрывает нам глаза на денисовское наследие (Skoglund et Jakobsson, 2011). “Денисовские гены” всего за месяц исследований уже перешагнули рубеж западной и восточной частей Индонезии и “добрались” не только до Юго-Восточной Азии, но даже до некоторых групп в Южной Америке! Более того, у народа йизу из Южного Китая “денисовских генов” оказалось больше, чем у меланезийцев Бугенвиля (хотя и чуть меньше, чем у новогвинейских папуасов)! Что это – выверты генного дрейфа или следствие извилистых миграций? Хитроумное жонглирование частотами генов привело к выводу, что вследствие генного дрейфа “денисовские гены” имеются даже у европейцев и негров Африки, причем забавно, что у французов их больше, чем, например, у русских и монголов, а у французских басков – меньше. Меньше всего денисовской примеси выявляется в Западной Индии и Пакистане – Гималаи сделали свое дело; очень мало их и в Палестине. У жителей Северной Азии (Северного Китая, Японии, Монголии и Сибири) и индейцев Северной Америки (всего две группы – пима и майя, так что выводы крайне ненадежные) “денисовской крови” практически не оказалось. Авторы исследования делают из этого тот вывод, что выделение предков сибиряков и индейцев произошло еще до смешения с денисовцами. А ведь это выделение было сравнительно недавно – максимум 20–30 тыс. лет назад, а скорее всего – гораздо позже. Так что денисовцы бродили по Юго-Восточной Азии совсем недавно! Интересно, что в двух группах Южной Америки – индейцев каритиана и гуахиба – денисовской примеси гораздо больше, чем в группах Северной. Можно пытаться связать это с давно предполагавшейся экваториальной – меланезийской – примесью у южноамериканских индейцев (например, много рассуждалось о “меланезийскости” женщины из Лагоа-Санта в Бразилии), но вероятнее просто примесь от заселившихся совсем недавно жителей Южной Азии. Другой замечательный вывод данной статьи – неравномерность распределения неандертальских генов по современным неафриканцам. При первоначальной расшифровке неандертальского генома утверждалось, что неандертальское наследие имеет примерно равное представительство у всех неафриканских жителей. Теперь же выясняется, что в Европе и Пакистане его все же гораздо больше. Логично. Впрочем, стоит помнить, что в значительной степени эти выводы – следствие моделирования генных процессов, а не выявления реальных частот генов в конкретных популяциях. Что день грядущий нам готовит?..Денисовцы одарили наших предков в том числе полезными приспособлениями. Анализ генома современных тибетцев показал, что гены защиты от гипоксии – недостатка кислорода, то есть жизненно важные в высокогорье, достались им с большой вероятностью именно от денисовцев (Huerta-Sánchez et al., 2014). Другие популяции растеряли столь ценное наследие, но в горах Центральной Азии оно закрепилось. Возникает, правда, вопрос – зачем самим денисовцам были эти гены? Они жили в заоблачных горах? Денисова пещера расположена не так уж высоко над уровнем моря, а метисироваться с сапиенсами денисовцы должны были вообще в приморских районах. Как обычно, загадок становится только больше.
Алтай – пуп Земли? Сапиенсы, неандертальцы, денисовцы… “чагырцы”? Алтайская земля не устает радовать антропологов. Лишь начал утихать ажиотаж, развернувшийся в связи с обнаружением денисовцев, как трудолюбивые археологи нашли “чагырцев”. В 2008–2012 гг. в Чагырской пещере экспедиция под руководством С. В. Маркина производила раскопки. В слоях, образовавшихся 40–45 тыс. лет назад, были найдены многочисленные мустьерские орудия, весьма схожие с таковыми из пещеры Окладникова. А в окладниковской пещере, как известно из анализа митохондриальной ДНК, жили и неандертальцы, и сапиенсы. А в то же время (“в то же” – это “очень давно”, ибо точных датировок нет) неподалеку (в Сибири, как известно, 100 км – соседи) в Денисовой пещере жили и неандертальцы, и денисовцы, и – можно догадаться – сапиенсы. А орудия там тоже образцово-показательно мустьерские. Так что жителями Чагырской пещеры потенциально могли быть кто угодно. И их кости были-таки найдены! В 2013 г. в новосибирском журнале “Археология, этнография и антропология Евразии” М. Б. Медникова и А. П. Бужилова опубликовали две статьи, посвященные антропологическим находкам из Чагырской пещеры (Бужилова, 2013; Медникова, 2013). Останки не отличаются особенной целостностью, зато их довольно много. Обнаружены нижняя челюсть, фрагмент затылочной кости, многочисленные зубы, позвонки, ребро, грудина, ключица, таз, куски костей рук и ног, коленная чашечка, кости кистей и стоп. Кости принадлежали минимум трем индивидам разного возраста, хотя были разрознены и разломаны. В публикациях подробно описаны зубы и локтевая кость. Зубы из Чагырской пещеры очень большие. Такие же размеры абсолютно типичны для неандертальцев, но крайне редко встречаются у верхнепалеолитических кроманьонцев. В ту же сторону указывают и одонтоглифические признаки – особенности строения эмали: разного рода бугорки, ямки и бороздки. Однако как по некоторым размерам, так и по целому ряду описательных признаков чагырские зубы явно отличаются от неандертальцев в сапиентном направлении. Характерно, что такой же смешанный или переходный комплекс характерен и для зубов из пещеры Окладникова. Конечно, интерпретировать такое сочетание можно двояко. С одной стороны, переходность признаков вполне может означать эволюционную переходность. Без сомнения, такая версия не может не порадовать академика А. П. Деревянко – ярого сторонника независимого возникновения сапиенсов на основе местных палеоантропов в Европе и Азии. С другой же стороны, промежуточность и полусапиентность позднейших неандертальцев, живших в то же время, когда из-за лесу, из-за гор уже наступали сапиентные орды, запросто объяснима метисацией. Такой расклад не может не порадовать автора этих строк, который с упорством готов находить все новые свидетельства резкого “посапиентнения” последних неандертальцев из-за смешения с кроманьонцами. Приятно, когда всем приятно! Даже более любопытным кажется фрагмент локтевой кости. Казалось бы, невелика находка – только верхняя часть. Однако на ней Мария Борисовна исхитрилась измерить аж 25 размеров! Приятно и то, что данная часть скелета сохраняется не так уж редко, так что сравнение оказалось возможно почти с тремя десятками других ископаемых людей – палео– и неоантропов. И тут выявились три замечательнейшие вещи! Во-первых, на верхушке чагырской кости есть окостенение связки. Похожие выросты нередки у неандертальцев. В некоторых случаях подобные штуки могут быть следствием болезни Форестье (диффузный идиопатический гиперостозный синдром, или DISH). Таковая обнаружена у шанидарцев и киик-кобинца, но постановка этого диагноза требует оценки состояния многих костей, а в Чагырской пещере их явно не хватает. Любопытно, что часто болезнь Форестье связана с жирной мясной диетой – как раз неандертальский случай. У современных людей она также сопровождается диабетом (вряд ли он грозил чагырцу в силу опять же его диеты) и ожирением. Это уже дает нам определенный облик – художникам на заметку… Во-вторых, по большинству измерительных и описательных признаков кость выраженно неандертальская. Это хорошо соответствует выводу, сделанному на основании исследования зубов. В частности, судя по некоторым особенностям, чагырец умел очень здорово вертеть ладонью вперед-назад (супинировать и пронировать кисть) и часто пользовался согнутой рукой – это отмечено для многих неандертальцев. Но есть и в-третьих! Ширина венечного отростка чагырца чрезвычайно велика – рекордна для всех измеренных ископаемых гоминид! Любопытно, что единственный африканский эректус, попавший в анализ, Баринго 66 отличается прямо противоположной – одной из минимальных – величиной этого размера. Так что данная особенность чагырца вряд ли является архаичной, скорее уж специализированной. Конечно, трудно оценивать значение единственного признака на единственной кости, но рекорды всегда привлекают внимание. Любопытно, что в отличие от зубов из Чагырской пещеры, локтевая кость не обнаруживает какой-то промежуточности к сапиенсам. Напротив, она показательно несапиентная: в многомерном анализе она оказалась на краю распределения неандертальцев, причем на краю, максимально удаленном от сапиенсов. И тут мы можем задуматься: а вправду ли перед нами кость неандертальца? Пока денисовцы известны лишь по ДНК, можно гадательно приписывать им любые особенности. А ежели же это и не денисовец, то кто? “Чагырец”? Впрочем, анализ ДНК показал, что в Чагырской пещере найдены останки все же неандертальцев. Но ДНК ДНКой, а морфология морфологией. Думается, чагырцы были не самыми стандартными неандертальцами. Что ж, пещеры Алтая, видимо, хранят в своих темных недрах еще множество сюрпризов. Еще ждут своих исследователей восемь зубов из алтайской пещеры Страшной… Зубы происходят из верхнепалеолитического слоя, но удивительно велики, чем, кстати, напоминают зубы из Лиственки и Мальты. Если сибирские сапиенсы как бы неандерталоидны, а неандертальцы – как бы сапиентоидны, нет ли тут некого намека? Хочется верить, что проблема когда-нибудь решится находкой полноценных скелетов алтайского денисовца, неандертальца и кроманьонца. Но для этого надо копать! Пожелаем же сибирским археологам удачи в этом нелегком труде!Потенциальным денисовцем времен ранних палеоантропов может быть человек из китайской пещеры Мапа с датировкой 129–135 тыс. лет назад. Сохранилась лишь черепная крышка, в целом схожая с неандертальцами Европы и Западной Азии. По мнению некоторых китайских антропологов, она связует людей из Дали и Цзиньнюшаня с сапиенсами, но обоснования этому не так уж сильны.
Одна из важнейших китайских находок сделана недавно в пещере Жижендун (Liu et al., 2010). Это небольшой, но очень любопытный фрагмент нижней челюсти, поскольку при датировке 100–115 тыс. лет назад он имеет зачаточный подбородочный выступ, причем сапиентного строения. Китайские антропологи склонны рассматривать человека из Жижендуна как древнейшего сапиенса Азии. Впрочем, выступ не такой уж большой, передняя сторона челюсти фактически вертикальна, а массивность челюсти скорее напоминает гейдельбергенсисов или даже эректусов, так что делать грандиозные выводы на основании одного лишь признака вряд ли стоит.
В другой южнокитайской пещере Фуянь в слоях найдены 47 зубов, по всем основным параметрам неотличимые от современных человеческих (Liu et al., 2015). Уникальность их в том, что отложения по фауне датированы 80–120 тыс. лет назад. Возникает много вопросов: почему в пещере не найдено ни одного орудия, как эти люди взаимодействовали с синхронными палеоантропами Северного Китая, почему зубы из Фуяня не похожи на зубы современных монголоидов и австралоидов, почему мы не знаем сапиенсов Китая в последующие 40 тыс. лет? Впрочем, датировки зубов из Фуяня могут быть и не столь уж большими – разные методы дают впечатляющий разброс от 39,15 до 556 тыс. лет назад, так что единственное, что можно точно сказать: слои пещеры сильно перемешаны. Возможно, зубы в реальности позднеплейстоценовые, хотя, конечно, и в этом случае представляют большой интерес.
Другая любопытная находка сделана на Филиппинах, на севере острова Лусон, в пещере Каллао (Mijares et al., 2010). Тут в 2007 году обнаружена плюсневая кость человека, жившего 66,7 тыс. лет назад. Она интересна по двум причинам. Во-первых, кто в такое время мог попасть на Филиппины? Был ли это очередной денисовец или уже первый сапиенс? Во-вторых, размеры кости меньше, чем даже у женщин современных филиппинских негрито, причем основание кости уменьшено непропорционально сильно. Так может, это представитель еще одной разновидности “хоббитов”, возможно на основе “денисовцев”? Как выглядели карликовые лусонские охотники на мелких оленей – филиппинских замбаров и мелких хрюшек – филиппинских бородавчатых свиней? Это – очередная тайна тропического мира.
Глава 8. Палеоантропы: наши.
Откуда же взялись люди современного облика? В каких областях Земли происходила сапиентация – сложение современного комплекса биологического строения и поведения?
Изучая древних людей, разные исследователи пришли к отличающимся ответам на эти вопросы. Эти взгляды получили название гипотез полицентризма, дицентризма и моноцентризма. Отличие их состоит в разной оценке прогрессивности разных географических и хронологических групп древнего населения.
В рамках полицентризма предполагается независимое происхождение разных человеческих рас в удаленных регионах более-менее независимо друг от друга из разных групп палеоантропов или даже архантропов. Иначе говоря, сапиентация происходила по всей Ойкумене параллельно и одновременно, начиная с первого выхода гоминид за пределы Африки. Гипотеза полицентризма опирается на географическое распределение специфических признаков и на сходство современных людей и ископаемых гоминин тех же областей. Например, для синантропов и монголоидов характерна особая лопатообразная форма резцов, для неандертальцев и европейцев – силовой тип кисти, для черепа из Брокен-Хилла и негроидов – большие челюсти. Основателем концепции полицентризма является немецкий антрополог Ф. Вейденрейх. Он выделил четыре центра формирования современных рас: европеоиды якобы возникли в Южной и Центральной Европе, негроиды – в Африке, монголоиды – в Восточной Азии, а австралоиды – на Больших Зондских островах.
Развил эту гипотезу К. С. Кун, разделивший африканский очаг расообразования на два независимых – северный и южный, в которых появились соответственно капоиды и негроиды, переселившиеся затем в противоположные части континента. По К. С. Куну, каждый из пяти очагов был населен собственным подвидом архантропов. Современные же расы он делил на более и менее развитые. Несколько более умеренный вариант полицентризма с выделением трех-четырех центров сапиентации, близких друг к другу, предложил венгерский антрополог А. Тома. В отличие от К. С. Куна, А. Тома считал уровень современных рас одинаковым.
Полицентрические концепции защищали также отечественные антропологи и археологи – Г. Ф. Дебец, В. П. Алексеев, Ю. И. Семенов, А. А. Формозов. Однако они исходили из принципиально других соображений, нежели западные ученые. Непрерывность развития палеоантропов в неоантропов на разных территориях обосновывалась влиянием труда и законами развития общества, едиными для всех человеческих коллективов. Миграция же неоантропов из единого центра возникновения слишком напоминала отечественным ученым мысль о завоевании жизненного пространства “высшей расой”.
Самым сильным аргументом против полицентризма является соображение, согласно которому в случае длительного почти независимого развития архантропов и палеоантропов на разных континентах крайне сомнительно возникновение в итоге единого вида. У животных в таких случаях довольно быстро формируются новые виды. Непонятно, как из довольно разнородных архантропов и палеоантропов получились столь схожие по основным параметрам современные расы? Однонаправленность процесса сапиентации по всей планете оказывается крайне маловероятной и чуть ли не мистической.
В процессе решения этой проблемы гипотеза полицентризма переросла в современную мультирегиональную гипотезу. Ее сторонники стараются особенно подчеркнуть два основных момента: преемственность биологических признаков от архантропов до современного человека в Африке, Европе, Азии и даже Австралии с одной стороны и неравнозначность терминов “полицентризм” и “полигенность” – с другой. По мнению современных полицентристов, единство человеческого вида всегда поддерживалось многочисленными миграциями и постоянными смешениями. Генные и культурные потоки между регионами никогда не иссякали и даже со временем усиливались, нивелируя покусительства на видообразование. Так сохранялись и единство, и разнообразие человечества одновременно.
Вариантом полицентризма является дицентризм. Наиболее стройный его вариант предложен отечественным антропологом А. А. Зубовым. Проанализировав мировое распределение одонтологических признаков – строение зубов, он предположил, что человечество на стадии архантропов делилось на два главных расовых ствола – восточный (монголоиды и австралоиды) и западный (европеоиды и негроиды). Особенность такого подхода заключается в том, что признаки зубов напрямую не зависят от условий окружающей среды и потому не подвержены прямому действию естественного отбора. Они возникают достаточно случайно и, следовательно, могут быть хорошим индикатором древности группы и степени ее изолированности от других популяций. А. А. Зубов выделил два очага сапиентации, которые оказались изолированными в глубокой древности горами Центральной Азии. В последующем тропические популяции обоих стволов вследствие одинаковых условий приобрели значительное физиономическое сходство и ныне часто выделяются в единую экваториальную расу.
Проблема такого подхода в том, что тезис об особой таксономической ценности одонтологических признаков не так уж бесспорен. Конечно, виды ископаемых приматов сплошь и рядом выделяются именно по зубам, но в немалой степени оттого, что ничего другого в нашем распоряжении просто нет. Среди же современных людей весьма часто не очень родственные группы оказываются чрезвычайно похожими по строению зубов. Неадаптивность одонтологических признаков приводит к их случайному распределению в популяциях, особенно малочисленных, где “эффекты основателя” и “бутылочного горлышка” меняют их частоты совершенно произвольно и очень быстро, так что использовать их для оценки родства мы не можем.
В. П. Алексеев предположил несколько иной вариант развития событий: позднюю миграцию части экваториалов западного ствола на восток, в результате чего сложилась австралоидная раса. Таким образом, два центра происхождения современного вида человека у В. П. Алексеева сохраняются, но экваториальная раса оказывается возникшей из одного центра – западного.
Впрочем, данные современной генетики делают все эти построения неактуальными. Сейчас нам известно, что все неафриканское человечество является вариацией на тему чуть ли не одной восточноафриканской популяции. А потому ныне подавляющая часть антропологов склоняется к моноцентризму.
Согласно концепции моноцентризма, человек современного облика произошел в достаточно ограниченном регионе планеты. Потом он расселился оттуда по всей Земле, в чем ему помогал высокий уровень интеллекта и значительная биологическая и социальная пластичность. Очаг возникновения современного человека предполагался в разных областях – Африке, Европе, Центральной Азии, Дальнем Востоке, гипотетической Лемурии и даже в Южной Америке. Гипотеза существования пресапиенса в Европе, предшествовавшего неандертальцам, была убедительно подвергнута критике с биологической стороны. Лемурийская и южноамериканская версии явно страдают отсутствием хотя бы малейших доказательств. В настоящее время моноцентристы уверенно говорят об Африке как о единственном возможном месте возникновения человека или даже конкретно о Центральной или Восточной Африке.
Альтернативой может служить так называемая гипотеза широкого моноцентризма, выдвинутая советским антропологом Я. Я. Рогинским в 1969 году. Она предполагает значительно большую территорию, охваченную процессом сапиентации, – афро-европейскую прародину, то есть все Средиземноморье, включая Южную Европу и Северо-Восточную Африку, Ближний Восток и Кавказ. Процесс сапиентации был, конечно же, не одномоментным и потому завершился на значительно большей территории, нежели начался. Расселяясь из единого центра, неоантропы смешивались с аборигенными популяциями палеоантропов, живших в отдаленных регионах планеты. Этим Я. Я. Рогинский объяснял известное противоречие – наличие одновременно сходных признаков у современных людей очень отдаленных территорий и сходство в отдельных признаках современных рас с ископаемыми гомининами тех же областей.
Сейчас моноцентризм перерос в так называемую “концепцию замещения”, или “теорию африканской Евы”. Убедительные аргументы в ее пользу были получены при изучении генетики современных популяций. Выяснилось, что популяции людей, живущих южнее Сахары, по ряду генов чрезвычайно разнообразны, тогда как все группы остального человечества являются сравнительно недавними потомками одной из восточноафриканских групп.
Кстати, о Евах, Адамах и гуанчах… Математически митохондриальные линии вообще всего человечества сводимы к одной “хромосомной Еве”, а Y-хромосомные – к “Y-хромосомному Адаму”. И “Ева”, и “Адам”, что характерно, жили в Африке. Это не значит, что все человечество произошло от одной пары людей. “Ева” и “Адам” жили вообще в разные времена и были вовсе не одиноки. Их окружали тысячи других людей, которые тоже были нашими предками. Секрет в том, что вообще подразумевается под этими понятиями. Митохондриальная ДНК передается только вместе с митохондриями, содержащимися в цитоплазме яйцеклетки, то есть исключительно от матери. Из сперматозоида мтДНК в следующее поколение не идет. Поскольку мтДНК содержит мало рабочих генов, она может сколько угодно мутировать, отчего возникают бесчисленные варианты – гаплогруппы. Удобно и то, что они наследуются в чистом виде, без перемешивания-рекомбинации. Кроме того, в каждой клетке полным-полно митохондрий, отчего ее не так сложно выделить, а сравнительно небольшая длина облегчает ее расшифровку. В общем – сплошные пряники! Поэтому генетики очень любят мтДНК. Таким образом, гаплогруппа мтДНК – это фактически фамилия по матери. Митохондриальная линия – это та везучая линия женщин, где в каждом поколении обязательно рождались девочки (мальчики тоже могли, но их мтДНК канули в Лету). “Митохондриальная Ева” – это та женщина, у дочери которой родилась дочь, которая родила тоже дочь – и так вплоть до современности. Те женщины, у кого в потомстве были только мальчики, прервали свою митохондриальную линию, хотя это не помешало им передать в будущее другие гены. То же самое касается “Y-хромосомного Адама”: это тот везучий мужчина, в потомстве которого всегда были мальчики (девочки тоже могли быть, но у них не было Y-хромосомы). Если у мужчины есть только дочки, то его Y-хромосомная линия прервется, хотя прочие гены он успешно передаст дальше по эстафете поколений. Y-хромосомы тоже не рекомбинируют (ведь пара им – X-хромосомы) и тоже довольно быстро мутируют, так что и тут постоянно возникают гаплогруппы – “генетическая фамилия по отцу”. Y-хромосома есть только у мужчин и в каждой клетке лишь в одном экземпляре, так что ее труднее анализировать. Зато Y-хромосома гораздо длиннее мтДНК, так что из нее можно извлечь больше информации. Разное наследование мтДНК и Y-хромосом часто приводит к интересным казусам: сплошь и рядом бывает, что первые наследованы от одной группы людей, а вторые – от другой. Скажем, когда испанцы завоевывали Канарские острова, на кораблях приплывали, ясное дело, одни мужчины. Испанские женщины не рвались к черту на рога в дикие неблагоустроенные края. Испанцы вырезали или сгноили в рабстве всех коренных мужчин-гуанчей, но женщин брали себе в жены. Потом, конечно, по мере наведения порядка подтянулись и испанские женщины, да к тому же были привезены рабы из соседней Африки. В итоге Y-хромосомные гаплогруппы современных канарцев преимущественно североиспанские (в моряки, понятное дело, вербовались в основном самые бедные мужчины из гористой и нищей Страны басков, ведь эта профессия в те времена была едва ли не синонимом смертного приговора), а митохондриальные гаплогруппы примерно наполовину аборигенские-гуанчские, а наполовину – испанские, с некоторой примесью негритянских. Играться с гаплогруппами очень увлекательно, главное при этом помнить, что они почти ничего не говорят о преимущественном проценте аутосомных генов и X-хромосоме. Гаплогруппы – итог некоторого везения: рождались в линии девочки – сохранится мтДНК, но исчезнет Y-хромосома, рождались мальчики – строго наоборот. Другие же гены будут передаваться независимо от этого. Как и всюду в антропологии и вообще науке, осмысленные выводы можно делать, учитывая весь комплекс информации, а не один изолированный признак.Согласно концепции замещения, порядка 80–50 тыс. лет назад некая группа из Восточной Африки вышла за пределы этого континента и начала очень быстро и активно расселяться по всему миру, вытесняя живших там неандертальцев и, вероятно, потомков более архаичных видов людей. Согласно крайней версии, при этом никакого, даже малейшего смешения с жившим тут ранее населением не было, а все разнообразие рас людей возникло на основе единой вышедшей из Африки группы в период после 80 тыс. лет назад. Другие следствия гипотезы моноцентризма таковы, что выходов за пределы Африки было несколько, но потомки всех мигрантов (дманисцев, эректусов, неандертальцев, денисовцев), кроме последних (сапиенсов), вымерли без следа.
Все же ныне большинство антропологов и генетиков сходится на том, что хотя бы ограниченное смешение по крайней мере с неандертальцами и денисовцами имело место, о чем уже говорилось выше.
Синхронные европейским неандертальцам люди Африки были уже достаточно сапиентны. Как уже говорилось, многие исследователи относят к современному виду даже Омо I с датировкой 195 тыс. лет назад, а Херто описан как Homo sapiens idaltu. Тем более часто к сапиенсам причисляют людей из местонахождений Адума (79–105 тыс. лет назад) и Дире-Дава (60–77 тыс. лет назад) в Эфиопии, Бордер-Кейв (74 и 82 или до 230 тыс. лет назад), Клазиес-Ривер (60–80 или 90–105 и 110–118 тыс. лет назад), Бломбос-Кейв (98,9 тыс. лет назад), Ди-Келдерс 1 (60–80 тыс. лет назад) и Экьюс-Кейв (44–93 тыс. лет назад) в Южной Африке, Темара (130–60 тыс. лет назад), Танжер и Дар-эс-Солтан II (60–90 тыс. лет назад) в Марокко, Хауа-Фто (90–130 тыс. лет назад) в Ливии, Тарамса 2 (55,5 тыс. лет назад) в Египте.
Уголок занудства. Из многочисленных находок, сделанных в пещере Бордер-Кейв, достоверно не голоценовый возраст имеют только череп Бордер-Кейв 1 – от 82 до 230 тыс. лет назад, плечевая кость Бордер-Кейв 6 и локтевая кость Бордер-Кейв 7 из “среднего каменного века”. Череп Бордер-Кейв 1 действительно имеет ряд сапиентных признаков: лоб, возможно, вертикальный, со слабым рельефом, скуловой отросток лобной кости сравнительно тонкий, однако находка весьма фрагментарна, и возможны разные ее реконструкции, в зависимости от которых, например, наклон лобной кости может резко измениться. Кости руки из Бордер-Кейв столь же массивные, как у неандертальцев, в намного большей степени, чем у людей современного типа, а также имеют другие признаки, более архаичные, чем у кроманьонцев Европы. Останки из пещеры Клазиес-Ривер довольно многочисленны и разнообразны, хотя весьма фрагментарны. Часто постулируется их идентичность современному Homo sapiens: слабое надбровье, возможное наличие подбородочного выступа, небольшие размеры костей. Однако строение височной кости, недоказанность наличия подбородочного выступа на нижних челюстях, морфология первого шейного позвонка, массивность и детали строения локтевой и лучевой костей свидетельствуют о том же уровне “сапиентности”, как и у неандертальцев Европы, а крайне массивная и большая скуловая кость скорее похожа на Бодо и Брокен-Хилла. Сапиентность некоторыми авторами устанавливается скорее не на основе морфологических признаков, а по небольшим размерам некоторых костей, каковые, впрочем, могут быть интерпретированы и как адаптивная черта в тропических условиях. Фрагмент верхней челюсти и зубы из Танжера укладываются в вариации изменчивости классических неандертальцев Европы, специфическое сходство обнаруживается по таким чертам, как скошенность скуловой области, отсутствие клыковой ямки и крайне толстый небный отросток, размеры же моляра взрослого индивида превосходят даже размеры зубов синантропов. Нижняя челюсть из Дире-Дава крайне массивна, подбородочный выступ отсутствует, по ряду признаков она напоминает челюсти архантропов; таким образом, и этот гоминид не сапиентнее неандертальцев. Возможности сравнения для находок из Тарамсы, Бломбос-Кейв и Ди-Келдерс ограничены молодым возрастом индивидов, но, видимо, фрагменты черепа, челюстей, зубы и фаланги грацильнее синхронных им классических неандертальцев и не имеют специализированных признаков последних, однако все же массивнее, чем у современных людей. Как и в случае с гоминидами из Клазиес-Ривер, небольшие размеры могут быть следствием адаптационных приспособлений – в качестве нестрогой аналогии можно привести современных бушменов, населяющих ту же географическую область. Таким образом, исходя из имеющихся данных, невозможно составить четкое представление об антропологическом облике населения Африки в этот период; наиболее надежно датированные местонахождения содержат либо останки очень архаичных людей, либо останки невзрослых индивидов, в связи с чем возникают сложности при определении их таксономического статуса.Особый интерес представляет череп Дар-эс-Солтан II H5 – одна из немногих находок африканских людей с датировкой, максимально приближенной к моменту предполагаемого Великого Исхода сапиенсов из Африки (впрочем, как обычно, датировка косвенная и недостаточно определенная). Теоретически Дар-эс-Солтан должен быть максимально похож на предков всех людей планеты! Кажется, этот факт его биографии доныне недооценен. На нижней челюсти подростка H4 из того же местонахождения вертикально ориентированный симфиз вкупе с резким альвеолярным прогнатизмом можно расценить как подбородочный выступ, хотя на челюсти взрослого H5 симфиз просто вертикален и подбородок на нем можно увидеть только при некотором напряжении фантазии. Таким образом, тут мы имеем еще не до конца сформировавшегося сапиенса, ведь во всех современных группах подбородочный выступ имеется почти со стопроцентной частотой. Из других признаков ретромолярное пространство типично для неандертальцев, а симметричная форма и большая глубина нижнечелюстной вырезки – для сапиенсов.
Уголок занудства. Дар-эс-Солтан II H5 имеет архаику и в строении свода черепа: мозговая коробка расширена снизу, лобная кость покатая, очень широкая и длинная (крупнее индивидуального максимума неандертальцев), с огромным надбровьем; теменные кости уплощены в поперечном направлении. Впрочем, череп очень высок даже по современным масштабам и выше, чем это встречается у неандертальцев, лобная кость весьма выпуклая, а сосцевидный отросток очень крупный. Лицо, если игнорировать массивность, весьма сапиентно: относительно низкое и широкое, с низкими прямоугольными глазницами, широким межглазничным пространством, сравнительно невысокой верхней челюстью и (что особенно нехарактерно для древних людей!) низким альвеолярным отростком. Эти признаки можно даже расценивать как негроидные, особенно учитывая сильный альвеолярный прогнатизм и характерную расширенность скул. Нетипично для архаичных гоминид не слишком широкое носовое отверстие (хотя его абсолютная ширина по современному масштабу велика, она меньше индивидуального минимума неандертальцев, относительная же ширина крайне велика, поскольку высота носа Дар-эс-Солтан II H5 очень мала даже по современному масштабу). Таким образом, мы имеем почти сапиенса, но еще не совсем сапиенса. Замечательно, что лицо Дар-эс-Солтан II H5 удивительно похоже на лицо подростка из Пештера-ку-Оасе в Румынии (34–42 тыс. лет назад), тогда как их мозговые отделы заметно отличаются (у Пештера-ку-Оасе 2 вертикальные стенки черепа, более узкий и покатый лоб, но заметно менее развитое надбровье, что, впрочем, зависит от подросткового возраста и плохой сохранности этой части черепа). Высота лица совпадает идеально, размеры носа – почти идеально. Ширина лица, правда, у Пештера-ку-Оасе 2 на целый сантиметр меньше. Чрезвычайно сходны очертания верхней челюсти и скуловой области, носового отверстия, форма глазниц (кроме их латерального края, поскольку вершины лобных отростков скуловой кости у Дар-эс-Солтан II H5 расходятся снизу вверх, а у Пештера-ку-Оасе 2 – сходятся). Весьма похожи и нижние челюсти из этих двух пещер: они массивные, с вертикальным симфизом и огромными восходящими ветвями. В целом их можно бы отнести к одной расе, ареал которой соответствовал бы ареалу современной индосредиземноморской расы (при полном отсутствии морфологического сходства с последней), если бы не датировки. Дар-эс-Солтан II может быть вдвое или даже втрое древнее, чем Пештера-ку-Оасе, отчего отнесение их к одной расе практически нереально. Зато Дар-эс-Солтан II H5 мог быть предком расы, к которой принадлежал Пештера-ку-Оасе 2.Прогресс шел не только физический, но и технологический и культурный. В Африке от 130–300 тыс. лет назад до 40–50 тыс. лет назад процветали многочисленные и разнообразные культуры “среднего каменного века”.
Характернейшее отличие “среднего каменного века” от среднего палеолита Европы и Азии – разнообразные наконечники в инвентаре. Например, для атера типичны небольшие черешковые наконечники, очень красивые и аккуратные. По мнению некоторых археологов, это вообще наконечники стрел, и это удивительно, ведь их датировки – около 60–90 тыс. лет назад. В Катанде в Конго 75–174 тыс. лет назад изготовлялись костяные гарпуны с зазубринами сбоку и бороздками на черешке для закрепления веревкой к древку, аналоги которым в Европе появляются менее 40 тыс. лет назад. Костяные наконечники в Бломбос-Кейв в Южной Африке и других местонахождениях имеют возраст 75–78 тыс. лет назад, тогда как у европейских неандертальцев крайне немногочисленные костяные орудия появляются лишь спустя тысячи лет сосуществования с сапиенсами, только около 35 тыс. лет назад. В Африке со времени 65 тыс. лет назад известны древнейшие микролиты – очень маленькие каменные сегменты, использовавшиеся для изготовления вкладышевых орудий: в прорезь деревянной или каменной рукоятки вставлялся ряд мелких острых каменных лезвий, которые очень легко изготовить или починить. В Европе же микролитическая техника появляется гораздо позже и типична только для эпипалеолита и мезолита.
Эти и другие прогрессивные черты “среднего каменного века” позволяют говорить о возникновении культур верхнего палеолита на базе африканских, а не европейских или азиатских культур. Для “среднего каменного века” типично также расширение использования ресурсов, в том числе растительных и морских (особенно в Южной Африке), поскольку тропическая и субтропическая природа предоставляла для того много возможностей. Это тренировало в людях живость ума и позволяло избежать губительной специализации.
Немало на африканских стоянках и следов символической деятельности. Около 80 тыс. лет назад в Северной, Южной и Восточной Африке появляются бусы из раковин улиток: в Уед-Джеббана (Алжир), Грот-де-Пижон (Марокко, 82 тыс. лет назад) и Бломбос-Кейв (Южная Африка, 75–78 тыс. лет назад). Что характерно, технология с того времени и до наших дней не поменялась. Любой, кто летом был на южных курортах, видел там точно такие же бусы с той минимальной разницей, что ныне продающиеся туристам ракушки дырявят китайцы железными шильями. В другом варианте бусы делались из скорлупы страусовых яиц, древнейшие примеры чего известны с позднеашельской стоянки Эль-Грейф (Ливия) и из местонахождений Энкапуне-Я-Муто и Мумба (Кения, 46–52 тыс. лет назад).
В Бломбос-Кейв обнаружено множество кусков охры, причем некоторые были спрятаны в маленькой естественной нише в стене пещеры. Один из крупных комков изборожден продольными царапинами: видимо, он использовался как палитра, об него натирались палочки, которыми потом что-то раскрашивалось. Но самый выдающийся образец – прямоугольный брусок охры, на боку которого первобытный творец процарапал узор в виде чередующихся крестиков-ромбиков. В южноафриканской пещере Сибуду на одном каменном обломке обнаружены следы охры, смешанной с молоком, – замечательной краски, которой можно покрасить стену, кусок коры, шкуру или друг друга (Villa et al., 2015). Отдельный вопрос – где люди 49 тыс. лет назад взяли молоко? До скотоводства были еще десятки тысяч лет! Видимо, охотники не пощадили самку какой-то антилопы – искусство требовало жертв с самой своей колыбели…
На намибийской стоянке “среднего каменного века” Аполло 11 найдены две каменные плитки с изображениями неких странных зверей. Они залегали строго между слоями с датировками 59 и 26–28 тыс. лет назад. Если рисунки происходят из верхнего слоя, то они не так уж уникальны. Но вот если они из нижнего, то это – древнейшие в мире художества.
Уголок занудства. “Средний каменный век” в целом можно разделить на два главных этапа: пре-ховисонс-порт и пост-ховисонс-порт. Описано минимум 14 основных культур “среднего каменного века”: преориньяк, атер и нубийский комплекс в Северной Африке, эфиопский “средний каменный век”, “средний каменный век” Кенийского Рифта и индустрия мумба в Восточной Африке, люпембан и “средний каменный век” Катанды в Центральной Африке, бамбатская/питсбургская культура, “средний каменный век” I–IV, ховисонс-порт и стилбей в Южной Африке. Все они сильно отличаются по массе показателей. Некоторые исследователи предлагают список признаков, по которым можно отличить “поведенчески современного человека” от всех прочих (McBrearty et Brooks, 2000). В поведении это: абстрактное мышление вне времени и пространства; глубина планирования, формулирование стратегий на основе прошлого опыта и использование этого опыта в нужной ситуации; поведенческие, экономические и технологические инновации; символическое поведение, возможность представить объект, человека или абстрактную концепцию посредством символов, голоса и визуально, использование этих символов в культурной практике. В практической деятельности это проявляется в следующих феноменах: увеличение разнообразия артефактов; стандартизация типов артефактов; технология пластин; обработка кости и других органических материалов; украшения, искусство, изображения; структурирование жизненного пространства; ритуалы; экономическая интенсификация, использование водных и других ресурсов, специализированные технологии; увеличение географического размаха, перемещения, заселение новых территорий и экологических ниш; усиление обменов между группами. Сферы специфической деятельности современного человека весьма многообразны. Экологическая: проникновение в прежде не заселенные области – тропические равнинные леса, острова, север Европы и Азии, а также увеличение широты диеты. Технологическая: новые технологии обработки камня – пластины, микропластины, орудия со спинкой; стандартизация с формальными категориями орудий; орудия с древком, составные орудия; орудия из кости и рога; специальные орудия для поражения цели – метательные, с использованием геометрических микролитов; увеличение числа категорий орудий; географические вариации в формальных категориях орудий; временные вариации в формальных категориях орудий; усиление контроля за огнем. Экономика и социальная организация: перемещение сырья на длинные дистанции, обмен сырьем; хранение экзотического сырья; специализированная охота на больших опасных животных; режимность и сезонность в использовании ресурсов; вторичное заселение стоянок; интенсификация добывания ресурсов, особенно водных и растительных; обмен на дальние расстояния; групповая и индивидуальная самоидентификация по стилю артефактов; структуризация использования домашнего пространства. Символическое поведение: региональные стили артефактов; самоукрашение – бусы, раскрашивание; использование пигмента; резание и гравирование объектов – костей, скорлупы яиц, охры, камней; изображения и воспроизведение; захоронения с могильным инвентарем, охрой, ритуальными объектами. Часть археологов склонны считать, что по всем этим показателям африканские создатели культур “среднего каменного века” превосходили синхронных неандертальцев и прочих палеоантропов (McBrearty et Brooks, 2000). Другие исследователи резонно замечают, что, во-первых, превосходство африканцев не так уж очевидно – при желании несложно найти информацию о все тех же достижениях на европейских и азиатских стоянках не меньшей, а то и большей древности (Дробышевский, 2002); во-вторых, для более поздних сапиенсов Сунды и Сахула набор специфических признаков деятельности современного человека не работает (Habgood et Franklin, 2008). Возможно, багаж технологических и поведенческих достижений и знаний, вынесенный из Африки, был растерян в ходе быстрого расселения на восток, а может быть, не такой уж он был и грандиозный, этот багаж.Как бы то ни было, ко времени примерно 80 тыс. лет назад африканские люди достигли немалого. И вот тут есть интрига: в более поздних слоях большая часть их достижений вроде бы отсутствует. Что случилось? Некоторые археологи считают, что изменения климата привели к катастрофическому сокращению численности людей. Генетики подсчитали, что примерно 70 тыс. лет назад человечество пережило так называемое “бутылочное горлышко”, в самом узком месте которого могло оставаться всего около двух тысяч человек (например: Behar et al., 2008). Это привело к утрате многих развившихся было новаций; в последующем многие из них пришлось изобретать заново.
Минутка фантазии. Генетико-автоматический “эффект бутылочного горлышка” мог не раз влиять на эволюцию человека. По оценкам генетиков, до 1,2 млн лет назад эффективная численность популяции людей могла быть всего 18,5–26 тысяч человек (Huff et al., 2010). Это сопоставимо со значениями современных шимпанзе – 21 тысяча – и горилл – 25 тысяч, то есть крайне мало для крупных и медленно размножающихся приматов. Некоторые антропологи считают, что человечество пережило катастрофическое сокращение численности около 2 млн лет назад (Hawks et al., 2000). Но именно “эффект бутылочного горлышка” мог быть причиной появления рода Homo – более крупного, мозговитого и умелого. Человечеству могло в очередной раз повезти: в тяжелую годину выжили только самые одаренные, именно они стали прародителями новых поколений. Посредственные гены бездарного серого большинства больше не растворяли в себе выдающихся талантов, отчего весь вид устремился к прогрессу и невиданным успехам. Так ли оно было? Надо еще немало поработать, чтобы ответить на этот вопрос…Впрочем, некоторые группы могли пронести тайное знание древних – секреты выделки каменных и костяных наконечников, технологию изготовления пластин, украшения охрой и бусами из ракушек – через трудные годы. Об этом свидетельствуют находки в южноафриканской Бордер-Кейв. Тут старые достижения не только не были утеряны, но даже обогащены. Порядка 56 тыс. лет назад свершился плавный переход от “среднего” к “позднему каменному веку”. Он ознаменовался упрощением способа обработки камня, но усложнением в других областях. Появились новации, которые уже преемственны с современными бушменскими технологиями. В слоях Бордер-Кейв с датировками от 45 тыс. лет назад и меньше имеется уже полный современный набор: костяные наконечники, в том числе один с насечками и окрашенный охрой – так нынешние бушмены метят свои стрелы; деревянная палочка-аппликатор со следами яда рицина для нанесения его на наконечник стрелы; комок воска, смешанного с ядом молочая и обмотанного веревкой; приклеивание микролитов к рукоятке смолой хвойного дерева; кости с насечками, в том числе одна с 29 метками, сделанными в разное время, – подобные используются бушменами для счета; каменные утяжелители для палки-копалки со сверлеными отверстиями и сами палки-копалки; орудия из клыков бородавочника, бусы из раковин и скорлупы (d'Errico et al., 2012; Villa et al., 2012).
Все же в большинстве южноафриканских пещер имеется стерильная прослойка между “средним каменным веком” и более поздними отложениями. Что случилось?
Эффектное объяснение предлагает “гипотеза вулканической зимы” (Ambrose, 1998, 2003). 71 или 73,5 тыс. лет назад на острове Суматра произошло грандиозное извержение вулкана Тоба – одно из сильнейших за всю историю планеты, второе по мощности за весь фанерозой и в 40 раз превышающее самое крупное извержение за последние двести лет – вулкана Тамбора. Излилось беспримерное количество – примерно 2000 км³ – магмы, а в воздух взметнулись настолько несметные тучи пепла – 800 км³, что в некоторых частях Индии, на расстоянии даже 2500 км, его отложения и сейчас достигают толщины шести метров, так что с начала неолита крестьяне используют их как удобрения и все никак не изведут. В рядом же расположенной Малакке слои туфа и вовсе девятиметровые. В целом же по Азии средняя толщина пепла 15 см – и это по всему материку! Зона поражения Тобы охватила все побережья Индийского океана, немалые следы есть даже в Восточной Африке. Мало того что выпавший пепел напрямую уничтожал все живое, заваливал растения и удушал животных. Беспросветные клубы затмили небо над всей планетой примерно на шесть лет, а остатки висели в атмосфере даже спустя двести лет. Солнечные лучи не могли пробиться сквозь тучи – шесть лет потемашек! – и температура Земли упала – по разным оценкам, на 3–5, а то и 15° C. Как итог, на следующую тысячу лет пришелся один из самых сильных пиков оледенения. Вероятно, практически все население Южной и Юго-Восточной Азии вымерло в результате этого катаклизма. Человеческие популяции сохранились лишь в нескольких областях, в том числе на восточных островах Индонезии, в Южной Сибири, Европе и Центральной Африке. Европа очень далека от Суматры, но расположена на севере, так что оледенение сурово проутюжило неандертальцев, которые именно тогда приобрели свой “классический ледниковый” облик и в изнуряющей борьбе с тяжелейшими условиями жизни отстали в своем развитии. Преимущественные ветра не пустили пепел в Восточную Индонезию, а Гималаи и Тибет – в Центральную Азию. Благодаря этому удалось выжить “хоббитам” и денисовцам. Отдельные убежища с рефугиями тропического леса во время вулканической зимы могли сохраняться на Яве, северо-востоке Индокитая (включая Южный Китай) и Западных Гатах в Индии (притом что Южная Индия была завалена пеплом в среднем на три метра).
Все эти ужасы привели к тому самому “бутылочному горлышку” около 70 тыс. лет назад. Даже в южных и северных областях Африки на стоянках в указанный период обнаруживается перерыв в культурных отложениях, а число самих стоянок резко сокращается. Только в некоторых центральноафриканских местонахождениях прослеживается непрерывное накопление осадков, свидетельствующее о том, что люди продолжали жить здесь постоянно. Вероятно, небольшие группы людей сохранялись и в некоторых других областях Африки, но это труднодоказуемо. К сожалению, именно в тропических областях Центральной Африки, менее прочих задетых катастрофой, из-за жаркого и влажного климата останки людей не сохранились. Все же мы знаем о них благодаря их орудиям. По-видимому, именно эти популяции являлись предковыми для человека современного типа.
Важно оговориться, что не все ученые признают решающую роль сего катаклизма в эволюции человека (Gathorne-Hardy et Harcourt-Smith, 2003). Например, в озере Малави есть пепел Тобы, но температура тут упала всего на 1,5 °С, так что даже водорослевая флора это никак не ощутила. Однако аргументы в пользу вулканической гипотезы весьма сильны, ведь по времени извержение действительно совпадает с пиком оледенения, приобретением неандертальцами классического облика и “бутылочным горлышком” предков сапиенсов.
Кое-где люди могли пережить катаклизм и в непосредственной зоне поражения. На местонахождении Явалапурам в Южной Индии орудия обнаружены как под, так и над слоем вулканического пепла, достигающего тут 2,55 м, причем сверху орудий даже больше. Замечательно, что некоторые изделия больше похожи на таковые “среднего каменного века” Африки, а не на среднепалеолитические европейские или азиатские. Это может значить, что миграции сапиенсов из Африки происходили еще до извержения Тобы (Petraglia et al., 2007).
Тут мы подходим к последнему великому событию перед современностью – исходом сапиенсов из Африки. Вряд ли оно сопровождалось бравурными маршами духового оркестра, но было вполне достойно такого сопровождения. Увы, скорее всего великие путешественники так и не узнали, что они были великими. Люди и до этого не раз переправлялись из Африки в Аравию. Но раньше переселенцы сталкивались с аборигенами Евразии – неандертальцами и денисовцами. Территория была занята, а уровень развития у всех был примерно одной степени дикости, так что сапиенсы или их предки не имели особых шансов на конкисту. Другое дело – после извержения Тобы. Просторы опустели, особенно вдоль побережья Индийского океана. Численность неандертальцев и денисовцев в любом случае упала, так что они уже не составляли былой непреодолимой преграды для тропических орд.
Посему, как только сапиенсы оклемались в Африке от последствий катастрофы – а они сделали это быстрее северных человечеств, так как климат благоприятствовал им, а не заиндевевшим жителям Европы и Сибири, – они с радостью и большим успехом воспользовались подвернувшейся возможностью.
Не очень понятно, каким конкретным путем и когда именно сапиенсы совершили свой прорыв. Как и в случае с миграциями первых Homo, наиболее вероятен южный путь через Баб-эль-Мандебский пролив, тогда как северный – по пустыням через Синай – осилить было гораздо труднее. Кстати, как обычно бывает, люди не были великим исключением: судя по мтДНК, павианы мигрировали из Африки в Аравию между 130 и 12 тыс. лет назад, очевидно без человеческой помощи (Kopp et al., 2014). Коли уж Баб-эль-Мандебский пролив был проходим для обезьян, стало быть, люди и подавно могли его преодолеть. Это подтверждают и находки орудий в Аравии.
Уголок занудства. Например, на берегу Ормузского пролива в Объединенных Арабских Эмиратах раскопана стоянка Джебель-Файя. Датировки слоев тут не очень надежные – 95–127 тыс. лет назад, да еще с погрешностью в 13–16 тыс. лет (Armitage et al., 2011). Зато листовидные бифасы похожи на встречающиеся в культурах “среднего каменного века” Северо-Восточной Африки, притом что таковых нет на стоянках Ближнего Востока и Загроса. То же можно сказать о листовидных бифасах местонахождения Бир-Хасфа из Омана. На стоянках Дхофар и Айбут-аль-Ауваль в Омане с датировкой около 106 тыс. лет назад обнаружены орудия позднего нубийского комплекса, опять же как в “среднем каменном веке” Африки (Rose et al., 2011). Четыре местонахождения в местности Вади-Сурдуд на западе Йемена имеют возраст 42–84 тыс. лет назад (Delagnes et al., 2012). Местные изделия похожи на южноаравийские, левантские, северо– и восточноафриканские, но имеют некоторую специфику. Атерские черешковые наконечники найдены в аравийских местонахождениях Руб-аль-Хали и Аль-Габр I, что указывает на миграцию из Северо-Западной Африки.Судя по археологическим и антропологическим находкам, миграция должна была свершиться в интервале от 130 до 50 тыс. лет. Многие генетики склоняются к бóльшим датам, антропологи – к меньшим. Пока этот вопрос открыт – тут нас гарантированно ждут открытия и неожиданности (что может быть приятнее, чем гарантированная неожиданность?! – ведь именно за это любят цирк, юмор и страшилки).
Сколько раз люди нашего вида выходили из Африки? Сравнение мировых распределений гаплогрупп Y-хромосомы и мтДНК показало, что предки австралоидов с большой вероятностью осуществили независимую – древнейшую – миграцию из Восточной Африки, а предки европеоидов и монголоидов возникли из тех же исходных восточноафриканских популяций и вышли в Евразию оттуда же, но несколько позже (Спенсер, 2013; Rasmussen et al., 2011; Underhill et al., 2000, 2001; Wells et al., 2001). За время между двумя миграциями появились новые мутации, встречающиеся в Восточной Африке и Евразии с Америками, но отсутствующие в остальных частях Африки и Австралии.
Но по большому счету это все мелочи. Генетические различия современных рас мизерны по сравнению, например, с ланцетниками одной популяции, которые вообще могут отличаться друг от друга больше, чем человек от шимпанзе. Полсотни тысяч лет – не такой срок, чтобы возникли видовые отличия, особенно учитывая постоянные генные потоки между бродячими популяциями. Так что видовое единство человечества в настоящее время не подвергается сомнению ни одним ученым.
Кстати, о Колумбе… Дотошные генетики обнаружили то самое шило, которое не дает некоторым индивидам сидеть на месте и толкает их на дальние странствия (например: Ding et al., 2002). Есть у человека такой ген – DRD4. Оказалось, что если в геноме присутствуют семь его копий (7R), то рецепторы к дофамину – нейромедиатору, вызывающему в числе прочего удовлетворение, – реагируют вдвое хуже, чем когда имеются четыре копии гена (4R). У охотников-собирателей частота варианта 7R существенно выше, чем у земледельцев. Обладателям семи копий тоскливо сидеть на месте, жизнь становится тусклой и унылой. Другое дело, когда горизонт зовет, а реки манят дойти до истока или устья. А ведь бывает и по 11 копий этого чудесного гена! Напротив, земледельцам полезнее радоваться на свои поля, не меняющиеся годами, и нежиться в стабильности. Посему из исходного варианта 4R возник даже 2R. По некоторым расчетам и предположениям, “бродяжнический” вариант 7R возник как раз порядка 50 тыс. лет назад. Именно он дал африканским сапиенсам установку “поди туда, не знаю куда…”. Впрочем, и до этого в Африке они точно не были домоседами-земледельцами. Вот бы проверить, каким вариантом DRD4 владели Марко Поло, Христофор Колумб и Фернандо Магеллан!Что толкало людей на дальние переселения? Побудительными причинами миграций были, видимо, передвижение вслед за кочующими стадами животных, истощение природных ресурсов, возрастание численности населения. Попадая в новые экологические условия, люди учились справляться с разными природными трудностями. Впрочем, большинство не желало менять привычек, приобретенных на родных африканских берегах: они по-прежнему занимались прибрежным собирательством.
Главный путь миграции лежал по берегу Индийского океана на восток. Отважные пожиратели улиток шли на восход. Слева от них лежала негостеприимная гористая пустыня, справа плескались лазурные волны Индийского океана. Впереди их ждало много всего вкусного, море манило вперед, щедро усеивая берег изобилием моллюсков, крабов, водорослей и рыбы. Позади громоздились груды смердящих отбросов и сердито покрикивали голодные родственники.
Такая одномерность процесса способствовала великой скорости расселения, а потому до Индонезии и даже Австралии сапиенсы добежали едва ли не быстрее, чем до Европы. Впрочем, может, передвижение по Земле было весьма и весьма медленным и только в дальней временной перспективе оно выглядит таким стремительным? Простейшие расчеты показывают, что даже при скорости около 30 км за поколение людям понадобилось бы примерно десять тысяч лет или чуть больше, чтобы добраться до Сахула. В реальности скорость наверняка была больше, ведь 30 километров можно пройти и за один день. При скорости 30 км в год путники доскакали бы до Сахула вообще лет за 500. Это меньше обычной погрешности определения возраста большинством радиометрических методов, поэтому не странно, что с точки зрения археологии сапиенсы появляются по всей планете мгновенно. К великому сожалению, берега тогдашнего Индийского океана ныне стали морским дном, и археологи пока не знают, как найти и раскопать стоянки, скрытые кораллами и наносами. Нам достаются орудия и останки лишь тех несчастных невезунчиков, которые жили не на солнечных пляжах, а где-то подальше вглубь, на взгорьях, и могли лишь, грустно вздыхая, посматривать на блестевшее на горизонте море.
Отдельные группы, распрощавшиеся с привычным укладом, уходили в стороны от генерального маршрута, но им приходилось труднее всего. На севере жизнь была совсем иной, тут надо было учиться согреваться, охотиться на новых животных, узнавать свойства новых растений, да и сами люди менялись физически. Так возникали новые культуры и новые расы нашего вида – Homo sapiens.
Глава 9. Homo sapiens: мы.
Когда цивилизация еще не втоптала зелень в бетон и не застеклила пальмы под колпаки оранжерей, люди кочевали по необъятным просторам планеты. Они делали бусы из бивней мамонтов и рассказывали мифы о гусях, создавших сушу. Они играли на флейтах из птичьих костей и охотились на пещерных медведей. Они загоняли табуны диких лошадей в пропасти и, не сомневаясь, метали дротики в своих врагов. Для них не существовало границ. Они переплывали моря, продирались сквозь душные джунгли Явы и пересекали ослепляющие пустыни Австралии. В их душах жила свобода. Они не умели читать и все помнили наизусть. Они строили дома из мамонтовых челюстей и следовали за северными оленями. Они били роговыми гарпунами лососей в прозрачных ручьях и гордились хрустальными кинжалами. Они украшали свои лица шрамами и дарили девушкам ожерелья из оленьих клыков. Их жизнь была сурова и прекрасна. Мы знаем о них благодаря науке и в нашем золотом веке тоскуем об утраченном прошлом…
По мере приближения к современности время стремительно сжимается. Помните, как лихо мы перепрыгнули через первый миллиард лет? Всего несколько страниц занял мезозой. Уже больше было сказано про эоцен. Австралопитеки и хабилисы потребовали несравненно больше внимания. Архантропы и палеоантропы вольготно развернулись в собственных главах, а дай им волю – заняли бы и целые книги. И вот остались каких-то полсотни тысяч лет – погрешность датировки для более ранних времен, – а я теряюсь в мыслях: о чем не рассказывать, чтобы хоть когда-нибудь остановиться? Умолчишь о чем-нибудь – услышишь упрек, расскажешь обо всем – выйдет безгранично и неизбежно поверхностно. Сотни специалистов в тоннах книг пишут, пишут – и все никак не расскажут всего о современном человеке. Какова же мера?
Для начала полезно определиться, какие особенности, собственно, отличают именно Homo sapiens от других видов людей. Разные исследователи по-своему подходят к этому вопросу. Одни ставят во главу угла поведенческие особенности, другие – филогенетические построения, антропологам же близки и понятны морфологические признаки. Так возникли понятия “поведенчески современный человек”, Homo sapiens soloensis, Homo sapiens heidelbergensis, Homo sapiens neanderthalensis, “архаический Homo sapiens”, “анатомически современный Homo sapiens”. Нам сейчас интересен последний вариант.
На поверку выясняется, что видоспецифических признаков сапиенса на удивление немного. Бóльшая их часть сконцентрирована на височной кости, к другим относятся подбородочный выступ специфического строения, а также надглазничный треугольник – несколько уплощенный участок на передней стороне скулового отростка лобной кости, который Читатель может прощупать у себя повыше наружного уголка глаза (…еще чуть выше, но совсем уж на лоб забираться не надо).
Голова у сапиенсов большая, а шея тонкая и подвижная, что вызывает целый ряд черт: остистые отростки шейных позвонков маленькие и раздвоенные, а сосцевидный отросток височной кости, напротив, большой и мощный (его можно без проблем найти у себя сразу за ухом – чувствуете выступающий бугорок?). К этому отростку крепится грудино-ключично-сосцевидная мышца, идущая наискось вниз по шее и поворачивающая голову (ее тоже несложно прощупать, а если чуть повернуть голову – то и увидеть, особенно спереди внизу на шее, над грудиной, где между ее головками получается ямка). Поэтому у горилл и неандертальцев отросток мал – у них голова тяжелее нашей, шея очень толстая и малоподвижная, так что вертеть головой, как мы, они неспособны. Кстати, размер сосцевидного отростка – лучший определитель пола на черепе, у женщин он заметно меньше, так как голова у них легче – кости тоньше, челюсти слабее. Мужские же половые гормоны вызывают рост мышц, челюстей и прочих костей, усиливая рельеф, в том числе и сосцевидного отростка.
Еще один признак современного человека – седловидный сустав первой пястной кости и кости-трапеции запястья. Он позволяет противопоставлять большой палец, экономить силы при удержании тяжелых предметов и увеличивает точность движений.
Впрочем, отдельные признаки из перечисленных могут встретиться и у древних видов людей, а у отдельных современных – не проявиться. Как всегда в биологии, абсолютных законов нет, и невозможно провести четкую границу между сапиенсом и несапиенсом. Из-за этой неопределенности существует несколько мнений о том, кого же стоит считать современным человеком. От дефиниции зависит следующий вопрос: в каком историческом периоде надо искать прародину? Для авторов XIX и даже начала XX века проблема возникновения человека была проблемой возникновения рас. Затем, с новыми находками и датировками, хронологический момент возникновения “первого современного человека” постоянно отодвигался, тогда как момент разделения рас оставался на прежнем месте. В настоящее время возникновение современного вида и появление современных рас превратились в две самостоятельные темы и обычно рассматриваются отдельно.
С момента около 40–45 тыс. лет назад люди совершенно современного облика, только несколько более массивные, чем мы, – неоантропы – заселили уже всю планету, добравшись до самых отдаленных ее уголков. Эта эпоха, закончившаяся с последним ледниковым периодом примерно 10 тыс. лет назад, называется верхним палеолитом. Люди верхнего палеолита известны практически со всей территории Ойкумены – из Африки, Европы, Азии и Австралии. К концу этой эпохи люди освоили обе Америки. Только Полинезия с Микронезией были заселены заметно позже.
Все старше, и старше, и старше!.. Человек из Манот наш разум манит. Гонка за звание наидревнейшего сапиенса продолжается! Давно ли были открыты люди из Там-Па-Линг, Кентской пещеры, Кавалло, Кзар-Акила, Усть-Ишима… Древность их была одна другой краше, седые бороды так и трепетали на ветру на этом грандиозном конкурсе патриархов. Но был во всех этих мафусаилах один существенный изъян, и ученых точил червь сомнения: все они жили слишком уж далеко от великой прародины – Африки. А ведь логично, что древнейший внеафриканский сапиенс должен быть непосредственно у выхода с Черного континента. А выход, как ни крути, расположен на Ближнем Востоке (теоретически люди могли форсировать и Гибралтар, но доказательств этому пока никаких нет). Глядя издали, Ближний Восток – узенький перешеек между двумя материками, но, взяв лупу, мы можем углядеть на карте два возможных пути: один ведет с раскаленного Сомалийского полуострова на юг благословенной Аравии, а второй – вдоль долины великого Нила на ветхозаветный Синай и дальше в обетованный Левант. Оба пути имеют плюсы и минусы. Южный хорош краткостью и тем, что позволяет путешествовать в Азию, не меняя экологических адаптаций, но требует переправы через Баб-эль-Мандебский пролив, хотя и неширокий и неглубокий, но таки морской и упорно не пересыхавший даже в самые лютые регрессии Мирового океана. Северный путь замечателен возможностью путешествовать все время посуху, но на нем необходимо преодолеть не одну пустыню, а неизвестно, что было хуже для охотников-собирателей – пустыня водная или каменная. С юга Аравии пока известны только каменные орудия, хотя и вселяющие большие надежды, поскольку они очень уж похожи на восточноафриканские. А вот Земля обетованная удивительно богата и на палеоантропологию. На территории нынешнего Израиля еще в 1930-х годах были найдены десятки скелетов в пещерах Схул и Кафзех. Сейчас их датируют временем около 100 тыс. лет. Но уже при открытии было ясно, что схульцы и кафзехцы, несмотря на синхронность неандертальцам, сильно отличаются от них, причем отличаются именно в сапиентную сторону. Этот факт интерпретировался по-разному. Одни считали, что схульце-кафзехцы являются переходной стадией от палеоантропов к неоантропам, другие расценивали их как неандертальско-сапиентных метисов. В последние пару десятков лет многие западные антропологи вообще не стеснялись и прямо называли их “анатомически современными сапиенсами”. Вообще-то такое определение весьма спорно, ибо трудно при объективном рассмотрении игнорировать архаичные черты людей из Схула и Кафзеха. Зато на некотором этапе такой их статус хорошо вписывался в картину, рисуемую генетиками, которые датировали выход из Африки как раз примерно этим временем. Правда, молекулярные датировки, мягко говоря, не очень точны, и трудно сказать, кто больше подгонял под кого: генетики под антропологов, или же антропологи порой преувеличивали сапиентность схульце-кафзехцев, чтобы они соответствовали цифрам, выводимым генетиками. Но на то и наука, чтобы все уточнять и перепроверять. Математически по ряду параметров схульце-кафзехцы все же вылетают за пределы изменчивости сапиенсов, причем не только современных, но и верхнепалеолитических. Так что всегда антропологам хотелось найти более сапиентных сапиенсов. И вот он – древнейший и сапиентнейший! С 2010 по 2014 годы археологи старательно раскапывали карстовую пещеру Манот, расположенную всего в 40 км северо-восточнее горы Кармель, в которой зияет пещера Схул (Hershkovitz et al., 2015). Как обычно бывает в пещерах, отложения оказались насыщены орудиями, причем как средне-, так и верхнепалеолитическими, а также промежуточных форм. Есть и роговые наконечники.
Рис. 36. Черепа Манот (а), Там-Па-Линг (б), Ниа (в), Кзар-Акил (г), Пештера-ку-Оасе (д).
Показательно, что вход пещеры обвалился еще 15–30 тыс. лет назад, так что древность всего внутри заведомо бóльшая. Самой же главной находкой-сенсацией стала черепная крышка человека, имеющая наименьшую древность 51,8±4,5 или 54,7±5,5 тыс. лет назад в зависимости от способа расчета. А это, товарищи, на 7–10 тыс. лет больше, чем в Усть-Ишиме, и даже несколько древнее, чем в Там-Па-Линг! Конечно, максимальную дату для Там-Па-Линг определили в 63 тыс. лет, но тут речь о минимальной, максимальная же для Манот вообще 68,4±6,8 тыс. лет назад! Так что Манот с огромным отрывом обходит всех соперников в гонке первых сапиенсов. А самое главное – череп из Манот действительно сапиентен. Настолько, что, если бы его нашли в отложениях голоцена (последних 10 тыс. лет назад), никто особо и не стал заморачиваться поиском какой-либо архаики. Жаль, конечно, совершенно не сохранились передняя часть лобной кости и височные кости, ведь они несут самые ценные морфологические признаки. Но точно можно сказать, что человек из Манот не был неандертальцем: размеры черепа маленькие даже по современным меркам, наибольшая ширина черепа расположена высоко на своде, а теменные бугры хорошо выражены. Затылок выступает слабо; хотя в статье его форма описана как “шиньонообразная” (то есть типичная для неандертальцев), все же она не выделяется из спектра характерных для современных людей вариантов. Как бы неандертальским признаком является ямка над наружным затылочным бугром (надинионная ямка), но опять же, во-первых, у неандертальцев она заметно расширена под стать их широкому черепу, а не округлая, как у Манот; а во-вторых, у современных людей тоже периодически встречается, и причем именно в варианте, имеющемся у Манот. Специфически сапиентной чертой является частичный заход борозды поперечного синуса (на внутренней стороне свода) на теменную кость, тогда как у неандертальцев она полностью укладывается в пределы затылочной; впрочем, я бы поостерегся слишком уверенно пользоваться этой чертой, поскольку ее изученность явно недостаточна. За примитивную особенность может сойти сильная уплощенность свода сверху, причем как продольная, так и поперечная, но и эти параметры у Манот не запредельны. Жаль, мы не можем взглянуть в лицо человеку из Манот, ведь известно, что эволюция разных частей тела может идти с очень разными скоростями. Вдруг он имел огромные челюсти и зубы, как у гигантопитека?! Но это вряд ли, ведь височные линии весьма умеренные, чтобы не сказать слабые. Правда, затылочный рельеф весьма основательный: с шейными и спинными мышцами у этого гражданина было все в порядке. Но! Остается вопрос: имеет ли человек из Манот прямое отношение к более поздним внеафриканским сапиенсам. Проблема в том, что мы не знаем, с какой скоростью люди расселялись по Евразии. Догадки могут быть очень разными. С одной стороны, подозрительно, что почти все древнейшие сапиенсы от Англии до Калимантана укладываются в интервал 45–40 тыс. лет назад. Это может свидетельствовать об огромной скорости миграций. Оно и логично: на незанятых (или почти незанятых, учитывая последних неандертальцев и денисовцев) территориях с нетронутыми ресурсами плодиться и размножаться никто не мешал, визовый режим они еще не изобрели, а дух первооткрывательства бурлил в жилах и толкал на новые открытия. С другой стороны, новые земли ставили порой неожиданные новые задачи. Наверняка тропическим собирателям нелегко было освоиться даже в Северном Леванте, не говоря уж о ледниковой Европе и, хуже того, Сибири. С третьей стороны, самых первых-препервых сапиенсов наверняка было исчезающе мало, и вероятность найти их останки катастрофически стремится к нулю. Возможно, на всей планете просто не сохранилось ни одного экземпляра. Так что первые тысячелетия внеафриканского бытия могут быть скрыты от нас пресловутой неполнотой палеонтологической летописи. В свете всего сказанного: был ли Манот действительно предком – вопрос. Он мог быть представителем одной из первых миграций за пределы Африки, не получивших развития. Такие миграции наверняка совершались; с большой вероятностью именно к ним относятся люди из Схула и Кафзеха. Но уж больно он сапиентен, этот Манот. Так что прочь ядовитый скепсис: да здравствует Первый Сапиенс! Первый сапиенс? Последний денисовец? В последнее время стало модно открывать древнейших сапиенсов. Однако частенько эти открытия хочется ехидно критиковать. Австралийские находки сапиентны, но имеют сомнительные датировки, челюсть из Жижендуна имеет впечатляющую древность, но сомнительную морфологию, целый ряд новейших европейских “древнейших сапиенсов” удревнили нашу родословную всего на пару тысяч лет, да и с морфологией у них не все гладко. Хочется, наконец, нормальной сенсации! И вот она! В 2009 г. на севере Лаоса, в пещере Там-Па-Линг, были найдены обломки человеческого черепа (Demeter et al., 2012). Находка сама по себе замечательная, но еще лучше она стала, когда были сделаны многочисленные датировки как окружающих отложений, так и самих костей. Совокупность радиоуглеродного, люминесцентного и уранового методов позволила международной группе исследователей утверждать, что человек в Там-Па-Линг жил как минимум 46–51, а максимум – 63 тыс. лет назад. Факт сам по себе замечательный, ибо в Восточной Азии почти нет палеоантропологических находок с достоверными датировками в интервале от 100 до 40 тыс. лет назад. Согласно широко распространенной версии, сей феномен объясняется вымиранием населения из-за катастрофического извержения вулкана Тоба на Суматре. Однако ж несколько раньше 40 тыс. лет назад в Азии все же появились люди – уже современного вида. Доселе древнейшими достоверными находками являлись Тяньянь-Кейв, Чилиншан и Ниа – все они имеют датировки как раз около 40 тыс. лет. Однако оставалась “австралийская проблема”: более-менее достоверный срок появления людей в Австралии равняется 43–45 тыс. лет, а может, дотягивает и до 48 тыс. лет. Аборигены не могли десантироваться в обход Юго-Восточной Азии. Отсутствие находок на материке объяснялось, во-первых, жарким и влажным климатом, во-вторых же, тем, что люди двигались вдоль береговой линии, которая впоследствии оказалась дном морским и поросла кораллами. Конечно, в глубине души не верилось, что ни один человек не забрел вглубь Азии и ни в одной пещере не сохранилось его останков. Таки забрел! Таки сохранились! Самое радостное в находке в Там-Па-Линг то, что надежная датировка сочетается тут с удовлетворительной сохранностью. Конечно, хотелось бы полный скелет… Но не будем брюзжать. Череп из Там-Па-Линг, что говорить, фрагментарен. Но сохранились все важнейшие его части: лобная, теменная, затылочная и часть височной кости; от лица остались верхние челюсти с зубами. Что еще нужно палеоантропологу для полного счастья? Замечательно, что Там-Па-Линг обладает всеми ключевыми чертами современного человека. Его надбровные дуги довольно невзрачны и не сливаются в валики. Заглазничное сужение весьма слабо, не в пример архаичным гоминидам. На теменной кости развит теменной бугор. Затылочная кость равномерно округлая, без особого рельефа. На височной кости рельеф тоже слабый, а овальная форма и наклонная ориентация наружного слухового отверстия аналогичны современным. Верхняя челюсть не отличается запредельными размерами; форма альвеолярной дуги вполне современна. Зубы крупноваты, но для человека с древностью в 46–63 тыс. лет вполне подходящи. Все эти черты торжественно вводят человека из Там-Па-Линг в наш родной вид и воздвигают его на почетное место Великого Предка. Но я был бы не я, если бы не сказал но… Во-первых, невыраженность заглазничного сужения в немалой степени объясняется крайне своеобразными пропорциями лобной кости. Наименьшая – заглазничная – ширина лба вполне средняя, а вот наибольшая – измеряемая по венечному шву – очень мала. Правда, кость сохранилась не целиком, но пропорции все равно странны. Характерно, что древнейшие сапиенсы и предшествовавшие им палеоантропы отличаются как раз очень широкими лбами. Во-вторых, хотя надбровные дуги и слабы, но имеют весьма характерную форму – дуги увеличены во внутренней части и резко сужаются к краям. Такая конфигурация напоминает, с одной стороны, Дали, Цзиньнюшаня, Мапу и Салхита, а с другой – современных малайцев, меланезийцев и австралийских аборигенов. Не происки ли это денисовцев? В-третьих, как отмечают сами авторы открытия, форма слухового отверстия хотя и отличает Там-Па-Линга от архантропов и неандертальцев, но сближает его с Суйцзияо 15. А ведь последний жил 104–125 тыс. лет назад. Правда, затылочные кости из Суйцзияо гораздо архаичнее, чем Там-Па-Линг, но какой-то прогресс за 40–80 тыс. лет вполне мог совершиться без всякой помощи африканских мигрантов. Таким образом, Там-Па-Линг может быть проинтерпретирован разными способами. Конечно, вариант, озвученный авторами статьи, наиболее вероятен и правдоподобен: Там-Па-Линг представляет древнейшего достоверного сапиенса Азии. Его существование, кроме прочего, доказывает, что люди в Азии заселялись далеко не только на пляжи, как стало модно утверждать в последнее время. Глубинка тоже влекла своих колумбов туманной дымкой лаосских гор. Джунгли и горы не могли отпугнуть бесстрашных первооткрывателей, иначе они не были бы сапиенсами. Другим вариантом, который должен очень понравиться китайским антропологам, является сценарий, согласно которому Там-Па-Линг свидетельствует о независимом возникновении сапиенса в Азии. Ведь Там-Па-Линг – не только древнейший сапиенс Азии, но на момент открытия оказался даже древнейшим сапиенсом вообще. Конечно, любители Африки могут поднять на щит Омо и Херто, но у первого сомнительна морфология, а у второго – датировка. Наконец, и сибирским археологам есть радость от новейшего открытия. Ведь в чертах Там-Па-Линга, как уже было сказано, при желании можно углядеть черты неведомых денисовцев – в чистом ли виде или уже в метисном состоянии, не так важно. Как бы то ни было, еще один важный кусочек великой мозаики происхождения человека найден и настойчиво требует своего места в общей картине. И всем от этого хорошо! Как Кзар-Акил всех победил: в гонке “первый сапиенс” старый лидер возвращает свой статус. Людей всегда волнуют начало и конец любого процесса. Это самые необычные моменты, нестандартные, переломные. Кому интересны серые будни, скучная обыденность, тягомотина повседневности? Так и в антропогенезе: всем хочется знать, когда возник человек как род и как вид, когда произнес первое слово, когда зажег первый костер, нарисовал первую в мире картину? Или же напротив: когда сделал последний вздох последний неандерталец, когда был убит остатний мамонт, когда закончился позднейший ледниковый период? Чаще всего звучит вопрос про Первого Человека. И чаще всего под таковым понимают “уже совсем-совсем современного человека, но самого древнего”. На антропологический язык это можно перевести так: “Когда появился вид Homo sapiens или даже подвид Homo sapiens sapiens”? Конечно, любому человеку, хотя бы поверхностно знакомому с принципами хода эволюции, очевидно, что никогда не было “самого первого сапиенса”, но стремление мыслить дискретно и категорично побеждает даже у специалистов. А потому в очередных номерах журналов PLoS ONE в 2013 г. и PNAS в 2015-м появились статьи о датировках очередного первого сапиенса (Douka et al., 2013; Bosch et al., 2015). Тема эта не раз обсуждалась как в далеком прошлом, так и в последние годы. На сей раз взоры исследователей обратились на Ближний Восток. Восток же, как сообщает товарищ Сухов, дело тонкое, причем в самом буквальном смысле слова: между монолитом Африки и просторами Евразии лежит узкий путь по Леванту, ограниченный со всех сторон морями, горами и пустынями. Не зря находки из этого региона всегда играли особую роль в построениях антропогенезистов. Неслучайно тут найдены и неандертальцы, и сапиенсы, и их возможные помеси, неспроста многие ученые помещали тут прародину человечества. Всем известны находки из пещер Схул и Кафзех, Амуд и Табун. Но большинство незаслуженно забывает еще одну важнейшую находку – из пещеры Кзар-Акил. Ей-то и посвящены новые статьи. В далеком предвоенном 1938 г. в глубоком ливанском ущелье, в пещере Кзар-Акил, был найден крайне фрагментированный скелет, который его первооткрыватели нежно прозвали Эгбертом несмотря на то, что с большей вероятностью он принадлежал девочке. Сохранность находки была плоха, а судьба – печальна. Череп был описан и даже реконструирован, но бесследно пропал в недрах Бейрутского национального музея, ставшего для уникальной находки Бермудским треугольником (Bergman, 1989; Ewing, 1963). Что ж, Восток – земля тайн и загадок… Но не история потери делает череп Кзар-Акил уникальным, а его особенности. Череп очень уж маленький и грацильный для неандертальцев, с высоким сводом и без надбровного валика, а на нижней челюсти с небольшими зубами красуется острый подбородочный выступ. Проще говоря, череп вполне сапиентный, хоть и не без архаики. А слой со скелетом содержал орудия ахмарской индустрии – одной из первых верхнепалеолитических культур на планете. Отгремела мировая война, и раскопки в Кзар-Акиле возобновились. Сезон 1947 г. принес новое открытие – верхнюю челюсть без зубов, которая на сей раз получила прозвище Этельруда. Ее судьба несколько веселее, чем у Эгберта: она, конечно, тоже была потеряна, но в 2002 г. вновь выплыла из глубин Бейрутского национального музея при переучете коллекций. Надо сказать, что палеоантропологические находки в Кзар-Акиле не ограничиваются Эгбертом и Этельрудой. В предварительных отчетах о раскопках можно найти упоминания о захоронении “массивного ребенка” рядом с Эгбертом, а также описание молочного моляра Кзар-Акил 3 (Tillier et Tixier, 1991). Впрочем, о них можно сказать совсем немного. С самого начала открытия было ясно, что останки из Кзар-Акила относятся к заре человеческого вида. Слои раннего верхнего палеолита тут одни из древнейших. Ясно, что их неоднократно датировали. Но прогресс не стоит на месте: все новые методы очистки образцов, калибровки и уточнения дат позволяют по-новому взглянуть на многие старые находки. И вот – новые датировки людей из Кзар-Акила: Эгберт имеет возраст 39,2–40,8 тыс. лет назад, а Этельруда – 41,7–42,4 тыс. лет назад (Douka et al., 2013). Таким образом, с позиции первой команды, Эгберт оказывается современником человека из Пештера-ку-Оасе, а Этельруда – едва древнее (Douka et al., 2013). Есть еще более древние зубы из Кавалло и челюсть из Кентской пещеры, хотя их сапиентность зиждется на коварных одонтологических признаках, ценность коих трудноопределима. Не стоит забывать также про череп из Ниа на Калимантане и совсем уж древний Там-Па-Линг из Лаоса; правда, первый все же чуть моложе – около 37 тыс. лет назад, а время существования второго подвергается сомнениям. Из таких цифр и оценки верхнего палеолита Кзар-Акила как “первичного” следует несколько важных выводов. Во-первых, приятно узнать об очередном наидревнейшем сапиенсе. Во-вторых, многие датировки верхнего палеолита уже в Европе оказываются намного бóльшими, нежели в Кзар-Акиле, да и в Турции, в Учагизли, они на 1–2 тыс. лет глубже. Отсюда – с ноткой печали – следует, что верхний палеолит мог и не зародиться на Ближнем Востоке. А ведь именно эта гипотеза была ведущей на протяжении многих десятилетий, именно из Леванта большинство археологов протягивали линии первых миграций верхнепалеолитических сапиенсов по всей Евразии. Исследованию исходных для верхнего палеолита “преориньякских” ближневосточных культур посвящены сотни статей. А теперь – либо верхний палеолит пришел в Левант извне (с севера, из Европы?!) и поздно, либо огромные датировки в Европе требуют пересмотра. Переписываем учебники? Но так ли все безнадежно? Отнюдь! Карты Кзар-Акила еще не биты. Вторая команда получила заметно более древние даты (Bosch et al., 2015). Раковины из слоя XVII, содержавшего скелет Эгберта, имеют возраст 42,9–43,2 тыс. лет назад. Слой XXV с Этельрудой напрямую датировать нельзя, так как нет подходящих материалов, но цифры получены для слоя XXII – более 44,1 тыс. лет назад, так что возраст Этельруды, согласно хитрому расчету, получается не менее 45,9 тыс. лет назад! Если верны эти цифры (а получены они позже, так что исследователи учитывали данные первого исследования), то это уже прилично. Это уже, товарищи, поболе, чем у любых европейских сапиенсов, да и почти всех азиатских. Так что ближневосточная ахмарская индустрия – в очередной раз и как прежде – выдвигается на роль предковой для европейского верхнего палеолита, а ливанские кзар-акильцы – на места Великих Предков, а посему аврал отменяется. Однако это еще не все! Антропологические выводы могут быть еще более интригующими. Во-первых, с точки зрения первой команды, ни Эгберт, ни Этельруда не могут быть предками европейских и азиатских кроманьонцев, коль скоро те жили синхронно и чуть ли не раньше. Во-вторых, согласно второй команде, Эгберт оказывается одним из древнейших сапиенсов; он запросто мог принадлежать к популяции предков прочих современных людей, хотя сам лично в силу возраста вряд ли был чьим-либо предком. В-третьих, – и это самое интересное! – принадлежность Этельруды к сапиенсам крайне проблематична. В первой статье с ее описанием она была прямо отнесена к неандертальцам (Ewing, 1947). Хотя челюсть и невелика, да и зубы были некрупными, дно носовой полости понижается подобно варианту неандертальцев, и, как у них же, отсутствует клыковая ямка. Правда, присутствует сходство с челюстью черепа Схул V, а его многие склонны считать “анатомически современным человеком”, но и сходство, и таксономическое определение самого Схула V могут быть предметом споров. Если же Этельруда была все же неандерталкой, то это значит, что, во-первых, неандертальцы в Ливане дожили прямо до появления тут сапиенсов (разница в 1–2 тыс. лет – в пределах погрешности метода), а во-вторых, вполне могли быть создателями или хотя бы потребителями верхнепалеолитической культуры. Правда, эти предположения обоснованы не более, чем все предыдущие, и, наверное, даже слишком смелы. Видовой статус Этельруды от новых датировок не поменялся. По-прежнему неочевидно, была ли она неандерталкой или же представительницей нашего вида (не говоря уж о том, что мы точно не знаем – “была ли” или “был ли”). Так что, как обычно, что-то уточнилось, а что-то осталось секретом. Разрешить же вопросы могут лишь новые изыскания и открытия. И это хорошо – скучно жилось бы без загадок на белом свете. Пещеры и тайники музеев ждут своих исследователей… Древнейший сапиенс – на сей раз сибирский: Усть-Ишим и его ДНК. Где только ни находили древнейших сапиенсов – на Калимантане и в Южной Африке, Китае и Англии, Австралии и Лаосе… Наша же матушка Рассеюшка доселе как-то оставалась в стороне от мирового тренда. Велика Россия, но холодна, не очень-то стремились на ее бескрайние просторы древние гоминиды. Тем более неожиданно и радостно, что теперь древнейший сапиенс прописан у нас, в Омской области, на реке Иртыш. Недалеко от села Усть-Ишим Николай Паристов еще в 2008 г. нашел бедренную кость человека, да не простую, а в сопровождении многочисленных останков мамонтовой фауны, что как бы тонко намекало на немалую древность. Проведенное всестороннее исследование, результаты которого ныне опубликованы в журнале Nature, не только подтвердило эту догадку, но дало массу новой информации (Fu et al., 2014). Усть-ишимский человек жил 45 тыс. лет назад – как раз в самый ответственный момент истории Homo sapiens, когда первые кроманьонцы начали расселяться по планете. Когда начался этот исход, никому не ведомо, обычно называются осторожные цифры “от 150 до 40 тыс. лет назад”, но наиболее вероятным интервалом является 80–45 тысяч, причем генетики склоняются к более древним, а археологи и антропологи – молодым цифрам. Теперь же мы можем быть уверены, что как минимум 43 тыс. лет назад (минимальная возможная дата для Усть-Ишима с учетом погрешности) люди не только вышли с Черного континента, но и добрались до берегов Иртыша. Морфология кости, почти полностью проигнорированная в основном тексте статьи, на самом деле весьма интересна. Например, подвертельное сечение диафиза (в верхней части кости) оказывается у человека из Усть-Ишима строго промежуточным между неандертальским и кроманьонским вариантами. Середина кости все же более продвинутая, но тоже на грани неандертальских значений. Трудно сказать, обусловлены ли эти вариации больше происхождением или образом жизни, но архаичность налицо. Впрочем, слабый изгиб кости и сильное развитие шероховатой линии в виде пилястра на задней стороне – явные сапиентные черты, резко отличные от неандертальского строения. Для особо же сомневающихся был проведен анализ генома, обсуждению коего, собственно, и посвящена основная часть статьи. Геном усть-ишимца оказался ожидаемо сапиентен. У него вовсе нет денисовской примеси, а неандертальской обнаружилось примерно 2,3 %; при том же способе подсчета у европеоидов ее оказывается 1,6–1,8 %, а у монголоидов – 1,7–2,1 %. Отсюда следует, что усть-ишимец не так далеко отстоит по времени от момента метисации. Авторы статьи оценивают этот срок в 7–13 тыс. лет, то есть, учитывая датировку самой находки в 45 тыс. лет, смешение должно было происходить 52–58 тыс. лет назад. В общем, сплошная красота и торжество науки. Но критиканская жилка не дает мне покоя, почему не могу не вставить свое но! Во-первых, занимательно, что авторы статьи постулируют, что неандертальская примесь появилась у сапиенсов 37–86, даже более вероятно – 47–65 тыс. лет назад. Занимательно это потому, что те же самые авторы 15 лет назад отвергали какую-либо примесь неандертальцев вообще, а потом высчитывали ее появление 50–80 тыс. лет назад. Еще год назад звучало, что у современного человека от 1 до 4 % “неандертальщины”, теперь же градус понижен в полтора раза. Так и хочется воскликнуть: доколе, господа генетики?! Сколько можно менять даты и проценты, притом что классические антропологи те же выводы делали еще десятилетия назад, когда молекулярной генетики не было и в помине? Во-вторых, западные исследователи, конечно, не могли удержаться от намека на русскую дикость. В конце комментариев к статье Крис Стрингер заявил: “Это просто случайная находка в отложениях сибирской реки. То ли еще будет, когда они начнут смотреть систематически?” Как бы и нет Института археологии РАН, археологов из множества иных институтов и их бесчисленных экспедиций. Дикая Сибирь, кости по берегам бесхозные, бесприглядные валяются, так и ждут, когда “они” начнут искать их систематически… Видимо, мало возил Анатолий Пантелеевич Деревянко зарубежных коллег по сибирским раскопам. Грустно, товарищи! Но исследования продолжаются, от Эфиопии до Омска путь неблизкий, где-то еще скрываются останки предков, а потому мы вправе ждать новых открытий. Древнейший сапиенс Европы!.. И опять древнейший сапиенс Европы!!! В 2011 г. на страницах журнала Nature развернулась гонка за звание древнейшего сапиенса Европы. Любопытно, что в забеге участвуют старые испытанные претенденты: фрагмент верхней челюсти с тремя зубами из Кентс-Каверн в Англии, найденный еще в 1927 г., и два зуба из Гротта-дель-Кавалло в Италии, обнаруженные в 1964-м. Что же нового в таких неновых находках? Челюсть из Кентской пещеры неоднократно датировалась. До сих пор цифры получались большими, но не чересчур: 30,9, 31,1, самое большее – 34,7–36,4 тыс. лет назад. Но прогресс не остановить! Новейшие методы очистки образцов от позднейших загрязнений позволили уточнить возраст кентского человека, он оказался равным 41,5–44,2 тыс. лет назад (Higham et al., 2011). А это древнее предыдущего рекорда для номинации “древнейший сапиенс Европы”, принадлежавшего нижней челюсти из румынской Пештера-ку-Оасе и составлявшего 41–42 тыс. лет назад. Правда, в Пештере находка куда как более представительная – все же целая челюсть (есть еще и череп, но он “совсем молодой” – “каких-то” 35 тыс. лет), но не все же сразу. В Кентской пещере, кстати, тоже имеются другие, более молодые находки. Главное, что зубы из челюсти Кентс-Каверн 4 имеют более-менее сапиентное строение. Правда, они очень сильно стерты, но большинство их параметров не выходят за рамки изменчивости сапиенсов. Стоит, впрочем, оговориться, что некоторые (и даже многие) признаки можно расценить и как неандертальские: тавродонтизм (увеличенная пульпа зуба), очень массивные корни клыка и моляра; у премоляра корень очень грацильный – “сапиентный”, – зато очень длинный, коронки имеют очень большие размеры. Так что сторонники версии позднего заселения сапиенсов в Европу могут серьезно спорить с интерпретацией, приведенной в Nature. Подобный же спор относительно таксономической принадлежности других двух зубов – из итальянской пещеры Кавалло – на данный момент закончился в пользу сапиенсов (Benazzi et al., 2011). Два верхних молочных моляра – первый и второй – раньше определялись как неандертальские. Их новая датировка – 43–45 тыс. лет назад. Замечательно, что зубы в Кавалло найдены в слое с орудиями культуры улуццо. Эта культура, наряду с шательперроном, имеет мустьерскую основу, но и явные черты верхнего палеолита; в Кавалло индустрия рассматривается как верхний палеолит “с обликом культуры улуццо”. Некоторые археологи склонны рассматривать эту особенность как артефакт – результат перемешивания мустьерских и верхнепалеолитических слоев, другие – как свидетельство заимствования неандертальцами верхнепалеолитических новаций у сапиенсов, третьи – как доказательство независимого возникновения верхнепалеолитической индустрии у неандертальцев. До сих пор считалось, что создателями шательперрона и улуццо были неандертальцы. В пользу такого заключения приводилась мустьероидность самих культур (но это, понятно, косвенный аргумент) и принадлежность черепа и костей из Сен-Сезер явному неандертальцу, хотя и с некоторыми прогрессивными чертами (в виде подбородочного выступа, например). Относительно улуццо доказательств явно не хватало; одним из них и были зубы из Кавалло. Первоначально они были идентифицированы как “укладывающиеся в размах изменчивости неандертальцев”. Теперь же группа исследователей показала, что по комплексу особенностей эти зубы вполне сапиентные и имеют даже очень современное строение – более современное, чем у большинства верхнепалеолитических людей. Многомерный анализ главных компонент, привлеченный для обсчета параметров зубов из Кавалло, правда, не очень годится при сравнении сильно различающихся групп, но такова уж странная традиция зарубежной антропологии – использовать именно этот статистический метод. Главное, что разница Кавалло и неандертальцев получилась очень уж наглядная. Окончательно решить спор о неандерталоидности или сапиентности людей из Кентской пещеры и Кавалло мог бы генетический анализ. А вдруг это вообще метисы? Где вы, палеогенетики?! Правда, сапиентность людей из Кентской пещеры и Кавалло, даже будь она доказана не на основании изменчивых одонтологических признаков, а, скажем, по строению целого черепа, все же не говорит о том, были ли эти древнейшие сапиенсы Европы предками кроманьонцев. Напомним, что часть археологов считает, что неандертальцев подкосили экологические потрясения, вызванные извержениями вулканов в Италии и на Кавказе. Так ведь эти же катаклизмы могли стереть с лица Европы и сапиенсов-пионеров. Что ж, трудна дорога первопроходца… Все эти новые данные можно расценивать и как дополнительное подтверждение идеи, согласно которой расселение сапиенсов за пределы Африки не происходило в результате “волны миграции”, а осуществлялось неоднократно и постепенно. Кто-то, осваивая неандертальские вотчины, расчищал дорогу новым поколениям, но пал от невзгод ледникового периода. Кому-то повезло больше. Остается надеяться, что в руки археологов и антропологов попадут более полные останки очередных “древнейших сапиенсов Европы” и мы сможем судить о них не только по зубам. Великий Предок всея Азии, Океании и Америки. Немецко-китайская группа исследователей проанализировала ДНК человека из пещеры Тяньянь, расположенной в Чжоукоудяне, рядом с Пекином (Fu et al., 2013). Находка уникальна своим впечатляющим возрастом – 40,33 тыс. лет назад – при сапиентном строении. Это один из самых древних сапиенсов вообще и в Азии в частности. К великому сожалению, сохранились лишь часть нижней челюсти да кости рук и ног. По этим останкам ясно, что человек принадлежал к виду Homo sapiens, имел массу архаичных особенностей, но более детальное родство выявить не удается. Другое дело – ДНК! Уж она-то не соврет! Чтобы не мелочиться, исследователи изучили сразу и митохондриальную, и ядерную ДНК. Результаты оказались впечатляющими. Во-первых, сапиентность человека из Тяньяня подтвердилась. Это хорошо! Во-вторых, оказалось, что Тяньянь обнаруживает значительно большее родство с монголоидными и американоидными популяциями, чем с негроидными и европеоидными. Отсюда был сделан закономерный вывод, что Тяньянь представляет популяцию, существовавшую позже разделения монголоидов и европеоидов, но предковую для всей азиатско-американской расы (в статье, конечно, терминология не совсем такова, но в переводе на русскую антропологическую это именно так). Самое важное – оказывается, что выделение монголоидов в широком смысле восходит уже к самому началу верхнего палеолита. Группа Сванте Паабо не могла не рассмотреть вопроса о неандертальской и денисовской примесях. Неандертальской оказалось в целом столько же, как у всех неафриканских сапиенсов. А вот денисовской примеси у человека из Тяньяня оказалось чуть больше, чем у кого-либо из современных “не-меланезийцев”, но намного меньше, чем у меланезийцев. Такое распределение может быть объяснено несколькими путями. Во-первых, такие вещи всегда можно списать на генный дрейф. Но это уход от объяснения. Во-вторых, можно предположить, что предки Тяньяня смешивались с денисовцами, но “маленько-маленько”. В-третьих, возможна ошибка расшифровки ДНК, схожая для всех древних образцов; но авторы статьи божатся, что делали все как надо. Наконец, четвертая возможность – самая вероятная с точки зрения исследователей: и Тяньянь, и денисовцы очень древние и потому ближе к общему предку, нежели современные люди, отсюда и большее родство генов. Из этого следует, что смешение восточных экваториалов с денисовцами происходило либо сильно южнее, либо позже 40 тыс. лет назад. Все красиво. Но я не был бы собой, если бы не сказал своих решительных но… Для начала в статье есть некоторые этнографические странности. Например, поминается группа Tofalar Negidal, живущая, судя по карте, на нашем Дальнем Востоке. Я, конечно, понимаю, что при взгляде из Германии и Китая нечего различать каких-то диких северных варваров, все одно – что негидальцы, что тофалары (которые вообще-то живут в Туве, на пол-Азии западнее; характерно, что тубалары упомянуты с правильной локализацией на карте). Да и словосочетания “тайваньские аборигены” и “жители побережья Папуа – Новой Гвинеи” тоже мало что значат. Узбеки, по мысли авторов статьи, судя по всему – типичные монголоиды. Население Центральной и Южной Азии рассматривается как, по большому счету, родственное. Спишем на глобальный подход… Важнее другое. Каждому антропологу (возможно, в отличие от большинства генетиков) немножко бросается в глаза, что результат кластеризации групп по мтДНК, опубликованный в статье, оказался слегка сумбурным. Негидальцы оказались ближайшими родственниками никобарцев, узбеки – тайцев, буряты – индейцев пима, киргизы – корейцев, а меланезийцы братски смешались с полинезийцами. А уж если начать вникать в расширенную версию кладограммы, приведенную в приложении… Лучше туда не смотреть! По большому счету анализ показал лишь существование азиатско-американской и восточноэкваториальной рас (это если не учитывать расширенную версию, в которой все еще смешались с европеоидами) и не смог отделить монголоидов от американоидов и меланезийцев от полинезийцев. Таким образом, разрешающая способность метода, строго говоря, крайне низка. Если бы такие результаты были получены с использованием классических антропологических признаков, то был бы сделан вывод, что либо признаки никуда не годятся, либо метод. Хочется верить, что генетические признаки не столь безнадежны, как следует из приведенных в статье результатов. Что же касается статистического метода обсчета, давно известно: кластерный анализ что дышло – какой алгоритм применишь, туда и вышло. В данном случае из такого анализа следует лишь то, что человек из Тяньяня был очень древним и в целом родственным всем людям, живущим восточнее Каспийского моря, включая Америку. Результат анализа 21-й хромосомы оказался более внятным, но, думается, лишь потому, что количество задействованных групп – 11 современных – крайне мало. Из него действительно следует, что человек из Тяньяня ближе к “азиатам”, чем к “африканцам” и “европейцам”, но проблема в том, что в число “азиатов” попадают и папуасы. Думается, сюда же попали бы и австралийские аборигены, будь они включены в анализ. Да и родство Тяньяня с этими “азиатами в расширенном смысле” не слишком запредельное, меньшее, чем между папуасами и китайцами, а то и ближе к папуасам, разница с которыми заключается в отсутствии или наличии денисовской примеси. Впрочем, в приложении к статье приведен иной вариант той же кладограммы, в коей папуасы оказываются отодвинуты на боковую ветвь. Таким образом, можно с удовлетворением отметить, что наши знания о древнейших сапиенсах пополнились. Если не говорить о том, что было известно и без генетического анализа, можно подчеркнуть два вывода. Первое: теперь мы точно знаем, что 40 тыс. лет назад денисовская примесь на севере Китая была очень малой или вообще отсутствовала. Второе: изоляция восточноазиатских групп от более западных восходит как минимум к началу верхнего палеолита, а население того времени с большой вероятностью является предковым для современного. Остальное – выяснят будущие исследования.Много их, древнейших настоящих сапиенсов, несть им числа. В Африке это Назлет-Хатер 2 (Египет, 30–45 тыс. лет назад) и Хофмейр (Южная Африка, 36,2 тыс. лет назад), на Ближнем Востоке, кроме помянутых, – Геула-Кейв (Израиль, 42 тыс. лет назад), в Восточной Азии – Турубун-Хангсугул и Рионггок (Корея, 40–50 и 46–48 тыс. лет назад), в Индонезии – Ниа (Калимантан, 37 тыс. лет назад), в Европе – Пештера-ку-Оасе и Байя-де-Фьер (Румыния, 42, 34–36 и 35 тыс. лет назад). Про любого из них можно сложить свою сагу, история открытия и достоинства каждого достойны воспевания. Но будем умеренны, иначе вся глава превратится в перечисление самых-пресамых.
Известнейшие из ранних сапиенсов – несомненно, кроманьонцы из Кро-Маньона. Найденные еще в 1868 году пять скелетов и отдельные кости еще семи индивидов, а также сопровождавшие их вещи настолько впечатлили антропологов, что название грота стало нарицательным. Сейчас мы знаем, что они были погребены 27,7 тыс. лет назад. С этого момента начались бесчисленные открытия людей верхнего палеолита.
Первые из кроманьонцев несли еще немалый заряд примитивности, а многие – откровенной неандерталоидности. Так, древнейшая сапиентная челюсть из Европы – из Пештера-ку-Оасе – содержит ДНК, на 5–11 % неандерталоидную (а в 12-й хромосоме так и вовсе половина неандертальская). Не исключено, что смешение происходило всего за 4–6 поколений до жизни Пештера-ку-Оасе 1! Несмотря на это, основная часть генетики у этого человека схожа с таковой современных жителей Евразии, а из кроманьонцев – человека с Маркиной горы.
Морфологическое строение подавляющего большинства кроманьонцев уже вполне современное. Конечно, древнейшие представители имели в среднем более тяжелые вытянутые черепа, зачастую развитые надбровные дуги, крупные лица с большими зубами, но все это – в пределах изменчивости современного человечества. Более того, кроманьонцы разных времен и регионов отличались друг от друга значительнее, чем представители самых несхожих современных рас. Это и не странно, ведь одно дело, когда мы говорим о людях, между которыми десятки тысяч лет, а другое – о синхронных популяциях. Вместе с тем верхнепалеолитических сапиенсов никак не удается отнести ни к одной современной расе, так как рас этих в то время еще не было. Популяции различались, их комплексы можно назвать верхнепалеолитическими расами, но они своеобразны; за прошедшие тысячи лет комплексы признаков многократно поменялись – из-за адаптаций, смешений и генетико-автоматических процессов. Поэтому найти прямых предков кого-то современного в верхнем палеолите малореально: один и тот же человек того времени мог передать свои гены представителям самых разных рас, а любой современный человек имеет гены самых разных кроманьонцев.
Крушение концепции “европейских папуасов”: “человек мира” – мужчина с Маркиной горы. Интерпретация морфологических признаков ископаемых людей – в своем роде искусство. Например, о чем говорит широкий нос, прогнатизм, развернутость скул вперед и небольшие размеры долихокранного черепа при повышенной массивности? Конечно же, перед нами несомненный австралоид! А если мы находим такого “австралоида” в Воронежской области? Это следы миграции из Африки на восток! Ну, заблудился маленько гражданин, с кем не бывает. Примерно такая картина до сих пор вырисовывалась с кроманьонцем из Костенок XIV, или с Маркиной горы. Скелет мужчины был найден еще в 1954 г. А. Н. Рогачевым. Маркина гора, или Костенки IV, – одна из примерно трех десятков стоянок, расположенных в окрестностях деревни Костенки в Воронежской области. Это истинная мировая сокровищница культуры древних людей. Уже более ста лет эта местность раскапывается, и конца-края открытиям не видать. Трудно сказать, чем древним охотникам нравилась именно эта точка планеты, но люди тут активно жили тысячи лет – со времен неандертальцев по наши дни. Конечно, это не значит, что население было непрерывным и преемственным: кто-то приходил, потом уходил, на их место заселялись новые жильцы. В итоге Костенки представляют собой уникальный археологический “пирог” из слоев, содержащих остатки множества разнообразных культур, а также кости животных – добычи древних охотников. Неспроста и современная деревня называется Костенки: местные жители часто находили в оврагах и собственных погребах следы прошлого. В Костенках в разные годы были открыты и останки древних людей: череп пожилого мужчины в Костенках II (Аносов лог, или стоянка Замятнина), фрагменты скелета взрослого в Костенках 8 (Тельманская), скелет младенца Костенки 12 (стоянка Волкова), скелет ребенка в Костенках XV (Городцовская стоянка), один зуб в Костенках XVII (Спицынская стоянка) и череп ребенка в Костенках XVIII (Покровский лог, стоянка Хвойко). Правда, почти во всех этих случаях сохранность погребений очень плохая, из них трудно получить много информации. Другое дело – находка на стоянке Маркина гора. Тут было раскопано погребение идеальной сохранности. Оно уникально среди верхнепалеолитических: скелет лежал в узкой яме в очень сильно скорченном положении, с коленями, притянутыми к груди, а пятками – к тазу. Тело так уложить невозможно, очевидно, оно было связано или тесно спеленуто. Видимо, тут проводился обряд “обезвреживания покойника”, известный в самых разных культурах: неприятно, если мертвец вылезет из могилы и будет шляться среди живых, надо гарантировать его спокойствие – отрубить голову, сломать ноги, забить осиновый кол, хотя бы связать. Человеку с Маркиной горы подрезали связки ног и туго во что-то замотали (то же, кстати, сделали с мужчиной Дольни-Вестонице 16 в Чехии, а подростку из Арене-Кандиде в Италии, возможно, отломали кусок нижней челюсти). Сверху скелет был густо посыпан яркой темно-красной охрой. В самом погребении орудий не было, но, судя по стратиграфии – взаимному расположению слоев, погребенный человек был членом группы, использовавшей городцовскую культуру. Погребение не раз датировалось, его возраст по новейшему определению – 36,2–38,2 тыс. лет назад, так что Костенки XIV попадает в почетный список древнейших европейских сапиенсов. Собственно, сам скелет тоже уникален. Во-первых, он очень маленький, но по всем главным признакам принадлежал мужчине. Для эпохи верхнего палеолита это совсем нетипично. Во-вторых, человек был молодым – 20–25 лет, но его кости очень изношены, очевидно, жизнь у него была нелегкая. Это как раз довольно обычное состояние для людей каменного века.
Рис. 37. Черепа Маркина Гора (а), Сунгирь (б) и Кро-Маньон (в).
Самое же интригующее – внешность человека с Маркиной горы, она сразу приковала к себе внимание антропологов. С самого начала изучения было очевидно, что он резко выделяется на фоне всех кроманьонцев – древнейших сапиенсов. С этого начался наш рассказ: весь экваториальный набор признаков у мужчины из-под Воронежа оказывается выражен фактически в максимальной степени. Можно сказать, это образцовый экваториал, изо всех современных рас Костенки XIV больше всего напоминает меланезийцев! Как, почему?! Во всей Европе – древней и современной – не сыщется аналога такому комплексу признаков. Этот факт неоднократно обсуждался в антропологической литературе, но внятного объяснения ему не было. С одной стороны, сапиенсы как вид появились в Африке, и у многих верхнепалеолитических людей прослеживаются экваториальные особенности – у одного нос широкий, у другого челюсти выступают вперед, у третьего тропические пропорции рук и ног. С другой стороны, расселение произошло, возможно, еще около 50 тыс. лет назад или даже раньше, то есть за много тысяч лет до большинства известных кроманьонцев Европы. В условиях сурового климата, примитивной культуры, малочисленности групп и жесточайшего отбора признаки должны были очень быстро меняться. И действительно, ни у одного европейского кроманьонца экваториальные черты не образуют полного комплекса. Исключение – два скелета “негроидов” из Гримальди в Монако, где, вероятно, в “негроидности” черепов больше вклад реконструкции, чем реальности. И вот на всем этом фоне мы видим человека с Маркиной горы! Его особенности уж точно не спишешь на неверную реконструкцию, ведь череп найден целым. Более того, костенковец не просто экваториален, а восточноэкваториален. Ведь жители Африки с одной стороны и Меланезии с Австралией с другой схожи лишь по части признаков. В строении черепа между ними масса различий. И вот по этим особенностям человек с Маркиной горы оказывается ближе как раз к папуасам, нежели африканцам. Впрочем, в верхнем палеолите меланезийцев современного облика ведь тоже не существовало. Немногочисленные находки из Меланезии и более обширные материалы из Австралии показывают, что первые жители края земли были чрезвычайно массивными, очень крупными людьми, а современный тип папуасов сложился заметно позже. С другой стороны, и в Африке того времени негроидов в нынешнем виде не было. Черепа из Хофмейра в Южной Африке (36,2 тыс. лет назад) и Назлет-Хатера в Северной (33 тыс. лет назад) совсем не похожи ни на современных негров, ни на Маркину гору. Где же искать родню? Ближайшим аналогом оказывается череп из местонахождения Таза 1 в Алжире (Medig et al., 1996; Meier et al., 2003). Его датировка – 16,1 тыс. лет назад – вдвое моложе костенковской. Но морфологически они действительно очень схожи: те же мелкие размеры, тот же прогнатизм, очень низкое лицо с широкими и развернутыми вперед скулами, широкий нос, низкие прямоугольные глазницы, сильно развернутые углы нижней челюсти. Крайне маловероятно, что между этими находками есть прямая связь, но их сходство лишний раз подчеркивает экваториальность Маркиной горы. В. В. Бунак был склонен расценивать особенности костенковца как подтверждение идеи о “верхнепалеолитическом полиморфизме”, “недифференцированности расовых особенностей в эпоху верхнего палеолита” (Бунак, 1959). Согласно ей, в те времена нынешние расы еще не сформировались, а находились в стадии становления. Поэтому на отдельных верхнепалеолитических черепах мы можем встретить необычные сочетания признаков, в том числе они могут складываться и в комплексы, схожие с современными, что необязательно свидетельствует о родстве. Но приходят новые времена и новые методы. За четыре года до расшифровки ядерной ДНК костенковца – в 2010 г. – было опубликовано исследование его мтДНК (Krause et al., 2010). Его гаплогруппа U2 оказалась схожей с вариантами, распространенными на юге Европы, в частности в Италии. Впрочем, результаты можно интерпретировать и иначе: например, в них вполне можно увидеть сближение Маркиной горы с жителями Северной Африки, Ближнего Востока и Северной Индии. И вот новый шаг вперед: расшифрована ядерная ДНК Костенок XIV (Seguin-Orlando et al., 2014). Выяснились прелюбопытнейшие вещи. Во-первых, мужчина с Маркиной горы генетически похож на верхнепалеолитического ребенка из Мальты под Иркутском, чей геном был расшифрован совсем недавно (Raghavan et al., 2014). Это, кстати, свидетельствует о качестве расшифровки генома: были бы данные ошибочны, скорее всего, результаты бы “разъехались” в случайные стороны. Во-вторых, в масштабе современной изменчивости костенковец занимает самое усредненное положение, в его геноме смешаны черты фактически всех современных рас. В-третьих, среди генетической мешанины Маркиной горы все же преобладают гены “европейских охотников-собирателей”, несколько меньше “ближневосточных”, “центральноазиатских” (судя по выборке, имелись в виду Средняя Азия, Афганистан и Пакистан) и “южноазиатских” генов. В-четвертых, “африканских” генов немного, но еще меньше “океанических”, “американских” и “восточноазиатских”. То есть “экваториальность” из популяций за более чем десяток тысяч лет с момента выхода из Африки уже сильно повыветрилась. Что, впрочем, не сказалось на внешности. Дело в том, что генетики пока не знают, как наследуются сложные признаки строения черепа. С одной стороны, это не такие уж существенные различия (коли уж даже от шимпанзе мы отличаемся на пару процентов генома), с другой – где-то же они шифруются. В-пятых, неандертальской примеси у костенковца оказывается закономерно больше, чем у современных неафриканцев. Это логично, ибо от момента метисации тогда прошло не так много времени. Денисовской примеси и вовсе нет. Из этих фактов делаются более глобальные выводы. Во-первых, сроки разделения “восточноазиатских” и “западноевропейских” популяций должны восходить ко времени не менее 36,2 тыс. лет. Вывод вполне ожидаемый, учитывая, что Азия была заселена сапиенсами, очевидно, раньше. Это понятно и по древнейшим датировкам – более 40 тыс. лет назад для людей из Там-Па-Линг и Ниа. С другой стороны, за десятки тысяч лет люди теоретически могли не раз мигрировать туда и обратно, так что приятно, что данные по Маркиной горе вписываются в общую картину и подтверждают ее. Во-вторых, современные европейцы происходят в значительной степени от “метапопуляции”, расселявшейся через Европу в “Центральную Азию”, причем Костенки XIV принадлежал к ней. В мезолите из исходной генетической каши в Европе выкристаллизовались и сохранились почти одни “европейские” гены (собственно, потому мы их так и называем, что тут остались именно они). В неолите к ним добавилась немалая толика (от трети до половины) генов “ближневосточных фермеров”, под которыми понимаются люди Ближнего Востока, первыми перешедшие к земледелию и за счет этого резко нарастившие численность, расселившиеся по всей субтропической и умеренной зоне до Испании в одну сторону и Индии в другую, частично вытеснившие, а частично смешавшиеся с коренным населением этих мест. Красота! Но: можно взглянуть на картину и иначе! Для начала в душе классического антрополога вскипает основательный протест против использованного в исследовании подразделения современных людей на основные группы. Например, иранцы отнесены к “Ближнему Востоку”, азербайджанские евреи и ногайцы – к “Кавказу”, народы Средней Азии, Афганистана и Пакистана, включая туркмен, узбеков, казахов, киргизов, уйгуров, патанов и курдов, – к “Центральной Азии” (и ничего, что курды живут западнее иранцев), тогда как Индия выделена в самостоятельную единую группу. Монголы оказались в “Восточной Азии” вместе с мяо, а буряты и якуты – в “Сибири” вместе с чукчами и кетами. С одной стороны, как бы и не поспоришь, строго географический подход – тоже подход, с другой – нельзя же так откровенно игнорировать всю известную историю сложения современных народов! Благо хоть представленные графики позволяют разобраться, что имелось в виду на самом деле. А Северная Европа и Австралия вообще не представлены в выборке… К тому же по многим графикам, опубликованным в приложении к статье, выходит, что Костенки XIV больше всего сближается с кавказскими, среднеазиатскими или пакистанскими группами (сильнее всего – с синдхами, макрани и брагуями, таджиками, туркменами, адыгейцами, чеченцами и ногайцами), а вовсе не с западными европейцами. Надо думать, это получилось в немалой степени из-за смешанности и сложности этногенеза указанных современных народов. Средняя Азия и частично Кавказ были ареной метисации монголоидных и европеоидных популяций с раннего железного века до современности, то есть совсем недавно, эти процессы прекрасно изучены. Стало быть, метод сравнения групп, использованный в статье, может быть не вполне корректен, раз верхнепалеолитический человек классифицируется как принадлежащий заведомо недавно смешанным группам? И действительно, метод главных компонент, которым велись расчеты, показывает не очень хорошие результаты при сравнении не очень родственных популяций. Очевидно, генетикам и антропологам надо еще основательно поработать над методиками осмысления столь сложных материалов, как палеогенетические. Вывод о невероятной глубине разделения “европейцев” и “восточноазиатов” тоже не так уж однозначен. С одной стороны, действительно, “восточноазиатских” генов у Маркиной горы немного. Но и “европейских” у него заметно меньше 50 %. Вполне может быть, что дело просто в генетико-автоматических эффектах. Просто от верхнего палеолита в Европе увеличивалась частота “европейских” генов, а в Азии – “азиатских”. Собственно, “европейскость” или “азиатскость” определяется исходя из современных групп, на последовательности нуклеотидов бирка не подвешена (а жаль!). Кажется, за недостатком древних материалов генетики пока вынуждены плясать не с той стороны – от современности в древность… К тому же никто не отменял шедшего во все времена обмена генами, ведь между Европой и Дальним Востоком нет и никогда не было непреодолимых границ. А как же “папуасские” черты облика Маркиной горы? К великой печали, с образом воронежского папуаса приходится распрощаться. То есть строение черепа Костенок XIV чудесным образом от работы генетиков не поменялось, но вот генетического родства с жителями Меланезии у него нет настолько, насколько это может быть в неафриканских пределах. Что же, классическая антропология отправляется на свалку? Похоже, так и считают авторы генетического исследования, поскольку в огромном приложении к статье из 124 страниц антропологии посвящены буквально 3 строки! Но не все так печально. В. В. Бунак, как всегда, оказался прав. Костенки XIV действительно оказался настолько “недифференцированным”, насколько это можно представить генетически. Его экваториальные черты, приправленные немалой долей архаики, свидетельствуют о недавнем выходе из тропиков и могут расцениваться как приближенные к исходным для Homo sapiens'а. Очевидно, его “экваториальность” – не конвергентного и не случайного свойства, а свидетельство единства происхождения всех человеческих рас. Как и при сравнении с “европейцами” и “восточноазиатами”, сопоставление костенковца с современными жителями Океании может быть не вполне корректным. Хотя современные меланезийцы генетически и удалены от Маркиной горы, это может больше говорить лишь о прошедших без малого 40 тыс. лет, бесконечном числе “бутылочных горлышек” и “эффектов основателя” как в Европе, так и в Меланезии. Для того же, чтобы разобраться в перипетиях, сопровождавших сложение современных рас, надо изучить больше верхнепалеолитических и современных людей – как генетически, так и морфологически. И думается, мы вступаем в новую эпоху палеоантропологии…Верхний палеолит ознаменовался великими географическими открытиями: люди впервые проникли в Австралию и Америку.
Тысячи лет одиночества. Заселение Австралии – великая тема (подробно об этом можно прочитать в книге: Дробышевский, 2014). Большой путаницей и множеством спекуляций сопровождается вопрос о датировках заселения этого континента. Последнее время стало модно утверждать, что Зеленый континент был заселен 60 или даже 80 тыс. лет назад. Такие цифры приводятся не только в популярной, но и научной литературе. И действительно, очень солидные датировки были определены для целого ряда австралийских местонахождений, вплоть до 176 тыс. лет назад в Джинмиуме; также часто при этом звучат такие экзотические названия, как Малакунанжа II, Наувалябила, Девилс-Лейр и другие. На их основании многие археологи и антропологи рисовали картины ранних миграций и строили концепции расселения древнейших сапиенсов. В реальности же все датировки древнее 45 тыс. лет при перепроверке оказываются недостоверными (O'Connell et Allen, 1998, 2004), в самом оптимистичном случае эту цифру можно дотянуть до 48 тыс. лет назад (Gillespie, 2002). К примеру, Джинмиум имеет возраст не более 4000 лет, Малакунанжа II – 10,8 тыс., Наувалябила – меньше 40 тыс., а вероятно, всего 9,2–12,5 тыс. лет. Прежние огромные цифры были получены либо путем неадекватного применения методики, либо на некой золе и углях, которые никак не связаны с археологическими слоями. Учитывая особенности климата и то, что австралийская флора отлично адаптирована к регулярным пожарам, можно утверждать, что такое приспособление сложилось задолго до появления людей, а потому наличие пепла в дочеловеческих слоях совсем неудивительно и вполне закономерно. Около 34 тыс. лет назад была заселена Тасмания, куда люди не приплыли, а пришли посуху, так как Бассов пролив во время оледенений становился мостом. Много страниц было потрачено на обсуждение вопроса о количестве “волн миграций” и путях заселения Австралии. Классической является точка зрения, согласно которой Зеленый континент был заселен единожды через Новую Гвинею. Однако многочисленные факты позволяют утверждать, что и после люди неоднократно проникали сюда. Открытия единичных ископаемых черепов и их незамысловатое типологическое сравнение породили дигибридную концепцию. Согласно ей, первыми в Австралии появились сравнительно грацильные люди, представленные черепом из Кейлора; вторыми же якобы были гораздо более массивные персонажи, олицетворенные в Талгае и Кохуне. Простейшая логика привела к отождествлению первых с “тасманоидами”, а вторых – с “австралоидами”. Несмотря на то, что эта концепция была подвергнута мощной критике сразу после опубликования, она до сих пор находит сторонников. Логичным продолжением явилась тригибридная теория происхождения аборигенов, основанная на изучении современных людей (Birdsell, 1967). Согласно ей, первая волна миграции включала людей меланезийской расы – темнокожих, курчавоволосых и очень низкорослых. Реликтами этого переселения являются тасманийцы и пигмеи барринес Северного Квинсленда. Во второй миграции участвовали похожие на айнов люди, которые вытеснили потомков первой и частично смешались с ними, а в настоящее время их потомки, названные мюррейцами – средневысокие, наиболее массивные, сравнительно светлокожие, прямоволосые, узко– и прямоносые, с усиленным третичным волосяным покровом, – заселяют Южную, Западную Австралию и восточное побережье. Третье переселение дало карпентарийцев – высокорослых, темнокожих, волнистоволосых, со средним развитием волос на лице и теле, – заселивших Северную и Центральную Австралию. Датировки “волн”, как обычно, весьма условны – более 40, 20 и 15 тыс. лет назад. Тригибридная теория, как полагается, была раскритикована и ныне в зарубежной антропологии непопулярна. Впрочем, корректных аргументов против нее так и не было выдвинуто, а от прочих она выгодно отличается фундаментом в виде большого фактического материала, а не только голословных рассуждений. Археология показывает, что в Австралию люди продолжали прибывать и после, в том числе в голоцене. Например, собаки динго появились в Австралии лишь 3–4 тыс. лет назад – ясно, что они не сами переплыли Торресов пролив. Аборигены залива Карпентария применяли лодки с парусом, а на Кейп-Йорке были известны лодки с балансиром-аутригером и лук со стрелами, там же и на Арнемленде строились свайные дома, на северо-востоке Арнемленда выделывались резные человеческие фигуры. Наконец, на Арнемленде найдены макассарские погребения ловцов трепангов, приплывавших сюда из Индонезии. Если они могли добираться до Австралии в XIX веке, что мешало людям делать это и раньше? На восточное побережье могли высаживаться фиджийцы или полинезийцы, хотя вряд ли они сильно повлияли на антропологию или культуру аборигенов. Местные жители были не очень-то гостеприимны, незваных гостей без долгих разговоров убивали копьями. Главным же барьером на пути взаимовлияния были экологические условия: на окружающих островах цветут тропические леса, Австралия же – земля пустынь и степей. Когда островитяне (в поздние времена – сплошь земледельцы) добирались до Австралии, им там было нечего делать. Если же австралийского аборигена занесло бы, скажем, на Новую Гвинею, он бы тоже растерялся – он отлично знал, как добыть обычного кенгуру, но как снять с кроны древесного? Путь заселения Австралии достаточно очевиден – через Индонезию и Новую Гвинею. Но и тут изобретательный ум ученых предусмотрел три возможности. Некоторые антропологи умудряются противопоставлять два пути – через Кейп-Йорк и Арнемленд – и даже уверенно утверждать, что первым – почему-то именно из Южного Китая через Индокитай, Калимантан и Молуккские острова – Сулавеси и Серам – на Новую Гвинею и далее, по островам Торресова пролива и восточному побережью Австралии – шли люди “кейлорского типа”, а вторым – через Малакку, Суматру, Яву и острова Нуса-Тенггара на Тимор и вдоль Западной Австралии – “тальгайско-кохунского”. Однако в плейстоцене все острова Индонезии сливались в единую Сунду, а оба северных австралийских полуострова были соединены между собой и Новой Гвинеей в один Сахул, так что двух раздельных путей по Индонезии и двух конечных точек прибытия в Австралию просто не было. Напротив лежали два субконтинента, а между ними – множество островов и проливов. Противопоставление двух путей с начала до конца плод географической фантазии. Любопытным остается лишь момент переправы с Сунды на Сахул. Он мог осуществляться либо через Сулавеси и Молукки – Хальмахеру с Серамом, либо через Нуса-Тенггара и Тимор. Эти варианты не так уж различаются, если учесть, что в исторические времена связи между Сулавеси и Нуса-Тенггара были гораздо стабильнее, чем между ними и Новой Гвинеей. Во время оледенений многие проливы исчезали, но самые глубокие сохранялись, хотя и становились не такими широкими. Точки прибытия с Тимора и Молукк на Сахул находились, конечно, не рядом, но являлись двумя сторонами единого огромного залива (ныне это море Банда), в центре побережья которого располагались горы, ставшие ныне островами Ару, на которых в пещере Лемдубу найден скелет плейстоценового возраста. Арафурского моря, широко разделяющего сейчас Новую Гвинею и Австралию, просто не было, на его месте лежала просторная “Арафурия”, наверняка быстро освоенная предками аборигенов. Понятно, что большинство людей жило на побережье, которое ныне покоится под водами и коралловыми рифами. До крайности интересный момент – несходство древнейших австралийских черепов с древнейшими африканскими и азиатскими. Тогда как в Африке и Азии первые сапиенсы хотя и массивны, но не запредельно, то в Австралии они бьют все рекорды – при меньших датировках. Получается, где-то на пути с Сунды на Сахул головы заметно увеличились, а особенно усилился их рельеф. Почему? Вопрос о специфике черепов австралийцев много раз поднимался в науке. В XIX и первой половине XX века, не особо мудря, писали об их неандерталоидности. В начале XX века возникло предположение о формировании австралоидного комплекса под мощным влиянием яванских архантропов-питекантропов и препалеоантропов-нгандонгцев. Несмотря на постоянные опровержения, и через 150 лет оно остается одним из самых модных поветрий современной антропологии в популярном изложении. Основной аргумент – сопоставление продольных обводов черепов из Нгандонга и Коу-Свомп или Манго. Совпадение в контурах действительно впечатляющее. Правда, как обычно бывает с наглядными картинками, при таких поверхностных сравнениях ускользает глубинная суть. Реальные размеры и пропорции, а особенно тонкости строения височной кости и другие детали у нгандонгцев и аборигенов совершенно разные. Конечно, это не смущает сторонников версии смешения – им довольно и одной картинки. Конечно, проведение прямой эволюционной линии от питекантропов к современным австралийским аборигенам выглядит как новейшее дополнение к полицентризму Ф. Вейденрейха и на современном уровне науки не может быть воспринято всерьез. Впрочем, не помешает уточнить, почему даже примесь нгандонгцев выглядит крайне маловероятной. Во-первых, стоит определиться с временными рамками. Странным образом многие даже серьезные антропологи весьма падки до сенсационных датировок. С одной стороны, часто приходится слышать о том, что люди из Нгандонга жили всего 30 тыс. лет назад, с другой – о том, что Австралия якобы заселена 60, 80 или более 100 тыс. лет назад. На самом деле датировка Нгандонга достоверно неизвестна и колеблется от 40 до более чем 220 тыс. лет назад (Yokoyama et al., 2008), а Австралия была заселена не ранее 45–48 тыс. лет назад. Таким образом, с наибольшей вероятностью предки аборигенов появились в Индонезии уже после вымирания нгандонгцев. Более важны антропологические доводы. Массивный свод, покатый лоб и выступающее надбровье австралийских черепов вполне сочетаются с широкой лобной долей, узким основанием черепа и большой высотой свода в противоположность питекантропам и нгандонгцам, у которых были узкие лобные доли, широкое основание черепа и очень низкий свод. Особенно же показательны детали строения нижнечелюстной ямки височной кости, полностью исключающие участие яванских препалеоантропов в формировании австралоидов. Височная кость людей из Нгандонга, Самбунгмачана и Нгави уникальна по множеству черт, а австралийские аборигены по ним совершенно “стандартны”. Надбровный валик нгандонгцев прямой при взгляде спереди и утолщен с боков, а у аборигенов он изогнутый и утолщен ближе к переносью, тогда как в боковых частях заметно уменьшается. Затылочный валик аборигенов обычно гораздо слабее нгандонгского и не имеет столь мощной подпорки в виде толстого наружного сагиттального затылочного гребня. Кроме прочего, покатость лба древних австралийских черепов вызвана искусственной деформацией, а не является генетическим признаком. Другой вариант объяснения своеобразия австралийцев – выведение их из питекантропов Явы. Якобы имеется специфическое сходство лицевого скелета Сангиран 17 и Коу-Свомп 5. В реальности же сходство между ними крайне отдаленное и ограничивается лишь массивностью. Кроме того, между питекантропами и аборигенами лежат две огромные пропасти – хронологическая и географическая. Наконец, очень весомым аргументом, странным образом нигде не звучащим, против смешения нгандонгцев и сапиенсов является полное отсутствие предполагаемых метисов за пределами Австралии, притом что плейстоценовые и голоценовые находки в Индонезии имеются. Странно было бы, если именно “опримитивленные” предки аборигенов сразу двинулись с Явы в Австралию, тем более по уже заселенным “грацильной волной кейлорского типа” землям, при этом проигнорировав соседние территории. Если уж предполагать, что массивность черепа австралийцев обусловлена метисацией, то стоит сравнивать их с китайскими препалеоантропами, которые с наибольшей вероятностью родственны денисовцам. “Денисовские гены”, несмотря на свою экзотичность, обнаружились у современных папуасов Новой Гвинеи, меланезийцев острова Бугенвиль и австралийских аборигенов, а при ближайшем рассмотрении – в тридцати трех популяциях Океании и Юго-Восточной Азии (Reich et al., 2011). Аборигены имеют максимальную примесь “денисовских генов” среди всех изученных групп, даже бóльшую, чем у новогвинейских папуасов. Столь немалый генетический вклад не мог не отразиться на морфологии. Если к тому же учесть, что у аборигенов имеется еще 2,5 % неандертальских генов, как и у всех прочих жителей планеты, то неудивительно, что смешение древних массивных сапиенсов с еще более массивными неандертальцами и наверняка столь же мощными “денисовцами” дало самый робустный вариант современных людей. Единственная проблема в том, что мы не знаем, как выглядели денисовцы. Фрагментарные материалы с Алтая не дают нам об этом ни малейшего представления. Конечно, два исследованных зуба имеют рекордные размеры, и косвенно это говорит об огромных челюстях и значительном рельефе черепа, но не всегда такие предположения оправдываются. Продуктивнее искать возможных родственников на расстоянии. “Образцовые” представители, подходящие по времени, региону и ожидаемой внешности, – Дали, Цзиньнюшань и Мапа из Китая. Сюда же можно условно добавить Салхита из Монголии; он представляет северо-восточный край ареала, одновременно не слишком удален от Цзиньнюшаня и находится на возможном северном пути расселения денисовцев, соединяя Алтай с Китаем. Учитывая наличие классических неандертальцев в Ираке, Узбекистане и на том же Алтае, а также предполагаемую древность расхождения их с “денисовцами”, можно предположить, что “денисовцы” сформировались восточнее Гималаев, а на Алтай попали с востока, через Северный Китай и Монголию. Впрочем, не исключены и иные сценарии. При желании общие характерные очертания надбровья и прочих особенностей лицевого скелета можно усмотреть на черепах Зуттие из Израиля с датировкой 200–250 тыс. лет назад и Нармада из Индии, имеющем возраст примерно 50 тыс. лет. Зуттие же, в свою очередь, обнаруживает черты уникального сходства с синантропами Чжоукоудяня. В этом случае можно предположить разделение неандертальцев с “денисовцами” еще в Леванте: предки первых ушли на север, в холодную Европу, а вторых – по берегу Индийского океана в солнечную Азию, хотя часть по пути забрела в Сибирь. Неандертальцы же вполне могли оказаться в Сибири гораздо позже. Впрочем, подобные рассуждения по мере привлечения все более древних находок становятся все более гипотетичными и далекими от темы происхождения австралийцев. Важнее тот факт, что группа Нгандонг – Нгави – Самбунгмачан отличается по морфометрии черепа от группы Дали – Цзиньнюшань – Мапа, что лишний раз, хотя и совсем уж косвенно, говорит об отсутствии родства нгандонгцев и австралийцев. Показательно, что морфология височной кости (наличие постгленоидного отростка и прочие черты), а также форма надбровья почти идентичны у китайских денисовцев и австралийских аборигенов. Немаловажно, что очень похожее строение надбровных дуг можно видеть на черепах меланезийцев и яванцев – момент, которого остро не хватает в “нгандонгской гипотезе”. Общим местом австралийской палеоантропологии стало обсуждение вопроса о достоверности разделения древнейших находок на две группы: “грацильную” и “массивную”. Группы различались по признаку массивности: представители первой якобы имели умеренные надбровье и стенки свода, а также более выпуклый вертикальный лоб и меньшее выступание челюстей, тогда как представители второй – мощное надбровье, толстые стенки свода, покатый лоб и усиленный прогнатизм. Первоначально предполагалось, что эти две группы представляют две “волны заселения” континента: “грацильная” считалась более древней, а “массивная” – более молодой. Впрочем, состав групп меняется от публикации к публикации. В исходном варианте концепции в “грацильную” включались Манго 1, Манго 3 и Кейлор, а в “массивную” – Талгай, Коу-Свомп и Кохуна. В последующем в “грацильную” зачислялись также Грин-Галли, Кинг-Айленд, Лейк-Танду и Рунка, а в “массивную” – Коссак, Моссгил и Кубул-Крик. Предки “грацильной” группы виделись в людях из Верхней пещеры Чжоукоудяня и Дуньдяньяня, а аналоги – в людях из Ниа, Табона и Вадьяка. В числе предков “массивного” варианта числились питекантропы и нгандонгцы, о чем уже говорилось выше. Правда, в этом наборе дико смешаны самые разные времена и даже виды, но чего не сравнишь ради широкой эволюционной перспективы! Однако в последующем выяснилось, что, во-первых, внутри выборок из Коу-Свомп и Манго имеется значительное разнообразие по уровню массивности, во-вторых, изменчивость эта не дискретна, а непрерывна, в-третьих, многие находки – такие как Кубул-Крик, Моссгил и Лейк-Нитчи – оказываются промежуточными между “грацильной” и “массивной” группами, а в-четвертых, представители “массивной” частенько имеют искусственную деформацию черепа. Кроме того, определение пола целого ряда находок – Манго 3, Кинг-Айленд – спорно: если признать их мужчинами, то они оказываются “грацильными”, если женщинами – “массивными”. Выделенная из ископаемых костей мтДНК оказалась по сути одинаковой у “грацильных” и “массивных” находок (Adcock et al., 2001). Как итог, достоверность выделения двух групп по массивности оказывается никудышной. Напоследок старые датировки были пересмотрены, а в оба типа щедро добавлены заведомо голоценовые находки, так что популяционно-миграционный смысл их выделения вообще пропал. Впрочем, это не исключает существования разных вариантов среди древних и современных аборигенов, просто принцип выделения должен быть иной, не зацикленный на одном признаке массивности. Массивность черепа древних и современных австралийцев многих приводила к ложному заключению, что их признаки застыли во времени, практически не поменялись с верхнего палеолита и сохраняют архаичное состояние. Однако метрические сопоставления ископаемых и современных аборигенов показывают, что изменения были, и довольно существенные. Заметно уменьшились размеры черепа в целом, а также лица, челюстей и зубов в частности, ослаб прогнатизм, лоб стал более выпуклым и вертикальным, а надбровье чуть сгладилось. Особенно показательна высота черепа, не зависящая от рельефа: она изменилась от больших до малых значений. Объем мозга тоже понизился – от средних значений до малых. Такого рода изменения можно оценивать двояко: с одной стороны, некоторые признаки менялись в “примитивную” сторону, другие – в “прогрессивную”, с другой – на всех континентах процесс был такой же, например, европейские кроманьонцы имели более крупный и вместительный череп, чем современные европейцы. Уменьшение размеров черепа и жевательного аппарата австралийских аборигенов с плейстоцена до современности представляется довольно загадочным. В Азии и Европе аналогичные процессы всегда связываются с неолитической революцией, увеличением доли растительной пищи в рационе, растиранием зерна на зернотерках, варкой в керамической посуде. Никакого производящего хозяйства в Австралии не было вплоть до прихода европейцев. Нагрузка на жевательный аппарат у австралийцев всегда была очень мощной, что наглядно отражается в основательной стертости зубов; дополнительно она усиливалась использованием зубов в качестве инструмента при изготовлении многих орудий. Можно предположить, что аридизация климата приводила к увеличению трудностей с добыванием пищи, особенно после вымирания мегафауны. Следствием могло стать уменьшение размеров тела в целом и черепа в частности. Основная грацилизация происходила в интервале от 11 до 6 тыс. лет назад, что совпадает с потеплением и осушением климата, увеличением использования семян в пищу, а также резким ростом населения. Однако конкретный механизм изменений неясен; не исключено, что секрет в смене ландшафтов и фаун, а через это – изменении доступности пищи. В любом случае крайне примечательно, что в Австралии тенденции морфологических трансформаций совпадают с общемировыми, притом что никакого производящего хозяйства тут не возникло. Отсюда вопрос: а связана ли грацилизация в Европе, Африке и Азии с “неолитической революцией”? Если смотреть на процесс в целом, вырисовывается странная картина: сначала – при переправе на Сахул – череп предков аборигенов стал едва ли не самым крупным и массивным среди всех верхнепалеолитических сапиенсов, а затем – уже в первой половине голоцена – наоборот, уменьшился, став одним из самых небольших на планете, сохранив, впрочем, рекордную массивность. Таким образом, небольшие размеры мозга современных аборигенов никак не могут считаться примитивными, а являются дважды специализированными. Самое удивительное, что все эти скачки морфологии происходили в сравнительно постоянных условиях. Конечно, в Австралии климат тоже менялся, но все же существенно меньше, чем, скажем, в Евразии. Решение этой загадки – дело будущего. Мороз иль солнце? Что ужасней? или Кто убил австралийских гигантов? Современная фауна Австралии и Новой Гвинеи весьма бедна крупными видами. Казуары и эму, кенгуру и вомбаты, крокодилы и вараны – бедновато против гигантов Африки и Евразии. Палеонтологам давно известно, что в прошлом Сахул – объединенную территорию Австралии с Новой Гвинеей – населяли куда как более внушительные звери. Дипротодоны и гигантские кенгуру, огромные сумчатые “львы” и многометровые вараны, эму в полтора раза выше современных и вомбаты размером с медведя – даже двоякодышащие рыбы имели титаническую комплекцию! Список подобных монстров впечатляет. Но все они исчезли, развеялись в мареве австралийских пустынь и туманах новогвинейских джунглей. Почему? Причины назывались разные. Как во всех аналогичных случаях, есть две главные конкурирующие версии: климатические изменения и люди-охотники. С одной стороны, ледниковый период и его окончание (а оно для многих фаун было катастрофичнее самого пика оледенения) никто не отменял. С другой стороны, речь все же об экваториальных и тропических областях, где влияние климатических неурядиц должно было быть минимальным. С одной стороны, вымирание мегафаун всех континентов подозрительно совпадает с появлением человека. С другой – даже современные охотники с винтовками и вездеходами никак не могут уничтожить многие редкие виды животных, а завалов костей съеденных сумчатых гигантов никто еще не находил. Неужели аборигены съедали дипротодонов с костями? Как найти истину? В 2013 г. группа австралийских исследователей (один автор-американец делает группу международной – иначе сейчас никак) попыталась ответить на вечный вопрос о причинах гибели сахульских гигантов (Wroe et al., 2013). К делу они подошли более чем масштабно. Они не стали, как во многих предшествующих случаях, мелочиться и перемывать косточки из какого-либо конкретного местонахождения с сомнительными датировками и невнятной археологией. Они изучили 88 видов древних животных – самых отборных, самых крупных! Упор был сделан на 54 вида, живших в последние 400 тыс. лет в самых разных местах Австралии и Новой Гвинеи. Проанализировали вероятные датировки этих зверюшек и выяснили картину их распределения во времени. Картина получилась более чем наглядная. Для пущей красоты скотинки были распределены в несколько хронологических групп по времени вымирания: более 400 тыс. лет назад (34 вида), 400–125 (16 видов), 125–51 (24 вида), 51–39 (3 вида) и менее 39 (11 видов). Подавляющая часть крупнейших тварей вымерла в четыре этапа до появления людей: еще до 400, 122±22, 107±18 и 83±10 тыс. лет назад. Причем речь идет именно о самых впечатляющих созданиях. Судя по всему, первые аборигены, появившиеся на Сахуле позже 50 тыс. лет назад (вероятнее всего, 48–45 тыс. лет назад), были лишены счастья лицезреть их живыми (впрочем, с гигантскими варанами, например, они прожили еще долгих два десятка тысячелетий, чему вараны, думается, были чрезвычайно рады). Однако человеческое нашествие тоже не прошло для фауны незаметным: около 48 и 46±6 тыс. лет назад исчезли как минимум восемь видов, в числе коих гигантский вомбат и сумчатый “лев”. Продолжалось вымирание и после. Самые поздние гиганты, вероятно, дотянули до 14–16 тысяч лет назад, но таковых крайне мало, а их датировки не очень достоверны, настоящие же цифры, возможно, заметно больше. Крайне любопытно, что совсем нет видов, чье вымирание приходилось бы на начало голоцена. А ведь тогда кончился последний ледниковый период и началось нынешнее межледниковье. Впрочем, к этому времени вся мегафауна уже сгинула, посему и некого регистрировать. Все пики вымирания, что характерно, приходятся на пики потеплений. Очевидно, для Сахула именно самые жаркие периоды были самыми экстремальными. Что для неандертальца курорт, то дипротодону смерть! В эпохи потеплений Сахул, видимо, покрывался пустынями, площади лесов и саванн сокращались, несчастным животинкам становилось нечего есть и палеонтологическая летопись пополнялась ценными экспонатами. Жаль, что по приведенным в статье данным невозможно судить: возникали ли новые виды мегафауны в благоприятные ледниковые периоды? Люди появились на Сахуле не в самый теплый момент его истории, но близко к одному из локальных максимумов температуры. Можно догадаться, что подкошенная бескормицей фауна была и так не слишком многочисленна, а аборигенам кушать хотелось. А сумчатые были не слишком интеллектуальны, чтобы спасаться от копий… Так кто виноват? Как обычно бывает, исследователи делают осторожный вывод: очевидно, что основная часть мегафауны вымерла еще до появления человека по климатическим причинам, а участие людей в исчезновении оставшейся малой толики требует новых исследований (новые гранты тоже надо обосновать). Мы же рискнем маленько дофантазировать: эффективный плацентарный хищник – человек, вооруженный интеллектом, копьем и огнем, появившийся в не самый светлый момент существования мегафауны, никак не мог не повлиять на эту мегафауну. То есть обязан был повлиять. Если уж в XX веке кролики с лисами повлияли, то как аборигены тысячи лет назад могли остаться не у дел? Аппетит аборигенов доконал то, что оставалось после нескольких предыдущих вымираний. Печально, но факт. Что ж, ждем очередного ледникового периода? Авось саванны Зеленого континента пополнятся новыми гигантами… Вдруг охотник выбегает… Вина людей в вымирании мегафауны установлена. Он рычит, и кричит, и усами шевелит: “Погодите, не спешите, я вас мигом проглочу! Проглочу, проглочу, не помилую!” О судьбе мегафауны ученые размышляют уже лет этак больше двухсот, со времен М. В. Ломоносова и Ж. Кювье, с тех пор как обнаружили, что в допотопные времена Землю населяли разные необычные животные. Мамонты и шерстистые носороги, пещерные медведи и дипротодоны, мегалониксы и глиптодоны, а также прочие сказочные чудовища некогда стадами бродили по планете, а теперь от них остались лишь рожки да ножки. Подозрительным образом исчезновение большинства из них совпадает с двумя вещами: завершением последнего ледникового периода и распространением по планете человека современного типа. Не задаваясь пока вопросом “что делать?”, достойно заняться мыслью “кто виноват?”. Глобальное потепление, коим столь модно нынче пугать человечество, не однажды уже меняло облик континентов. Известно, что каждый раз оно сопровождалось сменой ландшафтов: на смену перигляциальным степям приходили тундры и тайга, саванны высыхали до состояния пустынь. Кажется логичным, что такие катаклизмы не могли не сказаться на смене не только флоры, но и фауны. Есть и жизненные современные примеры, правда обычно касающиеся мелких узкоареальных животных. Впрочем, нам известны и образцы удивительной экологической пластичности некоторых животных. Например, сайгаки и северные олени – типичные представители мамонтовой фауны, населявшие одни и те же холодные приледниковые просторы, – приспособились одни к сухим южным степям, другие – к влажной тундре. С другой стороны, таланты людей в плане хорошо поесть тоже прекрасно ведомы. Если есть выбор – тушеный мамонтовый хобот или копченый лемминг, – выбор очевиден. В некоторых случаях роль человека в вымирании более чем очевидна, стоит вспомнить моа, стеллеровых коров или гигантских черепах. Но иногда она не столь однозначна. Возражения против человеческого фактора вымирания мегафауны обычно сводятся к нескольким пунктам. Во-первых, почему мегафауну не съели раньше конца оледенения? Во-вторых, как вообще первобытные охотники, не имевшие даже лука, могли истребить столько зверья, тогда как даже браконьеры с автоматами до сих пор не выбили всех нынешних носорогов и слонов? В-третьих, часто указывается на недостаток находок массовых скоплений костей плейстоценовых гигантов, особенно ощутимый в Австралии и Южной Америке. Все эти и многие иные соображения изложены в десятках книг и сотнях, если не тысячах статей. Споры не прекращаются. Но хочется же поставить окончательную точку! Установлением большой жирной точки и занялись четыре датских исследователя (Sandom et al., 2014). Для этого они собрали грандиозную базу данных по 204 видам млекопитающих из 229 стран и территорий. Учтены были все звери тяжелее 10 кг, вымершие в интервале от 132 до 1 тыс. лет назад. Что может быть масштабнее?! Далее данные о времени вымирания видов сопоставлялись с материалами о климатических изменениях и заселении той или иной территории сапиенсами или их предшественниками. Итог оказался для сапиенса неутешителен: виновен! Выявилось несколько замечательных закономерностей. Самыми пострадавшими от пожирателей мегафауны оказались Австралия, Южная и Северная Америки. Неплохо прошлись голодные троглодиты и по Европе. Средние значения типичны для северной Евразии; в южной ее половине все было гораздо спокойнее. Минимально же пострадала благословенная колыбель человечества – Африка. Связей вымираний с климатическими пертурбациями почти не выявилось. Только в Евразии исчезновение мегафауны оказалось частично приурочено к изменениям климата. В Южной же Америке, наиболее пострадавшей от ненасытных палеоиндейцев (своеобразным символом чего может служить находка в аргентинском Понтимело – погребение человека в панцире Glyptodon), климат оставался сравнительно стабильным; да и исчезнувшие тут звери, как выясняется, были экологическими пофигистами. Это составляет вопиющий контраст с Африкой, где катастрофические погодные и ландшафтные изменения сочетаются с удивительной фаунистической стабильностью. В Австралии основное вымирание произошло задолго до окончания ледникового периода, во время стабильного климата, зато в целом совпадает со временем появления тут людей. Аналогично происходили события и в Северной Америке: хотя вымирание пришлось тут на самый конец ледникового периода, но в южной части континента погоды стояли в целом одни и те же, растительность оставалась прежней, любимые местными мастодонами кипарисы исправно продолжали фотосинтезировать, однако ж самые вкусные звери (в Калифорнии – 53 % от исходного наличия!) испарились, как позже индейцы с началом золотой лихорадки. А ведь именно в это время тут расселялись предки этих самых индейцев. Итак, виноваты люди. Но хуже того: самыми пострадавшими регионами оказались те, где сапиенсы были первыми и единственными поселенцами. В Африке люди возникли, а фауна пострадала минимально. Концепция коэволюции людей и мегафауны, согласно которой за миллионы лет параллельного возникновения они “притерлись” друг другу, видимо, подтверждается. Человек тут – один из видов хищников, к которому травоядные привыкли как к неизбежному, но некритичному злу. Похожая ситуация сложилась в южной половине Евразии, где гоминиды расселились от 2 до 1 млн лет назад. В северной Евразии до людей за мамонтами и прочими зверями миллион лет гонялись сначала гейдельбергенсисы, потом неандертальцы, а сапиенсы явились ближе к концу праздника. Так что по крайней мере часть зверей смогла адаптироваться к двуногим чудовищам. А вот на краях Земли слонопотамам не повезло. Мирно щипали они травку, когда на них свалилась катастрофа в лице вооруженных копьями охотников. И не было у них защиты и утешения. Смилодоны и короткомордые медведи, мегалании и тилаколеусы не смогли подготовить копытных к тотальному геноциду, да и сами пали жертвами непревзойденных конкурентов. Разобравшись же с вопросом “кто виноват?”, можно перейти и к “что делать?”. Для начала – не добивать тех немногих, кто остался. А после можно подумать и о возрождении былого благолепия, благо генная инженерия шагает семимильными шагами. Пока же она до клонирования мамонтов еще не дошагала, надо попытаться оправдать самоназвание sapiens. Люди, не ведите себя как троглодиты, не ешьте мегафауну! Пожиратели ленивцев из Уругвая – первые жители Нового Света? Заселение Америки – увлекательная тема, ученые спорят о нем с момента открытия самой Америки. Берингийская теория, согласно которой предки индейцев попали на Аляску с Чукотки по суше во время понижения уровня океана, конечно, самая обоснованная и вряд ли когда-то принципиально поменяется, но сроки этого события продолжают обсуждаться. И вот очередная новость из этой серии (Fariña et al., 2014). В местечке Аройо-дель-Визкайно, расположенном в Уругвае, местные фермеры решили осушить некую канаву. Предприятие удалось на славу: на дне канавы обнаружились залежи костей гигантских ленивцев Lestodon armatus и, в меньшем масштабе, Mylodon darwinii и Glossotherium robustum, гигантских же броненосцев Glyptodon clavipes, Doedicurus clavicaudatus и Panochthus tuberculatus, а также гигантских же копытных-нотоунгулят Toxodon platensis, слонов Stegomastodon, лошадей Hippidion principale, пара костей от оленя и (как же без них!) саблезубого тигра Smilodon populator. Фауна красивая, впечатляющая, совершенно экзотическая и радующая глаз каждого любителя палеонтологии. Калиброванные датировки костей показали, что весь этот зверинец пасся тут 31–32 тыс. лет назад (одно ребро дало датировку 29,7 тыс. лет назад, но один в поле не воин). Все бы ничего, но уругвайские исследователи приводят целый ряд доказательств, что к костям приложили свои смуглые руки древние люди. В качестве одного из доказательств человеческого присутствия авторы открытия приводят возрастное распределение животных. Среди находок абсолютно преобладают кости взрослых зверей. Только 2,6 % останков происходит от молодых животных, и то большей частью уже не совсем детенышей. Особенно радует, что 92 % костей принадлежало тварям, весящим не меньше тонны, а из оставшихся 8 % основная часть – детенышам и молодым взрослым особям тех же животных, но лишь самый минимум – мелким видам. С другой стороны, есть кости двух откровенно старых зверей. Авторы считают, что такое распределение совершенно нехарактерно для случаев естественного захоронения, например при катастрофическом наводнении. Напротив, оно типично для стоянок древних и современных охотников, склонных тащить на стоянки самые большие и вкусные части. Преобладание длинных костей (в основном задних ног – окорока всегда в цене!) при сокращенном проценте прочих тоже совпадает с известными примерами стоянок древних и современных охотников, например бушменов. Присутствие все же всех элементов скелета – от самых тяжелых костей до маленьких фаланг, а также их беспорядочная ориентация вроде бы свидетельствуют о минимальном перемещении водой, хотя есть очевидные признаки (например, гальки в позвоночных отверстиях), что пятая часть косточек таки была перемыта; в конце концов, нашли их в затопленной канаве. Но это не может быть и естественная ловушка типа асфальтовых ям Ла-Бреа, в которых вязли незадачливые калифорнийские мастодоны и жадные саблезубые тигры, ибо в таких ловушках скелеты сохраняются целиком, а в уругвайском случае отдельные кости сохранились отлично, но связи между ними никакой нет, а часть костей вовсе отсутствует. Но самое интересное – следы на костях. Ни один их них не указывает на зубы хищников или падальщиков. На 25 % есть беспорядочные повреждения естественного происхождения из-за случайного трения о камни или растаптывания. Зато на 5 % можно видеть узкие глубокие надрезки, сделанные вроде бы острым лезвием. И процент поврежденных костей, и особенности самих надрезок, и их расположение на конкретных местах хорошо соответствуют тому, что бывает, когда группа охотников некоторое время пирует на одном месте. В подтверждение искусственного характера надрезок авторы приводят подробнейшую аргументацию, расчеты ширины и глубины надрезок, а также угла приложения орудий (которые, как выясняется, действовали не перпендикулярно кости, а под заметным наклоном). Надрезки расположены преимущественно на концах ребер, суставной поверхности локтевой кости, подъязычной кости, внутренней стороне нижней челюсти, а также на весьма вогнутой поверхности нижнего конца большой берцовой кости, где естественное повреждение маловероятно, а вот связка длинного сгибателя большого пальца очень прочна и отрезать ее, не задев кость, трудно. А ведь и древние люди могли ценить холодец из голяшки гигантского ленивца. На одной верхней челюсти и одной пяточной кости ленивца имеются странные дырки, которые вряд ли были сделаны зубами хищника, но с некоторой вероятностью являются следами ударов острыми орудиями (гигантский ленивец-Ахиллес – как раз в духе грибных сказок южноамериканских индейцев). Наконец, среди находок в уругвайской канаве имеются и каменные артефакты. Правильнее, конечно, было бы говорить о кандидатах в артефакты, поскольку очевидных признаков искусственного их происхождения не имеется. Впрочем, местным археологам виднее: они утверждают, что именно такие отщепы и скребки являются самыми обычными на древних южноамериканских стоянках. Правда, камней найдено немного, и среди них лишь один может претендовать на звание орудия – скребка, ретушированного хотя бы и односторонне. Анализ рабочего края с помощью электронного микроскопа позволил утверждать, что там имеются следы микрошлифовки, каковая возникает на орудиях при работе с сухой кожей. Каковы же выводы? Неужели люди действительно жили в Уругвае уже больше 30 тыс. лет назад? Ели ленивцев и броненосцев и даже иногда гоняли смилодонов? Доказательства – тафономия, несколько надрезок и обломков камней, из коих лишь один претендует быть орудием. Не маловато ли? Ведь не так мало примеров, когда надрезки появляются на костях в процессе самих раскопок (канаву могли копать лет сто назад и предки нынешних фермеров, могли и сбросить туда мешавшие на полях и огородах огромные кости), камни-“тракториты” в изобилии можно найти в любой куче щебня, а единственное орудие могло затесаться сюда и из гораздо более поздних времен, ибо стратиграфии у местонахождения фактически нет. Не обнаружено и никаких следов огня: палеоиндейцы жарили шашлыки на стороне или были сторонниками сыроедения? Нет никаких следов жилищ и вообще свидетельств организации стоянки: они исповедовали анархизм в крайней форме? Впрочем, следы перемыва местонахождения имеются, последующие пертурбации могли и уничтожить значительную часть следов пребывания людей. Неслучайно статья заканчивается замечательной классической фразой: “А посему будущие более детальные исследования местонахождения должны помочь в решении этих вопросов”. Пейдж-Ладсон: мастодоны, грибы и охотники. Вопрос о первых людях в Америке по-прежнему будоражит археологов всего мира. Каких только идей и доводов в их защиту не приводилось, какие только факты не привлекались! Первых обитателей Нового Света заведомо было очень мало, они бродили маленькими группками по двум гигантским материкам, не создавали ничего монументального, а потому обнаружить следы их присутствия крайне сложно. Кстати, с Сибирью ситуация точно такая же: на необъятной территории считаное число достоверных палеолитических стоянок, подчас с сомнительными датировками и почти всегда без антропологии. Но Сибирь не отделена от прочей Евразии ничем, кроме морозов (а кого можно было удивить морозами в ледниковый период?), тогда как до Америки добраться не так просто. Вот и спорят уже больше ста лет ученые – когда же люди преодолели границы Нового Света? Еще одной вехой в дискуссии явилось исследование местонахождения Пейдж-Ладсон (Halligan et al., 2016). Оно расположено во Флориде, около города Таллахасси и – самое удивительное – на дне реки Ауцилла. Раскопки проводили аквалангисты, в мутной и темной воде на глубине девяти метров! Первый раунд изысканий длился с 1983 по 1997 г., второй – с 2011 по 2013-й. В четырехметровой толще были обнаружены фрагменты костей вымерших животных и 14 каменных артефактов. Среди звериных костей преобладают мослы мастодонов, заметно реже встречаются останки верблюдов, единичны – виргинских оленей. Кроме прочего, из земли был извлечен бивень с надрезками у основания. Изощренная проверка с использованием всех доступных методов показала, что надрезки с наибольшей вероятностью имеют искусственное происхождение. Найдены еще две кости с некими подозрительными царапинами, но они пока не были рассмотрены столь же дотошно. Несколько зубов и челюстей из третьего слоя первыми исследователями были предположительно отнесены к домашней собаке, хотя позднее в такой идентификации усомнились. Из артефактов два – сломанный бифас и отщеп – были изъяты из ненарушенного слоя 3c, еще четыре отщепа – из вышележащих слоев 4a и 4b. Большие серии радиоуглеродных датировок позволяют уверенно говорить, что их возраст не менее 14,55 тыс. лет назад, а может, и более древний – до 14,7 тыс. лет назад. А это больше, чем у пресловутой культуры кловис, и почти столько же, как на не менее пресловутой стоянке Монте-Верде! Косвенно о появлении людей свидетельствует и древесный уголь, вовсе отсутствующий в третьем слое, но изобильный во всех последующих. Самый же смак нового исследования заключается в изучении грибных спор. Есть в природе такой гриб Sporormiella. Он растет на лепешках, оставленных травоядными, и щедро рассыпает вокруг себя свои споры. Подсчет их числа позволяет прикинуть, насколько загаженными были древние пастбища, а стало быть – сколько тут паслось копытных. Так вот, максимум спор и, соответственно, копытных в отложениях Пейдж-Ладсон приходится на время 13,7 тыс. лет назад, потом их число постоянно падает – вплоть до нуля ко времени 12,6 тыс. лет назад. Видимо, в это время мастодоны и верблюды полностью вымерли. Сопоставляя все полученные даты, можно видеть, что золотой век охотников на мастодонов длился 2000 лет. Но, как, бывало, говаривали обитатели Пейдж-Ладсон, сколько хоботу ни виться, у любой кастрюли с мастодонятинкой есть дно. Некоторое время грибы тут не росли, а в интервале 10,1–10,4 тыс. лет назад снова появляются, хоть и не в таком изобилии, как прежде. Предположительно, в это время во Флориду с востока прибыли бизоны. Однако недолго музыка играла, бизон недолго пасся тут… На протяжении всего голоцена гриб в окрестностях Таллахасси можно считать вымершим. Правда, авторы исследования скромно не стали комментировать редкость спор в еще более глубоких слоях. Впрочем, людей там в любом случае не было, так что какая разница, почему мастодоны и верблюды были редки? Концы в воду, или Начала из воды: древнейший человек в Америке. Среди прочих тайн человеческой истории заселение Америки остается одной из самых малоосвещенных. Проблема, как водится, в малом количестве материалов и их недостаточной изученности. Первые американцы жили маленькими племенами, бродили по огромным просторам, жили скромно, умерших видимо, часто хоронили так, что от них ничего не оставалось. Немного досталось ученым источников информации о тех временах и событиях. Тем приятнее найти целый скелет. А именно такое открытие было совершено в Мексике, на северо-востоке Юкатана, в штате Кинтана-Роо, в Хойо-Негро (Chatters et al., 2014). Тут, в гигантской затопленной пещере, аквалангисты обнаружили просто-таки залежи костей доисторических животных – тапиров, гигантских ленивцев, саблезубых тигров. Останки датированы временем от 12 до 13 тыс. лет. Для нас же интереснее, что среди прочих богатств пещеры обнаружился совершенно целый череп и кости скелета девушки 15–16 лет. Конечно, американские, мексиканские и немецкие авторы почти полностью проигнорировали возможность классического краниометрического исследования уникальной находки (опубликованы только несколько краниологических индексов, и то в приложении, а не в самой статье, а в тексте дано лишь беглое описание). Авторы делают вывод, что особенности черепа в целом соответствуют чертам других палеоамериканцев. На самом деле, это не вполне очевидный факт, поскольку большинство остальных американских находок описаны столь же поверхностно, что и Хойо-Негро. Широкий нос, альвеолярный прогнатизм, малая высота лица и отсутствие его уплощенности заметно отличают девушку из мексиканской пещеры от подавляющего большинства древних и современных индейцев. Зато из мексиканских костей была выделена митохондриальная ДНК. А до этого подобная процедура была проведена для трех других находок из Америки с датировками больше 12 тыс. лет назад: Он-Е-Низ с Аляски, Уизардс-Бич из Невады и Анзик из Монтаны. Еще четыре столь же древних находки (Тлапакойя I и Пеньон III из Мексики, Буль из Айдахо и Арлингтон-Спрингс из Калифорнии) не анализировались на сей счет. Новообретенный череп из Хойо-Негро оказался носителем гаплогруппы D1, которая является производной гаплогруппы D4, широко распространенной в восточной части Евразии и произошедшей, в свою очередь, от гаплогруппы M. D1 имеется примерно у 10,5 % современных южноамериканских индейцев (и, похоже, она есть только у них), а у коренных жителей Чили и Аргентины ее частота достигает даже 29 %. У прочих палеоиндейцев, помянутых выше, гаплогруппы иные. Авторы статьи делают из всего вышесказанного следующие выводы. Палеоиндейцы являются потомками берингийцев и предками современных индейцев. Девушка из Хойо-Негро входила в популяцию, вероятно предковую для южноамериканских индейцев. Морфологические особенности современных индейцев, несмотря на отличия от древнейших американцев, не говорят об их независимом происхождении; по всей видимости, признаки черепа изменились уже после на американском континенте. Все это здорово, но! Во-первых, еще раз стоит расстроиться по поводу отсутствия нормального краниологического анализа. Совершенно недостаточно сказать, что “морфологические признаки поменялись со временем”. Череп не пластилиновый, он не меняется как попало. Почему бы не провести сравнение Хойо-Негро с разными древними и современными группами? Или хотя бы опубликовать его размеры, чтобы желающие (я желающий!) могли провести такое сравнение. Во-вторых, гаплогруппа D1 хотя и специфична для Южной Америки, но далеко не преобладает там. Вывод о происхождении большинства южноамериканцев от палеоиндейцев, подобных Хойо-Негро, далеко не очевиден. То есть популяция из Хойо-Негро или близкородственная ей была в числе предков южноамериканских индейцев, но гораздо более многочисленные предки были иными – носителями, например, гаплогрупп B2 и C1. Таким образом, морфологические отличия Хойо-Негро и нынешних индейцев могут быть вовсе не результатом хронологических изменений, а результатом метисации различающихся линий. В-третьих, вопрос о хронологической изменчивости морфологических признаков не такой уж темный, он разрабатывался аж с XIX века, а в работах В. В. Бунака приобрел форму исторической концепции рас. Почему бы не посмотреть на проблему в свете хорошо изученных материалов с других континентов? Жаль, что такая замечательная возможность упущена… Или, напротив, это подарок судьбы и повод сделать эту работу самому? Тема происхождения индейцев еще ждет своего Гумбольдта… “Открыть Америку”, или Необычайные приключения индейцев на Диком Востоке. Заселение Америки – великое событие. Ни одному ископаемому виду людей не удалось преодолеть океаны, отделяющие Новый Свет от Старого. А сапиенсы сделали это – и не однажды. Время первооткрытия Америки бурно обсуждается со времен Х. Колумба поныне. Весь XX век в археологии безраздельно господствовала концепция “первый кловис”, согласно которой носители именно этой культуры первыми ступили на берега Нового Света примерно 11,5 или, в лучшем случае, 12,5–13,5 тыс. лет назад. Однако то и дело раздавались робкие голоса сторонников идеи “прекловис”, считавших, что и до кловисцев люди уже ходили по просторам Нового Света. Весь XX век в пользу этого накапливались свидетельства, и последнее время “прекловис” вроде бы начинает побеждать: датировки южночилийской стоянки Монте-Верде в 12,5–14,22 тыс. лет назад никому так и не удалось опровергнуть (Dillehay et al., 2008). А совсем недавно появились даже цифры 14,5–18,5 для Монте-Верде (Dillehay et al., 2015) и 24–29 тыс. лет назад для бразильской стоянки Тока-ду-Серроте-дас-Моэндас, где, кстати, найдены и три человеческих скелета, правда ужасной сохранности и до сих пор не описанные (Kinoshita et al., 2014). Впрочем, конкретные датировки первозаселения, предлагаемые апологетами “прекловиса”, сильно расходятся. Тогда как цифры в 14 тыс. лет для культурного слоя Монте-Верде II достаточно серьезно обоснованы, то 35 тыс. лет для самого глубокого уровня, хотя и опубликованы в научной литературе, выглядят все же несколько сомнительно. А ведь можно встретить упоминания и гораздо больших датировок – 295 тыс. лет для пещеры Эсперанца в Бразилии, до 51,7 тыс. лет для стоянки Топпер на юге США, более 50 тыс. лет для Калико-Хиллс и Техас-Стрит в Калифорнии и еще целый ряд других. Каждое такое сообщение вызывает новую волну рассуждений, подтверждений и опровержений, передатировок и калибровок, чаще же заканчивается ссылками на недостаточность данных и необходимость перепроверки. Конечно, трудно бывает удержаться от безмерного удревнения американской истории. Первые такие попытки балансировали на грани ошибки и анекдота. В 1922 г., на заре американской палеонтологии, Г. Ф. Осборн по паре зубов описал гесперопитека Hesperopithecus haroldcookii – плиоценового человекоподобного примата из Небраски (Osborn, 1922). Все бы ничего, если бы в дело не влезли журналисты: они разрекламировали находку как останки древнейшего американского человека, добавили, что он был предком всех людей, а старательный художник сопроводил эти домыслы эффектной картинкой двуногих существ с дубинами. Если бы не эта злосчастная иллюстрация, никто бы и не обратил внимания на последующие изыскания, показавшие, что гесперопитек был на самом деле ископаемой свиньей-пекари. Теперь же история стала анекдотом, а название гесперопитека – нарицательным. Эту байку особенно любят вспоминать креационисты, чтобы показать, сколь ученые бестолковы и не могут отличить свинью от человека. Однако надо бы напомнить, что истину выяснили как раз биологи, а не журналисты и не креационисты. На самом деле, подобных ошибок делалось не так уж мало, с человеческими или вообще приматными путали кости медведей, нотоунгулят, летучих мышей, ежей, сумчатых и даже амфибий (никак нельзя не помянуть незабвенного Homo diluvii testis – скелет метровой саламандры, принятый в 1726 г. И. Я. Шейхцером за “человека – свидетеля потопа”). Главное, что антропологи и палеонтологи выясняют свои промахи и учатся на них. Гораздо хуже, когда в дело идут подделки. Всем известен “пильтдаунский человек”, но гораздо меньше людей слышало о “бразильском эректусе”. Черепную крышку необычайно архаичного облика нашел вроде бы П. В. Лунд вроде бы между 1833 и 1880 г. вроде бы в пещере Сумидуро B2 в бразильской местности Лагоа-Санта. В 1970 г. ее откопал уже А. Л. Брайан – на сей раз в запасниках музея Государственного университета Бела Горизонте (Beattie et Bryan, 1984). В 1975 г. она опять была утеряна, хотя тогда же была найдена якобы другая похожая, но по форме абсолютно одинаковая черепная крышка, в реальности, видимо, та же самая. Черепная крышка имеет замечательный облик: с очень толстыми стенками, мощным надбровным валиком, изогнутым в виде двух дуг и подчеркнутым надваликовой бороздой, но при этом выпуклой и довольно высокой чешуей лобной кости, полным отсутствием височных линий и очень крупным внутренним лобным гребнем. При удачном ракурсе кость, очевидно, похожа на черепа Homo erectus. Сенсация? Америка была открыта питекантропами?! Но нет – исследование химического состава фрагментов показало, что они происходят из разных мест, а “находка” является смонтированной фальшивкой (Anjos et al., 2005). Несмотря на внешнюю целостность, она соединена из семи разных частей неизвестного происхождения и древности. Кто и зачем выполнил монтаж, непонятно. Впрочем, вопрос о происхождении самих кусков остается открытым. Если крышка в целом и химера, эректоидное надбровье само по себе не перестает быть реальностью. Либо это действительно кость неандертальца или Homo erectus, привезенная в Бразилию каким-нибудь разбогатевшим на кофе и каучуке чудаком-миллионером, – и тогда она заслуживает отдельного изучения, либо это редкостный пример индивидуальной изменчивости современного человека – и тогда она тоже достойна внимания. Другие странные находки сделаны в мексиканском штате Пуэбла, на северном берегу водохранилища Вальсекильо. В карьере Толукилья на окаменевшем пепле сохранились 250 следов – собак, больших кошек, оленей, каких-то мозоленогих и, что самое интересное, людей. Вулканическая скала была датирована аж 1,3 млн лет назад (Renne et al., 2005) или, по скромным расчетам, более 40 и менее 70–100 тыс. лет назад. Так что – опять сенсация? Америка заселена во времена первых эректусов или неандертальцев?! Увы… “Следы” расположены беспорядочно, в большинстве случаев лишь по два или три в одну линию, максимум – семь штук подряд. Они умели летать? Или прыгали на несколько метров? Кроме того, все отпечатки различаются по форме, размерам и глубине. Видимо, это следы деятельности рабочих, снимавших верхний твердый слой пепла, или их же шутка (Renne et al., 2005). Неподалеку расположены пять местонахождений Уэйатлако. По фауне и торий-урановым методом местные слои были датированы 1 млн лет назад или 250 тыс. лет назад. Неужели опять?.. Опять увы… Наконечники и прочие орудия из Уэйатлако аналогичны тем, что в других мексиканских местонахождениях датируются 9–11 тыс. лет назад. Скорее всего, дело тут в перемешивании слоев. Широкую известность получил череп из Калавераса, найденный в США, в штате Калифорния, на глубине 40–46 м под слоем древней лавы в 1866 г. горняком Дж. Уотсоном. Его неоднократно поминали как свидетельство древности человека в 2–5 млн лет! Однако на черепе есть следы породы из расположенных неподалеку пещер, где индейцы еще совсем недавно хоронили своих умерших. Реальный возраст черепа – менее 1000 лет. Вероятнее всего, череп подложили шахтеры-шутники, чтобы напугать своих товарищей. Но мы увлеклись ошибками и розыгрышами. Вернемся же к реальности. Подавляющая и самая достоверная часть американских датировок не древнее 13,5–14,7 тыс. лет назад (Fiedel, 2000), 15–25 тыс. лет назад или около 15 тыс. лет назад (Adams et al., 2001). Надо думать, что именно тогда и совершилась колонизация. Примечательно, что почти все самые древние стоянки обнаружены не в Северной, а в Южной Америке. Про Тока-ду-Серроте-дас-Моэндас и Монте-Верде уже говорилось, нелишне вспомнить и бразильскую пещеру Тока-ду-Бокерао-да-Педра-Фурада, в которой, кроме достоверных дат 9,2 тыс. лет назад, есть спорные 31,7–32,16 тыс. лет назад для древнейших следов заселения. Посему ребром встает вопрос: а с какой стороны люди заселили Америку? На самом деле, путей сюда на удивление немало. Первая и самая очевидная дорога в Северную Америку лежит через Сибирь и Чукотку на Аляску. В периоды похолоданий уровень океана опускался и дно Берингова пролива превращалось в обширную Берингию. По ней туда и обратно двигались стада животных, а за ними – и люди. Строго говоря, наличие Берингова пролива тоже не очень-то мешало людям во все времена. Не такой уж он широкий. Местные жители без особых проблем плавали или ездили по льду с Чукотки на Аляску. Говорят, даже во времена “железного занавеса” и при наличии погранзастав вокруг эскимосских поселений на Чукотке валялись бутылки из-под кока-колы. Когда местных жителей спрашивали: “Откуда?” – они взмахивали на восток и незамысловато отвечали: “От родственников”. Что уж говорить о счастливых временах отсутствия границ. Сложность была не в том, чтобы преодолеть Берингию, а чтобы добраться до нее и выбраться из нее. Северо-восток Сибири и сейчас климатически не самое гостеприимное место, а в ледниковый период было только хуже. Чтобы достичь этих краев, надо было научиться выживать в вечном холоде и при крайней ограниченности ресурсов. Кроме культурной адаптации, надо было приобрести и биологическую. Эректусы не выходили за пределы субтропиков; гейдельбергенсисы дошли до зон с умеренным климатом, но в Арктику соваться не отваживались. Неандертальцы имели шанс преодолеть границу континентов, но нет никаких свидетельств, что они продвигались намного севернее Южной Сибири. Кроме того, в самой Северной Америке переселенцев тоже ждали препоны. Почти весь материк был занят двумя огромными ледниковыми щитами – западным Канадским (Кордильерским) и восточным Лаврентийским. Миновать их можно было двумя путями. Во-первых, между ледниками в некоторые периоды появлялся проход 1200 км длиной. С его территории известны кости разнообразных копытных животных и растений. По меньшей мере 12 тыс. лет назад по нему можно было пройти. Во-вторых, можно было оплыть Канадский щит по воде. Правда, большую часть времени он сползал прямо в море, но известно, что 12,3 тыс. лет назад на острове Принца Уэльского около Аляски жили медведи, стало быть, и люди вполне могли. Митохондриальные линии медведей с островов, находящихся у северо-западного побережья Северной Америки, выделяются в самостоятельный обособленный кластер (Leonard, 2000; Miller et al., 2006). Это говорит об их долгой изоляции на островах, восходящей к последнему ледниковому периоду. Значит, тут были земли, где можно было по крайней мере отдыхать в долгом морском пути на юг. Северо-западное побережье – одно из самых неуютных мест на Земле (конечно, не для местных жителей), и остается удивляться стойкости и упорству первопоселенцев. Впрочем, они двигались из Берингии, а там было еще хуже. Зато с каждым шагом – или гребком – на юг становилось все лучше, становилось все веселее. Миновав вечномерзлую половину материка, люди очутились в раю. Их окружали бескрайние равнины, на которых паслись бесчисленные непуганые стада бизонов, лошадей, верблюдов, американских мастодонов. Кое-где водились еще гигантские ленивцы и гигантские броненосцы. И при этом – нулевая конкуренция. Хищники непринципиально отличались от тех, кого палеоиндейцы уже встречали ранее, а людей вовсе не было. Охотники попали в охотничью сказку! Никто не мешал им плодиться и размножаться, расселяться в любом направлении. Разве что менявшиеся с севера на юг экологические условия могли притормозить расселение по двум Америкам. Думается, быстрее всех должны были двигаться прибрежные племена, так как морское рыболовство и собирательство непринципиально отличается по всей длине от Аляски до Огненной Земли. Море справа, огромные горы слева, пляж впереди и родственники сзади – что еще надо, чтобы в кратчайшие сроки добежать до края земли? Как и в случае с заселением Сахула, древние жители Америки могли преодолеть все это гигантское расстояние за несколько сотен или пару тысяч лет. Вероятно, в этом и кроется помянутый парадокс со странным распределением датировок на севере и юге: первых людей было крайне мало. Даже гипотетически трудно представить, как можно было бы найти стоянку самых ранних переселенцев. Допустим, группа из десяти человек посидела на полянке, пожгла костер, съела лося и пошла дальше. Как отыскать это место? Да и сохранится ли от него что-нибудь? Вот когда людей стало больше и они начали уже заметно мусорить, вот тут-то мы и получаем шанс засечь их следы. Так что древнейшие известные нам стоянки – вряд ли древнейшие из существовавших, ведь сохранились далеко не все и не везде. Великая скорость расселения затрудняет для нас различение чуть более и чуть менее древних стоянок, а случайность их сохранности создает странное географическое распределение, необязательно соответствующее реальному. Впрочем, не все археологи согласны с этими рассуждениями. В частности, была разработана так называемая “солютрейская гипотеза”. Согласно ей, предки индейцев приплыли из Европы через север Атлантического океана – примерно тем же путем, что спустя тысячи лет проделали викинги. Основанием для гипотезы послужило необычное сходство солютрейских наконечников из Западной Европы и кловисских – из Северной Америки. Более того, древнейшие кловисские стоянки расположены не где-нибудь, а на северо-востоке США, со стороны Гренландии – как раз там, куда должны были бы высаживаться путешественники из Европы. Более того, генетики показали, что некоторые специфические генетические варианты встречаются только у европейцев и индейцев. Поначалу многие сомневались – не следствие ли это позднейшей метисации? Но когда те же варианты были выявлены у индейцев доколумбовых времен, концепция приобрела заметно больший вес. Есть у нее, правда, несколько существенных недостатков. Во-первых, сходство наконечников неидеальное. Во-вторых, позднейшее солютре датируется 15 тыс. лет назад, а древнейший кловис 11,5, в самом оптимистичном варианте – 13,2 тыс. лет назад. Где они болтались 2000 лет? В Северной Атлантике не так много островов, и все они в это время были наглухо запечатаны ледниками. Наконец, помянутые генетические варианты обнаружились не только у европейцев и индейцев, но и у жителей современной Западной Сибири, и – что еще важнее – у древних обитателей Восточной Сибири. Так что указанное родство восходит, похоже, к верхнему палеолиту. Эти проблемы настолько велики, что в настоящее время “солютрейскую гипотезу” мало кто воспринимает всерьез. Жаль ее, красивую, но правда важнее… Есть еще дорога в Америку – дорога для настоящих мореходов, через Тихий океан. Долой лыжи и утлые байдарки, вперед на восход – из Индонезии или Меланезии в безбрежные просторы! Однако что это – неужто на горизонте безбрежных просторов забрезжили берега? И вот перед пораженными моряками вздымаются убеленные вечными снегами величественные вершины Анд… Была ли такая история реальностью? Некоторые археологи и антропологи считают ее вполне достоверной. Ведь многие острова Меланезии, удаленные от соседних порой на сотни километров, были заселены еще 28 тыс. лет назад. Например, обсидиан с Новой Ирландии найден на северных Соломоновых островах, притом что расстояние между ними – 180 км. Стало быть, уже тогда у людей были лодки для дальних морских странствований. Мощным аргументом в пользу “меланезийской гипотезы” стали исследования останков людей из бразильских пещер Лагоа-Санта: черепа оказались необычайно похожи на меланезийские, а не современные индейские (Neves et Hubbe, 2005). Чаще всего в этом смысле поминается скелет Лапа-Вермелья IV, или Лузия, с датировкой 11,6–12,96 тыс. лет назад. Другие “меланезоидные” черепа принадлежали индейцам племен перику и гуайкура, до конца XIX века жившим на самом юге полуострова Калифорния в Мексике (Gonzalez-Jose et al., 2003). Кстати, калифорнийские индейцы всеми путешественниками упоминаются как необычайно чернокожие – не светлее африканских негров. К сожалению, золотая лихорадка полностью извела ранее многочисленные племена, так что сейчас проверить эти наблюдения сложно. “Меланезоидность” же калифорнийских черепов при ближайшем рассмотрении сводится к одной лишь долихокранности – вытянутой форме черепа, а это, как известно уже сто лет, не самый лучший расоводиагностический признак. Из черепов племени ботокудов, жившего на восточном побережье Бразилии, выделены “полинезийские” гаплогруппы мтДНК (Gonçalves et al., 2013). Правда, с ними все довольно запутанно – неясно, как из Тихого океана тропические земледельцы-мореходы могли попасть на атлантическое побережье. Перешли через горы и болота Панамского перешейка и проплыли вдоль северо-востока Южной Америки? Вылавировали извилистым Магеллановым проливом? Перелезли через заоблачные Анды? Все эти пути весьма сомнительны. С большей вероятностью ботокуды обогатились азиатскими гаплогруппами либо из предковой популяции, либо воровством женщин уже в новейшие времена. Однако свидетельства океанийско-американских контактов есть и в культуре. Так, полинезийским влиянием объясняется строительство лодок с балансиром у племени чумаш в Калифорнии, причем многие специфические технологические процессы имеют схожие названия именно с полинезийскими. Много говорилось о тёслах токи, бутылочных тыквах, бататах и даже курах араукана, несущих голубые яйца и известных в Чили, вероятно, с доколумбовых времен. По крайней мере, впервые чудные несушки помянуты в испанской летописи в 1526 г. – всего 34 года спустя после открытия Америки и шесть – после первого посещения чилийского побережья европейцами. Более того, в чилийском местонахождении Эль-Ареналь 1, в слое с датировкой 1321–1407 гг. н. э. – на сто лет раньше путешествия Х. Колумба! – обнаружены кости пяти кур. ДНК из одной кости указала на полинезийское происхождение птиц (Storey et al., 2007). Последующие изыскания в области куриных ДНК-генеалогий породили бурную дискуссию: одни прямо отождествили всех древних чилийских кур с европейскими, другие же – подтвердили “полинезийскую версию”. Оживленные дебаты продолжаются, куриный вопрос стал архиважным для выяснения путей человеческих миграций по Океании. С другой стороны, индейцы вполне могли доплывать аж до острова Пасхи. Серьезные подтверждения этого найдены в виде тростника тоторы (бальсовые плоты инков имели навес из такого тростника) и гречишника тавари, а также южноамериканских пресноводных диатомовых водорослей и губок в отложениях озера Рано-Рараку с датировкой 1300–1450 гг. н. э. – до открытия острова европейцами (Dumont et al., 1998). В генах рапануйцев среди несомненно полинезийской основы найдены последовательности, которые могут указывать на индейскую примесь до XIX века (Lie et al., 2006), хотя интерпретаций сего факта может быть слишком много. Впрочем, к заселению Америки все эти факты и споры имеют весьма косвенное отношение, ведь указанные культурные влияния относятся к самым последним временам, а не плейстоцену. Гораздо весомее идея так называемой “Меланезики”. Этнографами давно отмечено, что в культуре тропической Африки, Меланезии и Южной Америки подозрительно много параллелей: использование скарификации и раскраски тела вместо татуировки, украшение носа и ушей вставленными туда предметами, искусственные деформации голов, резные палицы и расписные деревянные маски, очень схожие наборы мифологических сюжетов. Означают ли эти и другие сходства прямые плавания через океаны? Вряд ли. Скорее, они указывают на быстрые миграции вдоль побережий. Немалая проблема “меланезийской гипотезы” в том, что с северных Соломоновых островов на южные люди смогли перебраться лишь 2800 лет назад, а восточнее продвинулись и того позже. Так как же они махнули аж до Южной Америки, промазав мимо всех архипелагов Океании? Да и доплыви они до, скажем, Перу – как бы они оказались в Амазонии? Для этого им надо было бы преодолеть грандиозную стену Анд, а потом снова спуститься вниз. Отважные мореходы пересекают самый большой и бурный океан на планете, высаживаются в самой сухой в мире пустыне, срочно становятся альпинистами и преодолевают высочайшие вершины, а потом низвергаются в удушливый “зеленый ад” Амазонии – не слишком ли много рекордов и не чересчур ли контрастные занятия? Но и это не последний путь в Америку. На самом деле, самый простой и короткий – из Западной Африки через Атлантический океан. Специально для этого природа предусмотрела Северное и Южное пассатные течения, идущие с востока на запад. Если уж палеогеновые обезьяны, грызуны и ящерицы смогли вынести тяготы трансокеанского дрейфа, то людям это тоже было под силу. Проблема только в том, что нет никаких внятных доказательств, что какие-либо плейстоценовые африканцы хотя бы раз совершили подобное путешествие. В качестве доказательства приводились знаменитые ольмекские каменные головы величиной в рост человека, находимые в болотах мексиканской Оахаки. В их чертах нетрудно углядеть негроидные черты – широкий приплюснутый нос и толстые губы. Однако попробуйте сделать из двухметрового валуна изображение великого вождя. Не очень-то легко будет высечь рельефный нос. Да к тому же пиетет перед властью требует, чтобы вождь был похож на ягуара – сильнейшего хищника джунглей, а религиозно-художественные традиции диктуют не какую-нибудь, а весьма специфическую форму стилистики. Вот и получается из помеси вождя и ягуара как бы негроид. Так сколько же было открытий Америки? Только через Берингию люди могли проникать сюда не однажды. Население западного побережья от Калифорнии до Огненной Земли может быть остатками первой миграции людей более-менее экваториального облика; бóльшая часть индейцев может восходить ко второй волне переселения; племена северо-восточного побережья, говорящие преимущественно на языках на-дене, могли появиться из Сибири позже и быть родственными иным азиатским племенам. Люди продолжали открывать Америку и дальше. Предки эскимосов пришли в Арктику в середине голоцена, отдельные их племена вновь и вновь заселялись с Чукотки на Аляску и далее – через полярную Канаду до Гренландии. С Хоккайдо и Курил течением Куросиво до северо-западного побережья Америки – иногда аж до Мексики – регулярно доносило лодки с японцами и айнами. Японские и китайские статуэтки, монеты и ножи были прекрасно известны индейцам хайда и квакиутль. Не исключено, что некоторые орнаментальные мотивы и несколько повышенную бородатость и усатость эти индейцы получили в наследство от айнов. Полинезийцы могли добираться до восточного края мира и осчастливить чумашей Калифорнии лодками с балансиром, а южноамериканских индейцев – бататами и курами. Карфагеняне или римляне, судя по некоторым находкам (правда, не слишком достоверным), способны были не только доплыть до Центральной или Южной Америки, но и вернуться назад. Наконец, мы достоверно знаем, что около 1000 г. викинги попали на северо-восточное побережье Северной Америки – в Винланд – и даже построили на острове Ньюфаундленд поселение, известное ныне как Л'Анс-о-Медоуз. Правда, надо признать, кроме самых первых миграций палеоиндейцев, все эти выдающиеся путешествия не оставили сколь-либо значительного следа в мировой истории. Только после этого последовало “официальное” открытие “Вест-Индии” Х. Колумбом в 1492 г. Только тогда мир всколыхнулся, а основы как западных, так и восточных обществ были потрясены до основания. Открытие Америки продолжается и сейчас – современные миграции продолжают менять облик населения двух материков. Связующая нить ДНК: Европа – Сибирь – Америка. Заселение Америки и происхождение индейцев – волнующие темы человеческой истории. Восстановить прошлое можно множеством способов, и одним из них является анализ ДНК. Правда, эта молекула сохраняется не так уж хорошо, да и расшифровать ее – нелегкая задача. Большой шаг в обеих областях сделали генетики из России, Дании, США, Эстонии, Швеции и Великобритании. Они провели секвенирование полного генома древнего человека из Сибири. Стоянка Мальта была исследована еще в 1929 г. знаменитым М. М. Герасимовым. Она расположена в Иркутской области, в 85 км от Иркутска. Слои датируются 24 тыс. лет назад. Стоянка представляла собой довольно значительное поселение из 14 жилищ и знаменита чрезвычайным богатством находок, в том числе украшениями, предметами, покрытыми резьбой и охрой, статуэтками из бивня мамонта. Замечательно, что культура жителей Мальты оказалась удивительно близка к культуре европейских кроманьонцев из Костенок, Авдеево, а также Сунгиря и Зарайска, в несколько меньшей степени – Ориньяка, Гримальди и целого ряда центрально– и западноевропейских стоянок. Мальту и рядом расположенную Буреть с материалами верхнепалеолитической Русской равнины особенно сближают предметы искусства. Таким образом, уже давно предполагались культурные связи европейских и восточносибирских кроманьонцев. В числе прочего важнейшим объектом оказалось ритуальное погребение двух детей (0,5–1 и 3–4 лет), совершенное под сложной конструкцией типа дольмена из каменных плит, поставленных на ребро с наклоном друг к другу, под которой залегала узкая и длинная плита, на которой красовался крупный зуб мамонта. Под последней плитой обнаружились скелеты двух детей, покрашенных красной краской. Кости были очень плохой сохранности – настолько плохой, что первоначально они были определены как один скелет ребенка с патологией зубной системы. Антропологические особенности этих детей установить было весьма проблематично. В. П. Алексеев и М. М. Герасимов считали, что в строении зубов можно усмотреть монголоидные черты, Х. Тернер и Е. Г. Шпакова – европеоидные. Череп второго ребенка – долихокранный со слабым надбровьем – потенциально мог принадлежать предкам и монголоидов, и европеоидов. Слабая и умеренная лопатообразность резцов и другие одонтологические признаки тоже оставляют широкий простор для интерпретаций. Лица статуэток из Мальты и Бурети имеют вроде бы монголоидные черты лица, но степень стилизации такова, что утверждать это с уверенностью не станет ни один серьезный ученый. На окраине Красноярска расположена другая замечательная стоянка – Афонтова гора II. Ее возраст – 17 тыс. лет. Каменная индустрия отсюда выглядит весьма примитивной, сделанной на отщепах, но украшения и предметы искусства позволяют говорить о высоком уровне развития местных жителей. Антропологические материалы сравнительно многочисленны, но весьма фрагментарны; возможно, это связано с тем, что кости человека были показательно выставлены в специальном месте. От черепа остался лишь маленький кусочек надбровья с основаниями носовых костей, весьма сильно уплощенных, что позволило предположить монголоидные черты, но с невеликой достоверностью. Таким образом, останки из Мальты и Афонтовой горы II – лучший материал для палеогенетического анализа. Минимум собственно антропологии, но потенциально хорошая ДНК – что может быть ближе сердцу настоящего генетика? На радость генетиков и зависть антропологов, сохранность генетического материала в образцах из плечевых костей старшего ребенка из Мальты и взрослого человека из Афонтовой горы оказалась превосходной. Из мальтинца удалось выделить как мтДНК, так и ядерную, в том числе Y-хромосомную, однозначно указывающую на мужской пол ребенка (доселе этот ребенок считался девочкой, что лишний раз показывает ненадежность определения пола по детским скелетам, тем более фрагментарным). Митохондриальная ДНК мальтинца принадлежит к гаплогруппе U. Подгруппа же оказалась особой, неизвестной у современных людей, но базовой для нынешних вариантов U, что логично для ДНК такой древности. Предыдущие исследования выявили гаплогруппу U у целого ряда верхнепалеолитических кроманьонцев Европы – из Костенок XIV, Дольни-Вестонице, Хеле-Фельс и Оберкасселя, тогда как у китайского Тяньяня была гаплогруппа B. В целом же гаплогруппа U распространена сейчас от Европы (преимущественно самой северной) через Ближний Восток до Западной Сибири и Индии, а также в Северной Америке среди индейцев, хотя у последних и нечасто. Последний факт распределения доныне объясняли сильной метисированностью современных индейцев с европейцами, но новые данные по сибирским кроманьонцам позволяют сделать иные выводы. Совершенно аналогично дело обстоит с Y-хромосомой, которая у мальтинского ребенка сохранилась не так здорово, но с наибольшей вероятностью относится к основанию гаплогруппы R. ДНК мужчины с Афонтовой горы сохранилась несколько хуже, но в целом имеет те же характеристики. Таким образом, положение мальтинца и афонтовца оказывается промежуточным между современными европеоидами, индийцами трех рас и индейцами и одновременно предковым для всех них, но достаточно далеким от монголоидов. Отсюда следует вывод, что предки индейцев попали в Америку из Сибири через Берингов пролив, неся в себе изрядный заряд “протоевропеоидных генов”. Впрочем, такое изложение заметно упрощает ситуацию. В реальности подавляющая часть генетических вариантов, распространенных у индейцев, намного ближе к монголоидным версиям; по подсчетам авторов новой статьи, лишь 14–38 % генома современных индейцев могут иметь происхождение из сибирских популяций типа мальтинской. Одна шестая или даже треть – не много, но не так уж и мало. Конечно, сразу вспоминается давнишний спор о немонголоидных особенностях древних американских черепов и многих современных индейцев. Также нельзя пройти мимо кетской проблемы. Малочисленный народ кетов всегда привлекал к себе внимание своими подчеркнуто индейскими чертами внешности и культуры. Замечательно, что именно кеты генетически максимально похожи на европеоидов с одной стороны и эскимосов с индейцами – с другой. Живущие рядом селькупы, ханты и тундровые ненцы также весьма близки генетически. Вместе эти народы севера Западной Сибири образуют мост, связующий Европу и Америку. Среди современных людей они оказываются наиболее родственными верхнепалеолитическим сибирякам и сибирским предкам индейцев, едва ли не ближайшими, как это ни парадоксально, чем сами индейцы; дело в том, что последние за прошедшие тысячелетия существенно изменились, а в Сибири сохранились более древние варианты генов. Любопытно также, что по мтДНК кеты и их соседи гораздо “европеоиднее”, чем по Y-хромосоме. По всей видимости, монголоидные мужчины в последующие тысячелетия не раз наведывались на север Западной Сибири из Восточной Сибири. Отсюда недалеко и до выводов о множественности “волн заселения” Америки, и до возрождения идеи о “недифференцированности” индейцев, но… Во-первых, гены – штука, как ни странно, жестко не привязанная к конкретной популяции. Генные потоки могут носить части ДНК в самых разных направлениях по человеческим группам, вне прямой связи с фенотипом и тем более культурой. Мальта наверняка не была тем конкретным местом, откуда предки индейцев попали в Америку. В те далекие времена вообще не было ни европеоидов, ни дравидоидов, ни монголоидов, ни тем более американоидов. Фактически можно говорить лишь о том, что от 25 тыс. лет назад и ранее где-то на просторах Сибири бродили люди, часть потомков которых в последующем смешивалась с людьми Запада – будущими европеоидами, Юга – европеоидами, дравидоидами и даже веддоидами Индии (скорее, не напрямую, а очень косвенно, через Среднюю Азию) и Востока, ушедшими затем за море на новый континент – будущими индейцами. На наш взгляд, гораздо любопытнее отсутствие подобных генетических вариантов среди монголоидов при преобладании все же протомонголоидной основы у индейцев. Это значит, что верхнепалеолитические сибиряки смешивались со все более северными группами или сами уходили на северо-восток, но никогда не смешивались с юго-восточными соседями и не мигрировали в направлении теплого Китая. Вряд ли география – горы, реки – тому причиной, не помешала же она пройти протомонголоидным предкам индейцев с юга на север. Скорее дело в миграционных потоках, обусловленных плотностью населения. На благодатном юге людей было заведомо больше, конкуренция за ресурсы, вероятно, острее, чужаков с севера там не привечали. А на севере людей вообще не было, там лежали степные просторы со стадами мамонтов, лошадей и бизонов, а еще далее на северо-восток простиралась туманная Берингия – обледенелые врата в рай, сулившие что-то совсем уж необычайное. Во-вторых, время заселения Америки доныне точно неизвестно. Мальтинцы жили за десять тысяч лет до первых твердо доказанных палеоиндейцев, но спустя десять тысяч лет после нетвердо доказанных. Посему остается открытым вопрос: сибирские палеогены должны считаться предковыми для индейцев или принадлежали уже потомкам тех, кто таки не пошел на неведомый север, а остался в уютной Сибири? Возможно, верна вторая версия, но это уже другая история… В-третьих, расшифровка ДНК верхнепалеолитических сибиряков отличным образом вписывается в известные ранее, но не отраженные в статье факты (естественно, отечественным авторам они известны, но в статье всего не помянешь, мы же можем себе это позволить). Ю. Е. Березкин в своих замечательных работах показал, что целый ряд мифологических сюжетов тянется через весь север Евразии в Северную Америку (Березкин, 2007, 2012). Кстати, как обратила внимание С. А. Боринская, ареал мифа о создании земли ныряющими птицами здорово коррелирует с распространением некоторых Y-хромосомных гаплогрупп, типичных для той же самой территории. Значит ли это, что фигуры летящих птиц из погребения детей в Мальте отражают миф о доставании земли со дна первичного океана нырками-гусями-лебедями? Пока у нас нет способов точно узнать это. Но сильна наука, и верим, что найдутся способы узнать еще много подробностей о прошлом человечества! Сразу после расшифровки ДНК древних сибиряков наступила очередь собственно палеоиндейцев. Тут, конечно, тоже не обошлось без проблем. Культура кловис отлично представлена археологически, но крайне плохо – палеоантропологически. Однако с кловисской стоянки Анзик из Монтаны известны два скелета детей. Древнейший датируется 12,6–12,7 тыс. лет назад, второй – 8 или 11,5 тыс. лет назад. Антропологически находки почти не изучались. Зато из костей древнейшего ребенка удалось выделить мтДНК (Rasmussen et al., 2014). Обнаружилось закономерное родство кловисского человека из Анзика с современными индейцами, причем примерно в равной степени с северо– и южноамериканскими; в более общем масштабе – с монголоидами. Неожиданным стало то, что мтДНК анзикца оказалась принадлежащей к гаплогруппе D4h³. Она распространена среди индейцев тихоокеанского побережья от Аляски до Чили, а в Старом Свете найдена у ульчей, китайцев и древних японцев. Логичным выглядит предположение, что сей вариант распространялся вдоль берегов среди рыболовов. Однако Монтана находится по другую – восточную – сторону от Скалистых гор. До сих пор большинство археологов считали, что кловисцы пришли в Америку дорогой между ледниками, а не по морю. Впрочем, кочевые племена всегда были легки на подъем, а делать глобальные выводы по одному индивиду – опасное дело. Также мальчик из Анзика оказался на треть генома (точнее, на треть специфичных последовательностей, которые могли бы потенциально быть различны) идентичен ребенку из Мальты. Между ними – больше десяти тысяч лет, но вместе они связуют Сибирь и Америку. Соединяя данные по ДНК людей из Тяньяня, Мальты, Афонтовой горы II, Анзика и современных европейцев, западносибирцев и индейцев, мы получаем достаточно стройную картину. Основная часть индейцев возникла из протомонголоидных популяций, шедших из Восточной Азии, примерно с территории Китая. Где-то в самом начале пути, еще на юге, к ним добавились протомеланезоидные группы, осваивавшие береговую линию Индокитая. Чем севернее, тем вода холоднее, кислорода в ней больше, планктон гуще, рыба жирнее, тюлени и киты многочисленнее. Оттого и людям веселее, потому и шли они почти строго на север по берегам длинной череды морей от Южно-Китайского до Берингова. В Сибири к переселенцам присоседились местные жители, имевшие родство с европейскими кроманьонцами. Вместе ли они ввалились в Америку – веселой шумною толпою – или просачивались туда скромными группками по десять человек, нам неведомо. Но главное – открытие самой восточной части света состоялось.Технологически верхний палеолит, как уже говорилось, отличается от среднего, кроме прочего, пластинчатой техникой и наличием составных орудий со специальными приспособлениями для крепления наконечника на древко. Неизмеримо выросла техника изготовления орудий. Они стали изготавливаться с пластин – специально подготовленных узких и длинных заготовок, что позволило выделывать куда более изящные и разнообразные орудия, чем мустьерские остроконечники. Появились ножи, наконечники, скребки, резцы, проколки и многие другие варианты. Кроманьонцы широко использовали для изготовления орудий также кости и рога животных, а также бивни мамонтов. Для охоты на мелких животных и птиц, вероятно, применялись разнообразные ловушки; находки целых скелетов песцов без лапок и, напротив, отдельных лапок песцов говорят о пушном промысле. Процент птичьих и рыбьих костей на верхнепалеолитических стоянках гораздо выше, чем на мустьерских. В итоге разнообразие культур верхнего палеолита непомерно превосходит вариации мустье: если мустьерские остроконечники и скребла во Франции и на Алтае почти неотличимы, то в эпоху верхнего палеолита даже рядом соседствовавшие группы людей могли пользоваться резко отличающимися орудиями.
Откуда же появился столь понятный нам мир, как он совмещался с совершенно иным миром неандертальцев? Вопрос о происхождении верхнепалеолитических культур крайне сложен и далеко не решен. Многие биологические особенности древнейших верхнепалеолитических людей позволяют предположить, что они пришли в Европу из тропических областей. Длинные конечности с укороченным бедром и плечом, высокий рост, вытянутые пропорции тела, крупные челюсти схожи у современных тропических популяций и кроманьонцев. Но если сами кроманьонцы были пришельцами, то происхождение их культуры не так однозначно. Связана ли она с культурой аборигенов – неандертальцев?
Одни археологи выводят верхний палеолит из древних культур Африки и Ближнего Востока, другие аргументируют преемственность от местных среднепалеолитических. В нескольких случаях эта преемственность может считаться фактически доказанной. Например, специфические треугольные наконечники верхнепалеолитической стрелецкой культуры Русской равнины с большой вероятностью заимствованы у неандертальцев микокской культуры Крыма. Среднепалеолитический микок стал основой также для линкомба и раниса, а от них возник верхнепалеолитический мезер. Пóзднее левантийское мустье породило эмиран, а тот – ахмар уже вполне верхнепалеолитического облика. Во всех этих случаях направление влияния неочевидно, но археологи склоняются к тому, что именно сапиенсы заимствовали у неандертальцев технологические приемы, а не наоборот. Думается, происходило это не потому, что неандертальцы делали лучшие орудия, а потому, что сапиенсы легче перенимали все новое. Они были открыты свежим веяниям и потому выжили. А закоснелые консерваторы неандертальцы не желали или не могли перенимать “международный” опыт, за что и поплатились вымиранием.
Особняком стоит мнение Р. Беднарика, доказывающего, что ранний ориньяк – одна из первых верхнепалеолитических культур – был творением неандертальцев, а не кроманьонцев (Bednarik, 2008). Согласно этой концепции, сапиенсы, придя в Европу, восприняли ориньякскую культуру и могли смешиваться с неандертальцами. Впрочем, сие экстравагантное мнение не разделяется подавляющим большинством археологов и антропологов.
Творцы протоориньяка и ориньяка. Одна из древнейших верхнепалеолитических культур Европы – протоориньяк. К сожалению, до сих пор его палеоантропология ограничивается лишь двумя зубами – молочными резцами из итальянских пещер Гротта-ди-Фумане (38,5–41,11 тыс. лет назад) и Рипаро-Бомбрини (35,64–40,71 тыс. лет назад). Как часто бывает, морфология в этом случае может дать не так много, как хотелось бы. В таких случаях на помощь спешат генетики. Митохондриальная ДНК из зуба Гротта-ди-Фумане оказалась вполне сапиентной, относящейся к гаплогруппе R – в целом такой же, как и у других верхнепалеолитических кроманьонцев и даже многих современных европейцев (Benazzi et al., 2015). Французское местонахождение Ла-Кина широко известно своими неандертальцами. Гораздо меньше известно, что в 200 метрах находился навес Ла-Кина-Аваль, ныне уже разрушенный. В этом месте с 1905 по 1998 г. тоже велись раскопки, в результате чего были найдены останки людей. Успокоительно сознавать, что разгильдяйство – не исключительно российская особенность. До сих пор неизвестно, сколько и чего было найдено и куда все это богатство делось. В каталогах числится 13 фрагментов в двух коллекциях, в одной из них найдено шесть фрагментов, из которых два не принадлежат людям, один имеет сомнительное стратиграфическое положение и только три действительно происходят из нижнеориньякского слоя Ла-Кина-Аваль. Это фрагмент детской нижней челюсти и два премоляра (Verna et al., 2012). Наконец, в совершенно другом музее нашелся еще один обломок детской нижней челюсти, который никогда не был описан и даже не числился в списках находок. Ценность этим останкам придает то обстоятельство, что создатели раннего ориньяка до сих пор ускользают от антропологов. Комб-Капелль оказался мезолитическим, другие находки чересчур фрагментарны. Некоторые археологи даже стали сомневаться: а может, ориньяк изобрели неандертальцы? В Ла-Кина-Аваль тоже найдено не бог весть что, но нижняя челюсть современного человека и неандертальца отличается все же достаточно надежно. Один из премоляров – второй нижний Ла-Кина-Аваль 3 – использовался древними людьми в качестве подвески, для чего в его корне была просверлена дырочка. Изготовление таких украшений известно для более поздних эпох, но нетипично для неандертальцев. В Ла-Кина-Аваль мы встречаем древнейший пример такой практики. Нижняя челюсть Ла-Кина-Аваль 4 имеет вполне четкий подбородочный выступ со всеми сапиентными чертами. Линия передних зубов не спрямлена, а закруглена – сапиентный вариант. Есть и архаичные черты: например, подбородочное отверстие хотя и одиночное, но сильно смещено назад. Размеры зубов, как обычно, не дают четкой диагностики – слишком сильно перекрываются границы изменчивости неандертальцев, древних и более современных сапиенсов, тем более что речь идет о детях, которым свойственно расти. Впрочем, можно отметить, что зубы крупные и по большинству измерительных и описательных признаков попадают между неандертальцами и кроманьонцами, хотя ближе к последним. Есть на них и ряд архаичных признаков, но они неудивительны на зубах такой древности. Таким образом, измышления о неандертальском ориньяке, похоже, можно теперь считать историей. Вид Homo sapiens, как бы ни хотелось иного некоторым его представителям, полностью реабилитирован и по-прежнему может считаться самым прогрессивным и разумным. Геноцид или торжество интернационализма? Скальный навес Ле-Руа, расположенный во французском Шаранте, недалеко от Ла-Кина, был раскопан непрофессионалами еще в 1930-е гг. Понятно, что методика любительских раскопок оставляла желать лучшего, так что мы точно не знаем, что, где и как лежало в оригинале. Однако положение спасает однообразие культуры: в трех слоях грота найдены только ориньякские орудия. Их датировка – 32,6–34 тыс. лет назад, самое интересное время, когда неандертальцы исчезали, а кроманьонцы появлялись. Самое же главное – тут обнаружены обломки двух нижних челюстей и немалая горсть зубов от четырех человек (Ramirez Rozzi et al., 2009). Анализ этих останков оказался неожиданным. С одной стороны, большинство изолированных зубов и челюсть десятилетнего ребенка Ле-Руа A вполне сапиентны – размеры укладываются в кроманьонский масштаб, на подбородке имеется хотя и небольшой, но внятный подбородочный выступ со всеми признаками, присущими современному человеку. Но вот челюсть Ле-Руа B одиннадцатилетнего ребенка удивила: на ней исследователи углядели неандертальские черты; размеры ее зубов тоже больше соответствуют неандертальским стандартам, а некоторые выходят за рамки изменчивости сапиенсов. Более того – на этой кости имеются следы надрезок каменными орудиями. Такое впечатление, что кто-то пытался достать из челюсти зубы. Он хотел сделать подвеску? Предположение не такое уж беспочвенное, ведь в Ле-Руа найден один человеческий резец с отверстием в корне. Обращает на себя внимание и место находки: челюсть обнаружена в очаге, но не обожжена. И тут появляется веер интерпретаций. Первым на ум приходит, конечно, самый ужасный вариант: кровожадные кроманьонцы-каннибалы съели беззащитное неандертальское дитятко. Вариация на ту же тему, но более возвышенная: они использовали челюсть неандертальского ребенка в ритуальных целях или для изготовления украшений. Красота, как известно, требует жертв… И лучше, если жертвой будет представитель соседнего племени. Другое объяснение: в Ле-Руа последовательно жили неандертальцы и сапиенсы. Правда, сапиентная челюсть залегала в нижнем слое, а неандерталоидная – в верхнем. Но почему бы и нет? Те и другие могли использовать ориньякские орудия и охотиться на одних и тех же северных оленей и лошадей, костями которых в великом изобилии напичканы отложения грота. Также не исключено, что жители навеса были метисами и у разных индивидов в большей степени проявлялись то сапиентные, то неандертальские черты. Наконец, имеющиеся вариации вполне можно объяснить индивидуальной изменчивостью. Люди разные, отчего бы одному из них не оказаться чуть более странным, нежели прочие? Но! Словосочетание “нижняя челюсть Ле-Руа B” может ввести неискушенного Читателя в заблуждение. В действительности от нее остался маленький обломок альвеолярного края. Неандертальскость выявляется в трех основных признаках: спрямленности линии клыков и резцов, размерах клыков и микростроении эмали. Стоит признать, сходство с неандертальцами и впрямь убедительное. Однако так ли хорошо мы знаем изменчивость верхнепалеолитических людей? Ориньякские кроманьонцы известны по единичным находкам, и корректно ли сравнивать зубы из Ле-Руа с сапиенсами, жившими спустя десять – пятнадцать тысяч лет? Вопросов много, а зубов мало! Возможно, новые методы позволят уточнить родство людей из Ле-Руа и решить загадку – что же случилось 30 тыс. лет назад под сводами французского грота?Как бы то ни было, сапиенсы как минимум на Ближнем Востоке, а возможно, и в Европе не одну тысячу лет подряд соседствовали с неандертальцами. Вероятно, этот этап можно удлинить даже до 24 тыс. лет, ведь древнейшие датировки для верхнего палеолита стоянки Костенки 12 составляют 52 тыс. лет, а позднейшие для мустье и неандертальцев – 28 тыс. Хотя и те и другие цифры часто оспариваются, известны случаи (например, в Костенках), когда слой верхнего палеолита перекрыт сверху мустьерским. Также давно замечено, что предковые для верхнего палеолита культуры сосредоточены на Ближнем Востоке, примитивнейшие и древнейшие европейские – на Балканах, в Восточной и Центральной Европе, а в Западной они появляются уже в готовом виде, тут между мустьерскими и верхнепалеолитическими слоями часто вообще лежит стерильная прослойка.
Верхнепалеолитических культур известно множество. В Африке в это время обычно выделяют “поздний каменный век”, плавно вытекающий из “среднего каменного века” и заметно отличающийся технологически от европейского и азиатского верхнего палеолита, в основном преобладанием микролитической техники. Микролитами “поздний каменный век” Африки напоминает мезолит Европы, хотя намного древнее его. В Европе самые известные культуры – ориньяк, граветт, солютре, мадлен, но есть огромное количество других, отличающихся не только частотами тех или иных орудий, но специфическими их типами.
В отдельных местностях то ли деятельность гениев, то ли закономерный ход прогресса могли приводить к великим открытиям. Скажем, на ряде верхнепалеолитических стоянок – Дольни-Вестонице I и II, Павлов, Межирич, Косоуцы, Ляско, Эль-Хихо – обнаружены обугленные веревочные фрагменты из растительных волокон и отпечатки тканей на глине. Некоторые авторы идут в своих построениях намного дальше (Адовазио и др., 2001). Разнообразие типов текстиля в Моравии они объясняют специфической организацией сообществ: большую часть времени люди жили тут малыми группами, а вместе собирались лишь сезонно. Судя по следам регулярных сборищ больших групп людей, иногда возникал избыток еды, когда с помощью сетей на мелких и крупных животных охотиться могли даже женщины и дети. Такая массовая и при этом относительно безопасная заготовка пищи якобы даже могла быть причиной грацилизации. По мысли авторов концепции, из-за общинной охоты с сетями в Восточной Европе редко использовалось дистанционное оружие, не было копьеметалок и луков со стрелами.
Столь крупные обобщения, кажется, чересчур смелы, но по факту в Дольни-Вестонице I действительно имеется одиннадцать отпечатков веревок, четырнадцать – плетеных изделий, девять – тканого полотна, сделанного предположительно не только вручную, но и на простых ткацких рамах. В числе прочего найдены оттиски корзин, узелковых сетей, циновок, мешков, одежды, в том числе из очень тонких тканей. При желании даже в завитушках на головах верхнепалеолитических “Венер” можно углядеть плетеные и тканые шапочки.
Уникальная находка – черепная крышка со Сходни в Москве, видимо верхнепалеолитического возраста. На ее наружной поверхности имеется рельефный тканевидный рисунок. Как растительные или волосяные волокна могли отпечататься на черепе? На то и наука, чтобы все проверять: Н. А. Синельников опытным путем показал, что при должном действии почвенных кислот плотно прилегающая ткань образует именно такую сетку, как обнаружена на крышке со Сходни (Бадер, 1952; Синельников, 1952).
Другое достижение кроманьонцев верхнего палеолита – керамика. С одной стороны, на Ближнем Востоке – родине сельского хозяйства и мировой цивилизации – докерамический неолит сменился керамическим лишь 7,9 тыс. лет назад, уже при первых протогосударствах. С другой – в Центральной и Восточной Европе керамика была известна уже 26 тыс. лет назад. В Дольни-Вестонице найдено более 5000 керамических артефактов, сделанных из местной глины с обжигом при температуре 500–800 °C (Vandiver et al., 1989). В этом поселении вообще любили глину, ей обмазывали жилища, даже деревянные и костяные орудия. Однако самый сохранный керамический предмет тут – женская статуэтка. До чего-то более полезного типа посуды местные кроманьонцы так и не дошли. Видимо, им хватало корзин, мешков и деревянных плошек. Посему потенциально ценнейшая технология была благополучно забыта, а затем неоднократно изобреталась вновь. Что ж, это обычнейшее дело в истории цивилизации и технологий – всему свое время.
Маленькие керамические фрагменты известны и с других стоянок, например подмосковного Зарайска. Правда, тут пока не найдены целые предметы.
Уголок занудства. Отдельно керамика была изобретена на Дальнем Востоке, где два древнейших сосуда из китайской пещеры Юхнянь имеют датировки 15,2–16,5 тыс. лет назад. В России на амурских поселениях Хумми и Гася керамика осиповской культуры имеет древнейшие датировки 13 тыс. лет назад (Kuzmin et al., 1997). В Японии: 12,4–12,6 тыс. лет назад – в пещере Фукуи, 12–13 тыс. лет назад – Семпукудзи, 12 тыс. лет назад – Камигуроива. Совершенно независимо керамику придумали в Южной Америке; первые образцы известны из Монте Алегре в Бразилии – 7,5 тыс. лет назад. В Перу мог быть свой очаг прогресса, тут керамика известна из Вальдивии в Эквадоре – 5,5 тыс. лет назад – и Пачамачай в Перу – 4 тыс. лет назад. В Северной Америке горшки и миски изобрели заново: в Медоукрофт-Рокшелтер на востоке США первые образцы имеют возраст всего 2,9–3,2 тыс. лет назад.Поселения людей верхнего палеолита обычно представляли собой регулярно посещаемые охотничьи стоянки. Тут строились жилища, варианты которых весьма разнообразны – от простецких землянок в Дольни-Вестонице и чумоподобных хижин в Бурети и Мальте через “строенный чум” в Пушкарях до “длинных домов” в Костенках I и экзотических сооружений из мамонтовых костей на стоянках Мезин, Межирич, Добраничевка и Гагарино. Дома из мамонтовых костей, кстати, имеют подозрительное сходство с молодовскими хижинами неандертальцев, только у кроманьонцев они были сложнее: основание из вложенных друг в друга нижних челюстей мамонта, опертых на черепа и тазовые кости; у входа – заборчик из длинных костей; свод из изогнутых бивней придавлен лопатками. На постройку одного такого дома уходили кости не одного десятка мамонтов. Но сомнительно, что все это была охотничья добыча. Скорее всего, люди искали кости по степям в уже готовом виде.
Мамонтовые кости служили кроманьонцам самыми разными способами, в том числе в качестве топлива. Действительно, в перигляциальной степи – холодной и сухой – дров не насобираешь, а зима длинная – больше половины года, да и лето не такое уж теплое. Травой не очень-то потопишь, больно уж быстро она сгорает. А вот мамонтовыми костями – самое то: они жирные и отлично и долго горят.
Кроманьонцы были охотниками и много путешествовали. Например, культура на прибайкальских стоянках Мальта и Буреть похожа на восточноевропейские Костенки и Авдеево. А анализ бедренной кости Дольни-Вестонице 35 с датировкой 26,6–28,3 тыс. лет назад показал, что ее владелец ел много морской рыбы и, возможно, моллюсков – это в Чехии, в самом центре Европы, за три сотни километров от ближайшего моря (Trinkaus et al., 1999a)! Очевидно, это свидетельство не регулярных поставок с побережья, а путешествия безвестного туриста. Что сподвигло его бросить солнечные пляжи и отправиться вглубь континента?..
В целом в эпоху верхнего палеолита в Европе и Северной Азии климат был суровым, это время чередовавшихся ледниковых периодов с межледниковьями. Хотя в некоторые межледниковья климат был теплее, чем сейчас, все же в среднем Евразия представляла собой арктическую область. Весь север Европы был покрыт огромным ледником, другие спускались с гор. На юге Франции и в Крыму водились северные олени, песцы и лемминги. На большей части Европы и Северной Азии простиралась перигляциальная степь – очень холодная, но при этом продуктивная, на травах которой паслись многочисленные стада бизонов, лошадей, северных оленей, сайгаков, мамонтов и шерстистых носорогов.
Оледенения сопровождались понижением уровня моря. С одной стороны, это давало возможность переходить на новые острова, с другой – последующее потепление и поднятие моря скрыло от нас многие интересные вещи на дне. Например, в Крыму фактически нет стоянок времени верхнего палеолита, так как все приличные люди сидели на берегах, скрытых теперь волнами Черного моря.
Конечно, не стоит забывать, что большая часть населения планеты, как и прежде, жила в тропиках и субтропиках, где условия были вовсе не такими уж суровыми. Другое дело, что о них мы знаем меньше.
Мышление кроманьонцев, по-видимому, уже ничем принципиально не отличалось от нашего, хотя бы судя по тому, что все современные расы находятся на принципиально одинаковом уровне развития, независимо от степени изоляции. То есть уровень технического развития разных обществ очевидным образом расходится, но потенциальные способности удивительно схожи: из, казалось бы, самых диких австралийских аборигенов, бушменов, новогвинейских папуасов и амазонских индейцев без проблем получаются цивилизованные люди, они учатся читать, писать и полностью вливаются в глобальное современное общество несмотря на то, что ни один из их предков ничем подобным не занимался. Учитывая, что пути этих популяций разошлись чуть ли не 50 тыс. лет назад, становится очевидным, что и кроманьонцы были потенциально способны на все то же самое.
Поэтому уже не кажется столь удивительным, что на стоянках верхнего палеолита встречается уже весь набор предметов и следов форм поведения, свойственных современным людям.
Самая известная форма первобытного искусства, конечно, наскальная живопись.
Первый и сразу самый выдающийся образец обнаружил испанский юрист Марселино де Саутуола. Однажды в 1879 г. он пошел погулять со своей дочкой Марией (как ее еще могли звать в Испании?) в пещеру Альтамира. Строго говоря, пещера была известна и раньше, но Мария первая догадалась посмотреть на потолок и (само собой, по-испански) закричала: “Toros! Toros!” – после чего М. де Саутуола до конца жизни – восемь лет – безуспешно доказывал, что это не он нарисовал те десятки бизонов, оленей и кабанов, что украшают своды Альтамиры. Лишь новые находки пещерной живописи в пещерах Франции реабилитировали (правда, посмертно) упорного первооткрывателя.
Ученым XIX века было трудно поверить, что допотопные охотники могли так здорово изобразить животных. А качество рисунков и вправду удивительное. Ведь звери нарисованы мало того что в натуральную величину и с почти идеальным соблюдением пропорций, так еще и в движении. Несколько животных имеют пять ног: с первого взгляда в изобилии линий и пятен это не бросается в глаза, со второго кажется ошибкой или наложением двух рисунков. Но если рассматривать композицию в темноте при дрожащем свете жирового светильника, когда тени мечутся по стенам, то звери “оживают”, а пятиногие начинают “двигать ногами” и “бежать”. Даже на современного человека, выросшего на бесчисленных картинках, мультиках и фильмах, это производит впечатление, что уж говорить о троглодитах.
Альтамира – величайшая, но не древнейшая палеолитическая галерея. В другой испанской пещере – Нерха – датировки слоев под рисунками рекордны: 42,3–43,5 тыс. лет назад. Сами изображения загадочны: изогнутые вертикальные и прямые горизонтальные красные линии на сталактите больше всего похожи на молекулу ДНК в школьном исполнении, но, думается, призваны были изобразить тюленей. Кстати, великая древность нерхских тюленей позволила предположить, что их нарисовали не кроманьонцы, а неандертальцы, но пока эта смелая гипотеза остается лишь поводом для эффектных заголовков в прессе и хорошим обоснованием выбивания грантов.
Первое искусство. Наскальное искусство изучается уже больше ста лет, однако до сих пор в этой области археологии существовал грандиозный пробел – у пещерных рисунков не было датировок. Они зависали параллельно верхнепалеолитическим культурам, вне связи с чем-либо. Археологам приходилось отдельно обсуждать каменный инвентарь и отдельно – изображения на стенах. Лишь в редких случаях перекрывания рисунков отложениями или обнаружения пигмента в слоях можно было предположить время создания росписей. Даже последовательность художественных традиций приходилось угадывать исходя из логики “от простого к сложному” и из типологии изображений. Новые исследования существенно уточняют представления о развитии сознания наших предков. Англо-испанская группа исследователей датировала целый ряд наскальных изображений из нескольких испанских пещер (Pike et al., 2012). Торий-урановым методом был определен возраст минеральных натеков под и над древней краской. Таким образом, были получены минимальный и максимальный возраст рисунков. Результаты вышли замечательные. Возраст росписей Альтамиры – едва ли не самого известного “Эрмитажа” палеолита – существенно вырос в сравнении с прежними представлениями. Доселе обычно приводились радиоуглеродные датировки в 18 тыс. лет назад, живопись Альтамиры считалась принадлежащей мадленской культуре. Теперь же возраст “ключеподобного символа” составил 35,6 тыс. лет назад – времена ориньяка. Одну из красных лошадок художник изобразил 22 тыс. лет назад – времена солютре. В Тито-Бустильо невнятная антропоморфная фигура на сталактите была нарисована от 37,7–35,5 до 29,6–25,2 тыс. лет назад, согласно двум разным методам. Радиоуглеродные даты отложений на дне пещеры позволяют склониться к более древнему возрасту рисунков. В Эль-Кастильо некая неведома зверушка была намалевана черной краской более 22,6 тыс. лет назад. Раньше археологи подобные черные изображения относили к мадлену, оказывается – не моложе солютре. Более того, красный диск был нарисован на стене той же пещеры между 36 и 34,1 тыс. лет назад, в конце ориньякской эпохи. Два отпечатка рук имеют возраст более 24,2 и более 37,3 тыс. лет назад. Мало того: красный диск на той же панели, что и более древний отпечаток руки, имеет минимальный возраст 40,8 тыс. лет назад, так что вся композиция могла быть созданной именно в это время. Ранее во французских пещерах радиоуглеродом получали даты от 22 до 29 тыс. лет назад. Таким образом, древность такого универсального символа выросла сразу на треть, а то и вдвое! Авторы статьи напоминают, что древнейшие радиоуглеродные даты наскального искусства во французской пещере Шове – 35,3–38,8 тыс. лет назад. Очень важно, что теперь мы имеем датировки самих рисунков, а не слоев под ними. Таким образом, новые цифры подтверждают, что искусство действительно появилось в Европе синхронно с первыми кроманьонцами. Стало быть, первые кроманьонцы действительно были разумны! Давно было известно, что с ними в Европе появились украшения, не так давно ко времени появления кроманьонцев приурочились древнейшие флейты, теперь – наскальная живопись. Все элементы художественной культуры появились в Европе с Homo sapiens sapiens, до него их не было. С другой стороны, исходя из датировок, не исключено и участие неандертальцев в украшении подземных чертогов. Впрочем, было бы странно, если десятки тысяч лет неандертальцы ничего не изображали, а при появлении кроманьонцев стали лепить по стенам красные круги и отпечатки ладоней. Конечно, со стресса чего не сделаешь, но думается, что его у неандертальцев хватало и в предыдущие времена. Другая древнейшая живопись обнаружилась в семи пещерах Марос на индонезийском острове Сулавеси (Aubert et al., 2014). Здешние рисунки были известны уже давно, но никто не предполагал их почтенный возраст, они считались заведомо голоценовыми. Тем больше оказалось удивление исследователей, когда прямое датирование натеков поверх изображений методом урановых серий дало запредельные цифры: 44 тыс. лет назад (хотя и с очень большой погрешностью) для фигуры неопределенного животного, 40,7 (минимально 39,9) тыс. лет назад для древнейшего отпечатка руки, 39,67 тыс. лет назад для другого отпечатка, 36,9 (минимально 35,4) тыс. лет назад для рисунка бабируссы и от 34,98 до 17,77 тыс. лет назад для множества других отпечатков рук. На Сулавеси неандертальцев сроду не было, так что тут никто не сомневается в сапиентном авторстве художеств. С другой стороны, раз пращуры австралийских аборигенов попали на свою новую родину ранее 43 тыс. лет назад, а аборигены имеют свое искусство, то существование его в доисторической Индонезии более чем логично. Мы можем гордиться своими предками! Вечное, доброе, прекрасное несли они с собой, хотя бы и в виде красных кружков и отпечатков рук!Пещерная живопись известна в самых разных местах. Наиболее известные пещеры с верхнепалеолитическими росписями – французские Шове, Ляско, Пеш-Мерль, Нио, Фон-де-Гом и Куссак. Наша страна в этом смысле небогата, лучше всего сохранились рисунки мамонтов, лошадей и носорогов в Каповой пещере (она же Шульган-Таш) в Башкирии. Есть они и на других континентах: в Кварте в Египте, в Джинмиуме, Каролте, Малангине, Пильбаре и Кениффе в Австралии, в Тока-ду-Бокерао-да-Педра-Фурада, Гарринчо, Сантана-ду-Риачо и многих других местах в Бразилии.
Росписи бывают очень разные – от примитивных пятен до многоцветных изображений, иногда они процарапаны на стене, изредка сочетаются обе техники. Обычные персонажи верхнепалеолитического искусства – копытные, охотничья добыча: лошади, бизоны, кабаны, олени. Гораздо меньше известно рисунков и гравировок опасных животных – мамонтов, шерстистых носорогов, медведей, львов и гиен. Редки изображения птиц, змей и рыб, единичны – насекомых и растений. Складывается впечатление, что рисовали то, что чаще имели перед глазами, по универсальному принципу “что вижу, то пою”. Регулярно встречаются некие геометрические знаки, пятна, полосы, интерпретация которых – любимый спорт как любителей, так и профессионалов.
Самый ходовой вариант – отпечатки человеческих рук. Их делали двумя основными способами: либо шлепали накрашенной краской ладонью по стене, либо обдували охрой из трубочки стену вокруг прижатой руки. Сплошь и рядом на таких отпечатках не хватает фаланг пальцев или даже целых пальцев. Судя по четкости изображений, это были действительно люди с ампутациями, а не поджимавшие пальцы. То ли травматизм был невероятно распространен (если задуматься, выделка каменных орудий гарантирует регулярное отбивание пальцев), то ли виной некие обряды. Скажем, среди южноафриканских народов и североамериканских индейцев ампутация фаланги пальца была частью траура, а тонганцы делали это в лечебных целях: они считали, что болезнь прибежит на рану и избавит от себя остальное тело.
Художники верхнего палеолита не очень любили портреты. Отчего они столь реалистично изображали животных и так схематично – человека? Искусствоведы и философы вот уже полтораста лет соревнуются в объяснениях, но мы честно признаемся – это науке неизвестно.
Крайне редки композиции с участием более чем одной фигуры. Напротив, совершенно обычное дело, когда рисунки накладываются на уже существовавшие ранее.
Минутка фантазии. Реалистичность многих пещерных полотен породила смелую гипотезу о неразвитости мышления в ту дремучую эпоху (Humphrey, 1998). Она основана на сравнении лучших образцов верхнепалеолитического искусства из пещер Ляско и Шове с рисунками девочки Нади, больной аутизмом. В возрасте от трех до шести лет она нарисовала немало рисунков (причем ее никто этому не учил), обладающих совершенно нетипичными для дошкольников свойствами: соблюдением пропорций и перспективы, реалистичностью, сюжетностью. Некоторые аналогии пещерным изображениям просто удивительны. Предполагается, что качество рисунков Нади вызвано именно аутизмом: больные им замкнуты, не общаются с другими людьми, не разговаривают и воспринимают мир не через символы, а напрямую через ощущения, они буквально принимают мир таким, каков он есть. Надя выучила первые слова в шесть лет. Обычный ребенок имеет символ, скажем, лошади – слово “лошадь”, для него достаточно нарисовать достаточно невнятные пятна и полоски и принять их за изображение лошади – и ему этого достаточно, и неважно, что каракулька отличается от оригинала. А ребенок-аутист не имеет в голове символа лошади, поэтому он рисует ее максимально достоверно. Отсюда вытекает неутешительный для кроманьонцев вывод: судя по великой реалистичности их творений, уровень абстрактного мышления у них был если и не как у современных аутистов, то уж точно сильно пониженный. Не исключено, что и речи-то у них не было. А вот в конце верхнего палеолита нарастает схематизм, звери изображаются грубыми прямыми линиями, пропорции нарушаются, появляется много неясных геометрических символов – и вот это, по мысли Н. Хамфри, как раз является доказательством появления и развития речи и абстрактного мышления. Гипотеза оригинальная, смелая и красивая. Жаль только, что у нее слишком много “дырок”: как древнейшие верхнепалеолитические, так и рисунки детей-аутистов бывают куда уж более абстрактными, а эпоха Возрождения явно не сопровождалась утерей языка.Часто росписи расположены в самых труднодоступных частях пещер, иногда к ним надо проникать даже через сифоны с водой. Обычно это узкие и низкие ходы, иногда даже ямы. Сей факт может быть интерпретирован по-разному, но одним из самых обоснованных является мнение археолога Я. А. Шера: возможно, рисунки вовсе не предназначались для рассматривания (Шер, 2009). Это могли быть отдельные спонтанные всплески творчества одаренных людей, которых переполняли чувства, например после некоего экстраординарного события. А соплеменники могли не понять и не оценить, если бы человек начал выражать свои эмоции среди них. Вот и искали первые творцы уединения в потаенных уголках темных пещер. Посему реконструкции, на которых все племя при ярком свете лампад пляшет перед художником, гордо выводящим на стене очередного бизона, – явный вымысел.
Лучший пример в подтверждение гипотезы Я. А. Шера – знаменитая сцена из пещеры Ляско: раненый бизон бодает падающего человека, а под ногами у них валяются сломанное копье и палка с птичкой на конце. Кое-кто увидел в птичке даже душу убиенного, улетающую на небо, но скорее это просто резное украшение на конце копьеметалки. Левее есть еще рисунок носорога, но он, кажется, не имеет отношения к сцене с бизоном и охотником. Картина нарисована в очень неудобном месте и, видимо, не предназначалась для общественной оценки. Возможно, ее создатель стал свидетелем ужасной гибели друга, и крик души выплеснулся на стену в бессмертной сцене.
В пользу этой концепции говорит и тот факт, что стили в разных пещерах и даже в разных частях больших пещер совершенно разные. Преемственности в творчестве не было. Разве что далекий потомок мог ориентироваться на уже готовые образцы, но не существовало художественных школ и течений. Искусство возникало много раз независимо и наверняка по разным конкретным поводам.
Впрочем, всегда можно найти исключения. Уникальный случай – наскальные гравировки в португальской долине Коа. Рисунки тут создавались десятки тысяч лет подряд, они относятся к палеолиту (лошади, козлы, туры), неолиту, энеолиту, железному веку (рыцари с мечами и копьями на конях), XVII веку (изображения Христа и кресты с надписями). Двадцатитысячелетняя традиция продолжалась вплоть до 1950 года, когда сын местного мельника среди прочего накарябал на скалах корабли, поезда и самолеты. Ясно, что это не была прямая преемственность от учителя к ученику, но каждый следующий творец видел предыдущие образцы и в какой-то степени им подражал.
Кстати, о медведях и искусстве… Пещерные медведи тоже очень любили царапать стены пещер. Не вполне очевидно, зачем они это делали, но главное, что они украсили немало стен бороздами. По незнанию несложно принять эти царапины за гравировки в “макаронном стиле”.Всемирно известны палеолитические “Венеры” – фигурки, как правило, женщин и почти всегда с преувеличенными женскими чертами. Древнейшая из таких фигурок и самая гипертрофированная найдена в Хеле-Фельс в слое с датировкой 35 тыс. лет назад (Conard, 2009), но обнаружены они по всей Европе и даже далеко за ее пределами. Классика жанра – “Венеры” из Виллендорфа в Австрии и Брассемпуи во Франции, барельеф “Венера с рогом” из-под французского навеса Лоссель. Большая часть “Венер” обнаружена на стоянках костенковско-авдеевской культурной общности – в Авдеево, Костенках, Зарайске, Гагарино (Гвоздовер, 1985). Изготавливались они из самых разных материалов – бивней мамонтов, костей, оленьих рогов, камня, в Дольни-Вестонице найдена даже керамическая – из обожженной глины.
Примечательно, что почти всегда фигурки “неодеты”, в крайнем случае намечены пояски, треугольные “фартуки” сзади и браслеты на руках. Более того, в большинстве случаев голова безлика, просто в виде гладкого шарика, иногда ее и вовсе нет; действительно, на фоне прочей фигуры лицо – не самая существенная деталь. Зато иногда очень тщательно проработан головной убор, причем он всегда индивидуален. На самом деле, ведь и для многих современных женщин прическа гораздо важнее лица. Кстати, неповторимость “Венер” наводит на мысль, что это портреты вполне конкретных женщин, а не абстрактных “богинь плодородия”.

Рис. 38. Образцы искусства верхнего палеолита.
Все, кто видел “Венер”, обращают внимание на их сказочно увеличенные бедра. Что это – воплощенный в искусстве светлый идеал или протокольное воспроизведение суровых реалий? Конечно, еще с открытия первых образцов в XIX веке возникла мысль, что дело в стеатопигии – варианте жироотложения, когда оно резко усилено именно на бедрах и ягодицах. Стеатопигия периодически встречается среди современных женщин любой популяции, но особенно часта у южноафриканских готтентоток и андаманских аборигенок. В расистском XIX веке этот факт истолковывался вполне однозначно: на фигурках примитивных людей отражен примитивный признак, который сохранился ныне у самых примитивных из современных рас. Однако сейчас ясно, что оценка прогрессивности – примитивности отдельных черт – занятие почти безнадежное. Но от смены интерпретации сам факт никуда не исчезает; думается, верхнепалеолитические красавицы немало радовали глаз первобытных ухажеров своими обворожительно-грушевидными обводами.
Кстати, о стеатопигии… Стеатопигия, по-видимому, адаптивный признак для малорослых популяций, живущих в тропическом климате. Из акушерской практики известно, что чем меньше размер тела женщины, тем больше риск возникновения осложнений при беременности, родах и выкармливании ребенка. Одна из важнейших характеристик – именно вес, то есть величина жироотложения, ведь это – запас питательных веществ. В первобытные времена и у современных охотников-собирателей жироотложение у женщин приобретало жизненно важное значение. Но в жарком климате запасать жир по всей поверхности тела тоже опасно – недолго схватить тепловой удар. А вот на ягодицах и бедрах ничего жизненно важного не перегреется, тут жирок наращивать можно сколько угодно. И женщины наращивают, да так, что некоторые особо выдающиеся представительницы готтентотов сесть могут, а вот встать без посторонней помощи – уже никак.Исключением из общих правил являются статуэтки, найденные в Иркутской области на стоянках Буреть и Мальта. Эти “Венеры” – настоящие стройняшки, вернее было бы назвать их “Барби”. Некоторые к тому же, видимо, вообще мужчины – “Кены”. Другая особенность прибайкальских фигурок – они изображены в меховой одежде, причем наглухо задраенной, с капюшоном на голове. Видимо, Сибирь даже на фоне ледниковой Европы была все же Сибирью. Поскольку рельефность фигуры за одеждой не очень-то видна, сибиряки старательно делали лица.
Другой экзотический вариант – фигурка из Брно. Тут в необычном погребении – предположительно, шамана – была найдена марионетка мужчины из бивня мамонта, чьи голова, ноги и руки прикреплялись подвижно. У него, кстати, тоже качественно выполнено лицо.
В Хелештейн-Штадель и Хеле-Фельс найдены фигурки с телом человека и головой львицы. Это вообще интересный феномен – на наскальных рисунках и гравировках верхнего палеолита тоже регулярно встречаются человекозвери: “шаман” с медвежьими лапами, оленьими рогами и лошадиным хвостом из Труа-Фрер, человек с флейтой и бизоньей верхней частью тела оттуда же, люди с бизоньими головами в Шове и Габиллу, “чертики” с двумя ногами и головами серн, гравированные на “жезле начальника” из пещеры Тейж.
Впрочем, гораздо чаще, как уже говорилось, изображались животные. Резные из бивней и камней фигурки мамонтов, лошадей, бизонов и птиц известны из десятков пещер и стоянок. Смысл их неочевиден. С одной стороны, обычно археологи и искусствоведы склонны расценивать их как ритуальные предметы. С другой – почему бы им не быть банальными украшениями или игрушками? Доказать что-то удается крайне редко.
Минутка фантазии. На некоторых изображениях голов лошадей – как на наскальных рисунках, так и на резных фигурках – тщательно выделены полосы вокруг и вдоль морды. Например, они видны на гравировках из Мас-д'Азиль, фигурах оттуда же, а также из пещер Аруди, Истуриц и Грот-д'Энлин. Некоторые особо впечатлительные энтузиасты считают, что это уздечки. А самые одаренные даже видят в изображении шерсти на боках попоны и седла. Неужели кроманьонцы Франции одомашнили лошадей уже в верхнем палеолите?! На самом деле, лошадей они вправду очень любили, но преимущественно в жареном виде. Достоверные же древнейшие свидетельства приручения этих замечательных животных относятся лишь к бронзовому веку Северного Казахстана.Приятное исключение – статуэтка бизонихи из подмосковного Зарайска. Ее нашел в 2001 году С. Ю. Лев (Амирханов и др., 2009). Уникальность находки не только в удивительном качестве фигурки – на ней сделаны объемные глаза, уши, рога, копыта, черточками намечена шерсть, пропорции соблюдены идеально, – но и в археологическом контексте. Статуэтка лежала в более чем полуметровой глубины яме, у стены, причем почти целиком была скрыта в закопушке – заметном расширении дна в сторону. Фигурка была помещена на треугольный подиум из светлого песка, предусмотрительно оставленный при рытье ямы, под шеей бизона лежала мелкая кость, по соседству – кусок небольшого ребра, зуб мамонта и лапка песца, а засыпано все это землей, смешанной с охрой. Кто-то намеренно отломал статуэтке левые ножки и истыкал левый бок в области сердца, а потом покрасил правый бок красной охрой. Напрашивается мысль о ритуальном “убийстве” и “обездвиживании”. На настоящий момент бизониха из Зарайска является самым мощным доказательством применения охотничьей магии в верхнем палеолите.
Во французском Тюк-д'Одюбе кроманьонцы сделали глиняные фигуры бизонов, налепленные на камень. Резные головки бизонов, глухарей и косуль украшают концы “жезлов начальников” и копьеметалок.
Кстати, об оружии… Люди верхнего палеолита, судя по всему, еще не знали лука и стрел. Главным оружием были копья. В отличие от более древних видов людей, сапиенсы умели делать приставные наконечники со специально подготовленными для крепления основаниями – суженными черешками или выемками. Но с деревянным ли или каменным наконечником – копье все равно слишком далеко не метнешь. А быстроногая и чуткая добыча не дремлет. Посему изворотливый ум сапиенсов родил копьеметалку – палку с крючком на конце, в который вставляется копье. Копьеметалка удлиняет руку при броске, увеличивает силу и дальность полета копья в разы. Средний бросок с помощью этого нехитрого приспособления – полсотни метров, на этом расстоянии сохраняется убойная сила. Но при желании можно зашвырнуть дротик и на 230 метров! Древнейшая известная копьеметалка – 21 тыс. лет назад – найдена в Комб-Санье I на юго-западе Франции. В палеолитической Европе известная область применения этих орудий была не так уж велика – в Пиренеях и Швейцарии. На самом деле она наверняка была намного шире, ведь мы знаем только те копьеметалки, что делались из рога или бивня. А большинство наверняка изготавливалось из дерева, так что они просто не сохранились. Что характерно, до XIX века копьеметалки дожили лишь в нескольких местах планеты: австралийские аборигены называли их вумера, индейцы Центральной Америки – атлатлями. Использовались они также папуасами Новой Гвинеи, нивхами Сахалина, эскимосами, алеутами и индейцами северо-западного побережья Северной Америки. Интересно, что многие из этих групп в принципе знали лук со стрелами. Но майя, к примеру, считали его оружием трусов и принципиально игнорировали. Чтобы копье летело более-менее прицельно, хорошо бы, чтобы оно было прямое. Но вот беда – прямую палку стоит еще поискать, стволы и ветки деревьев растут вкривь и вкось, как попало, без учета охотничьих потребностей. Значит, необходимо исправлять это безобразие. Пилорамы у кроманьонцев не имелось, а кривые палки надо было как-то делать годными для кидания. Для этого находчивые мастера использовали выпрямители копий. В широкой развилке оленьего рога сверлится дырка; несколько таких штуковин втыкаются в землю, а в их отверстия вставляется распаренная палка. Она высыхает и становится если и не идеально прямой, то, во всяком случае, прямее, чем была. Такие выпрямители часто украшались затейливой резьбой – изображениями животных и орнаментом. Полезная, красивая и вообще ценная вещь часто помещалась в погребения. Поэтому в археологии за выпрямителями закрепилось название “начальнический жезл”. Вообще же весьма сомнительно, чтобы у кроманьонцев были начальники хоть в каком-то виде. Этнографические аналоги таких выпрямителей известны у эскимосов, которые делали их из моржовых клыков. Удивительно, но верхушки некоторых эскимосских выпрямителей украшены двумя звериными головками, смотрящими в разные стороны, – абсолютно аналогично образцам из мадленского французского Ложери-Басс! Вряд ли художественная традиция протянула 15 тыс. лет; видимо, это один из лучших примеров культурной конвергенции. Изготавливали кроманьонцы и роговые гарпуны с зазубринами. Часть из них использовалась, видимо, не для рыбалки, а для охоты на оленей.Любили кроманьонцы индивидуальные украшения. Сплошь и рядом встречаются самого разного рода бусы из раковин, подвески из камней и зубов. Особенно шикарно были украшены люди из Сунгиря во Владимире: вся их одежда была расшита тысячами костяных бусин и сверлеными песцовыми клыками, руки были охвачены множеством браслетов из пластинок из бивня мамонта. Благодаря тому, что охра скопилась в складках одежды погребенных, археологи полностью восстановили костюм людей, живших более 30 тыс. лет назад. В моде были глухие рубахи, штаны, сшитые с обувью типа мокасинов, или высокие сапоги, плащи, шапки или налобные повязки и капюшоны.
Оригинальностью блеснул некий мастер из французского грота Истуриц: он изготовил подвеску из человеческого моляра, в корне которого просверлил дырку для ношения на веревочке. Судя по зашлифованности краев, этот амулет служил долго.
С самых ранних этапов появляются музыкальные инструменты. Древнейшие флейты обнаружены в немецких пещерах Хеле-Фельс – 40 тыс. лет назад (Conard et al., 2009), Гейссенклестерле – 30–32 тыс. лет назад и Фогельхерд, а также французском гроте Истуриц – 18–30 тыс. лет назад. Здорово, что они сделаны разными способами: одни из полых птичьих костей, в которых только оставалось провертеть дырочки, другие гораздо сложнее – из двух выточенных из бивня мамонта желобков, которые складывались в трубочку.
Жители французской пещеры Мас-д'Азиль (в честь нее названа одна из самых известных культур границы верхнего палеолита и мезолита) были очень творческими людьми. Чего они только не сделали! А в числе прочего – из сломанного выпрямителя копий изготовили оригинальный инструмент – музыкальный скребок. Это кость с зазубринами по обоим продольным краям; если проводить по ним какой-нибудь палочкой, получается ритмичный сухой треск.
В другой французской пещере Лялинд найдена гуделка из рога северного оленя: плоская широкая пластина, суживающаяся к обоим концам. На одном конце есть отверстие для веревки; если вертеть такую штуку на веревке над головой, получается загадочный потусторонний звук. Гуделка из Лялинд окрашена охрой и украшена резными линиями и прямоугольниками. Такие же в точности приспособления до сих пор используют австралийские аборигены.
В некоторых пещерах на кальцитовых натеках обнаружены следы ударов – при должном подходе они издают звон.
Целый музыкальный ансамбль раскопали археологи на украинской стоянке Мезин с датировкой 18 тыс. лет назад. Когда исследователи обнаружили огромные останки мамонтов – челюсть, лопатку, длинные кости, украшенные охряными геометрическими узорами, они уже обрадовались – не каждый день находишь подобное. Потом они обратили внимание, что на костях имеются следы сильных ударов. Неужели жестокие кроманьонцы забивали мамонтов насмерть? Вряд ли. Археологи осторожно попробовали сами постучать: оказалось, кости звучат – и вполне мелодично, ведь они полые внутри. Очевидно, перед нами древнейший ансамбль народных музыкальных инструментов.
Из этнографии мы знаем, что у близких к природе народов музыка редко бывает сугубо развлекательной, почти всегда она исполняется в ритуальных целях.
В отличие от неандертальцев, о духовной жизни которых мы почти ничего не знаем, в отношении кроманьонцев у нас нет никаких сомнений, что они проводили некие обряды. На многих наскальных рисунках животные истыканы копьями – нарисованными черточками, иногда со старательно выведенными наконечниками. Но ритуальный характер таких художеств весьма спорен. Скорее всего, это не рисунки, призванные обеспечить успешную охоту, а напротив – воспоминания о ней. Впрочем, достаточно голословные рассуждения тут явно превалируют над твердо установленными фактами.
Гораздо важнее находка во французской пещере Шове, в которой люди жили 28–30 тыс. лет назад. Тут найден череп медведя, установленный на краю большого призматического камня. Обитатели пещеры Монтеспан 20 тыс. лет назад пошли еще дальше: они сделали метровую глиняную фигуру медведя и приделали к нему настоящую медвежью голову (череп был найден между передних лап). Не исключено, что прилагалась и шкура. Все “чучело” испещрено множеством ударов копий. Вокруг в глине сохранились следы босых ног, причем, судя по небольшим размерам, подростков. Видимо, тут проводилась инициация – посвящение во взрослую жизнь. Эффекта действу добавлял тот факт, что “чучело” расположено в полутора километрах от входа в пещеру! То есть для прохождения инициации испытуемым надо было немало прошлепать в полной темноте. Ощущения от подземного путешествия и “охоты”, очевидно, были богаче некуда. Кстати, в Монтеспане имеются еще три глиняных рельефа неких зверей – предположительно, львов – без голов, на которых тоже есть следы ударов копьями. Кроме того, в глинистом наносе на стене выгравированы кони.
Инициацию, вероятно, проходил и тринадцатилетний мальчик из Сунгиря (Homo sungirensis…, 2000). М. В. Добровольская, проведя специальные анализы, показала, что в его диете было удивительно мало мяса, зато много растений и, по всей видимости, беспозвоночных. Это странно для человека со стоянки охотников. Взрослый мужчина и девочка, как и положено, ели мясо от души. Почему бедному ребенку оно не доставалось? Инициации многих народов включают в качестве одного из испытаний пищевые запреты, чаще всего как раз на самые важные или престижные виды еды. Может, такая идейная голодовка и привела несчастного к преждевременной гибели?
Впрочем, обитатели чешской стоянки Дольни-Вестонице были еще суровее. На лбах мужчин Дольни-Вестонице 11, 12, 13 и 16 имеются шрамы, смещенные несколько вправо от центра. Стандартное положение и однообразие указывают на явную неслучайность этих травм. Кроме того, подобных “украшений” нет ни на одном женском черепе и у подростков и детей моложе 18 лет. Видимо, шрамы были итогом символических трепанаций, производившихся только мужчинам около 18 лет (Медникова, 2004). Похожие обряды-операции делают в некоторых современных африканских племенах, например у боко или бангала в Конго.
Кстати, об инициациях… Инициации оформляют переход из некоего низшего статуса в высший. Чаще всего речь идет о возрастных инициациях. В том или ином виде они имеются у всех народов. Например, самый мягкий, совсем плюшевый вариант современной инициации детей – празднование Первого сентября. Особенно это касается первоклассников: “первый раз – в первый класс”, особая одежда, особая обстановка и настрой, нервничающие родители, непременные цветы – сакральные подношения таинственным учителям – служителям культа, линейка на школьном дворе, речи главной жрицы с верхней ступеньки школы – несомненно ритуального свойства, ибо непонятные, бессмысленные, торжественные и заунывные, первый символический урок… В более взрослом виде инициации обязательны в армии, тюрьме и пионерлагере. Причем, как и полагается, бывают инициации общественные, а бывают тайные, проводимые отдельно гораздо более узким кругом посвященных. Научная среда тоже пронизана идеей инициаций. Самый веселый вариант – “посвящение в археологи”, коему подвергается в любой археологической экспедиции каждый впервые участвующий в раскопках. Куда как более торжественна инициация – защита диссертации. Исследователь, принимаемый в научный цех, должен доказать свой “ученый статус”. Он должен написать талмуд немалой толщины (смысл которого многих волнует гораздо меньше, чем последующий за обрядом банкет), соблюдая абсурдные требования (необходимый элемент любого обряда – бессмысленность действий; показано, что чем больше противоречат здравому смыслу запреты и чем они жестче, тем прочнее и долговечнее исповедующий их культ), собрать десяток архиважных бумажек с подписями и печатями, организовать сборище жрецов, сделать доклад по строгой форме (определяемой более традициями, нежели писаным законом), ответить на вопросы (почти всегда сугубо ритуальные, ибо по сути диссертации всем присутствующим все понятно и без всяких защит). Жрецы торжественно читают свои мантры – отзывы и прочую занудную дребедень, “удаляются” на голосование (чаще всего оно сугубо символично, хотя обставляется бюрократией и официозом), главный жрец возглашает решение (очевидное для всех с самого начала). Засим следует ритуальное пиршество, где с защитившимся общаются уже совсем иначе, чем до обряда, – на равных. Конечно, современные люди стали чуть гуманнее и уже не занимаются откровенным членовредительством с выбиванием зубов и отрезанием частей тела, но обряд в идеале должен если и не ввести испытуемого в транс, то создать ощущение перехода на новую ступень.Ритуальная практика ярко проявилась в оформлении погребений. Если захоронения неандертальцев одинаковы и скучны, то кроманьонцы подходили к этому делу с душой и фантазией: почти все их погребения оригинальны. Как только первые сапиенсы не хоронили умерших – и на спине, и на боку, и на животе, даже сидя, в вытянутом положении, с подогнутыми ногами и плотно сложенными, прикрывая каменными плитами и мамонтовыми лопатками, без единой вещицы и с десятками предметов, часто засыпая охрой, целиком и частями, в одиночестве, по двое, по трое и до двух десятков в одной могиле, иногда с последующими перезахоронениями… Например, погребения в Монако, в ряде гротов Гримальди, представляют богатый спектр вариантов. Крайне разнообразны многочисленные погребения натуфийской культуры Ближнего Востока.
Показательно, что самые эффектные погребения в верхнем палеолите принадлежат подросткам, часто с врожденными отклонениями.
Например, на чешской стоянке Дольни-Вестонице среди множества прочих найдено тройное погребение Дольни-Вестонице 13, 14 и 15, датированное между 24 и 26,6 тыс. лет назад. Уникальная его особенность в том, что тут похоронены, видимо, два брата и сестра – примерно 17, 18 и 20 лет соответственно. Два брата лежали по сторонам, а сестра в центре. Все они, особенно девушка, имеют множественные и при этом редкостные патологии – откуда мы и знаем, что они были родственниками (Alt et al., 1997; Formicola et al., 2001). С большой вероятностью девушка страдала от ризомелической точечной хондродисплазии – очень редкого генетического заболевания. Кроме изменения пропорций костей и их искривления, а также странной внешности – уплощенное лицо, запавшая переносица, катаракта, ихтиоз, желтуха, – эта болезнь приводит к грубой задержке интеллектуального развития, мышечной гипотонии и судорогам. У Дольни-Вестонице 15 все это осложнялось травмами и ранними переломами рук. Очевидно, что такая личность привлекала особое внимание. Настораживает и то, что трое людей с такими специфическими чертами умерли одновременно.
В итальянском Арене-Кандиде обнаружено богатое погребение подростка примерно 15 лет. Скелет был засыпан красной, а под челюстью – желтой охрой, рядом были уложены аж четыре “жезла начальника”, в правой руке зажат 23-сантиметровый кремневый наконечник, материал для которого был добыт во Франции за 300 км от места погребения. Замечательны украшения – шапочка из раковин и оленьих клыков, браслеты и подвески. У юноши нет половины челюсти и части костей левого плеча, этот участок засыпан яркой желтой охрой. Возможно, на него напал медведь или же мы имеем тут пример “обезвреживания” покойника.
Другой скелет из той же пещеры – молодого мужчины из могилы 2 с датировкой 12 тыс. лет назад – имеет странную патологию: на его бедренных костях нет малого вертела. Видимо, это какая-то уникальная генетическая аномалия, не имеющая современных аналогий (Formicola, 1995). Ближайший, хотя далеко не точный аналог – X-сцепленный гипофосфатемический рахит, который, кроме прочего, проявляется в снижении слуха. Судя по усиленному костному рельефу, мужчина за свою недолгую жизнь успел немало потрудиться, физические нагрузки с детства у него были весьма приличные.
Наконец, самые известные погребения – в Сунгире. Раскопаны две могилы. В первой находился скелет крупного мужчины в самом расцвете лет, убитого дротиком в шею. Погребение, как уже упоминалось, уникально своим богатством, благодаря которому мы точно знаем все детали одежды. Что характерно, над могилой мужчины был положен еще один череп, возможно женский, без нижней челюсти.
Но еще грандиознее второе погребение двух детей, сделанное в центре большого жилища: мальчика тринадцати лет и девочки девяти. Они были уложены головами друг к другу, а по бокам обложены двумя выпрямленными бивнями мамонтов и одиннадцатью дротиками тоже из бивней. Непонятно, как эти копья и дротики были сделаны, аналогов им нет. Скелеты сопровождались массой прочих артефактов: три кинжала, несколько прорезных дисков из бивня, два кремневых ножа, костяная игла, другая под подбородком мальчика – для скрепления краев одежды, просверленная каменная галька и плоская скульптура лошади или сайгака, крупная костяная скульптура мамонта, три крупных когтя пещерного льва, два крупных выпрямителя из рогов северного оленя, два небольших стержня с отверстиями на конце. У левой руки мальчика лежала обломанная с концов человеческая бедренная кость, забитая охрой. В погребении нашелся также фрагмент нижней челюсти еще одного человека. Через несколько лет после упокоения детей над этой могилой был захоронен взрослый человек, но почему-то без головы. Выше уже было сказано, что мальчик питался как-то очень нестандартно – моллюсками или насекомыми (кроме того, у него, вероятно, был эхинококкоз). А девочка имела странный изгиб бедренных костей – вперед. При рахите кости изгибаются вбок, так что патология сунгирской девочки не имеет окончательного объяснения (Formicola et Buzhilova, 2004). Так что и тут мы имеем погребение двух странных детей.
Кстати, анализ изношенности скелета показал, что мальчик, несмотря на юный возраст, похоже, немало кидал копье, а девочка, во-первых, что-то без конца сверлила (кто-то же должен был делать те несколько тысяч бусин, что украшали одежду сунгирцев!), а во-вторых, носила на голове тяжести, придерживая их той же натруженной правой рукой (Homo sungirensis…, 2000).
В эпоху верхнего палеолита человек приручил волка, превратив его в собаку. Так человек начал сам активно влиять на процесс видообразования у животных, создав искусственный отбор. Кроме того, приручение животных означает новый уровень в развитии сознания: отныне человек смог общаться не только с себе подобными, но и с представителями других видов.
Место и время одомашнивания собаки бурно обсуждается. На звание древнейшего друга человека претендентов много. Некоторые кандидаты сошли с дистанции; например, череп со стоянки Костенки XVII оказался волчьим. Но немало и других. С отрывом лидирует дингоподобный зверь из Разбойничьей пещеры на Алтае: его возраст – не менее 31,5, а возможно – даже 36,5 тыс. лет назад. Так что если Россия и не родина слонов, то, по крайней мере, родина собак. Правда, отсутствие археологического контекста не дает привязки к людям. Куда как более собачны собаки из бельгийской пещеры Гойе – 31,68 тыс. лет назад (Germonpré et al., 2009), чешской стоянки Пшедмости – 29,5–31,5 тыс. лет назад (Germonpré et al., 2012), украинских Мезин – 18 тыс. лет назад и Межирич – 14–18 тыс. лет назад. Череп не то волка, не то собаки найден и на стояке Авдеево в Курской области – 20–21 тыс. лет назад, двух собак – на стоянке Елисеевичи 1 в Брянской области – 13,9 тыс. лет назад (Sablin et Khlopachev, 2002). Эффектное погребение щенка собаки с датировкой 12 тыс. лет назад обнаружено у головы женщины в Айн-Маллахе в Израиле; другие похороненные рядом с людьми собаки найдены на террасе стоянки Хайоним 10,5 тыс. лет назад.
Анализ ДНК древнейших барбосов из пещеры Гойе показал их резкую специфику и одновременно – разнообразие. Так что собаки могли быть приручаемы неоднократно, и не все допотопные шарики и жучки имеют прямое отношение к современным.
Некоторые специалисты вообще считают, что собака была приручена лишь в неолите, с появлением производящего хозяйства (Drake et al., 2015). Проблема в том, что на ранних стадиях одомашнивания собака вообще не обязана была отличаться от волков, и не факт, что мы можем морфологически или даже генетически уловить момент перехода. Кроме прочего, плейстоценовые волки наверняка сильно разнились от современных. Долгое сосуществование и конкуренция с человеком – а волки и люди занимают одну экологическую нишу – не могли не сказаться на серых (Власенко, 2012). С того момента, как люди вооружились, безнаказанно прийти, ухватить за бочок и потащить в лесок уже не получалось. Скорее уж кроманьонцы могли ухватить волка за бочок. Эволюция волков должна была идти очень быстро, не исключено – быстрее, чем у некоторых домашних собак, как это ни парадоксально.
Кстати, о лисах… Скорость морфологических изменений у одомашниваемых животных может быть фантастической. В 1959 г. в новосибирском Институте цитологии и генетики биолог Д. К. Беляев начал беспрецедентный эксперимент по приручению лис. Из пометов отбирались только те, которые проявляли минимальную агрессию к человеку, из их потомства – те, что подпускали людей, потом – которые давали себя погладить. В пятом поколении они уже не боялись людей и поддавались дрессировке, а в девятом лисы с писком бежали к людям, вертя хвостами, с восторгом лезли на руки и просили общения. Что характерно, отбор велся исключительно по поведению, внешний вид никак не учитывался. Тем замечательнее, что совершенно спонтанно лисы приобрели собачьи черты – пегую окраску, голубые глаза, широкую морду, висячие уши, хвост колечком, которым они стали вилять, некоторые стали даже лаять. Характерно появление белой звездочки на лбу – она типична для самых разных домашних животных. Такие отметины, равно как белые “манишки” и “носочки”, связаны с нарушением синтеза меланина – пигмента, имеющего, кроме прочего, важнейшую нейрорегуляторную функцию. Животные с повышенным содержанием меланина агрессивнее обесцвеченных; спокойнее всех альбиносы. Благодаря опыту Д. К. Беляева мы можем предположить, что приручение собаки потенциально могло свершиться практически мгновенно – на протяжении жизни одного человеческого поколения. А отличительные собачьи признаки могли возникать много раз заново, раз уж они проявились даже у лис.Около 10 тыс. лет назад последние ледники растаяли. Солнышко согрело озябшую планету, а человечество вступило в новый этап своей истории. Кое-где, конечно, ничего особо не поменялось, и счастливые дикари продолжали гоняться кто за зебрами, кто за лосями. Но на Ближнем Востоке еще в конце плейстоцена лани закончились и людям пришлось переходить к активному собирательству диких злаков. Натуфийская культура замечательна развитием полного сельскохозяйственного инвентаря и уклада – серпов, зернотерок, зернохранилищ, постоянных поселений – при отсутствии собственно земледелия. Население росло, самопроизвольно растущих нив на всех уже не хватало, приходилось их охранять. Отсюда недалеко и до культивации. Всего несколько мутаций, обеспечивающих неосыпание семян, непрочное присоединение цветковых чешуй и одновременное прорастание, отделяют дикую пшеницу от культурной. Борьба с засухами и наводнениями закономерно приводит к рытью каналов. Большие земляные работы требуют организации – тут неизбежно возникает какая-никакая власть. Если где-то скопилось много всего вкусного, обязательно найдутся халявщики или голодные соседи, которые попробуют отнять добро силой, – появляются войны и оружие (как для нападения, так и защитное), стены и башни. Рост населения и производства порождают бюрократию, учет, контроль и письменность. Вот уж и все признаки цивилизации налицо!
Одно закономерно вызывает другое. Посему не стоит удивляться, что на территории так называемого Плодородного полумесяца, охватывающего по долинам Нила, Тигра и Евфрата бесплодную Сирийскую пустыню, все эти грандиозные изменения – от охотников-собирателей до шумерских городов – свершились всего за несколько тысяч лет.
Заря нового мира. На самой границе плейстоцена и голоцена мир претерпел колоссальные изменения. На иракской стоянке Зави-Чеми-Шанидар раскопан слой с так называемым высокогорным протонеолитом, или культурой карим-шахир; отложения датированы примерно 10 тыс. лет назад (Zeder, 1999). Люди построили тут круглые хижины четырехметрового диаметра, а также одно большое каменное круглое строение, имевшее, вероятно, религиозно-ритуальное назначение. Судя по крупным подземным ямам-хранилищам, жители обосновались тут прочно и надолго. Впрочем, оседлость населения была относительной: люди по сезонам перекочевывали в те места, где было больше еды, и жили там подолгу. В Зави-Чеми-Шанидар жили охотники-собиратели, очень активно собиравшие злаки. Об этом свидетельствуют большие примитивные каменные мельницы и зернотерки, а также изотопные анализы человеческих костей. Найдены и сами зерна злаков, хотя неизвестно, были ли они дикие или окультуренные. Среди украшений обнаружены даже медные бусы – едва ли не древнейшие металлические изделия в мире. Обсидиан для орудий доставлялся сюда из района озера Ван в Анатолии. Самым выдающимся достижением шанидарцев было приручение овец (Perkins, 1964). Свидетельства одомашненности косвенны, но многочисленны. Во-первых, найдены кости только молодых овец; возможно, на охоте ягнят не убивали, а приносили на стоянку и выращивали. Во-вторых, соотношение овец к козам примерно семь к одному, тогда как в более ранних слоях расположенной неподалеку пещеры Шанидар коз больше, чем овец, да и природные условия окрестностей более подходящи для коз. Выходит, преобладание овец в Зави-Чеми-Шанидар не отражает особенностей распределения диких копытных. В-третьих, кости коз принадлежат особям большего возраста, чем кости овец, из чего можно сделать вывод, что овец выращивали, тогда как коз ловили диких. Стоит отметить, что в верхних слоях пещеры Шанидар ситуация с костями ягнят такая же, как в Зави-Чеми-Шанидар. Исследования внутренней структуры костей овец из Зави-Чеми-Шанидар показали различия между предположительно дикими и домашними формами (Drew et al., 1971, 1973). Конечно, эти выводы не избежали острой критики, но прочь сомнения – ведь тут или в соседней долине, но люди поднялись на новый уровень культуры. Кстати, в протонеолитическом слое Зави-Чеми-Шанидар найден грунтовый могильник с 28 одиночными погребениями, из коих 26 были совершены на каменной платформе. Могильники с большим количеством людей типичны и для натуфийских, и для ранненеолитических стоянок более южных областей. Очевидно, население становилось все более и более многочисленным. Люди из Зави-Чеми-Шанидар относятся к грацильному узколицему варианту, совсем непохожему на замшелые рожи предков-дикарей, – новые лица встречали зарю новой жизни!Всю нашу цивилизацию можно представить как череду преодолений сырьевых кризисов. Охотники съели ланей – отправились собирать дикие злаки; собрали все злаки – научились их выращивать; истощили почвы – стали рыть оросительные каналы; засолили безмерной мелиорацией все земли – расселились на север; вырубили все леса – пришлось копать уголь; наметилась нехватка угля – принялись жечь нефть и газ; недостаточно и их – изобрели ядерные реакторы. Проблема нынешнего этапа цивилизации в том, что теперь людям уже некуда расселяться и нет идей, на какой бы еще новый источник энергии перейти. До сих пор либо были более-менее свободные территории с неиспользованными ресурсами, либо люди принимались за новые ресурсы. Ныне же многие начинают алчно и нервно поглядывать на Антарктиду, глубоководные зоны океанов и даже на Луну. Что-то нас ждет впереди?..
Эпилог. Пан или морлок: биологическое будущее человека.
Как прекрасно знают сценаристы и режиссеры, хорошая история в конце должна иметь зачин для продолжения. Фразы от банальных “Продолжение следует…” до поэтичных “Вставала заря нового дня…” или залихватских “То ли еще будет!” обязательно должны украшать финал, чтобы он не выглядел фатальным.
С эпохи верхнего палеолита до современности эволюционные изменения у человека не успели накопиться в достаточном количестве. Поэтому сплошь и рядом приходится слышать и читать, что биологическая эволюция с появлением современного вида человека прекратилась, уступив место социальной. Однако факты говорят о продолжении биологической эволюции и в наши дни, просто масштаб времени недостаточен для появления значительных изменений морфологии. На самом деле, скорость изменений вряд ли поменялась. Ведь если мы возьмем, к примеру, афарских австралопитеков и эректусов, то мы увидим между ними существенную разницу. Но внутри тех и других хронологические изменения проследить будет гораздо труднее. С точки зрения гейдельбергенсисов, на них тоже эволюция остановилась, ведь те из них, что жили с интервалом в 50 тысяч лет, не очень-то различались. Эволюция – медленный процесс. Но и остановиться она не может. Статистика не соврет: со времени верхнего палеолита изменения морфологии все же были – сократились размеры челюстей и зубов, ослаб надбровный рельеф, округлился и заметно уменьшился затылок. Все эти различия не тянут на видовой уровень, но все же они есть. Те морфологические комплексы, что появились на изолированных территориях (учитывая, что изолированным может быть и маленький остров, и целый материк), принято называть расами. Им посвящен отдельный раздел антропологии – расоведение.
Изменения коснулись всех расовых групп. За последние тысячи лет капитальным образом поменялись антропологические особенности африканцев и европейцев, жителей Азии и обеих Америк, Меланезии и Австралии. Нет примитивных рас, просто у каждой из них своя особая история. Чем меньше численность группы и чем специфичнее условия, тем быстрее идет адаптация, тем резче проявляются генетико-автоматические процессы. Самые изолированные группы на планете – андаманцы и тасманийцы – отличаются от верхнепалеолитических предков по ряду показателей гораздо сильнее, чем, скажем, европейцы. Многочисленные же мегапопуляции земледельцев имеют больше шансов сохранить какие-то исходные черты, так как новые признаки растворяются в общей массе. Но и у них новый образ жизни не отгораживает от природы, а создает новые направления отбора.
Мы такие, потому что жизнь такая. Эволюция продолжается. Скажем, у коренных жителей Арктики в четыре раза по сравнению с жителями субтропиков выше частота аллеля гена аполипопротеина Е – e4, связанного с обменом холестерина (Боринская и др., 2007). При невероятно насыщенной жиром диете заполярные жители имеют часто более низкий уровень холестерина в крови, чем у сидящих на диете горожан. Жир “сгорает” в топке невероятного метаболизма арктических обитателей. Иначе на суровых северах не протянешь. Другой полезный навык наработали жители Ближнего Востока. Дело в том, что ядовитый этанол в печени с помощью алкогольдегидрогеназы превращается в еще более отвратный ацетальдегид, а последний с помощью ацетальдегиддегидрогеназы – в безопасную уксусную кислоту, наконец-то покидающую организм. Древность и интенсивность потребления алкоголя в разных регионах привела к существенным различиям в частоте тех или иных аллелей выработки полезных ферментов (Боринская и др., 2005). При медленной работе обоих ферментов человек травится и этанолом, и ацетальдегидом, а потому вообще не может пить. Если этанол перерабатывается медленно, а ацетальдегид быстро, человек рискует стать алкоголиком. К сожалению, именно такой вариант весьма нередок среди народов европейской части России. При быстрой переработке этанола в ацетальдегид, но медленной последующей человек может пить, но очень мало, ему становится плохо даже от незначительной дозы буквально в рюмку. Зато ему не стать алкоголиком, ведь никакого удовольствия от выпивки он не получает и привыкания не происходит. Такой вариант распространен, например, у японцев, китайцев и корейцев. Если у человека присутствуют “быстрые” варианты обоих ферментов, то он может пить очень много, алкоголь перерабатывается и выводится, нанося минимальный вред. Такой вариант широко распространен на Ближнем Востоке и Европе, где естественный отбор вывел всех нестойких еще в неолите и бронзовом веке. Рекордсменами же по устойчивости к алкоголю неожиданно оказались южноамериканские индейцы. Они трезвеют быстрее всех. Вероятно, такое полезное свойство выработалось у них из-за постоянного потребления тропических фруктов. Более важное приобретение – способность пить цельное молоко во взрослом состоянии. Лактоза, содержащаяся в молоке, расщепляется ферментом лактазой. У детей он действует очень активно, а вот у взрослых может выключаться. Человеку с неактивной лактазой становится от молока очень плохо. Это важное свойство для древних времен: выросшего ребенка надо гарантированно отвадить от молока матери, чтобы можно было выкармливать следующего. Но цивилизация рассудила иначе. Молочное животноводство дало возможность поить молоком всех вплоть до старости, так что устойчивость к молоку неожиданно стала полезным признаком. Есть заказ – будет и решение. Мутации, позволяющие расщеплять лактозу взрослым, появились независимо как минимум трижды – в Аравии, Европе и Восточной Африке. Еще в раннем неолите в Европе этого свойства не было (Burger et al., 2007). Особенно важное значение новообретенная способность приобрела в северной и облачной Европе, где повышен риск развития рахита и лишний кальций не помешает. В более солнечных местностях иногда молочное животноводство развито, а “взрослого” аллеля расщепления лактозы нет; так дело обстоит, например, в Монголии. Там люди делают сыры, квасят кумыс, айран и прочий кефир. Другое очевидно полезное свойство – способность усваивать крахмал. Он расщепляется ферментом амилазой, активность которой растет с возрастом. В геноме шимпанзе имеются две копии гена амилазы, а среди людей – от двух до пятнадцати (Perry et al., 2007). Чем больше копий, тем лучше усваивается крахмал. Закономерно, что у земледельцев – европейцев и японцев – и собирателей клубней – танзанийских хадза – в среднем по семь копий гена у человека, а у охотников – центральноафриканских пигмеев-мбути и их соседей биака – и скотоводов – восточноафриканских датога и сибирских якутов – только по пять. Действие отбора очевидно. Примеры можно продолжать, но, кажется, этого хватит. Мы меняемся, мы эволюционируем. Культура не вывела человека из-под действия отбора, а просто поставила перед ним новые задачи.Тема будущего всегда привлекала людей. Всем хочется знать, что нас ждет завтра. То ли это будет цветущий рай земной, то ли планету накроет черной мглой Апокалипсис. Чаще фантасты представляют развитие техники и общества: космические корабли и телепортаторы, возврат к феодальным королевствам или торжество коммунизма. Гораздо реже речь идет о самих людях. Так, конечно, привычнее и спокойнее. Люди – они и есть люди. Чего уж там, если даже инопланетяне в большинстве случаев хоть и зеленые, но человечки. Если пошерстить фантастику, то в подавляющем большинстве случаев жители будущего ничем не отличаются от нас, разве что стройные и красивые либо, напротив, коренастые и одичавше-замшелые.
А ведь классики уже давно задали планку: в романе Герберта Уэллса “Машина времени”, написанном в конце XIX века, подробно описаны изменения, произошедшие с людьми за восемьсот тысяч лет. Человечество за это время разделилось на элоев и морлоков. Характеристики их весьма выразительны:
Это было маленькое существо – не более четырех футов ростом… Подбежавший человек показался мне удивительно прекрасным, грациозным, но чрезвычайно хрупким существом. Его залитое румянцем лицо напомнило мне лица больных чахоткой, – ту чахоточную красоту, о которой так часто приходится слышать… Я пристально разглядывал их изящные фигурки, напоминавшие дрезденские фарфоровые статуэтки. Их короткие волосы одинаково курчавились, на лице не было видно ни малейшего признака растительности, уши были удивительно маленькие. Рот крошечный, с ярко-пунцовыми, довольно тонкими губами, подбородок остроконечный. Глаза большие и кроткие, но – не сочтите это за тщеславие! – в них недоставало выражения того интереса ко мне, какого я был вправе ожидать.Морлоки представляют очевидный контраст:
…маленькое обезьяноподобное существо со странно опущенной вниз головой, бежавшее по освещенному пространству галереи… Оно было грязно-белое и… у него были странные, большие, серовато-красные глаза; его голова и спина были покрыты светлой шерстью. Но, как я уже сказал, оно бежало слишком быстро, и мне не удалось его отчетливо рассмотреть. Не могу даже сказать, бежало ли оно на четвереньках, или же руки его были так длинны, что почти касались земли… Это было что-то вроде человекообразного паука… Морлоки, как я уже говорил, проводили всю жизнь в темноте, и потому глаза их были необычайно велики. Они не могли вытерпеть света моей спички и отражали его, совсем как зрачки глубоководных океанских рыб… Вы едва ли можете себе представить, какими омерзительно нечеловеческими они были, эти бледные лица без подбородков, с большими, лишенными век красновато-серыми глазами!Г. Уэллс описал два крайних возможных варианта. Но ясно, что это художественный вымысел. А может ли наука сказать что-то по этому поводу? Ученые очень не любят фантазировать, ведь сам принцип занятия наукой подразумевает возможность проверки. А как мы можем проверить свои предсказания, сделанные на сотни тысяч лет вперед?! Да и есть ли смысл в таких пророчествах? Но люди продолжают задаваться вопросом о будущем, так что почему бы не попробовать сделать это мало-мальски объективно? Как это можно осуществить?
Есть два подхода к предсказанию будущего. Во-первых, мы можем попытаться угадать, какие сложатся условия и, стало быть, какие понадобятся для этого адаптации. Здесь очевидная сложность такова, что даже на завтра погоду предсказать трудно, что уж говорить о сроках в сотни тысяч лет. Во-вторых, мы можем посмотреть, что было в прошлом, и аппроксимировать происходившие изменения вперед. Тут проблема в том, что модификации не были однонаправленными, результат будет зависеть от того, с какого срока прошлого мы начнем наш отсчет в будущее.
Также итог, очевидно, зависит от того, насколько далеко мы пытаемся заглянуть. С одной стороны, недалекое будущее предсказать проще, но и большой разницы с современностью ожидать не приходится – это неинтересно. С другой стороны, в очень далеком будущем, когда должны накопиться уже любопытные отличия, погрешность наших фантазий возрастает катастрофически. Скорость эволюционных изменений обычно не очень велика, они занимают сотни поколений и миллионы лет. Ясно, что скорость изменения у разных признаков может быть разной. Но это все присказка.
Произойдет ли разделение Homo sapiens на несколько видов и когда? В ближайшем будущем разделение Homo sapiens на несколько видов крайне маловероятно. Для видообразования нужна какая-то изоляция. Обычно изоляция обеспечивается географическими барьерами – популяция попадает в такое место, из которого и она выбраться не может, и никому другому забрести туда тоже не удается. Спустя много тысяч лет накопившиеся генетические изменения становятся настолько значимыми, что пропадает возможность скрещивания с исходной материнской популяцией. Сейчас же численность населения настолько велика и транспорт такой повсеместный, быстрый и доступный, что полной оторванности какой-то одной группы людей от всех остальных, строго говоря, нигде нет. Можно, конечно, при большом желании найти неконтактное племя амазонских индейцев или папуасов в центре Новой Гвинеи, живущих совсем обособленно, но искать их придется долго. Кроме того, изоляция всегда относительна – с соседними племенами так или иначе будут контачить даже самые замкнутые группы. Обычно к тому времени, когда до них добираются люди цивилизации, “дикари” уже давно одеты в шорты, китайские кроссовки и пользуются железными топорами. До кого цивилизация еще не дошла – скоро дойдет. Поэтому шансов разделения нашего вида в ближайшем будущем на Земле нет. Лучшие потенциальные кандидаты на прародителей новых видов людей – австралийские аборигены и тасманийцы. Они изолировались от остального человечества почти 50 тысяч лет назад – и этого не хватило для появления новых видов, не привело к возникновению каких-то специфических признаков, которые сделали бы невозможным их скрещивание с другими людьми. Тасманийцы прекрасно метисировались и с австралийскими аборигенами, и с маори, и с европейцами – со всеми, кто к ним добирался. Из наших знаний о древних гоминидах следует: для того чтобы человечество разделилось на виды, нужно, чтобы какая-то группа просидела как минимум от двухсот тысяч до полумиллиона, а лучше миллион лет в изоляции. Как такое может получиться в нашем мире?..Звено теплое.
Попробуем реализовать первый подход.
Допустим, глобальное потепление приведет к тому, что климат на всей планете станет подобным мезозойскому или даже вовсе тропическим. Перед людьми исчезнет проблема сохранения тепла и встанет задача остывания. Среди многообразия современного человечества мы знаем биологический ответ на такие условия, уже реализованный в нынешних тропиках: люди станут более вытянутыми, с узкими плечами и тазом, длинными тонкими ногами и руками, удлиненным черепом, кожа их потемнеет, обмен веществ понизится, мышечная масса уменьшится.
Звено холодное.
Впрочем, наше межледниковье длится уже десять тысяч лет – непозволительно долго по меркам предыдущих полутора сотен тысяч лет чередований оледенений и потеплений. По этой логике грядет мрачное похолодание, ледники надвинутся вплоть до Москвы и Берлина, а северная граница обитания людей сдвинется в Средиземноморье, где зимы будут подобны нынешним мурманским, а лето – чукотскому. Столь нерадостные изменения сделают людей схожими с эскимосами: намного более коренастыми, широкоплечими, с большой грудной клеткой и мощнейшим обменом веществ.
Звено дикое.
Немало зависит от развития цивилизации. Если она изведет самое себя, то люди попадут в зависимость от природы, эволюционные изменения ускорятся. Все невыносливые, слишком мелкие и слишком крупные, мало-мальски больные и выделяющиеся будут беспощадно сметены естественным отбором. Физическая сила, выносливость и скорость реакции выдвинутся на первый план. Уменьшение содержания кислорода в атмосфере приведет к понижению обмена, увеличению объема легких и, возможно, появлению новых вариантов дыхательных ферментов. Недостаток пищи гарантирует уменьшение размеров тела.
Поскольку планета большая и разных условий на ней много, то биологическая дифференциация в разных местах будет усиливаться, начнется новый виток расообразования. Если люди одичают настолько, что не смогут преодолевать океаны, пустыни и горы, то через пару миллионов лет возникнут новые виды, но уже не людей, а произошедших от них человекообразных обезьян. Пока, к сожалению, все идет именно к этому сценарию, и он еще очень оптимистичен, ибо подразумевает в принципе выживание человечества. Печально, но мы так быстро уничтожаем среду своего обитания, что при нашей неторопливой скорости размножения нам может не хватить скорости для приспособления к новым условиям. Человечество может вымереть в ближайшие пару сотен лет. Люди, бросайте мусор в помойки, а не куда попало!
Кстати, человечество сейчас весьма различается по образу жизни, так что с большой вероятностью наиболее пострадает самая цивилизованная часть – Европа, Азия, Северная Америка. А вот близкие к природе и далекие от городов и заводов бушмены, индейцы Амазонии, папуасы Новой Гвинеи и прочие счастливые люди могут благополучно пережить Коллапс и дать начало новому человечеству. Соответственно поменяются и расовые признаки по всей Ойкумене.
Впрочем, в ближайший миллион лет разделения людей на несколько разных человечеств не предвидится. Люди слишком склонны перемешиваться. История показывает, что для выделения нового вида требуется порядка миллиона лет. Например, тасманийцы, прожившие пару десятков тысяч лет практически в полной изоляции (абсолютный рекорд для современного вида!), остались людьми и вполне давали плодовитое потомство с представителями всех прочих рас. Для расхождения популяций людей на разные виды в меньшие сроки нужен очень и очень суровый отбор. Однако самые контрастные условия, предоставляемые природой на нашей планете, нивелируются даже простейшей культурой уровня неандертальцев и кроманьонцев, так что для того, чтобы они сыграли по полной программе, человечество должно совершенно одичать, но тогда не факт, что столь примитивные люди смогут жить где-то, кроме тропиков.
Социальная же изоляция такой силы, чтобы могла привести к видообразованию, вообще труднопредставима; практически невообразимо, какой бы устойчивый и жесткий тоталитарный политический режим мог тысячи и миллионы лет изолировать людей друг от друга и ставить их в совершенно разные условия. Кто этим будет заниматься? Из истории известно, что как бы категорически ни противопоставлялись разные социальные, политические и религиозные группы, смешение между ними все равно продолжается. Оно происходило даже между кастами в Индии (сильнейший социальный барьер из всех известных!), судя по тому, что географическое положение популяций значит для их антропологии больше, чем кастовая принадлежность.
Звено мятно-розовое.
Другой вариант реализуется, если вдруг люди резко поумнеют и решат проблемы загрязнения природы и переиспользования ресурсов. Непонятно, как бы это могло реализоваться и на чем могла бы быть основана такая новая цивилизация, но мало ли… Допустим, люди по всей планете стали мегацивилизованными жителями супергородов с регулируемым климатом, гарантированной идеальной пищей, не требующей усилий по пережевыванию и пищеварению. Самовосстанавливающиеся машины избавили людей от физического труда, жители в массе сидят по высококлассно оборудованным офисам и квартирам и занимаются изобретательством, искусствами и просто бездельничают. На первых порах это отразится увеличением разнообразия из-за снятия стабилизирующего отбора. В принципе, это происходит уже сейчас в крупных мегаполисах. Однако совсем без отбора не бывает.
Стоит развеять расхожее заблуждение: многие считают, что цивилизация вывела человека из-под действия естественного отбора. Но остановить эволюцию невозможно в принципе, для этого надо полностью стереть всякие различия между людьми, ликвидировать возможность мутаций и сделать условия существования неизменными раз и навсегда. Да, у нас имеется культура, и, на первый взгляд, она все отменяет. Однако культура есть и у муравьев, но при этом никто не говорит о том, что те перестали эволюционировать. Пока есть изменчивость, пока дети хоть немного отличаются от родителей, будет и отбор.

Рис. 39. Человек будущего редуцированный, окруженный техникой.
Десятки тысяч лет сладкой жизни в лоне суперцивилизации (как такое может быть?!) приведут к более существенным переменам: размеры пищеварительной системы в целом и челюсти в частности уменьшатся, кости черепа станут тоньше, мышечный тонус неизбежно ослабнет. Ручки и ножки станут тоньше и хилее. Если диета будет выстроена с умом, то вовсе не обязательно глобальное ожирение всего человечества, подобно показанному в мультике “Валли”. Пока автоматика еще не будет полностью самодостаточной, люди должны будут управлять ей. Тут возможны интересные изменения: например, могут удлиниться пальцы и увеличиться их подвижность, если успех в работе на компьютере станет отражаться на репродуктивном успехе – через статус в обществе или получение ресурсов (грубое слово “зарплата” не идет к облику блистающего будущего). В таких условиях существенно должны будут измениться и органы чувств, прежде всего, конечно, глаза. Постоянное вглядывание в мониторы делает особенно актуальным увлажнение редко мигающих глаз; рефлекторное моргание уже явно недостаточно. Посему должен будет пойти отбор на новые способы смачивания роговицы, скажем за счет увеличения размеров и активности слезных желез, действующих без моргания. А вот обоняние имеет шанс окончательно пропасть, ведь даже сейчас оно находится у человека в крайне плачевном состоянии.
Грусть может наступить в тот момент, когда технологии достигнут апогея, машины станут самодостаточными, саморемонтирующимися и самовоспроизводящимися. Даже без мрачного сценария бунта роботов а-ля Терминатор перспективы человечества выглядят не очень радостными. В отсутствие стимулов для деятельности – как физической, так и интеллектуальной – человечество обречено на деградацию. Если техника и поит, и кормит, и баньку топит, и спать укладывает, работает, перемещает и обслуживает человека, нервная система будет редуцироваться, подобно тому, как это случается с паразитическими червями, буквально живущими в еде. Не нужны будут руки, ноги и большая часть пищеварительной системы, снизится обмен. Эволюция гарантирует, что единственной хорошо сохранившейся системой будет половая. Ведь с точки зрения эволюции все остальное – лишь надстройка над системой размножения.
Звено расчетное.
Второй принципиальный – экстраполяционный – подход позволяет достаточно правдоподобно оценить изменения если не всего человека, то хотя бы отдельных его частей. Например, мы знаем, что за последние семь миллионов лет размер мозга вырос в четыре с половиной раза (с 300 до 1350 см³), а размер тела – примерно в полтора-два раза (с 1 до 1,7 м). За два миллиона лет мозг увеличился вдвое (с 600 до 1350 см³), а размер тела – менее чем в полтора раза (с 1,5 до 1,7 м). За последние 25 тысяч лет мозг уменьшился на 5 % (с 1500 до 1425 для мужчин), размер тела, вероятно, тоже, хотя тут разница не такая большая, так что разброс по популяциям нивелирует смысл расчетов. Несложно грубо прикинуть скорость изменения мозга: килограмм за семь миллионов лет, то есть по 140 грамм за миллион, исходя из самой длинной тенденции. С Homo habilis прогресс ускорился – стало добавляться по 375 грамм за миллион лет. За время же существования сапиенсов мозг усыхает – по 3 грамма за тысячу лет, то есть в 20 раз быстрее предыдущего увеличения! Посему прогноз будет очень разным в зависимости от взятого масштаба. С одной стороны, долговременный надежнее, потому что нивелирует случайные события, с другой – он слишком уж все усредняет. В ближайшие несколько тысяч лет с большой вероятностью будет продолжаться некоторое уменьшение размеров в среднем по планете (что не исключает прироста в конкретных популяциях), а в долгосрочной перспективе мозг может заметно вырасти, хватило бы только ресурсов планеты и способностей человеческого организма по снабжению столь затратного органа.
Большой мозг должен обеспечиваться мощным метаболизмом, который зависит от пищеварительной системы. А она, в свою очередь, чудесным образом уменьшается последние несколько миллионов лет, что особенно здорово видно на примере челюстей и зубов. Со времен афарских австралопитеков зубы уменьшились примерно на 10 %, редукция заметна даже на протяжении голоцена, то есть последних 10 тысяч лет. Очевидно, противоречие растущих потребностей и сокращающихся возможностей разрешается эволюцией кулинарии: люди стали пользоваться огнем, резать и тереть пищу, ферментировать ее массой способов. Фактически у человека даже сейчас пищеварение в значительной степени внешнее (вспоминаем пауков!), что уж говорить о сказочном будущем. Окончательный переход на легкоусвояемую и высокопитательную пищу должен ускорить эти процессы.
Нагляднейшим примером эволюции, идущей на наших глазах (точнее, в наших ртах), являются третьи моляры – “зубы мудрости”, названные так за позднейшее по сравнению с прочими прорезывание. Общеизвестно, что у современных людей они, как правило, небольшие, впихивающиеся между вторыми молярами и восходящей ветвью нижней челюсти, а потому доставляющие своим хозяевам массу неприятностей. Часто верхние и нижние третьи моляры не соприкасаются друг с другом. От этого они не самоочищаются, в складках их эмали скапливаются частички пищи, радостно плодятся довольные бактерии, а утонченная эмаль поражается кариесом. Короче, от них одни неприятности. Посему не странно, что многие люди искренне убеждены, что “восьмерки надо вырывать” – независимо ни от чего, просто по умолчанию.
Но так было не всегда: у многих древних людей третьи моляры были самыми большими и важными зубами, а позади них до восходящей ветви зияло обширное ретромолярное пространство, так что предки не только не испытывали проблем из-за этих зубов, но в значительной степени зависели от них. Однако прогресс шел своим чередом: с переходом на высококалорийную мясную пищу и появлением орудий труда размеры зубов стали не так актуальны. Вряд ли маленькие зубы были выгоднее, но важно, что стабилизирующий отбор больше не отсекал индивидов с меньшими молярами. Уже 2 млн лет назад среди “ранних Homo” мы обнаруживаем индивида Omo L 75-14a,b с врожденным отсутствием правого нижнего третьего моляра. Полмиллиона лет назад на челюсти из Ченьцзяо нет уже двух “зубов мудрости”. А ныне этот вариант встречается едва ли не у большинства людей. Впрочем, у некоторых третьи моляры по-прежнему остаются самыми крупными и полезными зубами. Сейчас человек как вид находится в состоянии активного эволюционного перехода – мы и есть “достающее звено”. Еще пара сотен тысяч лет благополучия – и “зубами мудрости” будут называться вторые моляры. Подобная судьба может постичь и другие зубы. Например, не такая уж запредельная редкость – отсутствие второго верхнего резца. А ведь когда-то и премоляров у наших предков было четыре, нынешний вариант с двумя реализовался только около 36 млн лет назад. Так что нам есть к чему стремиться, благо муравьеды маячат живым гарантом достижимости беззубого идеала.
Впрочем, пути эволюции неисповедимы. Припечет – обзаведемся и целой батареей зубов. Скажем, среди тасманийских и австралийских аборигенов не столь уж редок вариант с четырьмя молярами. Это специфическая черта, появившаяся именно в этих группах, так как у всех предков, начиная с пургаториуса 65 млн лет назад, моляров было только три. Такая особенность показывает, что прогресс может идти в разные стороны.
Сокращение пищеварительной системы не ограничивается зубами. Наверняка укорачивается кишечник. Наша слепая кишка относительно совсем невелика, так как мы едим больше мяса. У хищников она может совсем исчезать, а обработка и ферментация пищи могут ускорить нашу эволюцию. Аппендикс – отросток слепой кишки – уже у современных людей иногда бывает заросшим с рождения или очень маленьким, в виде пупырышка. Но на нем же видно, что старые органы, утратившие прежнюю функцию, не обязаны исчезать совсем, они вполне могут приобрести новое назначение. Аппендикс активно участвует в становлении иммунитета человека, в этом качестве он настолько важен, что попытки удалять его у младенцев (с благой целью превентивно избежать риска воспаления-аппендицита в будущем) заканчивались печально. У новорожденного собственного иммунитета и так почти нет, а тут еще ликвидировался орган, ответственный за его формирование. Аппендикс, как и другие части кишечника, выделяет и гормоны, в том числе мелатонин, так что в будущем, если он не успеет исчезнуть, может превратиться в дополнительную железу, была бы потребность.
Кстати, об иммунитете: вилочковая железа – тимус – имеет аналогичное назначение, только гораздо более выраженное. Развитие медицины вполне может сделать ее ненужной и привести к редукции. Благо склонность к этому тимус имеет уже сейчас: он уменьшается и практически прекращает работать при переходе от подросткового возраста ко взрослому.
Вслед за кишечником относительно уменьшается и все тело, и позвоночник в частности (рост-то увеличивается, но в основном за счет длины ноги). У некоторых грацильных австралопитеков было шесть поясничных позвонков, у нас пять, а ведь это – размер живота! Заметно это и по форме грудной клетки: у австралопитеков она резко расширялась книзу, у нас заметно более цилиндрическая. Зато крестец может усилиться; не исключено, что по мере роста мозга и утяжеления головы он будет консолидироваться с поясничным отделом, тем более что подвижность становится не столь ценной.
Впрочем, в недалекой перспективе тело, скорее всего, будет все же удлиняться, по крайней мере относительно. Последние 150 лет идет акселерация, одним из ярких проявлений которой является астенизация, то есть постройнение человечества. Замечательно, что акселерация зафиксирована в подавляющем большинстве популяций. Конечно, у этого процесса есть свои ограничения, в середине-конце XX века темпы акселерации почти свелись к нулю, а в некоторых группах в XXI веке зафиксирована уже ретардация. Но все же сейчас мы на 15–20 см выше, чем средневековые люди. Что, кроме силы тяжести, помешает нам расти дальше?
Человек богат на рудименты. Уже миллионы лет у нас исчезают мышцы ушей и носа, когда-то – и наверняка скоро – они обязаны окончательно кануть в вечность. То же касается последних двух ребер. Бывает, что у людей последнее двенадцатое вообще отсутствует врожденно, думается, через пару миллионов лет этот вариант закрепится как основной.
Очевидным образом редукция ждет малую берцовую кость и пальцы ноги. Малая берцовая нужна для поворота стопы, но, поскольку мы давно слезли с деревьев, вихляние голеностопного сустава стало скорее вредной особенностью. У всех приличных наземных животных сочленение голени и стопы гранено-геометрическое, не допускающее лишних вредных поворотов, только вперед-назад. Это и наша судьба, если, конечно, мы опять не полезем на деревья. А для пущей прочности малая берцовая кость должна или редуцироваться, или срастись с большой берцовой, что типично для многих и многих наземных зверей. Вымрут танцы и балет, но что поделать – эволюция превыше всего. Зато маршировать станет легче, а перед спортсменами – бегунами и прыгунами – откроются новые перспективы.
Прямохождение и наземная жизнь неизбежно поменяют стопу, особенно ее пальцы. Предки давно слезли с деревьев, уже афарские австралопитеки 3,5 млн лет назад были почти полностью наземными. Но было бы ошибочным считать, что эволюция на этом прекратилась. В ряду от австралопитеков до нас заметно укоротились пальцы, особенно за счет средних фаланг. У современных людей часто встречается так называемая брахимезофалангия, когда на средних фалангах есть основание и головка, но нет тела, то есть начало кости слипается с концом. На мизинце же стопы регулярно фаланги бывают совершенно бесформенными и от рождения сросшимися воедино. Ясно, что будущее нашей стопы – в исчезновении пальцев. Наземные животные всегда приходят к уменьшению их числа. Рекордсменом, без сомнения, является лошадь. Но у человека есть возможность переплюнуть и ее: развитие транспорта позволит обходиться совсем без ног. Заодно исчезнут проблемы варикоза и грибка на ногтях.
Сколь ни важна для нас рука (или, напротив, именно поэтому), ее тоже ждет бурное будущее. Сейчас наша кисть невероятно примитивна, она упорно сохраняет план строения карбоновых “стегоцефалов”. Но так не может продолжаться вечно. Грацилизация уже ослабила нашу руку, но и это не предел. Как любой крайний элемент скелета, особенно рискует мизинец. С одной стороны, им удобно тыркать крайние кнопочки на клавиатуре, но новые технологии ввода данных уже сейчас позволяют обойтись вообще без пальцев. С другой стороны, если клавиатуры продолжат свою эволюцию, то и шестой палец не помешает. Полидактилия регулярно возникает сама по себе, почему бы не закрепиться полезному признаку – постмизинцу?
Да ладно мизинец! Как верно подметил Кирилл Еськов, на формирование новой коры головного мозга великое влияние оказывает развитие тонкой моторики пальцев, в частности навыки письма (Еськов, 2000). А развитие технологий в ближайшем будущем изведет писание букв как факт, даже клавиатуры могут быть вытеснены голосовым набором; это уже началось – достаточно включить автомобильный навигатор. Какая уж тут тонкая моторика… Редукция рук, а за этим и мозгов – светлый путь в будущее, указанный нам страусами и пингвинами. Но может, проклятая бюрократия нас спасет? Не зря же люди сотнями заполняют бессмысленные бумажки? Может, в этом их скрытое предназначение – поддерживать в нас тонус, развивать тонкую моторику и неокортекс? Впрочем, что-то верится с трудом…
Звено запредельное.
Есть еще одна возможность эволюции человека – заселение иных планет. Новые земли предоставляют новые удивительные условия, и вот тут-то открывается невиданный простор для видообразования. Освоение людьми Луны, Марса и, чем астрономы не шутят, планет у других звезд способно создать и жесткую изоляцию, и сильное давление отбора. Например, что мы имеем на Марсе? Низкая гравитация может приводить к быстрому утончению и удлинению рук и ног. Ограниченность пищевых ресурсов, которые первое время наверняка придется доставлять с Земли, должна способствовать уменьшению размеров и массы тела. Ограниченность доступного кислорода – улучшению его переноса клетками крови. Наконец, мощная радиация может стимулировать появление механизмов защиты: активную выработку меланина, а может, и чего-то вроде толстого рогового панциря, как у черепах. Правда, трудно сказать, как это все может реализоваться практически. Ведь условия вне Земли настолько отличаются от наших, что либо отбор выкосит поселенцев в первом же поколении, либо придется создавать им условия, по возможности идентичные земным. Впрочем, совсем повторить родину все равно не получится, так что бурная эволюция гарантирована. Была бы преемственность поколений, а для этого нужно создание полноценных популяций. Кто знает, может, Коллапс на Земле подстегнет работы в этом направлении и освоение внеземных миров – дело ближайших пары сотен лет?..
Звено самосозидающее.
Наконец, не исключен еще один сценарий, к реализации которого человечество ныне вплотную подходит. Успехи генетики в скором будущем дадут возможность активно, целенаправленно и осмысленно менять себя. Уже сейчас некоторые врожденные отклонения обнаруживаются на ранних стадиях развития, так что есть возможность селективной евгеники. Но это лишь цветочки: познание законов эмбриологического развития, связи генов и формирования фенотипических признаков позволит активно исправлять нежелательные мутации и создавать новые признаки по желанию. Очевидно, что пару сотен лет этому будут активнейше противодействовать люди, склонные “ко всему естественному” и видящие в техническом прогрессе зло. Религиозные, политические, зелено-экологические и многие прочие группы будут всеми силами тормозить процесс. Но история учит, что прогресс неостановим. Если у человечества будут несколько сотен лет для развития в прежнем направлении (хотя в этом-то как раз есть основательные сомнения), то генетическая модификация как минимум части человечества неизбежна. Ясно, что поначалу будет немало ошибок и проблем. Наверняка не сразу все последствия можно будет просчитать заранее. Но и катастрофы глобального масштаба, подобной описанной Станиславом Лемом в романе “Эдем”, ждать вряд ли приходится. Ведь вовсе не обязательно все технологии применять сразу на людях и тем более массово. Скорее всего, начнется все с медицинских коррекций типа выращивания зубов и волос, убирания последствий синдромов Дауна и Хантингтона. Потом придет черед косметических украшений: выпрямление носа, облагораживание линии рта, приведение подбородка в волевой вид и расширение плеч одним, смягчение форм и постройнение талии другим. Отсюда недалеко и до более основательных усовершенствований, предсказать которые сложно, ибо они будут ограничены лишь надобностью и фантазией. На этом месте естественный отбор имеет шанс либо окончательно уступить место искусственному, либо люто восторжествовать, стерев самомодифицировавшееся человечество с лица Земли.

Рис. 40. Человек будущего, модифицированный генной инженерией.
Любое существо, пока оно не вымерло, является промежуточным звеном между своими предками и потомками. Многие признаки у нас находятся в недоработанном состоянии, многие продолжат меняться с изменением условий. Окончательного варианта человека не существует, и наша эволюция остановится лишь тогда, когда мы окончательно вымрем.
Продолжение следует… Вставала заря нового дня… То ли еще будет!..
Приложение.
Для пользы дела неплохо бы иметь под рукой некоторые справочные данные.
Хронология кайнозоя по общепринятой международной шкале.


Признаки приматов.
Приматы отличаются от других млекопитающих следующими признаками:
– относительно большие размеры мозга при редукции обонятельных центров;
– пять пальцев на всех конечностях (у специализированных видов большой или указательный (иногда и средний) палец могут редуцироваться, а прочие – срастаться);
– способность конечностей и особенно запястья к вращению;
– ногти на пальцах (у полуобезьян на отдельных пальцах остаются когти);
– глаза повернуты вперед, а глазница имеет тенденцию к закрытию сзади (полностью только у высших приматов);
– преимущественно древесный образ жизни;
– питание насекомыми (в основном у полуобезьян) и растительной пищей, чаще та или иная степень всеядности;
– малая плодовитость и отсутствие сезонности размножения (нерезко выраженная сезонность есть у полуобезьян);
– жизнь группами, достаточно сложные социальные отношения и системы коммуникации, сложное, разнообразное и лабильное поведение.


Сравнение адаписовых, омомисовых и первых обезьян Сравнение ранних и истинных узконосых обезьян.


Сравнение ранних и истинных узконосых обезьян.

Приматы и родственные группы. (Надотряд ARCHONTA).


Обобщенная схема основных таксонов семейства гоминид.


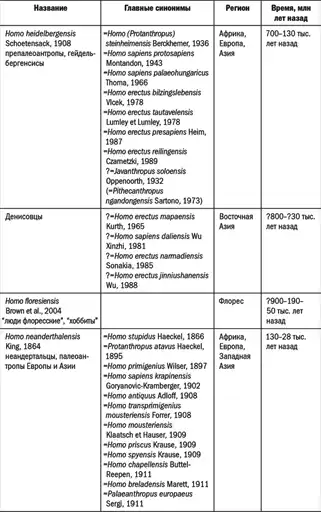

Вкладка.

Ardipithecus ramidus – ранний австралопитек, одинаково хорошо чувствовавший себя как на деревьях, так и на земле. Эфиопия, 4,4 млн лет назад.
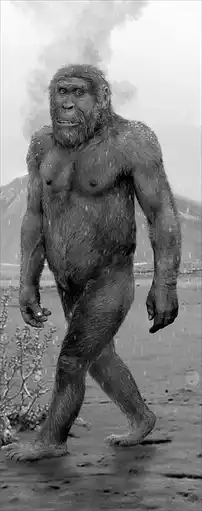
Australopithecus afarensis, прогуливающийся по засыпанной вулканическим пеплом равнине. Танзания, Лаэтоли, 3,7 млн лет назад.

Представители Paranthropus robustus часто становились жертвами леопардов, благодаря чему их кости сохранились в палеонтологической летописи. Южная Африка, 1,5 млн лет назад.
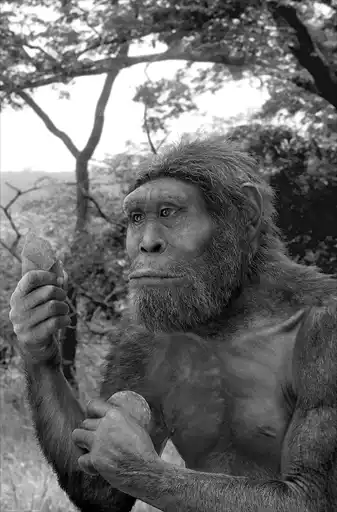
Homo habilis – один из первых творцов каменных орудий. Восточная Африка, 1,8 млн лет назад.

Homo erectus – питекантроп – ковыряет ракушку акульим зубом. Ява, Триниль, 500 тыс. лет назад.

Человек из Бодо – самый массивный из наших предков. Эфиопия, 640 тыс. лет назад.
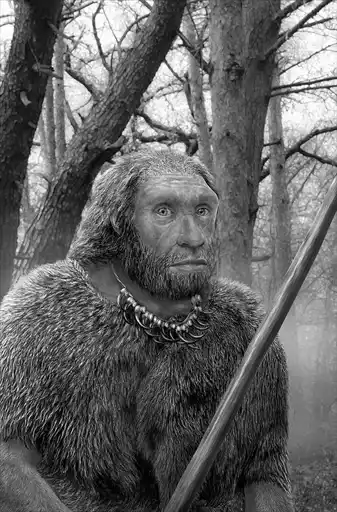
Неандерталец из Крапины – каннибал и творец древнейшего ожерелья из когтей орланов. Хорватия, 130 тыс. лет назад.

Человек из Брокен-Хилл – один из наших африканских предков. Замбия, 300 тыс. лет назад.

Человек из Кро-Маньон – один из первых Homo sapiens в Европе. Франция, 28 тыс. лет назад.
Литература.
Сокращения:
AJPhA – American Journal of Physical Anthropology;
CRAS – Comptes Rendus des seances de l'Académie des Sciences de Paris;
JAS – Journal of Archaeological Science;
JHE – Journal of Human Evolution;
PNAS – Proceedings of the National Academy of Sciences, USA;
PRS – Proceedings the Royal Society, ser. B, Biological Science.
Адовазио Дж. М., Соффер О., Хиланд Д. С., Иллингворт Дж. С., Клима Б., Свобода И. Производство изделий из недолговечных материалов в Долни Вестонице I: новый взгляд на природу и происхождение граветта // Археология, этнография и антропология Евразии, 2001, 2 (6), с. 48–65.
Алексеев В. П. Палеоантропология земного шара и формирование человеческих рас. Палеолит. М.: Наука, 1978, 284 с.
Амирханов Х. А., Ахметгалеева Н. Б., Бужилова А. П., Бурова Н. Д., Лев С. Ю., Мащенко Е. Н. Исследования палеолита в Зарайске. 1999–2005. Палеограф, 2009, 466 с.
Бадер О. Н. О древности сходненской черепной крышки и о характере ее наружной поверхности // Ученые записки МГУ: Ископаемый человек и его культура на территории СССР, вып. 158, 1952, с. 155–166.
Беневоленская Ю. Д. Морфологические проявления феномена смешения на черепе и неандертальская проблема // Вестник антропологии, 1996, вып. 2, с. 216–226.
Березкин Ю. Е. Мифы заселяют Америку: ареальное распределение фольклорных мотивов и ранние миграции в Новый Свет. М.: ОГИ, 2007, 358 с.
Березкин Ю. Е. Сибирско-южноазиатские фольклорные параллели и мифология евразийской степи // Археология, этнография и антропология Евразии, 2012, 4 (52), p. 144–155.
Бонч-Осмоловский Г. А. Кисть ископаемого человека из грота Киик-Коба // Палеолит Крыма. М.–Л., АН СССР, 1941, вып. 2.
Боринская С. А., Гасемианродсари Ф., Кальина Н. Р., Соколова М. В., Янковский Н. К. Полиморфизм гена алкогольдегидрогеназы ADH1B в восточнославянских и ираноязычных популяциях // Генетика, 2005, Т. 41, № 11, с. 1563–1566.
Боринская С. А., Кальина Н. Р., Санина Е. Д., Кожекбаева Ж. М., Веселовский Е. М., Гупало Е. Ю., Гармаш И. В., Огурцов П. П., Паршукова О. Н., Бойко С. Г., Вершубская Г. Г., Козлов А. И., Рогаев Е. И., Янковский Н. К. Полиморфизм гена аполипопротеина Е APOE в популяциях России и сопредельных стран // Генетика, 2007, т. 43, № 10, с. 1434–1440.
Бужилова А. П. Одонтологические материалы из среднепалеолитических слоев алтайских пещер // Археология, этнография и антропология Евразии, 2013, 1 (53), с. 55–65.
Бунак В. В. Череп человека и стадии его формирования у ископаемых людей и современных рас. Труды Ин-та этнографии АН СССР, нов. сер., т. XLIX. М.: Наука, 1959.
Бурлак С. А. Происхождение языка. Факты, исследования, гипотезы. М.: Астрель, CORPUS, 2011, 480 с.
Бурлак С. А. Время появления звучащей речи по данным антропологии // Вестник Московского университета, серия XXIII, антропология, 2012, № 3, с. 109–119.
Вишняцкий Л. Б. Культурная динамика в середине позднего плейстоцена и причины верхнепалеолитической революции. СПб.: Изд-во С.-Петерб. ун-та, 2007.
Власенко А. Н. Откуда есть пошла Canis familiaris? // Антропогенез.ру, 2012. http://antropogenez.ru/book/11/.
Гвоздовер М. Д. Типология женских статуэток костенковской палеолитической культуры // Вопросы антропологии, 1985, вып. 75.
Гремяцкий М. А. Проблема промежуточных и переходных форм от неандертальского типа человека к современному // Ученые записки МГУ, Труды Музея антропологии, 1948, вып. 115, с. 33–77.
Данилова Е. И. Эволюция руки. Киев: Вища школа, 1979, 368 с.
Дробышевский С. В. Новые данные к проблеме раннего происхождения Homo sapiens в Африке // Opus: Междисциплинарные исследования в археологии, 2002, вып. 1–2, с. 96–108.
Дробышевский С. В. Комплексный анализ филогенетических взаимоотношений плио-плейстоценовых гоминоидов по краниологическим, остеологическим и палеоневрологическим данным. М., рук. канд. дисс., 2003, 610 с.
Дробышевский С. В. Происхождение человеческих рас. Австралия и Океания. М.: Ленанд, 2014, 340 с.
Еськов К. Наш ответ Фукуяме // 2000, http://lib.ru/PROZA/ESKOV_K/pub_fuj.txt.
Медникова М. Б. Трепанации в древнем мире и культ головы. М.: Алетейа, 2004.
Медникова М. Б. Локтевая кость представителя рода Homo из Чагырской пещеры на Алтае (морфология и таксономия) // Археология, этнография и антропология Евразии, 2013, 1 (53), с. 66–77.
Мочанов Ю. А. Древнейший палеолит Диринга и проблема внетропической прародины человека. Новосибирск: Наука, 1992, 254 с.
Рохлин Д. Г. Болезни древних людей (кости людей различных эпох – нормальные и патологически измененные). М.–Л., 1965.
Синельников Н. А. Об образовании тканевидного рельефа на сходненском фрагменте черепа // Ученые записки МГУ: Ископаемый человек и его культура на территории СССР, вып. 158, 1952, с. 175–179.
Смирнов Ю. А. Погребение в Ля Шапель-о-Сен и проблема “информационного шума” в археологии // Вопросы антропологии, 1979, вып. 61, с. 164–170.
Соколов А. Б. Мифы об эволюции человека. М.: Альпина нон-фикшн, 2015, 390 с.
Спенсер У. Генетическая одиссея человека. М.: Альпина нон-фикшн, 2013, 276 с.
Степанчук В. Н. Вопросы перехода к верхнему палеолиту в свете новых данных по Крыму и югу Восточно-Европейской равнины // Проблемы ранней поры верхнего палеолита Костенковско-Борщевского района и сопредельных территорий. Ред.: М. В. Аникович. СПб.: ИИМК РАН, 2005, с. 197–233.
Степанчук В. Н., Ковалюх М. М., Ван дер Плихт Й. Радiовуглецевий вiк пизньоплейстоценових палеолитичних стоянок Криму // Кам'яна доба Украïни, Киев, 2004, вип. 5, с. 34–61.
Хрисанфова Е. Н. Неандертальская проблема: новые аспекты и интерпретации // Вестник антропологии, 1997, вып. 3, с. 18–34.
Хрисанфова Е. Н. Экологические и конституциональные типы палеолитических гоминид (опыт реконструкции) // Экология человека: от прошлого к будущему, М., 2000, с. 61–64.
Хрисанфова Е. Н. Антрополого-эндокринологические исследования как способ познания биосоциальной природы человека (ч. 2. Историческая филогения) // Антропология на пороге III тысячелетия (итоги и перспективы). М.: Мосты культуры, 2002.
Хрисанфова Е. Н., Булыгина Е. Ю. Физический тип палеолитического человека (опыт реконструкции) // Latvijas vesturnteki. Antropologe profesore Dr. habil. hist. LZA goda locekle Raisa Denisova. Biobibliografija darbabiedru veltijomi 70 gado jubileja. Riga, 2000, с. 105–122.
Шер Я. А. Археология изнутри. Кемерово, КГУ, 2009, 222 с.
Adams J. M., Foote G. R. et Otte M. Could pre-last glacial maximum humans have existed in North America undetected? An interregional approach to the question // Current Anthropology, 2001, V. 42, № 4, рр. 563–566.
Adcock G. J., Dennis E. S., Easteal S., Huttley G. A., Jermiin L. S., Peacock W. J. et Thorne A. Mitochondrial DNA sequences in ancient Australians: implications for modern human origins // PNAS, 2001, V. 98, № 2, рр. 537–542.
Agustí J. et Moyà-Solà S. Sobre la identidad del fragmento craneal atribuido a Homo sp. en Venta Micena (Orce, Granada) // Estudios Geológicos, 1987, V. 43, pp. 535–538.
Alemseged Z., Spoor F., Kimbel W. H., Bobe R., Geraads D., Reed D. et Wynn J. G. A juvenile early hominin skeleton from Dikika, Ethiopia // Nature, 2006, V. 443, № 7109, pp. 296–301.
Almecija S., Tallman M., Alba D. M., Pina M., Moya-Sola S. et Jungers W. L. The femur of Orrorin tugenensis exhibits morphometric affinities with both Miocene apes and later hominins // Nature Communications, 2013, V. 4, № 2888, pp. 1–12.
Alt K. W., Pichler S., Werner V., Klima B., Vlcek E. et Sedlmeier J. Twenty-five thousand-year-old triple burial from Dolni Vestonice: an ice-age family? // AJPhA, 1997, V. 102, № 1, pp. 123–131.
Ambrose S. H. Late Pleistocene human population bottlenecks, volcanic winter, and differentiation of modern humans // JHE, 1998, V. 34, № 6, pp. 623–651.
Ambrose S. H. Did the super-eruption of Toba cause a human population bottleneck? Reply to Gathorne-Hardy and Harcourt-Smith // JHE, 2003, V. 45, № 3, pp. 231–237.
Anjos M. J., Lopes R. T., Mendonça de Souza S. M. F. et Jesus de E. F. O. Investigation of a fossilized calotte from Lagoa Santa, Brazil, by EDXRF // X-Ray Spectrometry, 2005, V. 34, pp. 189–193.
Anton S. C. Endocranial hyperostosis in Sangiran 2, Gibraltar 1, and Shanidar 5 // AJPhA, 1997, V. 102, № 1, pp. 111–122.
Anton S. C. The face of Olduvai Hominid 12 // JHE, 2004, V. 46, № 3, pp. 337–347.
Arambourg C. et Coppens Y. Sur la decouverte dans le Pleistocene inferieur de la valle de l'Omo (Ethiopie) d'une mandibule d'Australopithecien // CRAS, 1968, V. 265, pp. 589–590.
Arensburg B. et Tillier A. M. Speech and the Neanderthals // Endeavour, 1991, V. 15, № 1, pp. 26–28.
Armitage S. J., Jasim S. A., Marks A. E., Parker A. G., Usik V. I. et Uerpmann H.-P. The southern route “Out of Africa”: evidence for an early expansion of modern humans into Arabia // Science, 2011, V. 331, № 6016, pp. 453–456.
Arnold L. J., Demuro M., Parés J. M., Arsuaga J. L., Aranburu A., Bermúdez de Castro J. M. et Carbonell E. Luminescence dating and palaeomagnetic age constraint on hominins from Sima de los Huesos, Atapuerca, Spain // JHE, 2014, V. 67, pp. 85–107.
Ascenzi A., Biddittu I., Cassoli P. F., Segre A. G. et Segre-Naldini E. A calvarium of late Homo erectus from Ceprano, Italy // JHE, 1996, V. 31, № 1, pp. 409–423.
Asfaw B., White T. D., Lovejoy O., Latimer B., Simpson S. et Suwa G. Australopithecus garhi: a new species of early hominid from Ethiopia // Science, 1999, V. 284, № 5414, pp. 629–635.
Ashton N., Lewis S. G., De Groote I., Duffy S. M., Bates M., Bates R., Hoare P., Lewis M., Parfitt S. A., Peglar S., Williams C. et Stringer Ch. Hominin footprints from Early Pleistocene deposits at Happisburgh, UK // PLoS ONE, 2014, V. 9, № 2, p. e88329.
Aubert M., Brumm A., Ramli M., Sutikna T., Saptomo E. W., Hakim B., Morwood M. J., Bergh van den G. D., Kinsley L. et Dosseto A. Pleistocene cave art from Sulawesi, Indonesia // Nature, 2014, V. 514, № 7521, pp. 223–227.
Baab K. L. A re-evaluation of the taxonomic affinities of the early Homo cranium KNM-ER 42700 // JHE, 2008, V. 55, № 4, pp. 741–746.
Baba H. et Aziz F. Comments on the breakage of the Meganthropus B mandible // A scientific life: papers in honour of Prof. Dr. T. Jacob. Ed.: E. Indriati. Yogyakarta, Bigraf Publishing, 2001, pp. 67–74.
Backwell L. R. et d'Errico F. Evidence of termite foraging by Swartkrans early hominids // PNAS, 2001, V. 98, № 4, pp. 1358–1363.
Balter V., Braga J., Telouk Ph. et Thackeray J. F. Evidence for dietary change but not landscape use in South African early hominins // Nature, 2012, V. 489, № 7417, pp. 558–560.
Bandet Y., Semah F., Sartono S. et Djunbiantono T. Premier peuplement par les mammiferes d'une region de Java Est, a la fin du Pliocene: age de la faune du Gunung Butak, pres de Kendungbrubus (Indonesie) // CRAS, 1989, V. 308, pp. 867–870.
Bar-Yosef O. The Lower and Middle Palaeolithic in the Mediterranean Levant: chronology and cultural entities // Man and environment in the Palaeolithic. Ed.: H. Ullrich. Liege, Études et Recherches Archéologiques de l'Université de Liège, 1995, V. 62, pp. 247–263.
Barham L. S., Pinto Llona A. C. et Stringer C. B. Bone tools from Broken Hill (Kabwe) cave, Zambia, and their evolutionary significance // Before Farming, 2002, V. 2, № 3, pp. 1–16.
Bartsiokas A. et Day M. H. Lead poisoning and dental caries in the Broken Hill hominid // JHE, 1993, V. 24, № 3, pp. 243–249.
Beattie O. B. et Bryan A. L. A fossilized calotte with prominent browridges from Lagoa Santa, Brazil // Current Anthropology, 1984, V. 25, № 3, pp. 345–346.
Beauval C., Maureille B., Lacrampe-Cuyaubère F., Serre D., Peressinotto D., Bordes J.-G., Cochard D., Couchoud I., Dubrasquet D., Laroulandie V., Lenoble A., Mallye J.-B., Pasty S., Primault J., Rohland N., Pääbo S. et Trinkaus E. A late Neandertal femur from Les Rochers-de-Villeneuve, France // PNAS, 2005, V. 102, № 20, pp. 7085–7090.
Bednarik R. G. The mythical moderns // Journal of World Prehistory, 2008, V. 21, pp. 85–102.
Behar D. M., Villems R., Soodyall H., Blue-Smith J., Pereira L., Metspalu E., Scozzari R., Makkan H., Tzur Sh., Comas D., Bertranpetit J., Quintana-Murci L., Tyler-Smith Ch., Wells R. S., Rosset S. et The Genographic Consortium. The dawn of human matrilineal diversity // The American Journal of Human Genetics, 2008, V. 82, № 5, pp. 1130–1140.
Belmaker M., Tchernov E., Condemi S. et Bar-Yosef O. New evidence for hominid presence in the Lower Pleistocene of the Southern Levant // JHE, 2002, V. 43, № 1, pp. 43–56.
Benazzi S., Douka K., Fornai C., Bauer C. C., Kullmer O., Svoboda J., Pap I., Mallegni F., Bayle P., Coquerelle M., Condemi S., Ronchitelli A., Harvati K. et Weber G. W. Early dispersal of modern humans in Europe and implications for Neanderthal behaviour // Nature, 2011, V. 479, № 7374, pp. 525–528.
Benazzi S., Slon V., Talamo S., Negrino F., Peresani M., Bailey S. E., Sawyer S., Panetta D., Vicino G., Starnini E., Mannino M. A., Salvadori P. A., Meyer M., Pääbo S. et Hublin J.-J. The makers of the Protoaurignacian and implications for Neandertal extinction // Science, 2015, V. 348, № 6236, pp. 793–796.
Bennett M. R., Harris J. W. K., Richmond B. G., Braun D. R., Mbua E., Kiura P., Olago D., Kibunjia M., Omuombo Ch., Behrensmeyer A. K., Huddart D. et Gonzalez S. Early hominin foot morphology based on 1.5-million-year-old footprints from Ileret, Kenya // Science, 2009, V. 323, № 5918, pp. 1197–1201.
Berger L. R. et Clarke R. J. Eagle involvement of the Taung child fauna // JHE, 1995, V. 29, № 3, pp. 275–299.
Berger L. R., Lacruz R. et Ruiter de D. J. Brief communication: revised age estimates of Australopithecus-bearing deposits at Sterkfontein, South Africa // AJPhA, 2002, V. 119, № 2, pp. 192–197.
Berger L. R., Ruiter de D. J., Churchill S. E., Schmid P., Carlson K. J., Dirks P. H. G. M. et Kibii J. M. Australopithecus sediba: a new species of Homo-like australopith from South Africa // Science, 2010, V. 328, № 5975, pp. 195–204.
Berger L. R., Hawks J., Ruiter de D. J., Churchill S. E., Schmid P., Delezene L. K., Kivell T. L., Garvin H. M., Williams S. A., DeSilva J. M., Skinner M. M., Musiba Ch. M., Cameron N., Holliday T. W., Harcourt-Smith W., Ackermann R. R., Bastir M., Bogin B., Bolter D., Brophy J., Cofran Z. D., Congdon K. A., Deane A. S., Dembo M., Drapeau M., Elliott M. C., Feuerriegel E. M., Garcia-Martinez D., Green D. J., Gurtov A., Irish J. D., Kruger A., Laird M. F., Marchi D., Meyer M. R., Nalla Sh., Negash E. W., Orr C. M., Radovcic D., Schroeder L., Scott J. E., Throckmorton Z., Tocheri M. W., VanSickle C., Walker Ch. S., Wei P. et Zipfel B. Homo naledi, a new species of the genus Homo from the Dinaledi Chamber, South Africa // eLIFE, elifesciences.org, 2015, V. 4, № e09560, pp. 1–35.
Berger T. D. et Trinkaus E. Patterns of trauma among the Neandertals // JAS, 1995, V. 22, № 6, pp. 841–852.
Bergman C. A. et Stringer C. B. Fifty years after: Egbert an early Upper Paleolithic juvenile from Ksar Akil, Lebanon // Paléorient, 1989, V. 15, № 2, pp. 99–111.
Berillon G. et Marchal F. From functional interpretation to taxonomic attribution: the OH8 issue // AJPhA, Annual Meeting Issue 2002, Supplement 38, p. 44.
Bermúdez de Castro J. M., Arsuaga J. L., Carbonell E., Rosas A., Martínez I. et Mosquera M. A hominid from the Lower Pleistocene of Atapuerca, Spain: possible ancestor to Neandertals and modern humans // Science, 1997, V. 276, № 5317, pp. 1392–1395.
Betzler C. et Ring U. Sedimentology of the Malawi Rift: facies and stratigraphy of the Chiwondo Beds, northern Malawi // JHE, 1995, V. 28, № 1, pp. 23–35.
Beyene Y., Katoh Sh., WoldeGabriel G., Hart W. K., Uto K., Sudo M., Kondo M., Hyodo M., Renne P. R., Suwa G. et Asfaw B. The characteristics and chronology of the earliest Acheulean at Konso, Ethiopia // PNAS, 2013, V. 110, № 5, pp. 1584–1591.
Bilsborough A. Chronology, variability and evolution in Homo erectus // Variability and Evolution, 2000, V. 8, pp. 5–30.
Birdsell J. B. Preliminary data on the trihybrid origin of the Australian Aborigines // Archaeology & Physical Anthropology in Oceania, 1967, V. 2, № 2, pp. 100–155.
Bischoff J. L., Williams R. W., Rosenbauer R. J., Aranburu A., Arsuaga J. L., García N. et Cuenca-Bescós G. High-resolution U-series dates from the Sima de los Huesos hominids yields 600 +∞ –66 kyrs: implications for the evolution of the early Neanderthal lineage // JAS, 2007, V. 34, pp. 763–770.
Blasco R. et Peris J. F. A uniquely broad spectrum diet during the Middle Pleistocene at Bolomor Cave (Valencia, Spain) // Quaternary International, 2012, V. 252, pp. 16–31.
Blumenschine R. J., Peters Ch. R., Masao F. T., Clarke R. J., Deino A. L., Hay R. L., Swisher C. C., Stanistreet I. G., Ashley G. M., McHenry L. J., Sikes N. E., Merwe N. J. van der, Tactikos J. C., Cushing A. E., Deocampo D. M., Njau J. K. et Ebert J. I. Late Pliocene Homo and hominid land use from Western Olduvai Gorge, Tanzania // Science, 2003, V. 299, № 5610, pp. 1217–1221.
Boaz N. T. A hominoid clavicle from the Mio-Pliocene of Sahabi, Libya // AJPhA, 1980, V. 53, № 1, pp. 49–54.
Boaz N. T. et Howell F. C. A gracile hominid cranium from Upper Member G of the Shungura formation, Ethiopia // AJPhA, 1977, V. 46, № 1, pp. 93–108.
Boaz N. T., Gaziry A. W. et El-Amauti A. New fossil finds from the Libyan Upper Neogene site of Sahabi // Nature, 1979, V. 280, № 5718, pp. 137–140.
Boaz N. T., Ciochon R. L., Xu Q. et Liu J. Large mammalian carnivores as a taphonomic factor in the bone accumulation at Zhoukoudian // Acta Anthropologica Sinica, 2000, Supplement to V. 19, pp. 224–234.
Bocherens H., Billiou D., Mariotti A., Toussaint M., Patou-Mathis M., Bonjean D. et Otte M. New isotopic evidence for dietary habits of Neandertals from Belgium // JHE, 2001, V. 40, № 6, pp. 497–505.
Bocherens H., Drucker D. G., Billiou D., Patou-Mathis M. et Vandermeersch B. Isotopic evidence for diet and subsistence pattern of the Saint-Cesaire I Neanderthal: review and use of a multi-source mixing model // JHE, 2005, V. 49, № 1, pp. 71–87.
Boer de B. Loss of air sacs improved hominin speech abilities // JHE, 2012, V. 62, № 1, pp. 1–6.
Borja C. Detección y caracterización de proteínas fósiles mediante técnicas inmunes. Ph. D. thesis, University of Granada, 1995.
Borja C., Garcia-Pacheco M., Olivares E. G., Scheuenstuhl G. et Lowenstein J. M. Immunospecificity of albumin detected in 1.6 million-year-old fossils from Venta Micena in Orce, Granada, Spain // AJPhA, 1997, V. 103, № 4, pp. 433–441.
Bosch M. D., Mannino M. A., Prendergast A. L., O'Connell T. C., Demarchi B., Taylor Sh. M., Niven L., Plicht van der J. et Hublin J.-J. New chronology for Ksâr 'Akil (Lebanon) supports Levantine route of modern human dispersal into Europe // PNAS, 2015, V. 112, № 25, pp. 7683–7688.
Boulyguina E. Y. et Khrisanfova E. N. Physical type of the Paleolit Man // 12th congress of the European Anthropological Association: millenial perspectives: past, present and future. England, University of Cambrige, 2000, p. 49.
Braga J. et Thackeray F. Early Homo at Kromdraai B: probabilistic and morphological analysis of the lower dentition // Comptes Rendus Palevol, 2003, V. 2, № 4, pp. 269–279.
Brain C. K. New finds at the Swartkrans australopithecine site // Nature, 1970, V. 225, № 5238, pp. 1112–1119.
Brain C. K. The hunters or the hunted? An introduction to African cave taphonomy. Chicago, University of Chicago Press, 1981.
Brain C. K. A taphonomic overview of the Swartkrans fossil assemblages // Swartkrans: a cave's chronicle of early man. Ed.: C. K. Brain. Pretoria, Transvaal Museum, 1993, pp. 257–264.
Brochu Ch. A., Njau J., Blumenschine R. J. et Densmore L. D. A new horned crocodile from the Plio-Pleistocene hominid sites at Olduvai Gorge, Tanzania // PLoS ONE, 2010, V. 5, № 2, p. e9333.
Bromage T. G., Schrenk F. et Juwayeyi Y. M. Paleobiogeography of the Malawi Rift: age and vertebrate paleontology of the Chiwondo Beds, northern Malawi // JHE, 1995a, V. 28, № 1, pp. 37–57.
Bromage T. G., Schrenk F. et Zonneveld F. W. Paleoanthropology of the Malawi Rift: an early hominid mandible from the Chiwondo Beds, northern Malawi // JHE, 1995b, V. 28, № 1, pp. 71–108.
Broom R. The Pleistocene anthropoid apes of South Africa // Nature, 1938, V. 142, № 3591, pp. 377–379.
Broom R. Another new type of fossil ape-man // Nature, 1949, V. 163, № 4132, p. 57.
Brown P. Pleistocene homogeneity and Holocene size reduction: the Australian human skeletal evidence // Archaeology in Oceania, 1987, V. 22, № 2, pp. 41–71.
Brown B., Brown F. H. et Walker A. New hominids from the Lake Turkana Basin, Kenya // JHE, 2001, V. 41, № 1, pp. 29–44.
Brunet M., Beauvilain A., Coppens Y., Heintz E., Moutaye A. H. E. et Pilbeam D. The first australopithecine 2,500 kilometers west of the Rift-Valley (Chad) // Nature, 1995, V. 378, № 6554, pp. 273–275.
Brunet M., Beauvilain A., Coppens Y., Heintz E., Moutaye A. H. E. et Pilbeam D. Australopithecus bahrelghazali, une nouvelle espece d'Hominide ancien de la region de Koro Toro (Tchad) // CRAS, 1996, T. 322, ser. IIa, pp. 907–913.
Brunet M., Guy F., Pilbeam D., Mackaye H. T., Likius A., Ahounta D., Beauvilain A., Blondel C., Bocherens H., Boisserie J.-R., Bonis de L.,
Copppens Y., Dejax J., Denys Ch., Duringer Ph., Eisenmann V., Fanone G., Fronty P., Geraads D., Lehmann Th., Lihoreau F., Louchart A., Mahamat A., Merceron G., Mouchelin G., Otero O., Campomanes P. P., Leon de M. P., Rage J.-C., Sapanet M., Schuster M., Sudre J., Tassy P., Valentin X., Vignaud P., Viriot L., Zazzo A. et Zollikofer Ch. A new hominid from the Upper Miocene of Chad, Central Africa // Nature, 2002, V. 418, № 6894, pp. 152–155.
Brunet M., Guy F., Pilbeam D., Lieberman D. E., Likius A., Mackaye H. T., Ponce de León M. S., Zollikofer Ch. P. E. et Vignaud P. New material of the earliest hominid from the Upper Miocene of Chad // Nature, 2005, V. 434, № 7034, pp. 752–755.
Brunnacker K., Boenigk W., Bruder G., Hahn G. G., Ronen A. et Tillmanns W. Artefakte im Altquartär von Obergaliläa (Nordisrael) // Eiszeitalter und Gegenwart, 1989, V. 39, pp. 109–120.
Buck L. T. et Stringer Ch. B. Having the stomach for it: a contribution to Neanderthal diets? // Quaternary Science Reviews, 2014, V. 96, pp. 161–167.
Burger J., Kirchner M., Bramanti B., Haak W. et Thomas M. G. Absence of the lactase-persistence-associated allele in early Neolithic Europeans // PNAS, 2007, V. 104, № 10, pp. 3736–3741.
Calvo-Rathert M., Goguitchaichvili A., Sologashvili D., Villalaín J. J., Bógalo M. F, Carrancho A. et Maissuradze G. New paleomagnetic data from the hominin bearing Dmanisi paleo-anthropologic site (Southern Georgia, Caucasus) // Quaternary Research, 2008, V. 69, pp. 91–96.
Camarós E., Cueto M., Lorenzo C., Villaverde V. et Rivals F. Large carnivore attacks on hominins during the Pleistocene: a forensic approach with a Neanderthal example // Archaeological and Anthropological Sciences, 2015, doi 10.1007/s12520-015-0248-1.
Campillo D. Study of the Orce man // Los restos humanos de Orce y Cueva Victoria. Eds.: J. Gibert, D. Campillo et E. Garcia Olivares. Institut Paleontologic Dr. M. Crusafont, Diputacio de Barcelona, 1989, pp. 187–220.
Caramelli D., Giunti P., Ricci S., Condemi S. et Longo L. Morphological revision and genetic typing of a Neanderthal fossil from Riparo Mezzena (Verona, Italy) // Paleoanthropology Society meeting, Puerto Rico, 2006, 25 April, A55.
Carbonell E., Bermúdez de Castro J. M., Parés J. M., Pérez-González A., Cuenca-Bescós G., Ollé A., Mosquera M., Huguet R., Made J. van der, Rosas A., Sala R., Vallverdú J., García N., Granger D. E., Martinón-Torres M., Rodríguez X. P., Stock G. M., Vergès J. M., Allué E., Burjachs F., Cáceres I., Canals A., Benito A., Díez C., Lozano M., Mateos A., Navazo M., Rodríguez J., Rosell J. et Arsuaga J. L. The first hominin of Europe // Nature, 2008, V. 452, № 7186, pp. 465–469.
Cârciumaru M., Moncel M.-H., Anghelinu M. et Cârciumaru R. The Cioarei-Borosteni Cave (Carpathian Mountains, Romania): Middle Palaeolithic finds and technological analysis of the lithic assemblages // Antiquity, 2002, V. 76, pp. 681–690.
Carlson K. J., Stout D., Jashashvili T., Ruiter de D. J., Tafforeau P., Carlson K. et Berger L. R. The endocast of MH1, Australopithecus sediba // Science, 2011, V. 333, № 6048, pp. 1402–1407.
Carrier D. R. et Morgan M. H. Protective buttressing of the hominin face // Biological Reviews, 2015, V. 90, № 1, pp. 330–346.
Caspari R. Brief communication: evidence of patology on the frontal bone from Gongwangling // AJPhA, 1997, V. 102, № 4, pp. 565–568.
Cela-Conde C. J. Choosing between two conflicting scientific hypotheses: the Orce dilemmas // Human Evolution, 1999, V. 14, № 1–2, pp. 47–61.
Cerling Th. E., Mbua E., Kirera F. M., Manthi F. K., Grine F. E., Leakey M. G., Sponheimer M. et Uno K. T. Diet of Paranthropus boisei in the early Pleistocene of East Africa // PNAS, 2011, V. 108, № 23, pp. 9337–9341.
Chang Ch.-H., Kaifu Y., Takai M., Kono R. T., Grun R., Matsuura Sh., Kinsley L. et Lin L.-K. The first archaic Homo from Taiwan // Nature Communications, 2015, V. 6, № 6037, pp. 1–10.
Chase Ph. G., Debénath A., Dibble H. L., McPherron Sh. P., Schwarcz H. P., Stafford Th. W. Jr. et Tournepiche J.-F. New dates for the Fontéchevade (Charente, France) Homo remains // JHE, 2007, V. 52, № 2, pp. 217–221.
Chatters J. C., Kennett D. J., Asmerom Y., Kemp B. M., Polyak V., Blank A. N., Beddows P. A., Reinhardt E., Arroyo-Cabrales J., Bolnick D. A., Malhi R. S., Culleton B. J., Erreguerena P. L., Rissolo D., Morell-Hart Sh. et Stafford Th. W. Late Pleistocene human skeleton and mtDNA link Paleoamericans and modern Native Americans // Science, 2014, V. 344, № 6185, pp. 750–754.
Churchill S. E., Holliday T. W., Carlson K. J., Jashashvili T., Macias M. E., Mathews S., Sparling T. L., Schmid P., Ruiter de D. J. et Berger L. R. The upper limb of Australopithecus sediba // Science, 2013, V. 340, № 6129, pp. 1233477–1–1233477–6.
Clark J. D. et Harris J. W. K. Fire and its roles in early hominid lifeways // The African Archaeological Review, 1985, V. 3, pp. 3–27.
Clarke R. J. Latest information on Sterkfontein's Australopithecus skeleton and a new look at Australopithecus // South African Journal of Science, 2008, V. 104, pp. 443–449.
Clarke R. J. A Homo habilis maxilla and other newly-discovered hominid fossils from Olduvai Gorge, Tanzania // JHE, 2012, V. 63, № 2, pp. 418–428.
Clarke R. J. et Tobias P. V. Sterkfontein Member 2 foot bones of the oldest South African hominid // Science, 1995, V. 269, № 5223, pp. 521–524.
Clegg M. et Aiello L. C. A comparison of the Nariokotome Homo erectus with juveniles from a modern human population // AJPhA, 1999, V. 110, № 1, pp. 81–93.
Collard M. et Wood B. Homoplasy and the early hominid masticatory system: inferences from analyses of extant hominoids and papionins // JHE, 2001, V. 41, № 3, pp. 167–194.
Conard N. J. A female figurine from the basal Aurignacian of Hohle Fels Cave in southwestern Germany // Nature, 2009, V. 459, № 7244, pp. 248–252.
Conard N. J., Malina M. et Münzel S. C. New flutes document the earliest musical tradition in southwestern Germany // Nature, 2009, V. 460, № 7256, pp. 737–740.
Condemi S., Mounier A., Giunti P., Lari M., Caramelli D. et Longo L. Possible interbreeding in late Italian Neanderthals? New data from the Mezzena jaw (Monti Lessini, Verona, Italy) // PLoS ONE, 2013, V. 8, № 3, p. e59781.
Copeland S. R., Sponheimer M., Ruiter de D. J., Lee-Thorp J. A., Codron D., Roux le P. J., Grimes V. et Richards M. P. Strontium isotope evidence for landscape use by early hominins // Nature, 2011, V. 474, № 7349, pp. 76–78.
Curnoe D. A review of early Homo in southern Africa focusing on cranial, mandibular and dental remains, with the description of a new species (Homo gautengensis sp. nov.) // HOMO – Journal of Comparative Human Biology, 2010, V. 61, pp. 151–177.
Curnoe D., Grun R., Taylor L. et Thackeray F. Direct ESR dating of a Pliocene hominin from Swartkrans // JHE, 2001, V. 40, № 5, pp. 379–391.
Czarnetzki A., Jakob T. et Pusch C. M. Palaeopathological and variant conditions of the Homo heidelbergensis type specimen (Mauer, Germany) // JHE, 2003, V. 44, № 4, pp. 479–495.
D'Anastasio R., Wroe S., Tuniz C., Mancini L., Cesana D. T., Dreossi D., Ravichandiran M., Attard M., Parr W. C. H., Agur A. et Capasso L. Micro-biomechanics of the Kebara 2 hyoid and its implications for speech in Neanderthals // PLoS ONE, 2013, V. 8, № 12, p. e82261.
Dart R. A. Australopithecus africanus: the man-ape of South Africa // Nature, 1925, V. 115, № 2884, pp. 195–199.
Dart R. A. The Makapansgat Australopithecine Osteodontokeratic Culture // Proceedings of the 3rd Pan-African Congress on Prehistory, 1957, pp. 161–171.
Davidson I. et Solomon S. Was OH 7 the victim of a crocodile attack? // Problem solving in taphonomy: archaeological and palaeontological studies from Europe, Africa and Oceania. Eds.: S. Solomon, I. Davidson et D. Watson. Queensland, St Lucia, Tempus, 1990, pp. 197–206.
Davies W. et Gollop P. The human presence in Europe during the Last Glacial period II. 2003.
Day M. H. Postcranial remains of Homo erectus from Bed IV, Olduvai Gorge, Tanzania // Nature, 1971, V. 232, № 5310, pp. 383–387.
De Ruiter D. KB5223 from Kromdraai B: Australopithecus robustus or early Homo? // AJPhA, 2007, V. 132, Supplement 44, p. 97.
Dediu D. et Levinson S. C. On the antiquity of language: the reinterpretation of Neandertal linguistic capacities and its consequences // Frontiers in Psychology, 2013, V. 4, № 397, pp. 1–17.
DeGusta D. A. Pliocene hominid postcranial fossils from the Middle Awash, Ethiopia. Ph. D. dissertation, Berkeley, University of California, 2004, 593 p.
DeGusta D., Gilbert W. H. et Turner S. P. Hypoglossal canal size and hominid speech // PNAS, 1999, V. 96, № 4, pp. 1800–1804.
Deino A. L. et Hill A. 40Ar/39Ar dating of Chemeron Formation strata encompassing the site of hominid KNM-BC 1, Tugen Hills, Kenya // JHE, 2002, V. 42, № 1/2, pp. 141–151.
Deino A. L., Tauxe L., Monaghan M. et Hill A. 40Ar/39Ar geochronology and paleomagnetic stratigraphy of the Lukeino and lower Chemeron Formations at Tabarin and Kapcheberek, Tugen Hills, Kenya // JHE, 2002, V. 42, № 1/2, pp. 117–140.
Delagnes A., Tribolo Ch., Bertran P., Brenet M., Crassard R., Jaubert J., Khalidi L., Mercier N., Nomade S., Peigné S., Sitzia L., Tournepiche J.-F., Al-Halibi M., Al-Mosabi A. et Macchiarelli R. Inland human settlement in southern Arabia 55,000 years ago. New evidence from the Wadi Surdud Middle Paleolithic site complex, western Yemen // JHE, 2012, V. 63, № 3, pp. 452–474.
Demeter F., Shackelford L. L., Bacon A.-M., Duringer Ph., Westaway K., Sayavongkhamdy Th., Braga J., Sichanthongtip Ph., Khamdalavong Ph., Ponche J.-L., Wang H., Lundstrom C., Patole-Edoumba E. et Karpoff A.-M. Anatomically modern human in Southeast Asia (Laos) by 46 ka // PNAS, 2012, V. 109, № 36, pp. 14375–14380.
Dennell R. et Hailwood E. Late Pliocene artefacts from northern Pakistan // Current Anthropology, 1988, V. 29, № 3, pp. 495–498.
D'Errico F. et Goni M. F. S. Neandertal extinction and the millennial scale climatic variability of OIS 3 // Quaternary Science Reviews, 2003, V. 22, pp. 769–788.
D'Errico F., Zilhao J., Julien M., Baffier D. et Pelegrin J. Neanderthal acculturation in Western Europe? A critical review of the evidence and its interpretation // Current Anthropology, 1998, V. 39, supplement, pp. S1–S44.
D'Errico F., Backwell L., Villa P., Degano I., Lucejko J. J., Bamford M. K., Higham Th. F. G., M. P. Colombini et Beaumont P. B. Early evidence of San material culture represented by organic artifacts from Border Cave, South Africa // PNAS, 2012, V. 109, № 33, pp. 13214–13219.
DeSilva J. M., Holt K. G., Churchill S. E., Carlson K. J., Walker Ch. S., Zipfel B. et Berger L. R. The lower limb and mechanics of walking in Australopithecus sediba // Science, 2013, V. 340, № 6129, pp. 1232999-1–
1232999-5.
Dillehay T. D., Ramirez C., Pino M., Collins M. B., Rossen J. et Pino-Navarro J. D. Monte Verde: seaweed, food, medicine, and the peopling of South America // Science, 2008, V. 320, № 5877, pp. 784–786.
Dillehay T. D., Ocampo C., Saavedra J., Sawakuchi A. O., Vega R. M., Pino M., Collins M. B., Cummings L. S., Arregui I., Villagran X. S., Hartmann G. A., Mella M., González A. et Dix G. New archaeological evidence for an early human presence at Monte Verde, Chile // PLoS ONE, 2015, V. 10, № 11, p. e0141923.
Ding Y.-Ch., Chi H.-Ch., Grady D. L., Morishima A., Kidd J. R., Kidd K. K., Flodman P., Spence M. A., Schuck S., Swanson J. M., Zhang Y.-P. et Moyzis R. K. Evidence of positive selection acting at the human dopamine receptor D4 gene locus // PNAS, 2002, V. 99, № 1, pp. 309–314.
Dingwall H. L., Hatala K. G., Wunderlich R. E. et Richmond B. G. Hominin stature, body mass, and walking speed estimates based on 1.5 million-year-old fossil footprints at Ileret, Kenya // JHE, 2013, V. 64, № 6, pp. 556–568.
Dirks P. H. G. M., Berger L. R., Roberts E. M., Kramers J. D., Hawks J., Randolph-Quinney P. S., Elliott M., Musiba Ch. M., Churchill S. E., Ruiter de D. J., Schmid P., Backwell L. R., Belyanin G. A., Boshoff P., Hunter K. L., Feuerriegel E. M., Gurtov A., Harrison J. du G., Hunter R., Kruger A., Morris H., Makhubela T. V., Peixotto B. et Tucker S. Geological and taphonomic context for the new hominin species Homo naledi from the Dinaledi Chamber, South Africa // eLIFE, elifesciences.org, 2015, V. 4, № e09561, pp. 1–37.
Dominguez-Rodrigo M., Serrallonga J., Juan-Tresserras J., Alcala L. et Luque L. Woodworking activities by early humans: a plant residue analysis on Acheulian stone tools from Peninj (Tanzania) // JHE, 2001, V. 40, № 4, pp. 289–299.
Domínguez-Rodrigo M., Pickering T. R. et Bunn H. T. Configurational approach to identifying the earliest hominin butchers // PNAS, 2010, V. 107, № 49, pp. 20929–20934.
Domínguez-Rodrigo M., Pickering T. R., Baquedano E., Mabulla A., Mark D. F., Musiba Ch., Bunn H. T., Uribelarrea D., Smith V., Diez-Martin F., Pérez-Gonzalez A., Sánchez P., Santonja M., Barboni D., Gidna A., Ashley G., Yravedra J., Heaton J. L. et Arriaza M. C. First partial skeleton of a 1.34-million-year-old Paranthropus boisei from Bed II, Olduvai Gorge, Tanzania // PLoS ONE, 2013, V. 8, № 12, p. e80347.
Douka K., Bergman Ch. A., Hedges R. E. M., Wesselingh F. P. et Higham Th. F. G. Chronology of Ksar Akil (Lebanon) and implications for the colonization of Europe by anatomically modern humans // PLoS ONE, 2013, V. 8, № 9, p. e72931.
Drake A. G., Coquerelle M. et Colombeau G. 3D morphometric analysis of fossil canid skulls contradicts the suggested domestication of dogs during the late Paleolithic // Scientific Reports, 2015, V. 5, pp. 1–8.
Drew I., Perkins D. et Daly P. Prehistoric domestication of animals: effects on bone structure // Science, 1971, V. 171, № 3968, pp. 280–282.
Drew I., Perkins D. et Daly P. The effects of domestication on structure of animal bone // Domestikationsforschung und Geschichte der Haustiere. Budapest, 1973.
Dreyer T. F. A hominid skull from Florisbad, Orange Free State, with a note on the endocranial cast by C. U. Ariens Kappers // Proceedings of the Koninklijke (Nederlandse) Akademie van Wetenschappen te Amsterdam, 1935, V. 38, pp. 119–128.
Dubois Е. On the principal characters of the femur of Pithecanthropus erectus // Proceedings of the Koninklijke Nederlandse Akademie Van Wetenschappen, 1927, V. 29, № 3.
Dumont H. J., Cocquyt Ch., Fontugne M., Arnold M., Reyss J.-L., Bloemendal J., Oldfield F., Steenbergen C. L. M., Korthals H. J. et Zeeb B. A. The end of moai quarrying and its effect on Lake Rano Raraku, Easter Island // Journal of Paleolimnology, 1998, V. 20, pp. 409–422.
Eriksson A. et Manica A. Effect of ancient population structure on the degree of polymorphism shared between modern human populations and ancient hominins // PNAS, 2012, V. 109, № 35, pp. 13956–13960.
Ewing J. F. Preliminary note on the excavation at the Paleolithic site of Ksar Akil, Republic of Lebanon // Antiquity, 1947, V. 21, pp. 186–196.
Ewing J. F. Probable Neanderthaloid from Ksar Akil, Lebanon // AJPhA, 1963, V. 21, № 2, pp. 101–104.
Faivre J.-Ph., Maureille B., Bayle P., Crevecoeur I., Duval M., Grün R., Bemilli C., Bonilauri S., Coutard S., Bessou M., Limondin-Lozouet N., Cottard A., Deshayes Th., Douillard A., Henaff X., Pautret-Homerville C., Kinsley L. et Trinkaus E. Middle Pleistocene human remains from Tourville-la-Rivière (Normandy, France) and their archaeological context // PLoS One, 2014, V. 9, № 10, pp. e104–111.
Falk D., Gage T. B., Dudek B. et Olson T. R. Did more than one species of hominid coexist before 3.0 Ma?: evidence from blood and teeth // JHE, 1995, V. 29, № 6, pp. 591–600.
Falk D., Zollikofer Ch. P. E., Morimoto N. et Ponce de León M. S. Metopic suture of Taung (Australopithecus africanus) and its implications for hominin brain evolution // PNAS, 2012, V. 109, № 22, pp. 8467–8470.
Fariña R. A., Tambusso P. S., Varela L., Czerwonogora A., Di Giacomo M., Musso M., Bracco R. et Gascue A. Arroyo del Vizcaíno, Uruguay: a fossil-rich 30-ka-old megafaunal locality with cut-marked bones // PRS, 2014, V. 281, № 1774, pp. 1–6.
Ferentinos G., Gkioni M., Geraga M. et Papatheodorou G. Early seafaring activity in the southern Ionian Islands, Mediterranean Sea // JAS, 2012, V. 39, № 7, pp. 2167–2176.
Ferguson W. W. A new species of the genus Homo (Primates: Hominidae) from the Plio/Pleistocene of Koobi Fora, in Kenya // Primates, 1995, V. 36, № 1, pp. 69–89.
Ferraro J. V., Plummer Th. W., Pobiner B. L., Oliver J. S., Bishop L. C., Braun D. R., Ditchfield P. W., Seaman III J. W., Binetti K. M., Seaman J. W., Hertel F. et Potts R. Earliest archaeological evidence of persistent hominin carnivory // PLoS ONE, 2013, V. 8, № 4, p. e62174.
Ferring R., Oms O., Agustí J., Berna F., Nioradze M., Shelia T., Tappen M., Vekua A., Zhvania D. et Lordkipanidze D. Earliest human occupations at Dmanisi (Georgian Caucasus) dated to 1.85–1.78 Ma // PNAS, 2011, V. 108, № 26, pp. 10432–10436.
Fiedel S. J. The peopling of the New World: present evidence, new theories, and future directions // Journal of Archaeological Research, 2000, V. 8, № 1, pp. 39–103.
Formicola V. X-linked hypophosphatemic rickets: a probable Upper Paleolithic case // AJPhA, 1995, V. 98, № 4, pp. 403–409.
Formicola V. et Buzhilova A. P. Double child burial from Sunghir (Russia): pathology and inferences for Upper Palaeolithic funerary practices // AJPhA, 2004, V. 124, № 3, pp. 189–198.
Formicola V., Pontrandolfi A. et Svoboda J. The Upper Paleolithic triple burial of Dolní Vestonice: pathology and funerary behavior // AJPhA, 2001, V. 115, № 4, pp. 372–379.
Fu Q., Meyer M., Gao X., Stenzel U., Burbano H. A., Kelso J. et Pääbo S. DNA analysis of an early modern human from Tianyuan Cave, China // PNAS, 2013, V. 110, № 6, pp. 2223–2227.
Fu Q., Li H., Moorjani P., Jay F., Slepchenko S. M., Bondarev A. A., Johnson Ph. L. F., Aximu-Petri A., Prüfer K., Filippo de C., Meyer M., Zwyns N., Salazar-García D. C., Kuzmin Y. V., Keates S. G., Kosintsev P. A., Razhev D. I., Richards M. P., Peristov N. V., Lachmann M., Douka K., Higham Th. F. G., Slatkin M., Hublin J.-J., Reich D., Kelso J., Viola T. B. et Pääbo S. Genome sequence of a 45,000-year-old modern human from western Siberia // Nature, 2014, V. 514, № 7523, pp. 445–450.
Fu Q., Hajdinjak M., Moldovan O. T., Constantin S., Mallick S., Skoglund P., Patterson N., Rohland N., Lazaridis I., Nickel B., Viola B., Prüfer K., Meyer M., Kelso J., Reich D. et Pääbo S. An early modern human from Romania with a recent Neanderthal ancestor // Nature, 2015, V. 524, № 7564, pp. 216–219.
Garralda M. D., Maureille B. et Vandermeersch B. Hyperostosis frontalis interna in a Neandertal from Marillac (Charente, France) // JHE, 2014, V. 67, pp. 76–84.
Gathorne-Hardy F. J. et Harcourt-Smith W. E. H. The super-eruption of Toba, did it cause a human bottleneck? // JHE, 2003, V. 45, № 3, pp. 227–230.
Germonpré M., Sablin M. V., Stevens Rh. E., Hedges R. E. M., Hofreiter M., Stiller M. et Després V. R. Fossil dogs and wolves from Palaeolithic sites in Belgium, the Ukraine and Russia: osteometry, ancient DNA and stable isotopes // JAS, 2009, V. 36, № 2, pp. 473–490.
Germonpré M., Láznicková-Galetová M. et Sablin M. V. Palaeolithic dog skulls at the Gravettian Předmostí site, the Czech Republic // JAS, 2012, V. 39, № 1, pp. 184–202.
Gibert J. et Palmqvist P. Fractal analysis of the Orce skull sutures // JHE, 1995, V. 28, № 6, pp. 561–575.
Gibert J. et Pons-Moyá J. Estudio morfológico de la falange del género Homo de Cueva Victoria (Cartagena, Murcia) // Paleontologia i Evolucio, 1985, V. 18, pp. 49–56.
Gibert J., Agusti J. et Moyá-Solá S. Presencia de Homo sp. en el yacimiento del Pleistoceno inferior de Venta Micena (Orce, Granada) // Paleontologia i Evolucio, 1983, 12 p.
Gibert J., Ribot F., Gibert L., Leakey M., Arribas A. et Martinez B. Presence of the cercopithecid genus Theropithecus in Cueva Victoria (Murcia, Spain) // JHE, 1995, V. 28, № 5, pp. 487–493.
Gibert J., Campillo D., Arques J. M., Garcia-Olivares E., Borja C. et Lowenstein J. Hominid status of the Orce cranial fragment reasserted // JHE, 1998, V. 34, № 2, pp. 203–217.
Gibert J., Gibert L. L., Albaladejo S., Ribot F., Sanchez F. et Gibert P. Molar tooth fragment BL5-0: the oldest human remain found in the Plio-Pleistocene of Orce (Granada province, Spain) // Human Evolution, 1999, V. 14, № 1–2, pp. 3–19.
Gibert J., Sanchez F., Ribot F., Gibert L., Ferrandez C., Iglesias A., Gibert P. et González F. Restes humains dans les sédiments du Pléistocène inférieur de la région d'Orce et de Cueva Victoria (sud-est de l'Espagne) // L'Anthropologie, 2002, V. 106, pp. 669–683.
Gibert J., Gibert L., Ribot F., Ferràndez-Canadell C., Sánchez F., Iglesias A. et Walker M. J. CV-0, an early Pleistocene human phalanx from Cueva Victoria (Cartagena, Spain) // JHE, 2008, V. 54, № 1, pp. 150–156.
Gillespie R. Dating the first Australians // Radiocarbon, 2002, V. 44, № 2, pp. 455–472.
Goldberg P., Weiner S., Bar-Yosef O., Xu Q. et Liu J. Site formation processes at Zhoukoudian, China // JHE, 2001, V. 41, № 5, pp. 483–530.
Golovanova L. V., Doronichev V. B., Cleghorn N. E., Koulkova M. A., Sapelko T. V. et Shackley M. S. Significance of ecological factors in the Middle to Upper Paleolithic transition // Current Anthropology, 2010, V. 51, № 5, pp. 655–691.
Gonçalves V. F., Stenderup J., Rodrigues-Carvalho C., Silva H. P., Gonçalves-Dornelas H., Líryo A., Kivisild T., Malaspinas A.-S., Campos P. F., Rasmussen M., Willerslev E. et Pena S. D. J. Identification of Polynesian mtDNA haplogroups in remains of Botocudo Amerindians from Brazil // PNAS, 2013, V. 110, № 16, pp. 6465–6469.
Gonzalez-Jose R., Gonzalez-Martin A., Hernandez M., Pucciarelli H. M., Sardi M., Rosales A. et Van der Molen S. Craniometric evidence for Palaeoamerican survival in Baja California // Nature, 2003, V. 425, № 6953, pp. 62–65.
Gowlett J. A. J., Harris J. W. K., Walton D. et Wood B. A. Early archaeological sites, hominid remains, and traces of fire from Chesowanja, Kenya // Nature, 1981, V. 294, № 5837, pp. 125–129.
Graves R. R., Lupo A. C., McCarthy R. C., Wescott D. J. et Cunningham D. L. Just how strapping was KNM-WT 15000? // JHE, 2010, V. 59, № 5, pp. 542–554.
Green R. E., Krause J., Ptak S. E., Briggs A. W., Ronan M. T., Simons J. F., Du L., Egholm M., Rothberg J. M., Paunovic M. et PÄÄbo S. Analysis of one million base pairs of Neanderthal DNA // Nature, 2006, V. 444, № 7117, pp. 330–336.
Green R. E., Krause J., Briggs A. W., Maricic T., Stenzel U., Kircher M., Patterson N., Li H., Zhai W., Fritz M. H.-Y., Hansen N. F., Durand E. Y., Malaspinas A.-S., Jensen J. D., Marques-Bonet T., Alkan C., Prüfer K., Meyer M., Burbano H. A., Good J. M., Schultz R., Aximu-Petri A., Butthof A., Höber B., Höffner B., Siegemund M., Weihmann A., Nusbaum Ch., Lander E. S., Russ C., Novod N., Affourtit J., Egholm M., Verna Ch., Rudan P., Brajkovic D., Kucan Ž., Gušic I., Doronichev V. B., Golovanova L. V., Lalueza-Fox C., Rasilla de la M., Fortea J., Rosas A., Schmitz R. W., Johnson Ph. L. F., Eichler E. E., Falush D., Birney E., Mullikin J. C., Slatkin M., Nielsen R., Kelso J., Lachmann M., Reich D. et Pääbo S. A draft sequence of the Neandertal genome // Science, 2010, V. 328, № 5979, pp. 710–722.
Grimaud-Hervé D., Widianto H., Détroit F. et Sémah F. Comparative morphological and morphometric description of the hominin calvaria from Bukuran (Sangiran, Central Java, Indonesia) // JHE, 2012, V. 63, № 5, pp. 637–652.
Grine F. E., Jungers W. L. et Schultz J. Phenetic affinities among early Homo crania from East and South Africa // JHE, 1996, V. 30, № 3, pp. 189–225.
Grine F. E., Smith H. F., Heesy Ch. P. et Smith E. J. Phenetic affinities of Plio-Pleistocene Homo fossils from South Africa: molar cusp proportions // The first humans: origin and early evolution of the genus Homo, vertebrate paleobiology and paleoanthropology. Eds.: F. E. Grine et al. Springer Science + Business Media B. V. 2009, pp. 49–62.
Groves C. P. et Mazak V. An approach to the taxonomy of the Hominidae: gracile Villafranchian hominids of Africa // Casopis pro Mineralogii a Geologii, 1975, V. 20, pp. 225–247.
Grün R, Maroto J., Eggins S., Stringer Ch., Robertson S., Taylor L., Mortimer G. et McCulloch M. ESR and U-series analyses of enamel and dentine fragments of the Banyoles mandible // JHE, 2006, V. 50, № 3, pp. 347–358.
Guy F., Lieberman D. E., Pilbeam D., Ponce de León M., Likius A., Mackaye H. T., Vignaud P., Zollikofer Ch. et Brunet M. Morphological affinities of the Sahelanthropus tchadensis (Late Miocene hominid from Chad) cranium // PNAS, 2005, V. 102, № 52, pp. 18836–18841.
Habgood Ph. J. et Franklin N. R. The revolution that didn't arrive: a review of Pleistocene Sahul // JHE, 2008, V. 55, № 2, pp. 187–222.
Haeusler M. et McHenry H. M. Body proportions of Homo habilis reviewed // JHE, 2004, V. 46, № 4, pp. 433–465.
Haeusler M. et McHenry H. M. Evolutionary reversals of limb proportions in early hominids? Evidence from KNM-ER 3735 (Homo habilis) // JHE, 2007, V. 53, № 4, pp. 383–405.
Haile-Selassie Y. Late Miocene hominids from the Middle Awash, Ethiopia // Nature, 2001, V. 412, № 6843, pp. 178–181.
Haile-Selassie Y., Suwa G. et White T. D. Late Miocene teeth from Middle Awash, Ethiopia, and early hominid dental evolution // Science, 2004, V. 303, № 5663, pp. 1503–1505.
Haile-Selassie Y., Latimer B. M., Alene M., Deino A. L., Gibert L., Melillo S. M., Saylor B. Z., Scott G. R. et Lovejoy C. O. An early Australopithecus afarensis postcranium from Woranso-Mille, Ethiopia // PNAS, 2010a, V. 107, № 27, pp. 12121–12126.
Haile-Selassie Y., Saylor B. Z., Deino A., Alene M. et Latimer B. M. New hominid fossils from Woranso-Mille (Central Afar, Ethiopia) and taxonomy of early Australopithecus // AJPhA, 2010b, V. 141, № 3, pp. 406–417.
Haile-Selassie Y., Gibert L., Melillo S. M., Ryan T. M., Alene M., Deino A., Levin N. E., Scott G. et Saylor B. Z. New species from Ethiopia further expands Middle Pliocene hominin diversity // Nature, 2015, V. 521, № 7553, pp. 483–488.
Halligan J. J., Waters M. R., Perrotti A., Owens I. J., Feinberg J. M., Bourne M. D., Fenerty B., Winsborough B., Carlson D., Fisher D. C., Stafford Th. W. Jr. et Dunbar J. S. Pre-Clovis occupation 14,550 years ago at the Page-Ladson site, Florida, and the peopling of the Americas // Science Advances, 2016, V. 2, p. e1600375.
Harcourt-Smith W. E. H., Throckmorton Z., Congdon K. A., Zipfel B., Deane A. S., Drapeau M. S. M., Churchill S. E., Berger L. R. et DeSilva J. M. The foot of Homo naledi // Nature Communications, 2015, V. 6, № 8432, pp. 1–8.
Hardy K., Buckley S., Collins M. J., Estalrrich A., Brothwell D., Copeland L., García-Tabernero A., García-Vargas S., Rasilla de la M., Lalueza-Fox C., Huguet R., Bastir M., Santamaría D., Madella M., Wilson J., Fernández Cortés Á. et Rosas A. Neanderthal medics? Evidence for food, cooking, and medicinal plants entrapped in dental calculus // Naturwissenschaften, 2012, V. 99, pp. 617–626.
Hardy B. L., Moncel M.-H., Daujeard C., Fernandes P., Béarez Ph., Desclaux E., Chacon Navarro M. G., Puaud S. et Gallotti R. Impossible Neanderthals? Making string, throwing projectiles and catching small game during Marine Isotope Stage 4 (Abri du Maras, France) // Quaternary Science Reviews, 2013, V. 82, pp. 23–40.
Hardy K., Radini A., Buckley S., Sarig R., Copeland L., Gopher A. et Barkai R. Dental calculus reveals potential respiratory irritants and ingestion of essential plant-based nutrients at Lower Palaeolithic Qesem Cave Israel // Quaternary International, 2016, V. 398, pp. 129–135.
Harmand S., Lewis J. E., Feibel C. S., Lepre Ch. J., Prat S., Lenoble A., Boes X., Quinn Rh. L., Brenet M., Arroyo A., Taylor N., Clement S., Daver G., Brugal J.-Ph., Leakey L., Mortlock R. A., Wright J. D., Lokorodi S., Kirwa Ch., Kent D. V. et Roche H. 3.3-million-year-old stone tools from Lomekwi 3, West Turkana, Kenya // Nature, 2015, V. 521, № 7552, pp. 310–315.
Harrison T. The first record of fossil hominins from the Ndolanya Beds, Laetoli, Tanzania // AJPhA, Annual Meeting Issue 2002, Supplement 38, p. 83.
Hawks J., Hunley K., Lee S.-H. et Wolpoff M. Population bottlenecks and Pleistocene human evolution // Molecular Biology and Evolution, 2000, V. 17, № 1, pp. 2–22.
Heinzelin de J., Clark J. D., White T. D., Hart W., Renne P., WoldeGabriel G., Beyene Y. et Vrba E. Environment and behavior of 2.5-million-year-old Bouri hominids // Science, 1999, V. 284, № 5414, pp. 625–629.
Henry A. G., Brooks A. S. et Piperno D. R. Microfossils in calculus demonstrate consumption of plants and cooked foods in Neanderthal diets (Shanidar III, Iraq; Spy I and II, Belgium) // PNAS, 2011, V. 108, № 2, pp. 486–491.
Henry A. G., Ungar P. S., Passey B. H., Sponheimer M., Rossouw L., Bamford M., Sandberg P., Ruiter de D. J. et Berger L. The diet of Australopithecus sediba // Nature, 2012, V. 487, № 7405, pp. 90–93.
Hens S. M., Konigsberg L. W. et Jungers W. L. Estimating stature in fossil hominids: which regression model and reference sample to use? // JHE, 2000, V. 38, № 6, pp. 767–784.
Hershkovitz I., Marder O., Ayalon A., Bar-Matthews M., Yasur G., Boaretto E., Caracuta V., Alex B., Frumkin A., Goder-Goldberger M., Gunz Ph., Holloway R. L., Latimer B., Lavi R., Matthews A., Slon V., Mayer D. B.-Y., Berna F., Bar-Oz G., Yeshurun R., May H., Hans M. G., Weber G. W. et Barzilai O. Levantine cranium from Manot Cave (Israel) foreshadows the first European modern humans // Nature, 2015, V. 520, № 7546, pp. 216–219.
Higham T., Compton T., Stringer Ch., Jacobi R., Shapiro B., Trinkaus E., Chandler B., Gröning F., Collins Ch., Hillson S., O'Higgins P., FitzGerald Ch. et Fagan M. The earliest evidence for anatomically modern humans in northwestern Europe // Nature, 2011, V. 479, № 7374, pp. 521–524.
Hoffman O. F. Geologic context and age of the Perning/Mojokerto Homo erectus, East Java // JHE, 2001, V. 40, № 4, pp. 353–362.
Homo sungirensis. Верхнепалеолитический человек: экологические и эволюционные аспекты исследования. М.: Научный мир, 2000.
Hrdlicka A. The neanderthal phase of man // The Journal of the Royal Anthropological Institute of Great Britain and Ireland, 1927, V. 57, pp. 249–274.
Hublin J.-J. Pathological aspects of the middle Pleistocene skull of Sale (Morocco) // AJPhA, 1994, Supplement 18, p. 110.
Huerta-Sánchez E., Jin X., Asan, Bianba Zh., Peter B. M., Vinckenbosch N., Liang Y., Yi X., He M., Somel M., Ni P., Wang B., Ou X., Huasang, Luosang J., Cuo Zh. X. P., Li K., Gao G., Yin Y., Wang W., Zhang X., Xu X., Yang H., Li Y., Wang J., Wang J. et Nielsen R. Altitude adaptation in Tibetans caused by introgression of Denisovan-like DNA // Nature, 2014, V. 512, № 7513, pp. 194–197.
Huff Ch. D., Xing J., Rogers A. R., Witherspoon D. et Jorde L. B. Mobile elements reveal small population size in the ancient ancestors of Homo sapiens // PNAS, 2010, V. 107, № 5, pp. 2147–2152.
Humphrey N. Cave art, autism, and the evolution of the human mind // Cambridge Archaeological Journal, 1998, V. 8, № 2, pp. 165–191.
Hunt K. et Vitzthum V. J. Dental metric assessment of the Omo fossils: implications for the phylogenetic position of Australopithecus africanus // AJPhA, 1986, V. 71, № 2, pp. 141–155.
Hyodo M., Nakaya H., Urabe A., Saegusa H., Shunrong X., Jiyun Y. et Xuepin J. Paleomagnetic dates of hominid remains from Yuanmou, China, and other Asian sites // JHE, 2002, V. 43, № 1, pp. 27–41.
Irish J. D., Guatelli-Steinberg D., Legge S. S., Ruiter de D. J. et Berger L. R. Dental morphology and the phylogenetic “place” of Australopithecus sediba // Science, 2013, V. 340, № 6129, pp. 1233062–1–1233062–4.
Jablonski N. G., Whitfort M. J., Roberts-Smith N. et Qinqi X. The influence of life history and diet on the distribution of Catarrhine primates during the Pleistocene in eastern Asia // JHE, 2000, V. 39, № 2, pp. 131–157.
James S. R. Hominid use of fire in the Lower and Middle Pleistocene: a review of the evidence // Current Anthropology, 1989, V. 30, № 1, pp. 1–11.
Johanson D. C., White T. D. et Coppens Y. A new species of the genus Australopithecus (Primates: Hominidae) from the Pliocene of eastern Africa // Kirtlandia, 1978, V. 28, pp. 1–14.
Joordens J. C. A., d'Errico F., Wesselingh F. P., Munro S., Vos de J.,
Wallinga J., Ankjærgaard Ch., Reimann T., Wijbrans J. R., Kuiper K. F., Mucher H. J., Coqueugniot H., Prie V., Joosten I., Os B. van, Schulp A. S., Panuel M., Haas V. van der, Lustenhouwer W., Reijmer J. J. G. et Roebroeks W. Homo erectus at Trinil on Java used shells for tool production and engraving // Nature, 2015, V. 518, № 7538, pp. 228–231.
Jungers W. L., Grine F. E., Leakey M. G., Leakey L., Brown F., Yang D. et Tocheri M. W. New hominin fossils from Ileret (Kolom Odiet), Kenya // The 84th Annual Meeting of the American Association of Physical Anthropologists, 2015, Podium Session, Podium Abstract.
Kappelman J., Alcicek M. C., Kazanci N., Schultz M., Ozkul M. et Sen S. Brief communication: first Homo erectus from Turkey and implications for migrations into temperate Eurasia // AJPhA, 2008, V. 135, № 1, pp. 110–116.
Kay R. F., Cartmill M. et Balow M. The hypoglossal canal and the origin of human vocal behavior // PNAS, 1998, V. 95, № 9, pp. 5417–5419.
Kennedy G. E. et Faumina N. A. KMH2 and the comparative morphology of the hyoid bone // AJPhA, Annual Meeting Issue, 2001, Supplement 32, p. 89.
Kenny E. E., Timpson N. J., Sikora M., Yee M.-Ch., Moreno-Estrada A., Eng C., Huntsman S., Burchard E. G., Stoneking M., Bustamante C. D. et Myles S. Melanesian blond hair is caused by an amino acid change in TYRP1 // Science, 2012, V. 336, № 6081, p. 554.
Kibii J. M., Churchill S. E., Schmid P., Carlson K. J., Reed N. D., Ruiter de D. J. et Berger L. R. A partial pelvis of Australopithecus sediba // Science, 2011, V. 333, № 6048, pp. 1407–1411.
Kidd R. S., O'Higgins P. et Oxnard C. E. The OH8 foot: a reappraisal of the functional morphology of the hindfoot utilizing a multivariate analysis // JHE, 1996, V. 31, № 3, pp. 269–291.
Kimbel W. H. et Delezene L. K. “Lucy” redux: a review of research on Australopithecus afarensis // Yearbook of Physical Anthropology, 2009, V. 52, pp. 2–48.
Kimbel W. H., Walter R. C., Johanson D. C., Reed K. E., Aronson J. L., Assefa Z., Marean C., Eck G. G., Bobe R., Hovers E., Rak Y., Vondra C., Yemane T., York D., Chen Y., Evensen N. M. et Smith P. E. Late Pliocene Homo and Oldowan tools from the Hadar Formation (Kada Hadar Member), Ethiopia // JHE, 1996, V. 31, № 6, pp. 549–561.
Kimbel W. H., Johanson D. C. et Rak Y. Systematic assessment of a maxilla of Homo from Hadar, Ethiopia // AJPhA, 1997, V. 103, № 2, pp. 235–262.
Kimbel W., Rak Y. et Johanson D. A new hominin skull from Hadar: implications for cranial sexual dimorphism in Australopithecus afarensis // AAPA Seventy-Second Annual Meeting Abstracts, April 26, 2003, p. 129.
Kinoshita A., Skinner A. R., Guidon N., Ignacio E., Felice G. D., Buco C. de A., Tatumi S., Yee M., Figueiredo A. M. G. et Baffa O. Dating human occupation at Toca do Serrote das Moendas, São Raimundo Nonato, Piauí-Brasil by electron spin resonance and optically stimulated luminescence // JHE, 2014, V. 77, pp. 187–195.
Kittler R., Kayser M. et Stoneking M. Molecular evolution of Pediculus humanus and the origin of clothing // Current Biology, 2003, V. 13, № 16,
Pp. 1414–1417.
Kittler R., Kayser M. et Stoneking M. Erratum. Molecular evolution of Pediculus humanus and the origin of clothing // Current Biology, 2004, V. 14,
P. 2309.
Kivell T. L., Kibii J. M., Churchill S. E., Schmid P. et Berger L. R. Australopithecus sediba hand demonstrates mosaic evolution of locomotor and manipulative abilities // Science, 2011, V. 333, № 6048, pp. 1411–1417.
Kivell T. L., Deane A. S., Tocheri M. W., Orr C. M., Schmid P., Hawks J., Berger L. R. et Churchill S. E. The hand of Homo naledi // Nature Communications, 2015, V. 6, № 8431, pp. 1–9.
Koenigswald von G. H. R. Observation upon two Pithecanthropus mandibles from Sangiran, Central Java // Koninklijke Nederlandse Akademie van Wetenschappen, Series B, 1968, V. 71, № 2, pp. 99–107.
Koller J., Baumer U. et Mania D. High-tech in the middle Palaeolithic: neanderthal manufactured pitch identified // European Journal of Archaeology, 2001, V. 4/3, pp. 385–397.
Kopp G. H., Roos Ch., Butynski Th. M., Wildman D. E., Alagaili A. N., Groeneveld L. F. et Zinner D. Out of Africa, but how and when? The case of hamadryas baboons (Papio hamadryas) // JHE, 2014, V. 76, pp. 154–164.
Kramer A., Donnelly S. M., Kidder J. H., Ousley S. D. et Olah S. M. Craniometric variation in large-bodied hominoids: testing the single-species hypothesis for Homo habilis // JHE, 1995, V. 29, № 5, pp. 443–462.
Krause J., Briggs A. W., Kircher M., Maricic T., Zwyns N., Derevianko A. et Pääbo S. A complete mtDNA genome of an early modern human from Kostenki, Russia // Current Biology, 2010, V. 20, № 3, pp. 231–236.
Krings M., Stone A., Schmitz R. W., Krainitzki H., Stoneking M. et Pääbo S. Neandertal DNA sequences and the origin of modern humans // Cell, 1997, V. 90, № 1, pp. 19–30.
Kuhlwilm M., Gronau I., Hubisz M. J., Filippo de C., Prado-Martinez J., Kircher M., Fu Q., Burbano H. A., Lalueza-Fox C., Rasilla de la M., Rosas A., Rudan P., Brajkovic D., Kucan Ž., Gušic I., Marques-Bonet T., Andrés A. M., Viola B., Pääbo S., Meyer M., Siepel A. et Castellano S. Ancient gene flow from early modern humans into Eastern Neanderthals // Nature, 2016, V. 530, № 7591, pp. 429–433.
Kullmer O., Sandrock O., Kupczik K., Frost S. R., Volpato V., Bromage T. G. et Schrenk F. New primate remains from Mwenirondo, Chiwondo Beds in northern Malawi // JHE, 2011, V. 61, № 5, pp. 617–623.
Kuzmin Y. V. Geoarchaeology of the Lower, Middle, and Early Upper Palaeolithic of Siberia: a review of current evidence // The Review of Archaeology, 2000, V. 21, № 1, pp. 32–40.
Kuzmin Ya. V. et Krivonogov S. K. The Diring Paleolithic site, Eastern Siberia: review of geoarchaeological studies // Geoarchaeology: An International Journal, 1994, V. 9, № 4, pp. 287–300.
Kuzmin Y. V., Jull A. J. T., Lapshina Z. S. et Medvedev V. E. Radiocarbon AMS dating of the ancient sites with earliest pottery from the Russian Far East // Nuclear Instruments and Methods in Physics Research Section B, 1997, V. 123, pp. 496–497.
Lalueza-Fox C., Römpler H., Caramelli D., Stäubert C., Catalano G., Hughes D., Rohland N., Pilli E., Longo L., Condemi S., Rasilla de la M., Fortea J., Rosas A., Stoneking M., Schöneberg T., Bertranpetit J. et Hofreiter M. A melanocortin 1 receptor allele suggests varying pigmentation among Neanderthals // Science, 2007, V. 318, № 5855, pp. 1453–1455.
Lalueza-Fox C., Gigli E., Rasilla de la M., Fortea J., Rosas A., Bertranpetit J. et Krause J. Genetic characterization of the ABO blood group in Neandertals // BMC Evolutionary Biology, 2008, V. 8, pp. 342–346.
Lalueza-Fox C., Rosas A., Estalrrich A., Gigli E., Campos P. F., García-Tabernero A., García-Vargas S., Sánchez-Quinto F., Ramírez O., Civit S., Bastir M., Huguet R., Santamaría D., Gilbert M. Th. P., Willerslev E. et Rasilla de la M. Genetic evidence for patrilocal mating behavior among Neandertal groups // PNAS, 2011, V. 108, № 1, pp. 250–253.
Langbroek M. et Roebroeks W. Extraterrestrial evidence on the age of the hominids from Java // JHE, 2000, V. 38, № 4, pp. 595–600.
Lari M., Di Vincenzo F., Borsato A., Ghirotto S., Micheli M., Balsamo C., Collina C., De Bellis G., Frisia S., Giacobini G., Gigli E., Hellstrom J. C., Lannino A., Modi A., Pietrelli A., Pilli E., Profico A., Ramirez O., Rizzi E., Vai S., Venturo D., Piperno M., Lalueza-Fox C., Barbujani G., Caramelli D. et Manzi G. The Neanderthal in the karst: first dating, morphometric, and paleogenetic data on the fossil skeleton from Altamura (Italy) // JHE, 2015, V. 82, pp. 88–94.
Larick R., Ciochon R. L., Zaim Y., Sudijono, Suminto, Rizal Y., Aziz F., Reagan M. et Heizler M. Early Pleistocene 40Ar/39Ar ages for Bapang Formation hominins, Central Jawa, Indonesia // PNAS, 2001, V. 98, № 9, pp. 4866–4871.
Latimer B. et Ohman J. Axial displasia in Homo erectus // JHE, 2001, V. 40, p. A12.
Le Fur S., Fara E., Mackaye H. T., Vignaud P. et Brunet M. Toros-Menalla (Chad, 7 Ma), the earliest hominin-bearing area: how many mammal paleocommunities? // JHE, 2014, V. 69, pp. 79–90.
Leakey L. S. B. A new fossil skull from Olduvai // Nature, 1959, V. 184, № 4685, pp. 491–493.
Leakey R. Recent fossil finds from East Africa // Human origins. Ed.: J. R. Durant. Oxford, Clarendon Press, 1989, pp. 60–61.
Leakey L. S. B., Tobias P. V. et Napier J. R. A new species of the genus Homo from Olduvai Gorge // Nature, 1964, V. 202, № 4927, pp. 7–9.
Leakey M. G., Feibel C. S., McDougall I. et Walker A. C. New four-million-year-old hominid species from Kanapoi and Allia Bay, Kenya // Nature, 1995, V. 376, № 6541, pp. 565–571.
Leakey M. G., Spoor F., Brown F. H., Gathogo P. N., Kiarie Ch. K., Leakey L. N. et McDougalls I. New hominin genus from eastern Africa shows diverse middle Pliocene lineages // Nature, 2001, V. 410, № 6827, pp. 433–440.
Leakey M. G., Spoor F., Dean M. Ch., Feibel C. S., Anton S. C., Kiarie Ch. et Leakey L. N. New fossils from Koobi Fora in northern Kenya confirm taxonomic diversity in early Homo // Nature, 2012, V. 488, № 7410, pp. 201–204.
Lebatard A.-E., Bourles D. L., Duringer Ph., Jolivet M., Braucher R., Carcaillet J., Schuster M., Arnaud N., Monie P., Lihoreau F., Likius A., Mackaye H. T., Vignaud P. et Brunet M. Cosmogenic nuclide dating of Sahelanthropus tchadensis and Australopithecus bahrelghazali: Mio-Pliocene hominids from Chad // PNAS, 2008, V. 105, № 9, pp. 3226–3231.
Lee S.-H. et Wolpoff M. H. Habiline variation: a new approach using STET // Theory in Biosciences, 2005, V. 124, pp. 25–40.
Lee-Thorp J., Likius A., Mackaye H. T., Vignaud P., Sponheimer M. et Brunet M. Isotopic evidence for an early shift to C4 resources by Pliocene hominins in Chad // PNAS, 2012, V. 109, № 50, pp. 20369–20372.
Leonard J. A., Wayne R. K. et Cooper A. Population genetics of Ice Age brown bears // PNAS, 2000, V. 97, № 4, pp. 1651–1654.
Lepre Ch. J., Roche H., Kent D. V., Harmand S., Quinn Rh. L., Brugal J.-Ph., Texier P.-J., Lenoble A. et Feibel C. S. An earlier origin for the Acheulian // Nature, 2011, V. 477, № 7362, pp. 82–85.
Li H., Yang X., Heller F. et Li H. High resolution magnetostratigraphy and deposition cycles in the Nihewan Basin (North China) and their significance for stone artifact dating // Quaternary Research, 2008, V. 69, pp. 250–262.
Lie B. A., Dupuy B. M., Spurkland A., Fernandez-Vina M. A., Hagelberg E. et Thorsby E. Molecular genetic studies of natives on Easter Island: evidence of an early European and Amerindian contribution to the Polynesian gene pool // Tissue Antigens, 2006, V. 69, № 1, pp. 10–18.
Lieberman P. On the Kebara KMH 2 hyoid and Neanderthal speech // Current Anthropology, 1993, V. 34, № 2, pp. 172–175.
Lieberman P. et Crelin E. S. On the speech of Neanderthal man // Linguistic Inquiry, 1971, V. 2, pp. 203–222.
Lieberman D. E., Pilbeam D. R. et Wood B. A. Homoplasy and early Homo: an analysis of the evolutionary relationships of H. habilis sensu stricto and H. rudolfensis // JHE, 1996, V. 30, № 2, pp. 97–120.
Liu W., Jin Ch.-Zh., Zhang Y.-Q., Cai Y.-J., Xing S., Wu X.-J., Cheng H., Edwards R. L., Pan W.-Sh., Qin D.-G., An Zh.-Sh., Trinkaus E. et Wu X.-Zh. Human remains from Zhirendong, South China, and modern human emergence in East Asia // PNAS, 2010, V. 107, № 45,
Pp. 19201–19206.
Liu W., Martinón-Torres M., Cai Ya.-J., Xing S., Tong H.-W., Pei Sh.-W., Sier M. J., Wu X.-H., Edwards R. L., Cheng H., Li Y.-Y., Yang X.-X., Bermúdez de Castro J. M. et Wu X.-J. The earliest unequivocally modern humans in southern China // Nature, 2015, V. 526, № 7575, pp. 696–699.
Lordkipanidze D., Jashashvili T., Vekua A., Ponce de León M. S., Zollikofer Ch. P. E., Rightmire G. Ph., Pontzer H., Ferring R., Oms O., Tappen M., Bukhsianidze M., Agusti J., Kahlke R., Kiladze G., Martinez-Navarro B., Mouskhelishvili A., Nioradze M. et Rook L. Postcranial evidence from early Homo from Dmanisi, Georgia // Nature, 2007, V. 449, № 7160, pp. 305–310.
Lordkipanidze D., Ponce de León M. S., Margvelashvili A., Rak Y., Rightmire G. Ph., Vekua A. et Zollikofer Ch. P. E. A complete skull from Dmanisi, Georgia, and the evolutionary biology of early Homo // Science, 2013, V. 342, № 6156, pp. 326–331.
Lorenzo C., Pablos A., Carretero J. M., Huguet R., Valverdú J., Martinón-Torres M., Arsuaga J. L., Carbonell E. et Bermúdez de Castro J. M. Early Pleistocene human hand phalanx from the Sima del Elefante (TE) cave site in Sierra de Atapuerca (Spain) // JHE, 2015, V. 78, pp. 114–121.
Lovejoy C. O. Reexamining human origins in light of Ardipithecus ramidus // Science, 2009, V. 326, № 5949, pp. 74e1–74e8.
Lovejoy C. O., Latimer B., Suwa G., Asfaw B. et White T. D. Combining prehension and propulsion: the foot of Ardipithecus ramidus // Science, 2009a, V. 326, № 5949, pp. 72e1–72e8.
Lovejoy C. O., Simpson S. W., White T. D., Asfaw B. et Suwa G. Careful climbing in the Miocene: the forelimbs of Ardipithecus ramidus and humans are primitive // Science, 2009b, V. 326, № 5949, pp. 70e1–70e8.
Lovejoy C. O., Suwa G., Simpson S. W, Matternes J. H. et White T. D. The great divides: Ardipithecus ramidus reveals the postcrania of our last common ancestors with african apes // Science, 2009c, V. 326, № 5949, pp. 100–106.
Lovejoy C. O., Suwa G., Spurlock L., Asfaw B. et White T. D. The pelvis and femur of Ardipithecus ramidus: the emergence of upright walking // Science, 2009d, V. 326, № 5949, pp. 71e1–71e6.
Lowery R. K., Uribe G., Jimenez E. B., Weiss M. A., Herrera K. J., Regueiro M. et Herrera R. J. Neanderthal and Denisova genetic affinities with contemporary humans: introgression versus common ancestral polymorphisms // Gene, 2013, V. 530, № 1, pp. 83–94.
Lumley de H. A palaeolithic camp at Nice // Scientific American, 1969, V. 220, № 5, pp. 42–50.
Malez M. Ostaci fosilnog covjeka iz gornjeg pleistocena Sandalje kod Pule (Istra). Zagreb, Jugoslavenska akademija znanosti i umjetnosti, Razred za prirodne nauke, 1972.
Manzi G. Italian prehistoric promenades: the human fossil sample. From the “earliest European” to the latest Neandertals // Miscelanea en homenaje a Emiliano Aguirre. Paleoantropologia. 2004, pp. 221–230.
Manzi G., Magri D., Milli S., Palombo M. R., Margari V., Celiberti V., Barbieri M., Barbieri M., Melis R. T., Rubini M., Ruffo M., Saracino B., Tzedakis P. C., Zarattini A. et Biddittu I. The new chronology of the Ceprano calvarium (Italy) // JHE, 2010, V. 59, № 5, pp. 580–585.
Martínez I., Rosa M., Arsuaga J.-L., Jarabo P., Quam R., Lorenzo C., Gracia A., Carretero J.-M., Bermúdez de Castro J.-M. et Carbonell E. Auditory capacities in Middle Pleistocene humans from the Sierra de Atapuerca in Spain // PNAS, 2004, V. 101, № 27, pp. 9976–9981.
Martínez I., Arsuaga J. L., Quam R., Carretero J. M., Gracia A. et Rodríguez L. Human hyoid bones from the middle Pleistocene site of the Sima de los Huesos (Sierra de Atapuerca, Spain) // JHE, 2008, V. 54, № 1, pp. 118–124.
Martínez-Navarro B. The skull of Orce: parietal bones or frontal bones? // JHE, 2002, V. 43, № 2, pp. 265–270.
Martínez-Navarro B., Claret A., Shabel A. B., Pérez-Claros J. A., Lorenzo C. et Palmqvist P. Early Pleistocene “hominid remains” from southern Spain and the taxonomic assignment of the Cueva Victoria phalanx // JHE, 2005, V. 48, № 5, pp. 517–523.
Martínez-Navarro B., Palmqvist P., Shabel A. B., Pérez-Claros J. A., Lorenzo C. et Claret A. Reply to Gibert et al. (2008) on the supposed human phalanx from Cueva Victoria (Cartagena, Spain) // JHE, 2008, V. 54, № 1, pp. 157–161.
Maureille B. La redécouverte du nouveau-né néandertalien Le Moustier 2 // Paleo, 2002, № 14, pp. 221–238.
McBrearty S. et Brooks A. S. The revolution that wasn't: a new interpretation of the origin of modern human behavior // JHE, 2000, V. 39, № 5, pp. 453–563.
McDougall I., Brown F. H., Vasconcelos P. M., Cohen B. E., Thiede D. S. et Buchanan M. J. New single crystal 40Ar/39Ar ages improve time scale for deposition of the Omo Group, Omo – Turkana Basin, East Africa // Journal of the Geological Society, 2012, V. 169, pp. 213–226.
McHenry H. M. et Coffing K. Australopithecus to Homo: transformations in body and mind // Annual Review of Anthropology, 2000, V. 29, pp. 125–146.
McKee J. K. The Taung raptor hypothesis: caveats and new evidence // AJPhA, Annual Meeting Issue 2002, Supplement 38, p. 107.
McPherron Sh. P., Alemseged Z., Marean C. W., Wynn J. G., Reed D., Geraads D., Bobe R. et Bearat H. A. Evidence for stone-tool-assisted consumption of animal tissues before 3.39 million years ago at Dikika, Ethiopia // Nature, 2010, V. 466, № 7308, pp. 857–860.
Medig M., Meir R., Sahnouni M. et Derradji A. Découverte d'un crâne humain dans les niveaux ibéromaurusiens de la grotte de Taza 1, Algérie // CRAS, 1996, V. 323, sér. IIa, pp. 825–831.
Mednikova M. B. A proximal pedal phalanx of a Paleolithic hominin from Denisova Cave, Altai // Archaeology, Ethnology and Anthropology of Eurasia, 2011, V. 39, № 1, pp. 129–138.
Meier R. J., Sahnouni M., Medig M. et Derradji A. Human skull from the Taza locality, Jijel, Algeria // Anthropologischer Anzeiger, 2003, V. 61, № 2, pp. 129–140.
Menter C. G., Kuykendall K. L., Keyser A. W. et Conroy G. C. First record of hominid teeth from the Plio-Pleistocene site of Gondolin, South Africa // JHE, 1999, V. 37, № 2, pp. 299–307.
Meyer M. R., Lordkipanidze D. et Vekua A. Language and empathy in Homo erectus: behaviors suggested by a modern spinal cord from Dmanisi, but not Nariokotome // Paleoanthropology Society meeting, Puerto Rico, 2006, 24 April, A20.
Meyer M., Kircher M., Gansauge M.-Th., Li H., Racimo F., Mallick S., Schraiber J. G., Jay F., Prüfer K., Filippo de C., Sudmant P. H., Alkan C., Fu Q., Do R., Rohland N., Tandon A., Siebauer M., Green R. E., Bryc K., Briggs A. W., Stenzel U., Dabney J., Shendure J., Kitzman J., Hammer M. F., Shunkov M. V., Derevianko A. P., Patterson N., Andrés A. M., Eichler E. E., Slatkin M., Reich D., Kelso J. et Pääbo S. A high-coverage genome sequence from an archaic Denisovan individual // Science, 2012, V. 338, № 6104, pp. 222–226.
Mijares A. S., Détroit F., Piper Ph., Grün R., Bellwood P., Aubert M., Champion G., Cuevas N., De Leon A. et Dizon E. New evidence for a 67,000-year-old human presence at Callao Cave, Luzon, Philippines // JHE, 2010, V. 59, № 1, pp. 123–132.
Miller J. M. A. Craniofacial variation in Homo habilis: an analysis of the evidence for multiple species // AJPhA, 2000, V. 112, № 1, pp. 103–128.
Miller J. M. A., Albrecht G. H. et Gelvin B. R. Craniofacial variation in Homo habilis compared to modern chimpanzees // AJPhA, Annual Meeting Issue 2002, Supplement 38, p. 113.
Miller C. R., Waits L. P. et Joyce P. Phylogeography and mitochondrial diversity of extirpated brown bear (Ursus arctos) populations in the contiguous United States and Mexico // Molecular Ecology, 2006, pp. 1–9.
Moggi-Cecchi J. et Collard M. A fossil stapes from Sterkfontein, South Africa, and the hearing capabilities of early hominids // JHE, 2002, V. 42, № 3, pp. 259–265.
Moggi-Cecchi J., Tobias P. V. et Beynon A. D. The mixed dentition and associated skull fragments of a juvenil fossil hominid from Sterkfontein, South Africa // AJPhA, 1998, V. 106, № 4, pp. 426–466.
Monge J., Kricun M., Radovcic Ja., Radovcic D., Mann A. et Frayer D. W. Fibrous dysplasia in a 120,000+ year old Neandertal from Krapina, Croatia // PLoS One, 2013, V. 8, № 6, p. e64539.
Montandon G. L'homme prehistorique et les prehumains. Paris, Payot, 1943.
Montgomery P. Q., Williams H. O. L., Reading N. et Stringer C. B. An assessment of the temporal bone lesions of the Broken Hill cranium // JAS, 1994, V. 21, № 3, pp. 331–337.
Moran A. J. et Chamberlain A. T. The incidence of dorsal sulci of the scapula in a modern human population from Ensay, Scotland // JHE, 1997, V. 33, № 4, pp. 521–524.
Morgan M. H. et Carrier D. R. Protective buttressing of the human fist and the evolution of hominin hands // The Journal of Experimental Biology, 2013, V. 216, № 2, р. 236–244.
Moyà-Solà S. et Köhler M. The Orce skull: anatomy of a mistake // JHE, 1997, V. 33, № 1, pp. 91–97.
Muttoni G., Scardia G. et Kent D. V. A critique of evidence for human occupation of Europe older than the Jaramillo subchron (~1 Ma): соmmеnt on 'The oldest human fossil in Europe from Orce (Spain) ' by Toro-Moyano et al. (2013) // JHE, 2013, V. 65, № 6, pp. 746–749.
Nakatsukasa M., Pickford M., Egi N. et Senut B. Femur length, body mass, and stature estimates of Orrorin tugenensis, a 6 Ma hominid from Kenya // Primates, 2007, V. 48, № 3, pp. 171–178.
Neves W. A. et Hubbe M. Cranial morphology of early Americans from Lagoa Santa, Brazil: implications for the settlement of the New World // PNAS, 2005, V. 102, № 51, pp. 18309–18314.
Noonan J. P., Coop G., Kudaravalli S., Smith D., Krause J., Alessi J., Chen F., Platt D., Pääbo S., Pritchard J. K. et Rubin E. M. Sequencing and analysis of Neanderthal genomic DNA // Science, 2006, V. 314, № 5802, pp. 1113–1118.
O'Connell J. F. et Allen J. When did humans first arrive in Greater Australia, and why is it important to know? // Evolutionary Anthropology, 1998, V. 6, № 4, pp. 132–146.
O'Connell J. F. et Allen J. Dating the colonization of Sahul (Pleistocene Australia – New Guinea): a review of recent research // JAS, 2004, V. 31, № 6, pp. 835–853.
Oms O., Parés J. M., Martinez-Navarro B., Agustí J., Toro I., Martinez-Fernández G. et Turq A. Early human occupation of Western Europe: paleomagnetic dates for two paleolithic sites in Spain // PNAS, 2000, V. 97, № 19, pp. 10666–10670.
Osborn H. F. Hesperopithecus, the first anthropoid primate found in America // American Museum Novitates, 1922, № 37, pp. 1–5.
Palmqvist P. A critical re-evaluation on the evidence for the presence of hominids in Lower Pleistocene times at Venta Micena, Southern Spain // JHE, 1997, V. 33, № 1, pp. 83–89.
Palmqvist P., Pérez-Claros J. A., Gilbert J. et Santamaría J. L. Comparative morphometric study of a human phalanx from the Lower Pleistocene site at Cueva Victoria (Murcia, Spain), by means of Fourier analysis, shape coordinates of landmarks, principal and relative warps // JAS, 1996, V. 23, № 1, pp. 95–107.
Palmqvist P., Martínez-Navarro B., Toro I., Patrocinio Espigares M., Ros-Montoya S., Torregrosa V. et Pérez-Claros J. A. Réévaluation de la présence humaine au Pléistocène inférieur dans le Sud de l'Espagne // L'anthropologie, 2005, V. 109, pp. 411–450.
Pares J. M. et Goguitchaichvili A. On the earliest human occupation in Europe: paleomagnetic constraints // Geofisica International, 2001, V. 40, № 3, pp. 239–242.
Parfitt S. A., Barendregt R. W., Breda M., Candy I., Collins M. J., Coope G. R., Durbidge P., Field M. H., Lee J. R., Lister A. M., Mutch R., Penkman K. E. H., Preece R. C., Rose J., Stringer Ch. B., Symmons R., Whittaker J. E., Wymer J. J. et Stuart A. J. The earliest record of human activity in northern Europe // Nature, 2005, V. 438, № 7070, pp. 1008–1012.
Partridge T. C., Granger D. E., Caffee M. W. et Clarke R. J. Lower Pliocene hominid remains from Sterkfontein // Science, 2003, V. 300, № 5619, pp. 607–612.
Pei W. C. Notes of the discovery of quartz and other stone artefacts in the lower pleistocene hominid bearing sediments of the Choukoutien cave disposits // Bulletin of Geological Society of China, 1931, V. 11, № 2, pp. 149–156.
Perkins D. Jr. Prehistoric fauna from Shanidar, Iraq // Science, 1964, V. 144, № 3626, pp. 1565–1566.
Perrin M. R. A fossilised humerus of a lovebird tells little of the Pleistocene habitat of Australopithecus robustus // South African Journal of Science, 2011, V. 107, № 9/10, p. 1.
Perry G. H., Dominy N. J., Claw K. G., Lee A. S., Fiegler H., Redon R., Werner J., Villanea F. A., Mountain J. L., Misra R., Carter N. P., Lee Ch. et Stone A. C. Diet and the evolution of human amylase gene copy number variation // Nature Genetics, 2007, V. 39, № 10, pp. 1256–1260.
Pesci M. Geomorphological position and absolute age of the Vertesszollos Lower Palaeolithic site // Vertesszollos: site, man and culture. Eds.: M. Kretzoi et V. Dobosi. Budapest, Akademiai Kiado, 1990, pp. 27–62.
Peters Ch. R. et Blumenschine R. J. Landscape perspectives on possible land use patterns for Early Pleistocene hominids in the Olduvai Basin, Tanzania // JHE, 1995, V. 29, № 4, pp. 321–362.
Petraglia M., Korisettar R., Boivin N., Clarkson Ch., Ditchfield P., Jones S., Koshy J., Lahr M. M., Oppenheimer C., Pyle D., Roberts R., Schwenninger J.-L., Arnold L. et White K. Middle Paleolithic assemblages from the Indian subcontinent before and after the Toba super-eruption // Science, 2007, V. 317, № 5834, pp. 114–116.
Pickering T. R. Taphonomic interpretations of the Sterkfontein early hominid site (Gauteng, South Africa) reconsidered in light of recent evidence. Ph. D. dissertation, University of Wisconsin, 1999.
Pickering T. R., White T. D. et Toth N. Brief communication: cutmarks on a Plio-Pleistocene hominid from Sterkfontein, South Africa // AJPhA, 2000, V. 111, № 1, pp. 579–584.
Pickering T. R., Clarke R. J. et Moggi-Cecchi J. Role of carnivores in the accumulation of the Sterkfontein Member 4 hominid assemblage: a taphonomic reassessment of the complete hominid fossil sample (1936–1999) // AJPhA, 2004, V. 125, № 1, pp. 1–15.
Pickford M., Senut B., Gommery D. et Treil J. Bipedalism in Orrorin tugenensis revealed by its femora // Comptes Rendus Palevol, 2002, V. 1, № 4, pp. 191–203.
Pike A. W. G., Hoffmann D. L., García-Diez M., Pettitt P. B., Alcolea J., De Balbín R., González-Sainz C., Heras de las C., Lasheras J. A., Montes R. et Zilhão J. U-series dating of Paleolithic art in 11 caves in Spain // Science, 2012, V. 336, № 6087, pp. 1409–1413.
Pinhasi R., Higham Th. F. G., Golovanova L. V. et Doronichev V. B. Revised age of late Neanderthal occupation and the end of the Middle Paleolithic in the northern Caucasus // PNAS, 2011, V. 108, № 21, pp. 8611–8616.
Pinhasi R., Nioradze M., Tushabramishvili N., Lordkipanidze D., Pleurdeau D., Moncel M.-H., Adler D. S., Stringer C. et Higham T. F. G. New chronology for the Middle Palaeolithic of the southern Caucasus suggests early demise of Neanderthals in this region // JHE, 2012, V. 63, № 6, pp. 770–780.
Ponce de León M. S., Golovanova L., Doronichev V., Romanova G., Akazawa T., Kondo O., Ishida H. et Zollikofer Ch. P. E. Neanderthal brain size at birth provides insights into the evolution of human life history // PNAS, 2008, V. 105, № 37, pp. 13764–13768.
Prat S., Brugal J.-Ph., Tiercelin J.-J., Barrat J.-A., Bohn M., Delagnes A., Harmand S., Kimeu K., Kibunjia M., Texier P.-J. et Roche H. First occurrence of early Homo in the Nachukui Formation (West Turkana, Kenya) at 2.3–2.4 Myr // JHE, 2005, V. 49, № 2, pp. 230–240.
Prise J. L. et Molleson T. I. A radiographic examination of the left temporal bone of Kabwe man, Broken Hill Mine, Zambia // JAS, 1974, V. 1, № 3, pp. 285–289.
Puech P.-F. et Cianfarani F. Interproximal grooving of theeth: additional evidence and interpretation. Comments // Current Anthropology, 1988, V. 29, № 4, pp. 665–668.
Puymerail L., Ruff Ch. B., Bondioli L., Widianto H., Trinkaus E. et Macchiarelli R. Structural analysis of the Kresna 11 Homo erectus femoral shaft (Sangiran, Java) // JHE, 2012, V. 63, № 5, pp. 741–749.
Raghavan M., Skoglund P., Graf K. E., Metspalu M., Albrechtsen A., Moltke I., Rasmussen S., Stafford Th. W., Orlando L., Metspalu E., Karmin M., Tambets K., Rootsi Siiri, Magi R., Campos P. F., Balanovska E., Balanovsky O., Khusnutdinova E., Litvinov S., Osipova L. P., Fedorova S. A., Voevoda M. I., DeGiorgio M., Sicheritz-Ponten Th., Brunak S., Demeshchenko S., Kivisild T., Villems R., Nielsen R., Jakobsson M. et Willerslev E. Upper Palaeolithic Siberian genome reveals dual ancestry of Native Americans // Nature, 2014, V. 505, № 7481, pp. 87–91.
Ramirez Rozzi F. V. et Bermudez de Castro J. M. Surprisingly rapid growth in Neanderthals // Nature, 2004, V. 428, № 6986, pp. 936–939.
Ramirez Rozzi F. V., d'Errico F., Vanhaeren M., Grootes P. M., Kerautret B. et Dujardin V. Cutmarked human remains bearing Neandertal features and modern human remains associated with the Aurignacian at Les Rois // Journal of Anthropological Science, 2009, V. 87, pp. 153–185.
Rasmussen M., Guo X., Wang Y., Lohmueller K. E., Rasmussen S., Albrechtsen A., Skotte L., Lindgreen S., Metspalu M., Jombart Th., Kivisild T., Zhai W., Eriksson A., Manica A., Orlando L., De La Vega F., Tridico S., Metspalu E., Nielsen K., Ávila-Arcos M. C., Moreno-Mayar J. V., Muller C., Dortch J., Gilbert M. Th. P., Lund O., Wesolowska A., Karmin M., Weinert L. A., Wang B., Li J., Tai Sh., Xiao F., Hanihara T., Driem van G., Jha A. R., Ricaut F.-X., Knijff de P., Migliano A. B., Gallego-Romero I., Kristiansen K., Lambert D. M., Brunak S., Forster P., Brinkmann B., Nehlich O., Bunce M., Richards M., Gupta R., Bustamante C. D., Krogh A., Foley R. A., Lahr M. M., Balloux F., Sicheritz-Pontén Th., Villems R., Nielsen R., Wang J. et Willerslev E. An Aboriginal Australian genome reveals separate human dispersals into Asia // Science, 2011, V. 334, № 6052, pp. 94–98.
Rasmussen M., Anzick S. L., Waters M. R., Skoglund P., DeGiorgio M., Stafford Th. W., Rasmussen S., Moltke I., Albrechtsen A., Doyle Sh. M., Poznik G. D., Gudmundsdottir V., Yadav R., Malaspinas A.-S., White V. S. S., Allentoft M. E., Cornejo O. E., Tambets K., Eriksson A., Heintzman P. D., Karmin M., Korneliussen Th. S., Meltzer D. J., Pierre T. L., Stenderup J., Saag L., Warmuth V. M., Lopes M. C., Malhi R. S., Brunak S., Sicheritz-Ponten Th., Barnes I., Collins M., Orlando L., Balloux F., Manica A., Gupta R., Metspalu M., Bustamante C. D., Jakobsson M., Nielsen R. et Willerslev E. The genome of a Late Pleistocene human from a Clovis burial site in western Montana // Nature, 2014, V. 506, № 7487, pp. 225–229.
Reed D. L., Smith V. S., Hammond Sh. L., Rogers A. R. et Clayton D. H. Genetic analysis of lice supports direct contact between modern and archaic humans // PLoS Biology, 2004, V. 2, № 11, p. e340.
Reich D., Patterson N., Kircher M., Delfin F., Nandineni M. R., Pugach I., Ko A. M.-Sh., Ko Y.-Ch., Jinam T. A., Phipps M. E., Saitou N., Wollstein A., Kayser M., Pääbo S. et Stoneking M. Denisova admixture and the first modern human dispersals into Southeast Asia and Oceania // The American Journal of Human Genetics, 2011, V. 89, № 4, pp. 516–528.
Renne P. R., Feinberg J. M., Waters M. R., Arroyo-Cabrales J., Ochoa-Castillo P., Perez-Campa M. et Knight K. B. Geochronology: age of Mexican ash with alleged “footprints” // Nature, 2005, V. 438, № 7068, pp. E7–E8.
Reno Ph. L., Meindl R. S., McCollum M. A. et Lovejoy C. O. Sexual dimorphism in Australopithecus afarensis was similar to that of modern humans // PNAS, 2003, V. 100, № 16, pp. 9404–9409.
Reynolds S. C., Clarke R. J. et Kuman K. A. The view from the Lincoln Cave: mid– to late Pleistocene fossil deposits from Sterkfontein hominid site, South Africa // JHE, 2007, V. 53, № 3, pp. 260–271.
Richards M. P., Pettitt P. B., Stiner M. C. et Trinkaus E. Stable isotope evidence for increasing dietary breadth in the European mid-Upper Paleolithic // PNAS, 2001, V. 98, № 11, pp. 6528–6532.
Richmond B. G. et Jungers W. L. Orrorin tugenensis femoral morphology and the evolution of hominin bipedalism // Science, 2008, V. 319, № 5870, pp. 1662–1665.
Richmond B. G., Aiello L. C. et Wood B. A. Early hominin limb proportions // JHE, 2002, V. 43, № 4, pp. 529–548.
Rightmire G. P. Variation among early Homo crania from Olduvai Gorge and the Koobi Fora region // AJPhA, 1993, V. 90, № 1, pp. 1–33.
Ring U. et Betzler Ch. Geology of the Malawi Rift: kinematic and tectonosedimentary background to the Chiwondo Beds, northern Malawi // JHE, 1995, V. 28, № 1, pp. 7–21.
Rink W. J., Mercier N., Mihailovic D., Morley M. W., Thompson J. W. et Roksandic M. New radiometric ages for the BH-1 hominin from Balanica (Serbia): implications for understanding the role of the Balkans in Middle Pleistocene human evolution // PLoS ONE, 2013, V. 8, № 2, pp. 1–7.
Roberts Ch. A., Pfister L.-A. et Mays S. Letter to the editor: was tuberculosis present in Homo erectus in Turkey? // AJPhA, 2009, V. 139, № 3, pp. 442–444.
Rodriguez L., Cabo L. L. et Egocheaga J. E. Breve Nota sobre el hioides neandertalense de Sidron (Pilona, Asturias) // Antropologia y biodiversidad. Eds.: M. P. Aluja, A. Malgosa et R. Nogues. Universidad de Barcelona, 2002, pp. 480–489.
Roebroeks W. et Villa P. On the earliest evidence for habitual use of fire in Europe // PNAS, 2011, V. 108, № 13, pp. 5209–5214.
Roebroeks W., Conard N. J. et Kolfschoten Th. Dense forests, cold steppes, and the Palaeolithic settlement of Northern Europe // Current Anthropology, 1992, V. 33, № 5, pp. 551–586.
Roksandic M., Mihailovic D., Mercier N., Dimitrijevic V., Morley M. W., Rakocevic Z., Mihailovic B., Guibert P. et Babb J. A human mandible (BH-1) from the Pleistocene deposits of Mala Balanica cave (Sicevo Gorge, Nis, Serbia) // JHE, 2011, V. 61, № 2, pp. 186–196.
Ronen A. The Yiron-gravel lithic assemblage. Artifacts older than 2.4 My in Israel // Archäologisches Korrespondenzblatt, 1991, V. 21, pp. 159–164.
Rose J. I., Usik V. I., Marks A. E., Hilbert Y. H., Galletti Ch. S., Parton A., Geiling J. M., Cerny V., Morley M. W. et Roberts R. G. The Nubian Complex of Dhofar, Oman: an African Middle Stone Age industry in Southern Arabia // PLoS ONE, 2011, V. 6, № 11, p. e28239.
Ruiter de D. J., DeWitt Th. J., Carlson K. B., Brophy J. K., Schroeder L., Ackermann R. R., Churchill S. E. et Berger L. R. Mandibular remains support taxonomic validity of Australopithecus sediba // Science, 2013, V. 340, № 6129, pp. 1232997-1–1232997-4.
Sablin M. V. et Khlopachev G. A. The earliest Ice Age dogs: evidence from Eliseevichi 1 // Current Anthropology, 2002, V. 43, № 5, pp. 795–799.
Sala N., Arsuaga J. L., Pantoja-Pérez A., Pablos A., Martínez I., Quam R. M., Gómez-Olivencia A., Bermúdez de Castro J. M. et Carbonell E. Lethal interpersonal violence in the Middle Pleistocene // PLoS ONE, 2015, V. 10, № 5, p. e0126589.
Sánchez F., Gibert J., Malgosa A., Ribot F., Gibert L. et Walker M. J. Insights into the evolution of child growth from Lower Pleistocene humeri at Venta Micena (Orce, Granada province, Spain) // Human Evolution, 1999, V. 14, № 1–2, pp. 63–82.
Sandom Ch., Faurby S., Sandel B. et Svenning J.-Ch. Global late Quaternary megafauna extinctions linked to humans, not climate change // PRS, 2014, V. 281, № 1787, pp. 1–9.
Sankhyan A. R. Fossil clavicle of a Middle Pleistocene hominid from the Central Narmada Valley, India // JHE, 1997, V. 32, № 1, pp. 3–16.
Schmid P., Churchill S. E., Nalla Sh., Weissen E., Carlson K. J., Ruiter de D. J. et Berger L. R. Mosaic morphology in the thorax of Australopithecus sediba // Science, 2013, V. 340, № 6129, pp. 1234598-1–1234598-5.
Schmitz R. W. The discovery of fossil man in the 18th and 19th century // Neanderthal 1856–2006. Ed.: R. W. Schmitz. Mainz am Rhein, Verlag Philipp von Zaibern, 2006, pp. 9–16.
Schoetensack O. Der Unterkiefer des Homo heidelbergensis aus den Sanden von Mauer bei Heidelberg. Leipzig, Verlag von Wilhelm Engelmann, 1908.
Schwarcz H. et Latham A. Absolute age determination of travertines from Verteszollos // Verteszollos: site, man and culture. Eds.: M. Kretzoi et V. Dobosi. Budapest, Akademiai Kiado, 1990, pp. 549–555.
Schwarcz H. P., Grün R., Latham A. G., Mania D. et Brunnacker K. The Bilzingsleben archaeological site: new dating evidence // Archaeometry, 1988, V. 30, № 1, pp. 5–17.
Schwartz J. H. et Tattersall I. Significance of some previously unrecognized apomorphies in the nasal region of Homo neanderthalensis // PNAS, 1996, V. 93, № 20, pp. 10852–10854.
Schwartz J. H. et Tattersall I. The human chin revisited: what is it and who has it? // JHE, 2000a, V. 38, № 2, pp. 367–409.
Schwartz J. H. et Tattersall I. What constitutes Homo erectus? // Acta Anthropologica Sinica, 2000b, Supplement to V. 19, pp. 18–22.
Schwartz J. H., Tattersall I. et Teschler-Nicola M. Architecture of the nasal complex in Neanderthals: comparison with other hominids and phylogenetic significance // The Anatomical Record, 2008, V. 291, № 11, pp. 1517–1534.
Scott G. R. et Gibert L. The oldest hand-axes in Europe // Nature, 2009, V. 461, № 7260, pp. 82–85.
Seguin-Orlando A., Korneliussen Th. S., Sikora M., Malaspinas A.-S., Manica A., Moltke I., Albrechtsen A., Ko A., Margaryan A., Moiseyev V., Goebel T., Westaway M., Lambert D., Khartanovich V., Wall J. D., Nigst Ph. R., Foley R. A., Lahr M. M., Nielsen R., Orlando L. et Willerslev E. Genomic structure in Europeans dating back at least 36,200 years // Science, 2014, V. 346, № 6213, pp. 1113–1118.
Senut B., Pickford M., Gommery D., Mein P., Cheboi K. et Coppens Y. First hominid from the Miocene (Lukeino Formation, Kenya) // CRAS, ser. II, fascicule A – Sciences de la Terre et des planetes, 2001, V. 332, № 2, pp. 137–144.
Shang H. et Trinkaus E. An ectocranial lesion on the Middle Pleistocene human cranium from Hulu Cave, Nanjing, China // AJPhA, 2008, V. 135, pp. 431–437.
Shchelinsky V. E., Dodonov A. E., Baigusheva V. S., Kulakov S. A., Simakova A. N., Tesakov A. S. et Titov V. V. Early Palaeolithic sites on the Taman Peninsula (Southern Azov Sea region, Russia): Bogatyri/Sinyaya Balka and Rodniki // Quaternary International, 2010, V. 223–224, pp. 28–35.
Sherwood R. J., Ward S. C. et Hill A. The taxonomic status of the Chemeron temporal (KNM-BC 1) // JHE, 2002, V. 42, № 1/2, pp. 153–184.
Sillen A., Hall G. et Armstrong R. Strontium calcium ratios (Sr/Ca) and strontium isotopic ratios (87Sr/86Sr) of Australopithecus robustus and Homo sp. from Swartkrans // JHE, 1995, V. 28, № 3, pp. 277–285.
Simpson S. W., Quade J., Kleinsasser L., Levin N., MacIntosh W., Dunbar N. et Semaw S. Late Miocene hominid teeth from Gona Project Area, Ethiopia // AJPhA, 2007, V. 132, Supplement 44, p. 219.
Simpson S. W., Quade J., Levin N. E., Butler R., Dupont-Nivet G., Everett M. et Semaw S. A female Homo erectus pelvis from Gona, Ethiopia // Science, 2008, V. 322, № 5904, pp. 1089–1092.
Sistiaga A., Mallol C., Galván B. et Summons R. E. The Neanderthal meal: a new perspective using faecal biomarkers // PLoS ONE, 2014, V. 9, № 6, p. e101045.
Skinner M. Bee brood consumption: an alternative explanation for hypervitaminosis A in KNM-ER 1808 (Homo erectus) from Koobi Fora, Kenya // JHE, 1991, V. 20, № 6, pp. 493–503.
Skoglund P. et Jakobsson M. Archaic human ancestry in East Asia // PNAS, 2011, V. 108, № 45, pp. 18301–18306.
Slimak L., Svendsen J. I., Mangerud J., Plisson H., Heggen H. P., Brugere A. et Pavlov P. Yu. Late Mousterian persistence near the Arctic Circle // Science, 2011, V. 332, № 6031, pp. 841–845.
Smith Sh. L. Skeletal age, dental age, and the maturation of KNM-WT 15000 // AJPhA, 2004, V. 125, № 2, pp. 105–120.
Smith H. F. et Grine F. E. Cladistic analysis of early Homo crania from Swartkrans and Sterkfontein, South Africa // JHE, 2008, V. 54, № 5, pp. 684–704.
Solodenko N., Zupancich A., Cesaro S. N., Marder O., Lemorini C. et Barkai R. Fat residue and use-wear found on Acheulian biface and scraper associated with butchered elephant remains at the site of Revadim, Israel // PLoS ONE, 2015, V. 10, № 3, p. e0118572.
Soressi M., McPherron Sh. P., Lenoir M., Dogandzic T., Goldberg P., Jacobs Z., Maigrot Y., Martisius N. L., Miller Ch. E., Rendu W., Richards M., Skinner M. M., Steele T. E., Talamo S. et Texier J.-P. Neandertals made the first specialized bone toolsin Europe // PNAS, 2013, V. 110, № 35, pp. 14186–14190.
Soriano M. The fluoric origin of the bone lesion in the Pithecanthropus erectus femur // AJPhA, 1970, V. 32, № 1, pp. 49–57.
Sponheimer M., Alemseged Z., Cerling Th. E., Grine F. E., Kimbel W. H., Leakey M. G., Lee-Thorp J. A., Manthi F. K., Reed K. E., Wood B. A. et Wynn J. G. Isotopic evidence of early hominin diets // PNAS, 2013, V. 110, № 26, pp. 10513–10518.
Spoor F., Hublin J. J., Braun M. et Zonneveld F. W. The bony labyrinth of Neanderthals // JHE, 2003, V. 44, № 2, pp. 141–165.
Spoor F., Leakey M. G., Gathogo P. N., Brown F. H., Antón S. C., McDougall I., Kiarie C., Manthi F. K. et Leakey L. N. Implications of new early Homo fossils from Ileret, east of Lake Turkana, Kenya // Nature, 2007, V. 448, № 7154, pp. 688–691.
Spoor F., Leakey M. G., Antón S. C. et Leakey L. N. The taxonomic status of KNM-ER 42 700: a reply to Baab (2008a) // JHE, 2008, V. 55, № 4, pp. 747–750.
Spoor F., Gunz Ph., Neubauer S., Stelzer S., Scott N., Kwekason A. et Dean M. Ch. Reconstructed Homo habilis type OH 7 suggests deep-rooted species diversity in early Homo // Nature, 2015, V. 519, № 7541, pp. 83–86.
Stidham T. A. A lovebird (Psittaciformes: Agapornis) from the Plio-Pleistocene Kromdraai B locality, South Africa // South African Journal of Science, 2009, V. 105, pp. 155–157.
Storey A. A., Ramirez J. M., Quiroz D., Burley D. V., Addison D. J., Walter R., Anderson A. J., Hunt T. L., Athens J. S., Huynen L. et Matisoo-Smith E. A. Radiocarbon and DNA evidence for a pre-Columbian introduction of Polynesian chickens to Chile // PNAS, 2007, V. 104, № 25,
Pp. 10335–10339.
Strait D. S., Grine F. E. et Moniz M. A. A reappraisal of early hominid phylogeny // JHE, 1997, V. 32, № 1, pp. 17–82.
Strasser Th., Panagopoulou E., Runnels C., Murray P., Thompson N., Karkanes P., McCoy F. et Wegmann K. Stone age seafaring in the Mediterranean: evidence for Lower Palaeolithic and Mesolithic inhabitation of Crete from the Plakias region // Hesperia, 2010, V. 79, № 2, pp. 145–190.
Strasser Th., Runnels C., Wegmann K., Panagopoulou E., McCoy F., Digregorio Ch., Karkanas P. et Thompson N. Dating Palaeolithic sites in southwestern Crete, Greece // Journal of Quaternary Science, 2011, V. 26, № 5, pp. 553–560.
Stratford D., Heaton J. L., Pickering T. R., Caruana M. V. et Shadrach K. First hominin fossils from Milner Hall, Sterkfontein, South Africa // JHE, 2016, V. 91, pp. 167–173.
Stringer C. B. et Hublin J.-J. New age estimates for the Swanscombe hominid, and their significance for human evolution // JHE, 1997, V. 37, № 6, pp. 873–877.
Sun Ch., Xing S., Martín-Francés L., Bae Ch., Liu L., Wei G. et Liu W. Interproximal grooves on the Middle Pleistocene hominin teeth from Yiyuan, Shandong Province: new evidence for tooth-picking behavior from eastern China // Quaternary International, 2014, V. 354, pp. 162–168.
Suwa G. A comparative analysis of hominid dental remains from the Shungura and Usno Formations, Omo valley, Ethiopia. Ann Arbor, UMI, 1990.
Suwa G., Asfaw B., Kono R. T., Kubo D., Lovejoy C. O. et White T. D. The Ardipithecus ramidus skull and its implications for hominid origins // Science, 2009a, V. 326, № 5949, pp. 68e1–68e7.
Suwa G., Kono R. T., Simpson S. W., Asfaw B., Lovejoy C. O. et White T. D. Paleobiological implications of the Ardipithecus ramidus dentition // Science, 2009b, V. 326, № 5949, pp. 94–99.
Swisher C. C., Curtis G. H., Jacob T., Getty A. G., Suprijo A. et Widiasmoro. Age of the earliest known hominids in Java, Indonesia // Science, 1994, V. 266, № 263, pp. 1118–1121.
Taylor J. C. A pre-contact Aboriginal medical system on Cape York Peninsula // JHE, 1977, V. 6, № 4, pp. 419–482.
Thackeray J. F. et Prat S. Chimpanzee subspecies and 'robust' australopithecine holotypes, in the context of comments by Darwin // South African Journal of Science, 2009, V. 105, pp. 463–464.
Thieme H. Lower Palaeolithic hunting weapons from Schöningen, Germany. The oldest spears in the world // Acta Anthropologica Sinica, 2000, Supplement to V. 19, pp. 140–147.
Tillier A.-M. et Tixier J. Une molaire d'enfant aurignacien a Ksar 'Aqil (Liban) Mt. Carmel, Israël // Paléorient, 1991, V. 17, № 1, pp. 89–93.
Toro-Moyano I., Martínez-Navarro B., Agustí J., Souday C., Bermúdez de Castro J. M., Martinón-Torres M., Fajardo B., Duval M., Falguères Ch., Omsh O., Parés J. M., Anadón P., Julià R., García-Aguilar J. M., Moigne A.-M., Espigares M. P., Ros-Montoya S. et Palmqvist P. The oldest human fossil in Europe, from Orce (Spain) // JHE, 2013, V. 65, № 1, pp. 1–9.
Toups M. A., Kitchen A., Light J. E. et Reed D. L. Origin of clothing lice indicates early clothing use by anatomically modern humans in Africa // Molecular Biology and Evolution, 2011, V. 28, № 1, pp. 29–32.
Trinkaus E. A functional interpretation of the axillary border of the Neandertal scapulae // JHE, 1977, V. 6, № 3, pp. 231–234.
Trinkaus E. The Shanidar Neandertals. New York, Academic Press, London et Academic, 1983, 502 p.
Trinkaus E. Neandertals, early modern humans, and rodeo riders // JAS, 2012, V. 39, № 12, pp. 3691–3693.
Trinkaus E., Jelínek J. et Pettitt P. B. Human remains from the Moravian Gravettian: the Dolní Vĕstonice 35 femoral diaphysis // Anthropologie (Brno), 1999a, V. 37, № 2, pp. 167–175.
Trinkaus E., Stringer C. B., Ruff C. B., Hennessy R. J., Roberts M. B. et Parfitt S. A. Diaphyseal cross-sectional geometry of the Boxgrove 1 Middle Pleistocene human tibia // JHE, 1999b, V. 37, № 1, pp. 1–25.
Trinkaus E., Maley B. et Buzhilova A. P. Brief communication: paleopathology of the Kiik-Koba 1 Neandertal // AJPhA, 2008, V. 137, № 1, pp. 106–112.
Turner Ch. G. II. Interproximal grooving of teeth: additional evidence and interpretation. Comments // Current Anthropology, 1988, V. 29, № 4, pp. 664–665.
Turner A. et Wood B. Comparative paleontological context for the evolution of the early hominid masticatory system // JHE, 1993, V. 24, № 4, pp. 301–318.
Tuttle R. H. Footprint clues in hominid evolution and forensics: lessons and limitations // Ichnos, 2008, V. 15, № 3–4, pp. 158–165.
Tyler D. E. An examination of the taxonomic status of the fragmentary mandible Sangiran 5, (Pithecanthropus dubius), Homo erectus, “Meganthropus”, or Pongo? // Quaternary International, 2004, V. 117, № 1, pp. 125–130.
Underhill P. A., Shen P., Lin A. A., Jin L., Passarino G., Yang W. H., Kauffman E., Bonné-Tamir B., Bertranpetit J., Francalacci P., Ibrahim M., Jenkins T., Kidd J. R., Mehdi S. Q., Seielstad M. T., Wells R. S., Piazza A., Davis R. W., Feldman M. W., Cavalli-Sforza L. L. et Oefner P. J. Y chromosome sequence variation and the history of human populations // Nature Genetics, 2000, V. 26, № 3, pp. 358–361.
Underhill P. A., Passarino G., Lin A. A., Shen P., Lahr M. M., Foley R. A., Oefner P. J. et Cavalli-Sforza L. L. The phylogeography of Y chromosome binary haplotypes and the origins of modern human populations // Annals of Human Genetics, 2001, V. 65, Pt. 1, pp. 43–62.
Ungar P. S. et Sponheimer M. The diets of early hominins // Science, 2011, V. 334, № 6053, pp. 190–193.
Vandiver P. B., Soffer O., Klima B. et Svoboda J. I. The origins of ceramic technology at Dolni Vestonice, Czechoslovakia // Science, 1989, V. 246, № 4933, pp. 1002–1008.
Vanhaeren M., d'Errico F., Stringer Ch., James S. L., Todd J. A. et Mienis H. K. Middle Paleolithic shell beads in Israel and Algeria // Science, 2006, V. 312, № 5781, pp. 1785–1788.
Vaquero M., Esteban M., Allue E., Vallverdu J., Carbonell E. et Bischoff J. L. Middle Palaeolithic refugium, or archaeological misconception? A new U-series and radiocarbon chronology of Abric Agut (Capellades, Spain) // JAS, 2002, V. 29, № 3, pp. 953–958.
Vendramini D. Them and us: neanderthal predation and the bottleneck speciation of modern humans. Armindale, 2009, 51 p.
Verna Ch., Dujardin V. et Trinkaus E. Early Aurignacian human remains from La Quina-Aval (France) // JHE, 2012, V. 62, № 5, pp. 605–617.
Vernot B., Tucci S., Kelso J., Schraiber J. G., Wolf A. B., Gittelman R. M., Dannemann M., Grote S., McCoy R. C., Norton H., Scheinfeldt L. B., Merriwether D. A., Koki G., Friedlaender J. S., Wakefield J., Pääbo S. et Akey J. M. Excavating Neandertal and Denisovan DNA from the genomes of Melanesian individuals // Science, 2016, V. 352, № 6282, pp. 235–239.
Verosub K. L. et Tchernov E. Résultats préliminaires de l'etude magnétostratigraphique d'une séquence sédimentaire à industrie humaine en Israèl // Les premiers Europeéns. Eds.: E. Bonifay et B. Vandermeersch. Editions CTHS, Paris, 1991, pp. 237–242.
Villa P. Torralba and Aridos: elephant exploitation in Middle Pleistocene Spain // JHE, 1990, V. 19, № 3, pp. 299–309.
Villa P. et d'Errico F. Bone and ivory points in the Lower and Middle Paleolithic of Europe // JHE, 2001, V. 41, № 2, pp. 69–112.
Villa P. et Roebroeks W. Neandertal demise: an archaeological analysis of the modern human superiority complex // PLoS ONE, 2014, V. 9, № 4, p. e96424.
Villa P., Soriano S., Tsanova T., Degano I., Higham Th. F. G., d'Errico F., Backwell L., Lucejko J. J., Colombini M. P. et Beaumont P. B. Border Cave and the beginning of the Later Stone Age in South Africa // PNAS, 2012, V. 109, № 33, pp. 13208–13213.
Villa P., Pollarolo L., Degano I., Birolo L., Pasero M., Biagioni C., Douka K., Vinciguerra R., Lucejko J. J. et Wadley L. A milk and ochre paint mixture used 49,000 years ago at Sibudu, South Africa // PLoS ONE, 2015, V. 10, № 6, p. e0131273.
Villmoare B., Kimbel W. H., Seyoum Ch., Campisano Ch. J., DiMaggio E., Rowan J., Braun D. R., Arrowsmith J. R. et Reed K. E. Early Homo at 2.8 Ma from Ledi-Geraru, Afar, Ethiopia // Science, 2015, V. 347, № 6228, pp. 1352–1355.
Vos de J. et Sondaar P. Dating hominid sites in Indonesia // Science, 1994, V. 266, № 5191, pp. 1726–1727.
Walker A., Zimmerman M. R. et Leakey R. E. F. A possible case of hypervitaminosis A in Homo erectus // Nature, 1982, V. 296, № 5854, pp. 248–250.
Ward C. V., Leakey M. G. et Walker A. Morphology of Australopithecus anamensis from Kanapoi and Allia Bay, Kenya // JHE, 2001, V. 41, № 4, pp. 255–368.
Ward C. V., Kimbel W. H., Harmon E. H. et Johanson D. C. New postcranial fossils of Australopithecus afarensis from Hadar, Ethiopia (1990–2007) // JHE, 2012, V. 63, № 1, pp. 1–51.
Waters M. R., Forman S. L. et Pierson J. M. Diring Yuriakh: a Lower Paleolithic site in central Siberia // Science, 1997, V. 275, № 5304, pp. 1281–1284.
Weaver T. D. et Hublin J.-J. Neandertal birth canal shape and the evolution of human childbirth // PNAS, 2009, V. 106, № 20, pp. 8151–8156.
Webb S. Prehistoric stress in Australian Aborigines: a palaeopathological survey of a hunter-gatherer population. Unpublished Ph. D. thesis, the Australian National University, 1984.
Wells R. S., Yuldasheva N., Ruzibakiev R., Underhilld P. A., Evseeva I., Blue-Smith J., Jin L., Su B., Pitchappan R., Shanmugalakshmi S., Balakrishnan K., Read M., Pearson N. M., Zerjal T., Webster M. T., Zholoshvili I., Jamarjashvili E., Gambarov S., Nikbin B., Dostiev A., Aknazarov O., Zalloua P., Tsoy I., Kitaev M., Mirrakhimov M., Chariev A. et Bodmer W. F. The Eurasian Heartland: a continental perspective on Y-chromosome diversity // PNAS, 2001, V. 98, № 18, pp. 10244–10249.
White T. D. Cut marks on the Bodo cranium: a case of prehistoric defleshing // AJPhA, 1986, V. 69, № 4, pp. 503–509.
White T. Early hominids – diversity or distortion? // Science, 2003, V. 299, № 5615, pp. 1994–1997.
White T. D. et Toth N. The question of ritual cannibalism at Grotta Guattari // Current Anthropology, 1991, V. 32, № 2, pp. 118–138.
White T., Suwa G., Richards G., Watters J. P. et Barnes L. G. “Hominoid clavicle” from Sahabi is actually a fragment of cetacean rib // AJPhA, 1983, V. 61, № 2, pp. 239–244.
White T. D., Suwa G. et Asfaw B. Australopithecus ramidus, a new species of early hominid from Aramis, Ethiopia // Nature, 1994, V. 371, № 6495, pp. 306–333.
White T. D., Suwa G. et Asfaw B. Corrigendum. Australopithecus ramidus, a new species of early hominid from Aramis, Ethiopia // Nature, 1995, V. 375, № 6526, pp. 88.
White T. D., Asfaw B., DeGusta D., Gilbert H., Richards G. D., Suwa G. et Howell C. Pleistocene Homo sapiens from Middle Awash, Ethiopia // Nature, 2003, V. 423, № 6941, pp. 742–747.
White T. D., WoldeGabriel G., Asfaw B., Ambrose S., Beyene Y., Bernor R. L., Boisserie J.-R., Currie B., Gilbert H., Haile-Selassie Y., Hart W. K., Hlusko L. J., Howell F. C., Kono R. T., Lehmann Th., Louchart A., Lovejoy C. O., Renne P. R., Saegusa H., Vrba E. S., Wesselman H. et Suwa G. Asa Issie, Aramis and the origin of Australopithecus // Nature, 2006, V. 440, № 7086, pp. 883–889.
Williams S. A., Ostrofsky K. R., Frater N., Churchill S. E., Schmid P. et Berger L. R. The vertebral column of Australopithecus sediba // Science, 2013, V. 340, № 6129, pp. 1232996–1–1232996–5.
Wolpoff M. H., Hawks J., Senut B., Pickford M. et Ahern J. An ape or the ape: is the Toumaï Cranium TM 266 a hominid? // PaleoAnthropology, 2006, pp. 36–50.
Wood B. et Constantino P. Paranthropus boisei: fifty years of evidence and analysis // Yearbook of Physical Anthropology, 2007, V. 50, pp. 106–132.
Woodward A. S. A new cave man from Rhodesia, South Africa // Nature, 1921, V. 108, № 2716, pp. 371–372.
Wright D. J. Syphilis and Neanderthal man // Nature, 1971, V. 229, № 5284, p. 409.
Wroe S., Field J. H., Archer M., Grayson D. K., Price G. J., Louys J., Faith J. T., Webb G. E., Davidson I. et Mooney S. D. Climate change frames debate over the extinction of megafauna in Sahul (Pleistocene Australia-New Guinea) // PNAS, 2013, V. 110, № 22, pp. 8777–8781.
Yokoyama Y., Jacob T., Falgueres C. et Semah F. Direct dating of Homo erectus skulls of Solo man in Java by non-destructive gamma-ray // Abstracts of Contributions to the Dual Congress. The International Association for the Study of Human Palaeontology and the International Association of Human Biologists. Eds. M. A. Raath, H. Soodyall, D. Barkhan, K. L. Kuykendall et P. V. Tobias. Organising Committee of Dual Congress, Sun City, South Africa, 1998, p. 57.
Zeder M. A. Animal domestication in the Zagros: a review of past and current research // Paléorient, 1999, V. 25, № 2, pp. 11–25.
Zhang S., Han L., Jin C., Wei G., Zheng L. et Xu Q. On the artifacts unearthed from the Renzidong Paleolithic site in 1998 // Acta Anthropologica Sinica, 2000, V. 19, № 3, pp. 169–183.
Zhu R. X., Potts R., Xie F., Hoffman K. A., Deng C. L., Shi C. D., Pan Y. X., Wang H. Q., Shi R. P., Wang Y. C., Shi G. H. et Wu N. Q. New evidence on the earliest human presence at high northern latitudes in northeast Asia // Nature, 2004, V. 431, № 7008, pp. 559–562.
Zhu Zh.-Y., Dennell R., Huang W.-W., Wu Y., Rao Zh.-G., Qiu Sh.-F., Xie J.-B., Liu W., Fu Sh.-Q., Han J.-W., Zhou H.-Y., Yang T.-P. O. et Li H.-M. New dating of the Homo erectus cranium from Lantian (Gongwangling), China // JHE, 2015, V. 78, pp. 144–157.
Zilhão J. The Ebro frontier: a model for the late extinction of Iberian Neanderthals // Neanderthals on the edge: 150th anniversary conference of the Forbes' Quarry discovery, Gibraltar. Eds.: C. Stringer, R. N. E. Barton et C. Finlayson. Oxford, Oxbow Books, 2000, pp. 111–121.
Zipfel B., DeSilva J. M., Kidd R. S., Carlson K. J., Churchill S. E. et Berger L. R. The foot and ankle of Australopithecus sediba // Science, 2011, V. 333, № 6048, pp. 1417–1420.
Zollikofer Ch. P. E., Ponce de León M. S., Vandermeersch B. et Lévêque F. Evidence for interpersonal violence in the St. Césaire Neanderthal // PNAS, 2002, V. 99, № 9, pp. 6444–6448.
Zollikofer Ch. P. E., Ponce De León M. S., Lieberman D. E., Guy F., Pilbeam D., Likius A., Mackaye H. T., Vignaud P. et Brunet M. Virtual cranial reconstruction of Sahelanthropus tchadensis // Nature, 2005, V. 434, № 7034, pp. 755–759.
Список иллюстраций.
Рисунки во вкладке – Роман Евсеев;
Рис. 1 – Елена Мартыненко;
Рис. 2–40 – Ольга Федорчук.
Сноски.
1.
До уровня подсемейств с примерами родов и видов. Представлен один из возможных вариантов классификации, детали системы могут существенно расходиться у разных авторов.
Содержание.
- Обезьяны и все-все-все.
- Пролог, в котором автор ведет себя прилично, мило улыбается, много раз говорит спасибо и даже не ехидничает.
- Введение, в коем возвышенным слогом поясняется, почему книга называется так, как она называется.
- Методы познания бытия. Часть первая, немножко занудная, в коей повествуется о самых очевидных вещах, но присутствие коей совершенно необходимо.
- Глава 1. Концепции антропогенеза.
- Сила Духа: креационизм.
- Сила мысли: философские концепции антропогенеза.
- Сила доказательств: научные концепции антропогенеза.
- Глава 2. Поиски истины: методы исследования антропогенеза.
- Палеоантропологические методы.
- Кстати, об облизывании…
- Смежные науки.
- Уголок занудства.
- Глава 3. Парад участников.
- Уголок занудства.
- Особая обезьяна. Часть вторая, ученая, из коей любознательный Читатель узнает, почему он обезьяна и почему он человек.
- Глава 4. Что в нас обезьяньего?
- Кстати, о почках…
- Глава 5. Что отличает нас от обезьян?
- Прямохождение.
- Уголок занудства.
- Уголок занудства.
- Превосходство над Винни-Пухом, или Как все же украсть мед?
- Стопа невиданного гоминида.
- Кстати, о пейзажах…
- Рука, приспособленная к использованию и изготовлению орудий.
- Кстати, об игуанодонах…
- Пястная кость из Каитио: умелая ручка первого пролетария.
- Мозг.
- Антивеган: первые шаги.
- Человек антилопе – лев.
- Кстати, о малярии…
- Глупеем ли мы?
- Кстати, об осах…
- Кстати, о песнях…
- Кстати, о картах…
- Минутка фантазии.
- Уголок занудства.
- Минутка фантазии.
- Тело человека от докембрия до наших дней (история в четырнадцати звеньях с прологом и эпилогом). Часть третья, масштабная, в коей широкой (местами малярной) кистью живописано эпичное полотно эволюции и поведано, откуда растут ноги у рук, где у нас жабры и отчего в автобусах поручни наверху.
- Пролог. Начало цепи: появление жизни и первых клеток.
- Глава 6. Звено 1: появление клеточного ядра. (протерозой, 1,9±2,4 млрд лет назад).
- Глава 7. Звено 2: аэробная атмосфера – многоклеточность и твердые части тела. (поздний протерозой и ранний кембрий, 850–540 млн лет назад).
- Кстати, о ртах…
- Кстати, о морозе…
- Глава 8. Звено 3: хорда, трубчатая нервная система и зрение. (ранний кембрий, 530–535 млн лет назад).
- Глава 9. Звено 4: учетверение генома, обретение скелета, зубов и мозга. (ордовик, 470–480 млн лет назад).
- Кстати, о рыбах, лягушках и мечехвостах…
- Глава 10. Звено 5: обретение конечностей, челюстей и ребер. (начало силура, около 440–430 млн лет назад).
- Минутка фантазии.
- Уголок занудства.
- Кстати, о муренах…
- Кстати, о сосудах…
- Глава 11. Звено 6: появление легких, хоан и шеи. (ранний девон, около 415 млн лет назад).
- Глава 12. Звено 7: руки-ноги. (поздний девон, 385–365 млн лет назад).
- Минутка фантазии.
- Кстати, о семенах и деревьях…
- Глава 13. Звено 8: амнион. (средний карбон, около 340–315 млн лет назад).
- Кстати, о грибах и стрекозах…
- Кстати, о пнях и елках-палках…
- Глава 14. Звено 9: классы зубов, уши и шерсть. (пермь, 300–250 млн лет назад).
- Уголок занудства.
- Кстати, о диалектике…
- Минутка фантазии.
- Глава 15. Звено 10: первые млекопитающие. (триас, 225 млн лет назад).
- Уголок занудства.
- Минутка фантазии.
- Глава 16. Звено 11: живорождение и плацента. (юра, 160 млн лет назад).
- Глава 17. Звено 12: древесность, прыгучесть, хватательная кисть. (средний и позднейший мел, 115–108 и 65 млн лет назад).
- Кстати, о плодах и термитах…
- Уголок занудства.
- Глава 18. Звено 13: потеря синтеза витамина C, обретение носа и возвращение красного цвета. (палеоген, 55–30 млн лет назад).
- Уголок занудства.
- Кстати, о раках и сказках…
- Уголок занудства.
- Глава 19. Звено 14: прощание с хвостом, прямохождение и разум. (неоген, 15–18,5, 7–4 и около 2 млн лет назад).
- Кстати, об атавизмах…
- Кстати, о всадниках…
- Кстати, о жирафах…
- Эпилог. Конец цепи или продолжение истории?
- Корни разума. Часть четвертая, совсем короткая, но очень важная, рассказывающая о том, как набраться ума-разума, в некотором роде подводящая итог части третьей и необходимая для постижения части пятой.
- Кстати, о медведях и собачках…
- Уголок занудства.
- Этапы прогресса, или Чем мы отличаемся от ежей? Часть пятая, которая многим покажется не имеющей отношения к человеку, так как в ней говорится о ежах и слонах, прыгунчиках и китах, о том, почему они не стали людьми, но исподволь подводящая Уважаемого Читателя к мысли, почему книгу читает он, а не муравьед.
- Глава 20. Примитивные млекопитающие.
- Кстати, об игуанах…
- Уголок занудства.
- Почему насекомоядные не стали разумными?
- Уголок занудства.
- Почему грызуны и зайцеобразные не стали разумными?
- Почему копытные не стали разумными?
- Почему хищные не стали разумными?
- Почему китообразные и ластоногие не стали разумными?
- Почему многобугорчатые и сумчатые не стали разумными?
- Почему тениодонты, рукокрылые, птицы и шерстокрылы не стали разумными?
- Почему тупайи, анагалиды, прыгунчики и тенреки не стали разумными?
- Почему южноамериканские звери не стали разумными?
- Глава 21. Немножко географии.
- Глава 22. Кем приматы стали и кем не смогли.
- Вершина эволюции. Часть шестая, опять недлинная, оставляющая в терпеливом Читателе смешанные чувства, ибо в ней говорится о том, почему Читатель – не Пуп Земли.
- Кстати, о прогрессивном вывихе…
- Кстати, о болтунах…
- Кстати, о землекопах…
- Мир глазами руконожки. Часть седьмая, немножко хулиганская, продолжающая линию части шестой, рассказывающая об изобилии вершин, о том, почему руконожка прогрессивней долгопята, долгопят – гориллы, а горилла – руконожки.
- Глава 23. Мир глазами руконожки.
- Глава 24. Мир глазами шерстокрыла.
- Глава 25. Мир глазами долгопята.
- Глава 26. Мир глазами мандрила.
- Глава 27. Мир глазами гориллы.
- Глава 28. Мир глазами…
- Альтернативные пути развития разума. Часть восьмая, совсем хулиганская, где Автор вырывается на вольные просторы фантазии и с развевающейся бородой и взором горящим грезит о несбывшихся парачеловечествах – гигантопитечествах, ореопитечествах и неандерталечествах.
- Глава 29. Орангутаны и их предки.
- Глава 30. Гигантопитеки.
- Минутка фантазии.
- Бамбук или не бамбук – вот в чем меню…
- Минутка фантазии.
- Глава 31. Ореопитек в руках ученых, или Ученые в лапах ореопитека.
- Крестец ореопитека – крест на прямохождении ореопитека.
- Глава 32. Австралопитеки – предки разумных.
- Глава 33. “Заповедник гоблинов”.
- Уголок занудства.
- Глава 34. Где водятся хоббиты?
- Предки “хоббитов”: люди из Мата-Менге.
- Уголок занудства.
- Больше пигмеев – хороших и разных!
- Минутка фантазии.
- Уголок занудства.
- “Хоббиты” Сулавеси?
- Глава 35. Китайские “хоббиты” или чудеса реконструкции?
- Глава 36. Человечество на западе: неандертальцы.
- Уголок занудства.
- Уголок занудства.
- Крепкий старик: Ла-Шапель-о-Сен и его судьба.
- Минутка фантазии.
- Глава 37. Человечество на востоке: денисовцы.
- Глава 38. Человечество на юге: африканские… кто?
- Глава 39. Немного о систематике и времени.
- Уголок занудства.
- Кстати, о границах…
- Глава 40. Дальняя родня: тупайи и шерстокрылы.
- Глава 41. Примитивнейшие приматы.
- Заря: поступь Древнейшего и Великого Предка приматов.
- Попытки стать приматом – плезиадапиформы.
- Уголок занудства.
- Полуобезьяны.
- Кстати, о чертогах, сокровищ полных…
- Минутка фантазии.
- Глава 42. Обезьяны.
- Долгопятообразные Tarsiiformes.
- Великий Предок – древнейший, наицелейший, примитивнейший и просто красавец.
- Кстати, о размерах…
- Возникновение высших приматов.
- Кстати, о границе эоцена и олигоцена…
- Уголок занудства.
- Кстати, о кузнечиках и капусте…
- Кстати, о Ливии…
- Афразия вылазила до Африки из Азии.
- Клыкастая ганлея – гроза орехов.
- Krabia minuta – не краб на минуту, а обезьяна на века.
- Уголок занудства.
- Великолепная миграция: широконосые обезьяны.
- Кстати, о судьбе…
- Кстати, о древности…
- Уголок занудства.
- Новые приматы Старого Света: примитивнейшие узконосые обезьяны.
- Кстати, о Файюме…
- Кстати, о миоцене…
- Уголок занудства.
- Кстати, о бедрах…
- Минутка фантазии.
- “Истинные узконосые”.
- Уголок занудства.
- Древнейшая мартышкообразная обезьяна и древнейшая человекообразная обезьяна, или Oldest monkey, oldest ape.
- Идеальные обезьяны: мартышкообразные.
- Уголок занудства.
- Минутка фантазии.
- Кстати, о леопардах и уроках…
- Кстати, о светофорах и доброте…
- Уголок занудства.
- Уголок занудства.
- Заря в преддверии заката: первые человекообразные.
- Центры происхождения и происхождение мыслей о центрах происхождения мысли.
- Уголок занудства.
- Добро пожаловать, экембо! или Новый образ проконсула?
- Кстати, о вертикалях и горизонталях…
- Уголок занудства.
- Человекообразные в рыжих тонах: Азия и Европа.
- Долой гипотезу гигантского гиббона!
- Даешь гипотезу карликового гиббона!
- Плиобатес из Испании – новый предок?
- Кстати, о скалолазах…
- Кстати, о птичках…
- Уголок занудства.
- Кстати, о чехарде…
- Таз сивапитека.
- Кстати, о натюрмортах…
- Уголок занудства.
- Кстати, о Рудабанье…
- Три сказа о люфенгпитеках.
- Сказ первый: о том, как мудрецы взглянули на лик Люфенгпитека и как Люфенгпитек Китай и Европу сроднил.
- Сказ второй: о том, как лик Люфенгпитека взглянул на мудрецов и как Люфенгпитек Китай обособил.
- Сказ третий: о том, как безликий Люфенгпитек запутал мудрецов, о первом китайце и последнем люфенгпитеке.
- Кстати, о тайнах…
- Человекообразные в черных тонах: африканские человекообразные – почти люди и люди.
- Уголок занудства.
- Последний из обезьян.
- Кстати, о гнездах…
- Минутка фантазии.
- Вкладка.
- Литература.
- Список иллюстраций.
- Сноски.
- Люди.
- Люди. Часть десятая, последняя, из которой Читатель узнает всю правду о своем происхождении, двуногой родне – дальней и ближней, пращурах, похожих на обезьян и на людей, предках прямых, двоюродных и троюродных, пра1000-дедушках и пра1000-бабушках, их подвигах и неудачах, стремлениях и успехах.
- Пролог.
- Уголок занудства.
- Глава 1. Обезьянолюди: ранние австралопитеки.
- Кстати, об именах…
- Кстати, о дежавю и пользе статистики…
- Скачут ножки по дорожке: такие ли уж прыткие были оррорины?
- Кстати, опять о статистике…
- Кстати, еще разок о статистике…
- Минутка фантазии.
- Кстати, снова о дежавю и статистике…
- Древний гоминоид Ливии – ископаемый шимпанзе или ранний австралопитек?
- (поучительная история).
- Глава 2. Человекообезьяны: грацильные австралопитеки.
- Кстати, о переводах…
- Кадануумуу – австралопитек, не похожий на человека.
- Кстати, об умелых ручках…
- Кстати, о поколениях…
- Уголок занудства.
- Мозговитый Беби из Таунга – несостоявшийся прогресс?
- Кстати, об ужасах систематики…
- Глава 3. Щелкунчики, побежденные мышами: массивные австралопитеки.
- Древесный парантроп?
- Кстати, о попугайчиках…
- Невозвращение блудных дочерей.
- Хомо сцапиенс.
- Глава 4. Звено между звеньями: “ранние Homo”, или Загадочный миллион: заря и первая половина истории Homo.
- Кстати, о пользе височной мышцы…
- “Самый загадочный миллион”: жизнь до Homo.
- Леди из Леди-Герару: первая леди среди людей?
- Заря Homo: древнейшие свидетельства.
- Очень древние Homo: Homo rudolfensis.
- Рудольфенсис возвращается! Рудольфенсис возвращается?
- Не самые древние Homo: Homo habilis.
- Человек ли человек умелый?
- Кстати, о высоком…
- Научно-техническая революция: прорыв в будущее по-ашельски.
- Странные Homo Восточной Африки: Homo microcranous.
- Странные Homo Южной Африки: sediba и gautengensis.
- Мозаика из Малапы.
- Странные Homo Южной Африки: naledi выходит на люди.
- Руки, ноги… Главное – наледи!
- Что творилось в Южной Африке два миллиона лет назад? Новые находки в Стеркфонтейне.
- Выход из Африки: № 1.
- Странные Homo Грузии: Homo georgicus.
- Пятый череп из Дманиси: первые люди – на лицо ужасные, добрые внутри.
- Почему Дманиси – не парантроп?
- Уже не ранние Homo: Homo ergaster.
- Кстати, о морковке, белых мишках и пчелках…
- Кстати, об огне.
- Происхождение Homo: калейдоскоп мнений.
- Происхождение Homo: а может, все было так?
- Глава 5. Homo erectus: непрямые дороги человека прямоходящего.
- Минутка фантазии.
- Вента-Мицена Гишпанская: тайна кентавра из Орсе.
- Непарнокопытная битва.
- Парнокопытная битва.
- Битва приматов.
- Перст указующий: древнейший палец древнейшего европейца.
- Из грязи – в люди: путешествие по стопам древнейших жителей Европы.
- Кстати, о низких пороках и высоких помыслах…
- Заря Поднебесной: датировка черепа из Лантьяня.
- Питекантроп – творец.
- Ява – миллион и сто лет спустя.
- Уголок занудства.
- Приходи сюда лечиться…
- Глава 6. Homo heidelbergensis: всеобщий предок или абориген Европы?
- Минутка фантазии.
- Уголок занудства.
- Кстати, о человеческой сути…
- Архантроп и море: Пэнху – человек с Тайваня.
- Мала Баланика, да споров много.
- Кстати, о снежках…
- Левша из Турвиля – гейдельбергенсис, метавший копье.
- Минутка фантазии.
- Минутка фантазии.
- Глава 7. Палеоантропы: не наши.
- Кстати, об истории…
- Уголок занудства.
- Кстати, о ро́дах…
- Кстати, о стульях…
- Уголок занудства.
- Кстати, о Соломоновых островах…
- Кстати, о медведях и лисах…
- Минутка фантазии.
- Неандертальцы и гормоны: болезнь человека из Марийяк.
- Кстати, о лингвистике…
- Минутка фантазии.
- Кстати, о проблемах…
- Уголок занудства.
- Уголок занудства.
- Кстати, о вшах…
- Из грязи – в техно.
- Кстати, о школе, армии и идеальном офисе…
- Кстати, о кстати и вроде бы, как бы, возможно, о типа…
- Уголок занудства.
- Уголок занудства.
- День метиса, или Ничто не ново под Луной.
- Неандертальцы не жили вместе с сапиенсами в Европе… Или все-таки жили?
- Мы разошлись как в море корабли: неандертальцы и сапиенсы разминулись на Кавказе…
- Вымирание неандертальцев. Опять.
- Нашествие денисовцев.
- Алтай – пуп Земли? Сапиенсы, неандертальцы, денисовцы… “чагырцы”?
- Глава 8. Палеоантропы: наши.
- Кстати, о Евах, Адамах и гуанчах…
- Уголок занудства.
- Уголок занудства.
- Уголок занудства.
- Минутка фантазии.
- Уголок занудства.
- Кстати, о Колумбе…
- Глава 9. Homo sapiens: мы.
- Все старше, и старше, и старше!.. Человек из Манот наш разум манит.
- Первый сапиенс? Последний денисовец?
- Как Кзар-Акил всех победил: в гонке “первый сапиенс” старый лидер возвращает свой статус.
- Древнейший сапиенс – на сей раз сибирский: Усть-Ишим и его ДНК.
- Древнейший сапиенс Европы!.. И опять древнейший сапиенс Европы!!!
- Великий Предок всея Азии, Океании и Америки.
- Крушение концепции “европейских папуасов”: “человек мира” – мужчина с Маркиной горы.
- Тысячи лет одиночества.
- Мороз иль солнце? Что ужасней? или Кто убил австралийских гигантов?
- Вдруг охотник выбегает… Вина людей в вымирании мегафауны установлена.
- Пожиратели ленивцев из Уругвая – первые жители Нового Света?
- Пейдж-Ладсон: мастодоны, грибы и охотники.
- Концы в воду, или Начала из воды: древнейший человек в Америке.
- “Открыть Америку”, или Необычайные приключения индейцев на Диком Востоке.
- Связующая нить ДНК: Европа – Сибирь – Америка.
- Творцы протоориньяка и ориньяка.
- Геноцид или торжество интернационализма?
- Уголок занудства.
- Первое искусство.
- Минутка фантазии.
- Кстати, о медведях и искусстве…
- Кстати, о стеатопигии…
- Минутка фантазии.
- Кстати, об оружии…
- Кстати, об инициациях…
- Кстати, о лисах…
- Заря нового мира.
- Эпилог. Пан или морлок: биологическое будущее человека.
- Мы такие, потому что жизнь такая.
- Произойдет ли разделение Homo sapiens на несколько видов и когда?
- Звено теплое.
- Звено холодное.
- Звено дикое.
- Звено мятно-розовое.
- Звено расчетное.
- Звено запредельное.
- Звено самосозидающее.
- Приложение.
- Хронология кайнозоя по общепринятой международной шкале.
- Признаки приматов.
- Сравнение адаписовых, омомисовых и первых обезьян Сравнение ранних и истинных узконосых обезьян.
- Сравнение ранних и истинных узконосых обезьян.
- Приматы и родственные группы. (Надотряд ARCHONTA).
- Обобщенная схема основных таксонов семейства гоминид.
- Вкладка.
- Литература.
- Список иллюстраций.
- Сноски.